Ten protokół wizualizuje, jak przygotować kriosekcje mysiej tkanki płucnej, przeprowadzić eksperymenty z mapą siły pod mikroskopią sił atomowych i przeanalizować dane w celu określenia modułu Younga natywnej mysiej błony podstawnej płuc.
Artykuł metodologiczny
Wyodrębnianie modułu Younga natywnych mysich błon podstawnych płuc z map sił pochodnych mikroskopii sił atomowych
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Mikroskopia sił atomowych (AFM) pozwala na scharakteryzowanie właściwości mechanicznych próbki z rozdzielczością przestrzenną kilkudziesięciu nanometrów. Ponieważ komórki ssaków wyczuwają i reagują na mechanikę swojego bezpośredniego mikrośrodowiska, charakterystyka właściwości biomechanicznych tkanek z wysoką rozdzielczością przestrzenną ma kluczowe znaczenie dla zrozumienia różnych procesów rozwojowych, homeostatycznych i patologicznych. Błona podstawna (BM), cienka podstruktura macierzy zewnątrzkomórkowej (ECM) o grubości około 100 - 400 nm, odgrywa znaczącą rolę w progresji guza i tworzeniu przerzutów. Chociaż określenie modułu Younga dla tak cienkiej podstruktury ECM jest trudne, dane biomechaniczne BM dostarczają fundamentalnych nowych informacji na temat tego, jak BM wpływa na zachowanie komórek, a ponadto oferują cenny potencjał diagnostyczny. W tym miejscu przedstawiamy zobrazowany protokół oceny mechaniki BM w mysiej tkance płucnej, która jest jednym z głównych narządów podatnych na przerzuty. Opisujemy wydajny przepływ pracy w celu określenia modułu Younga BM, który znajduje się między warstwami komórek śródbłonka i nabłonka w tkance płucnej. Instrukcje krok po kroku obejmują zamrażanie mysiej tkanki płucnej, kriosekcję i zapis mapy sił AFM na skrawkach tkanek. Dodatkowo zapewniamy półautomatyczną procedurę analizy danych za pomocą CANTER Processing Toolbox, opracowanego przez nas przyjaznego dla użytkownika oprogramowania do analizy danych AFM. Narzędzie to umożliwia automatyczne wczytywanie zarejestrowanych map sił, konwersję krzywych siły w funkcji wydłużenia piezologicznego na krzywe siły w funkcji wcięcia, obliczanie modułów Younga oraz generowanie map modułów Younga. Na koniec pokazano, jak określić i wyizolować wartości modułu Younga pochodzące z BM płuc za pomocą narzędzia do filtrowania przestrzennego.
Wprowadzenie
Mapy sił AFM stały się powszechnie stosowaną techniką do określania właściwości nanomechanicznych różnorodnych próbek biologicznych z nanometrową rozdzielczością przestrzenną i czułością siły Piconewton1,2,3,4,5,6,7,8,9,10,11,12. Pionierskie badania nad zastosowaniem pomiarów AFM do próbek biologicznych w warunkach fizjologicznych przeprowadzili P. Hansma i współpracownicy13,14,15,16,17,18,19,20. Następnie zastosowano pomiary siły AFM do oceny właściwości mechanicznych poszczególnych cząsteczek21, żywe komórki i ich cytoszkielet9,10,22,23,24,25,26, tkanki i sekcje tkanek6,8,11,27,28,29,30,31, a także biologiczne hydrożele3,4,32. W naszych badaniach wykorzystaliśmy AFM do zbadania właściwości mechanicznych wiązań biologicznych i chemicznych18,33,34,35,36,37 oraz do pomiaru cech nanomechanicznych poszczególnych komórek38,39,40. Ponadto, pomiary chrząstki płytki wzrostu8 wykazały, że architektura kolagenu i moduł Younga w macierzy zewnątrzkomórkowej (ECM) kierują podziałem chondrocytów, a co za tym idzie, kierunkiem wzrostu mysiej płytki wzrostu podczas rozwoju embrionalnego. Ponadto zbadaliśmy zmiany związane ze zwyrodnieniem chrząstki i chorobą zwyrodnieniową stawów w chrząstce stawowej2,41,42,43,44,45,46,47.
W ostatnich latach liczne badania AFM badały właściwości mechaniczne zarówno zdrowej, jak i patologicznej tkanki płucnej48,49,50,51,52. Jednak badania te dotyczyły przede wszystkim ogólnej mechaniki tkanek, nie skupiając się na konkretnych składnikach tkanki, takich jak BM. BM stanowi cienką warstwę (100 nm - 400 nm u ludzi) wyspecjalizowanej struktury ECM, która wyściela większość narządów ssaków i struktur tkankowych, takich jak neurony, mięśnie, tkanki adipocytów i naczynia krwionośne. Odkryliśmy, że właściwości mechaniczne mysiego płucnego BM odgrywają kluczową rolę podczas tworzenia przerzutów w taki sposób, że łagodniejszy BM koreluje z wyższym prawdopodobieństwem przeżycia u pacjentów z rakiem piersi i nerki53. Co więcej, badanie to ujawniło, że wydzielane białko macierzy zewnątrzkomórkowej netryna-4 zmniejsza moduł Younga BM poprzez stechiometryczną interakcję 1:1 z lamininą γ1, kluczowym składnikiem obecnym w prawie wszystkich sieciach lamininy wewnątrz BMs40.
Tutaj prezentujemy wizualizację opracowanego przez nas protokołu do wyznaczania modułu Younga (EBM) cienkiego mysiego płucnego BM o długości fali 100 - 200 nm. Moduł Younga BM jest miarą jego sztywności i jest definiowany jako stosunek naprężenia (siły na jednostkę powierzchni) do wynikowego odkształcenia osiowego (przemieszczenia) podczas liniowego odkształcenia sprężystego54, w tym przypadku niewielkie ściskanie BM przez wciętą końcówkę AFM. W eksperymencie AFM siłę i przemieszczenie (głębokość wcięcia) można uzyskać na podstawie ugięcia wspornika AFM i położenia wspornika, a moduł Younga (zależność naprężenie-odkształcenie) można wyodrębnić z wynikowej krzywej siła w funkcji wgłębienia za pomocą odpowiedniego modelu sprężystego, który uwzględnia geometrię końcówki wcięcia (w tym przypadku zmodyfikowany model Hertza55). Główne kroki są pokazane w Rysunek 1. Początkowo protokół ten określa metodologię przygotowania i osadzania próbek mysiej tkanki płucnej w związku OCT (patrz krok 1), ułatwiając w ten sposób późniejszą procedurę kriosekcji (krok 2), która umożliwia określenie sztywności BM przy użyciu map sił AFM. Przedstawiona tu technika kriosekcji, wykorzystująca taśmę jednostronną i dwustronną, umożliwia przecięcie tkanki płucnej bez konieczności utrwalania i bez rozmrażania wycinka. Szczegółowa procedura AFM służąca do zbierania odpowiednich danych do oceny sztywności BM została opisana w trzeciej sekcji protokołu. W następnej sekcji protokołu wyjaśniamy, w jaki sposób wygenerowane objętości siły mogą być automatycznie analizowane (krok 4.1) za pomocą opracowanego przez nas oprogramowania opartego na MATLAB, CANTER Processing Toolbox56. W tym kroku moduł Younga jest wyodrębniany z każdej zarejestrowanej krzywej wcięcia siły poprzez dopasowanie zmodyfikowanego modelu Hertza, który jest korygowany dla geometrii wgłębnika, w tym przypadku czworobocznej piramidy55. Na koniec opisujemy w krokach 4.2 i 4.3, jak zastosować narzędzie do filtrowania przestrzennego i narzędzie filtrujące R2 opracowanego zestawu narzędzi w celu wyodrębnienia wartości modułu Younga specyficznych dla błony podstawnej (BM) z obszernego zestawu wartości modułu Younga uzyskanych na mapie sił zawierającej wszystkie przedziały tkankowe ściany wyrostka zębodołowego.
Protokół
Wszystkie procedury postępowania z próbkami zwierzęcymi zostały zatwierdzone przez Radę ds. Eksperymentów na Zwierzętach Ministerstwa Środowiska i Żywności Danii (numer pozwolenia 2017-15-0201-01265) zgodnie z duńskim prawem o dobrostanie zwierząt. Aby zademonstrować ten protokół, użyliśmy samca myszy C57BL/6 w wieku 13 tygodni.
UWAGA: W poniższym protokole, kilka kroków wymaga obchodzenia się z próbkami tkanek. Zawsze noś odpowiednie rękawice i fartuch laboratoryjny podczas pracy z próbkami biologicznymi.
1. Przygotowanie próbki
- Umieść świeżo zebrane płuco myszy w jednorazowej foremce o wymiarach 15 x 15 x 5 mm. Używając strzykawki o pojemności 10 ml z igłą 0,9 mm, ostrożnie wstrzyknąć do próbki roztwór soli fizjologicznej buforowanej fosforanem (PBS) w stosunku 1:1 (objętość do objętości) pożywki do buforu fosforanowego (PBS), jednocześnie chowając igłę. Wstrzyknięcie należy przeprowadzić w temperaturze pokojowej, trzymając próbkę bezpiecznie za pomocą małej pęsety chirurgicznej. Wstrzyknięcie uważa się za zakończone, gdy próbka staje się spuchnięta i obserwuje się zauważalną ilość sączenia.
- Napełnij czysty OCT w formie, aż próbka zostanie całkowicie zanurzona. Aby zapewnić całkowite zamrożenie całego płuca, próbkę należy przechowywać w temperaturze -80 °C przez co najmniej 4 godziny
UWAGA: W tym momencie próbka może być przechowywana przez co najmniej 2 lata w temperaturze -80 °C. W oparciu o specyfikacje producenta dla KTZ, czas przechowywania osadzonej tkanki wynosi ponad 10 lat. Ogólnie zaleca się owijanie próbek, które muszą być przechowywane przez okres przekraczający 4 miesiące, w przezroczystą folię, aby zapobiec wchłanianiu wilgoci do próbki.
2. Kriosekcja osadzonej próbki płuc
- Reguluj temperaturę komory kriotomu do -17 °C, ponieważ jest to optymalna temperatura skrawania próbek tkanki płucnej. Ustaw temperaturę jednostki etapu cięcia na -22 °C, jeśli ta funkcja jest dostępna. Ma to na celu zapewnienie utrzymania optymalnej temperatury skrawania na powierzchni próbki przez cały proces cięcia.
- Przygotuj 40 szkiełek mikroskopowych za pomocą dwustronnej taśmy klejącej, którą ostrożnie umieszcza się na środku szkiełka podstawowego, a następnie nawiń probówkę wirówkową o pojemności 15 ml na taśmę, aby zapewnić mocne przyleganie bez pęcherzyków powietrza. Upewnij się, że długość dwustronnej taśmy klejącej jest w przybliżeniu równa szerokości bloku OCT zawierającego próbkę. Szkiełka mikroskopowe z matową krawędzią umożliwiają etykietowanie ołówkiem zawierającym informacje o próbce i numer sekcji.
- Włóż przygotowane preparaty mikroskopowe do pudełka na szkiełka. Następnie umieść pudełko z szkiełkami w komorze kriotomicznej, aby je schłodzić.
UWAGA: Schładzanie szkiełek zapobiega występowaniu cyklu zamrażania i rozmrażania podczas pobierania sekcji, co mogłoby pogorszyć właściwości mechaniczne próbki. - Przygotuj wiele jednostronnych taśm klejących, z których każda ma mniej więcej taki sam rozmiar jak zamrożony blok próbki.
- Napełnić dwa wewnętrzne pierścienie uchwytu próbki pożywką OCT. Umieść próbkę w pożywce OCT na uchwycie próbki, upewniając się, że jest tak pozioma, jak to możliwe. Następnie umieścić uchwyt na próbkę na około 10 minut w komorze kriotomicznej, aż podłoże OCT całkowicie zastygnie, a próbka zostanie mocno przymocowana do uchwytu.
- Zamontuj uchwyt przenoszący próbkę na jednostce cięcia kriotomu. Wyreguluj wszystkie istotne elementy kriotomu, takie jak nachylenie etapu cięcia i położenie ostrza, zgodnie z instrukcją obsługi urządzenia, aby ustalić płaszczyznę cięcia, która jest wyrównana równolegle do powierzchni bloku OCT.
- Przeprowadzić wstępne przycinanie próbki, dostosowując grubość przekroju do 50 μm i rozpocząć cięcie aż do osiągnięcia pożądanego miejsca w próbce (zwykle około 500 μm wewnątrz próbki płuc od jej powierzchni) w celu pobrania szkiełek tkankowych. Dostosuj grubość przekroju kriotomii do 15 μm, co odpowiada żądanej grubości skrawków tkanki.
UWAGA: Bardzo ważne jest zachowanie ostrożności podczas korzystania z narzędzia do cięcia, takiego jak kriotom. Aby zapewnić bezpieczeństwo osobiste, przestrzegaj wytycznych producenta dotyczących bezpieczeństwa i trzymaj palce z dala od ostrza. - Przymocuj kawałek jednostronnej taśmy klejącej do próbki, mocno naciskając kciukiem. Wcześniej upewnij się, że kciuk został schłodzony, przytrzymując go przez kilka sekund przy ściance komory kriotomu.
UWAGA: Taśmę należy mocno przyłożyć do próbki, ponieważ każdy brak przyczepności może spowodować oderwanie się taśmy od tkanki podczas cięcia. - Za pomocą kriotomu należy wykonać wycinek tkanki o wielkości 15 μm. Za pomocą pędzla należy skierować przekrój i zapobiec odklejaniu się taśmy klejącej od próbki podczas procedury cięcia. Dla uzyskania gładkiej powierzchni wycinka tkanki ważne jest, aby tempo cięcia pozostało powolne i stałe.
- Sekcja utworzona w poprzednim kroku leży teraz płasko na bloku ostrza z taśmą skierowaną do góry. Użyj jednego ze schłodzonych szkiełek mikroskopowych z dwustronną taśmą z pudełka na szkiełka i mocno dociśnij go do sekcji, aby go podnieść. Następnie umieść szkiełko mikroskopowe, które teraz przenosi sekcję, z powrotem do pudełka na szkiełka.
UWAGA: Podczas obchodzenia się ze szkiełkiem mikroskopowym i sekcją należy pamiętać, aby przez cały czas trzymać je w komorze kriotomowej, aby zapobiec rozmrożeniu sekcji podczas procedury cięcia. - Powtarzaj poprzednie trzy kroki, aż zostanie zebrana wymagana liczba sekcji, tj. 40.
- Po zakończeniu załóż pokrywkę na pudełko ze szkiełkami i przenieś je na suchym lodzie do zamrażarki o temperaturze -20 °C. Na koniec oczyść kriotom, dezynfekując wszystkie zużyte przedmioty i włączając światło UV w komorze kriotomowej.
UWAGA: W tym momencie protokół może zostać wstrzymany. Próbki należy przechowywać w temperaturze -20 °C do czasu wykonania pomiarów AFM. Zalecany czas przechowywania skrawków i podłoża OCT nie powinien przekraczać 6 tygodni. Po przekroczeniu tego okresu skrawki i pożywka OCT mogą wykazywać zmiany przypominające oparzenie zamrażalnicze ze względu na ich znaczną powierzchnię i skłonność do wchłaniania wilgoci.
3. Mapy siły AFM sekcji płuc
UWAGA: Dla tego protokołu, JPK NanoWizard 4XP (AFM) i zmotoryzowany stopień firmy Bruker w połączeniu z DMi8 (odwrócony mikroskop optyczny) firmy Leica zostały użyte do zarejestrowania krzywych siła-przemieszczenie sekcji płuc.
- Konfiguracja AFM
- Włączyć wszystkie wymagane urządzenia konfiguracji AFM (np. komputer, sterownik AFM, stół do tłumienia drgań, mikroskop optyczny itp.).
- Uruchom oprogramowanie sterujące AFM. W przeglądzie Wybierz eksperyment wybierz tryb zaawansowanego obrazowania QI. Dodatkowo określ miejsce, w którym mają być przechowywane dane eksperymentu i pliki kalibracyjne.
UWAGA: Jeśli nie posiadasz rozszerzenia QI Advanced Imaging, użyj trybu mapowania siły w trybie kontaktowym jako alternatywnej opcji. - Należy wybrać wysięgnik o odpowiedniej stałej sprężystości dla konkretnego rodzaju obserwowanej próbki. Do próbek miękkiej tkanki płucnej zalecany jest MLCT Cantilever F firmy Bruker z piramidalną końcówką i nominalną stałą sprężystości 0,6 N/m. Jeśli chip zawiera wiele wsporników (takich jak MLCT), usuń wszelkie dłuższe wsporniki z chipa za pomocą pęsety pod mikroskopem stereoskopowym, aby upewnić się, że tylko wspornik używany do pomiaru ma kontakt z próbką.
UWAGA: Inne wsporniki stykające się z próbką niż ten, który został użyty do pomiaru, mogą prowadzić do niepożądanego ruchu próbki podczas eksperymentu, a nawet do oderwania próbki od leżącej pod spodem taśmy.
UWAGA: Unikaj kontaktu z wspornikiem używanym do pomiaru pęsetą w bieżącym lub kolejnym kroku. - Podejmij się instalacji chipa na uchwycie wspornikowym. Włóż uchwyt do głowicy AFM. Umieść głowicę AFM na stoliku na próbkę, który znajduje się na odwróconym mikroskopie optycznym. Wyrównaj ścieżkę dźwigni optycznej zgodnie z instrukcją obsługi. Prawidłowe wyrównanie ścieżki dźwigni optycznej uzyskuje się, gdy wiązka laserowa jest początkowo umieszczona na przednim końcu wspornika pomiarowego, a następnie odbita wiązka laserowa uderza w środek segmentowej fotodiody.
- Kalibracja wspornika przy użyciu metody szumu termicznego57
UWAGA: Kalibracja wspornika obejmuje określenie jego odwróconej czułości dźwigni optycznej (InvOLS) i stałej sprężystości. Indywidualna kalibracja każdego używanego wspornika jest konieczna, ponieważ nominalna stała sprężystości zwykle podawana dla wsporników jest zwykle tylko przybliżona. W eksperymentach, w których właściwości mechaniczne próbki są określane na podstawie zarejestrowanych krzywych siły, takich jak ta opisana w niniejszym protokole, konieczne jest bezpośrednie określenie InvOLS za pomocą metody kontaktowej na sztywnym podłożu. Alternatywne metody wyznaczania InvOLS, takie jak wyprowadzenie go na podstawie geometrii wspornika, mogą zapewnić jedynie przybliżone przybliżenie i nie są odpowiednie dla opisanego tutaj typu zastosowania. Alternatywnie, jeśli używane są wsporniki, w których dostawca podaje dokładną stałą sprężystości, InvOLS można określić za pomocą procedury opisanej przez Schillera i wsp.58.- Umieścić szkiełko mikroskopowe na stoliku na próbkę AFM. Szkiełko mikroskopowe służy jako sztywne podłoże do kontaktowego oznaczania InvOLS.
- Po umieszczeniu głowicy AFM na stoliku na próbkę, opuść głowicę za pomocą silników krokowych, aż pozostała szczelina między uchwytem wspornika a szkiełkiem mikroskopu wyniesie tylko około 1 - 2 mm. Nałóż PBS na bok uchwytu wspornikowego, pozwalając mu spłynąć w dół i utworzyć płynną menisk w szczelinie między uchwytem a szkiełkiem mikroskopowym za pomocą strzykawki o pojemności 1 ml z długą igłą (0,9 mm x 70 mm).
UWAGA: Upewnij się, że ta sama ciecz, taka jak bufor lub pożywka, która jest używana do pomiarów objętości siły próbki, jest również używana w procesie kalibracji. - Aby przeprowadzić kalibrację kontaktową w oprogramowaniu, przejdź do strony Pozyskiwanie danych i wybierz opcję Widok zaawansowany. Uzyskaj dostęp do Menedżera kalibracji za pomocą przycisku menu burgera znajdującego się w prawym górnym rogu. W tym interfejsie wybierz Oparte na kontakcie jako metodę i wybierz wspornik MLCT F z menu rozwijanego jako nazwę wspornika. Dodatkowo ustaw wartość zadaną na 1 V i liczbę skanów na 10 w odpowiednich polach wejściowych.
- Na stronie Pozyskiwanie danych na lewym panelu sterowania wprowadź wartość zadaną 1 V dla procedury automatycznego zbliżania. Kliknij przycisk Niebieska strzałka skierowana w dół znajdujący się w lewym górnym rogu interfejsu użytkownika, aby rozpocząć podejście automatyczne. Po zakończeniu podejścia i zetknięciu się wspornika ze szkiełkiem mikroskopowym, kliknij przycisk Kalibruj w oknie Menedżera kalibracji.
UWAGA: InvOLS i stała sprężystości wspornikowej są następnie określane automatycznie poprzez rejestrację 10 krzywych siły, a także gęstości widmowej mocy cieplnej (PSD), która służy do określania stałej sprężystości metodą szumu termicznego57. Po zakończeniu procedury automatycznej kalibracji należy sprawdzić wzrokowo, czy dopasowana krzywa prawidłowo opisuje tryb normalny (pierwszy pik) zarejestrowanego PSD wspornika i czy wyznaczona stała sprężystości ma ten sam rząd wielkości, co nominalna stała sprężystości podana przez producenta wspornika. Jeśli tak nie jest, zakres mocowania należy ręcznie wyregulować, aby zapewnić, że dopasowanie zbiega się i reprezentuje pierwszy pik widma mocy cieplnej. - Po zakończeniu kalibracji zamknij okno Menedżera kalibracji. Po zamknięciu Menedżera kalibracji generowany jest plik kalibracyjny (plik *.tnd ascii) we wstępnie wybranym katalogu (patrz krok 3.1.2) zawierający wyznaczone wyniki kalibracji, które są później wymagane do analizy danych. Udokumentuj wartości kalibracji do wykorzystania w przyszłości podczas procesu analizy danych, na przykład w notatniku laboratoryjnym.
UWAGA: Od tego kroku należy powstrzymać się od zmiany położenia lasera na wsporniku, regulacji lusterka w głowicy AFM lub przenoszenia uchwytu wspornika. Modyfikacja tych elementów będzie miała wpływ na InvOLS i spowoduje, że wartości kalibracji będą nieprawidłowe. Aby skompensować dryft termiczny, wyreguluj położenie segmentowej fotodiody głowicy AFM.
- Analiza ściany wyrostka zębodołowego na odcinku płuca
- Wyjmij szkiełko z próbką do oceny z zamrażarki. Pozostawić próbkę do rozmrożenia w temperaturze pokojowej przez około 1 minutę, aż cała pożywka OCT stanie się klarowna. Następnie dodaj kilka kropelek PBS do sekcji tkanki płucnej, aby ją nawodnić.
- Umieść szkiełko mikroskopowe zawierające wycinek tkanki płucnej na stoliku na próbkę. Zamontuj głowicę AFM z powrotem na stoliku próbki i opuść głowicę, aż wspornik znajdzie się około 1 mm nad próbką. Dodać trochę dodatkowego PBS z boku uchwytu wspornikowego za pomocą strzykawki o pojemności 1 ml w połączeniu z igłą 0,9 mm x 70 mm, aż utworzy się płynny menisk między sekcją tkanki a uchwytem wspornikowym.
- Przejdź do Menedżera ustawień, klikając przycisk z ikoną klucza w prawym górnym rogu interfejsu użytkownika. W Menedżerze ustawień dostosuj następujące ustawienia ogólne. W sekcji Approach Settings (Ustawienia podejścia) ustaw Target Height (Wysokość docelowa) na 4 μm. Następnie w sekcji Bieżące ustawienia trybu przejdź do Zaawansowanych ustawień sprzężenia zwrotnego i ustaw mnożnik na 1. Na koniec w podsekcji Force Settings, która znajduje się również w sekcji Bieżące ustawienia trybu, wybierz opcję Wycofany piezo z menu rozwijanego Tryb na końcu.
- Użyj odwróconego mikroskopu optycznego, aby zidentyfikować i nawigować do nienaruszonej ściany wyrostka zębodołowego. Nienaruszona ściana charakteryzuje się na obrazie jasnego pola ciemnymi i gładkimi krawędziami. (patrz Rysunek 2A-B).
UWAGA: Zaimportowanie obrazu w jasnym polu w oprogramowaniu sterującym AFM, jeśli jest dostępne, może pomóc w nawigowaniu wspornikiem do określonej ściany wyrostka zębodołowego i dokładnym uchwyceniu siły lub mapy QI na jej szczycie. W oprogramowaniu JPK SPM funkcja ta określana jest mianem Direct Overlay. - Ustaw parametry krzywych siła-wgłębienie w lewym panelu sterowania w oparciu o zastosowany AFM, zastosowany wspornik i obserwowaną próbkę. W przypadku NanoWizard 4XP i MLCT Cantilever F firmy Bruker zalecamy następujące parametry: Wartość zadana = 5 nN; długość z = 8 μm; Prędkość z = 300 μm/s.
UWAGA: Zalecana długość z wynosząca 8 μm jest dość duża. Przypisuje się to charakterystyce tkanki płucnej. Biorąc pod uwagę, że tkanka płucna jest zazwyczaj dość miękka, głębokość wgłębienia może w niektórych punktach sięgać nawet 4 μm, nawet przy stosunkowo skromnej wartości zadanej 5 nN. W celu zagwarantowania, że linia podstawowa, w której końcówka nie styka się z próbką, stanowi co najmniej około połowy krzywej siła-wgłębienie, zaleca się, aby całkowita długość krzywej była ustawiona na 8 μm. To znacznie uprości późniejszą analizę krzywych. W przypadku innych bio-AFM parametry te powinny mieć również zastosowanie, chociaż nomenklatura niektórych parametrów, takich jak wartość zadana, która określa maksymalną siłę wciśnięcia, może się różnić w zależności od producenta. Jeśli system AFM nie jest w stanie osiągnąć podanej tutaj dużej prędkości pionowej, konieczne jest zmniejszenie prędkości z zgodnie z zaleceniem producenta AFM.
UWAGA: Aby zapewnić porównywalność wyników, konieczne jest stosowanie identycznych prędkości podejścia z we wszystkich eksperymentach. - Ustaw położenie i rozmiar początkowej mapy sił przeglądu, upewniając się, że obejmuje ona całą ścianę wyrostka zębodołowego, rozciągając się z jednej strony powietrza na drugą. W przypadku próbek mysiej tkanki płucnej zwykle wystarcza rozmiar od 20 μm x 20 μm do 30 μm x 30 μm. Niezależnie od konkretnego rozmiaru mapy, ustaw liczbę pikseli (która odpowiada liczbie zarejestrowanych krzywych sił) na 50 x 50. Prowadzi to do wygenerowania 2 500 krzywych siła-wgłębienie dla każdej mapy, co zapewnia rozdzielczość niezbędną do identyfikacji BM w kanale nachylenia mapy sił. (patrz Rysunek 2C-D).
- Po nagraniu mapy poglądowej sprawdź kanał wysokości i nachylenia mapy sił. Jeśli kanał wysokości wskazuje, że ściana wyrostka zębodołowego jest nienaruszona (patrz Rysunek 2D) i jeśli możliwe jest odróżnienie BM w kanale nachylenia jako wyraźnie zdefiniowanej jasnej linii (patrz Rysunek 2C,E) znajdującej się między dwiema warstwami nabłonka i śródbłonka, uchwyć bardziej skoncentrowaną mapę sił o rozmiarze 3 μm x 3 μm lub 4 μm x 4 μm na BM. Zachowaj Piksele na krzywych 50 x 50.
UWAGA: Ta procedura prowadzi do wyższej rozdzielczości mapy i pozwala na zapis większej liczby wartości modułu Younga, szczególnie dla BM (patrz Rysunek 2E-F). Co więcej, umożliwia to dokładniejsze różnicowanie BM i otaczających tkanek, zwiększając precyzję późniejszego procesu filtracji przestrzennej. Jeśli kanały na mapie przeglądowej pokazują zapadniętą lub pękniętą ścianę, artefakty spowodowane dotknięciem próbki przez wspornik nie tylko końcówką lub brak możliwego do zidentyfikowania BM w kanale nachylenia, przejdź do innej ściany w sekcji tkanki, aż będzie można zidentyfikować ścianę z oceną BM bez artefaktów.
Powtórzyć poprzednie kroki (3.3.6 i 3.3.7) na dalszych odcinkach tej samej próbki płuc, aż do oceny pożądanej liczby ścian wyrostka zębodołowego. Zaleca się co najmniej cztery ścianki dla każdej próbki płuc, aby osiągnąć wiarygodne wyniki59. - Po zakończeniu pomiaru wyczyść wszystkie urządzenia i materiały, które miały kontakt z próbką i PBS. Jeśli próbka nie jest już potrzebna, wyrzuć ją do szklanego pojemnika na odpady, który można sterylizować w autoklawie. Zapisz wszystkie zarejestrowane dane i wyłącz oprogramowanie sterujące AFM oraz komputer. Na koniec wyłącz wszystkie urządzenia elektryczne, które były używane.
UWAGA: W tym momencie protokół może zostać wstrzymany. Dane eksperymentalne są zapisywane i mogą być analizowane w późniejszym czasie.
4. Analiza danych
- Analiza krzywych siła-wgniecenie
UWAGA: Szczegółową instrukcję obsługi aplikacji Analiza krzywej siły można znaleźć tutaj: https://github.com/CANTERhm/CANTER_Processing_Tool/wiki/2a.-Force-Curve-Analysis.- Uruchom CANTER Processing Toolbox56 w MATLAB i otwórz aplikację do analizy krzywej siły.
UWAGA: Przybornik można pobrać z repozytorium GitHub, klikając ten link: https://github.com/CANTERhm/CANTER_Processing_Tool. Plik README.md, zawierający obszerny przewodnik po tym, jak zainstalować oprogramowanie i uruchomić je za pomocą MATLAB, jest dostępny w repozytorium GitHub. Więcej informacji na temat każdej aplikacji dołączonej do zestawu narzędzi można znaleźć na odpowiedniej stronie wiki pod adresem https://github.com/CANTERhm/CANTER_Processing_Tool/wiki. - Załaduj mapę sił o wysokiej rozdzielczości (3 μm x 3 μm lub 4 μm x 4 μm), klikając przycisk Wybierz plik, przechodząc do lokalizacji, w której zapisana jest mapa sił, klikając ją dwukrotnie, a następnie klikając przycisk Załaduj dane w interfejsie użytkownika aplikacji.
- Pojawi się wyskakujące okienko z prośbą o wartości kalibracji (InvOLS i stała sprężystości), które zostały określone (patrz krok 3.2) dla wspornika użytego do zapisania mapy sił wybranej w poprzednim kroku protokołu. Wprowadź wartości kalibracji w odpowiednich polach edycyjnych. Jeśli nie zostały one udokumentowane w kroku 3.2.4, należy zapoznać się z automatycznie wygenerowanym plikiem kalibracyjnym, który zawiera również wartości kalibracji. Pozostaw domyślną opcję tak dla pytania, czy należy obliczyć separację końcówka-próbka. Następnie kliknij przycisk Prześlij, aby kontynuować.
- Pojawi się drugie wyskakujące okienko, w którym można wybrać geometrię wgłębnika i współczynnik Poissona dla wciętej próbki. W przypadku używanych wsporników MLCT wybierz Ostrosłup czworoboczny jako geometrię końcówki i wprowadź 17,5° dla kąta połówkowego do krawędzi (obie wartości są wartościami domyślnymi). Użyj domyślnego współczynnika Poissona wynoszącego 0,5, który reprezentuje materiał nieściśliwy. Aby kontynuować procedurę wczytywania mapy QI, kliknij przycisk Prześlij.
UWAGA: Podczas procedury załadunku zarejestrowane krzywe ugięcia-przemieszczenia (surowe dane AFM) są przekształcane w krzywe siła-wgniecenie w oparciu o podane wartości kalibracji. Aby uzyskać pełne zrozumienie poszczególnych etapów transformacji i związanych z nimi równań, zapoznaj się z informacjami uzupełniającymi Hartmann et al.59. - Po zakończeniu procesu załadunku na ekranie zostanie wyświetlona początkowa krzywa siły mapy sił. Upewnij się, że wybrano tryb korekcji linii bazowej Przesunięcie + Pochylenie. Ten tryb automatycznie wykrywa linię bazową krzywej siła-indukcja i koryguje nachylenie oraz przesunięcie pionowe na zero. Dodatkowo jako algorytm dla Wyszukiwarki Punktów Kontaktowych należy wybrać model via Hertz i użyć wartości 20% w przeznaczonym do tego polu edycyjnym dla tej opcji. Algorytm ten jest szczególnie dobrze przystosowany do wykrywania punktu kontaktu w krzywych siła-wgniecenie, które zostały zarejestrowane na próbkach tkanek miękkich. Na koniec ustaw głębokość dopasowania w odpowiednim polu edycyjnym na 1,5 μm.
UWAGA: Aby upewnić się, że sztywność szkiełka mikroskopowego nie wpływa na wynikowy moduł Younga, zaleca się ustawienie maksymalnej głębokości dopasowania na wartość nie większą niż 10% grubości przekroju tkanki60. Aby uzyskać więcej informacji na temat algorytmów korekcyjnych, zobacz dodatkowe informacje Hartmann et al.59.
UWAGA: Używaj tej samej głębokości dopasowania podczas eksperymentów, aby zagwarantować, że wyniki są porównywalne. - Aby zastosować dopasowanie zmodyfikowanego modelu Hertza do wszystkich krzywych sił-wcięć na mapie QI, kliknij przycisk Zachowaj i zastosuj do wszystkich. Otworzy się okno dialogowe z pytaniem, czy każda krzywa siły powinna być wyświetlana podczas analizy. Brak wyświetlania krzywych powoduje nieznaczne przyspieszenie szybkości przetwarzania.
- Po zakończeniu ostatniej analizy krzywej siły pojawi się okno z pytaniem, czy wyniki dopasowania powinny zostać zapisane. Aby zapisać wyniki w obu. tsv (wartości rozdzielane tabulatorami) i .xlsx (Excel), kliknij Tak i wprowadź nazwę plików wynikowych. Dodatkowo zapisywany jest plik tekstowy o rozszerzeniu *.meta_data, który zawiera wszystkie szczegóły dotyczące analizy krzywych, takie jak wykorzystane wartości kalibracji, wybrany model dopasowania, wybrany algorytm wykrywania punktu kontaktowego, zakres dopasowania i inne istotne informacje.
- Zamknij aplikację Analiza krzywej siły, klikając ikonę krzyżyka w prawym górnym rogu okna głównego.
- Uruchom CANTER Processing Toolbox56 w MATLAB i otwórz aplikację do analizy krzywej siły.
- Filtrowanie przestrzenne wyników map QI
UWAGA: Krok filtrowania przestrzennego zapewnia, że do dalszej analizy brane są pod uwagę tylko wartości modułu Younga map QI pochodzących z BM. Szczegółową instrukcję obsługi narzędzia do filtrowania wyników można znaleźć tutaj: https://github.com/CANTERhm/CANTER_Processing_Tool/wiki/Result-Filtering-Tool.- Z listy aplikacji w oknie wyboru aplikacji w programie CANTER Processing Toolbox wybrać Narzędzie do filtrowania wyników i uruchomić aplikację, klikając przycisk Uruchom aplikację.
- Aby załadować wyniki dopasowania, kliknij Otwórz na górnym pasku menu interfejsu użytkownika narzędzia do filtrowania wyników. W kolejnym oknie podręcznym odszukaj pierwszy przycisk Ustaw znajdujący się w zakładce Mapy JPK i wybierz plik .tsv, który zawiera wyniki analizy krzywej siły (patrz krok 4.1.6). Kliknij drugi przycisk Set i znajdź plik mapy QI, który odpowiada już wybranemu plikowi .tsv. Następnie kliknij przycisk Prześlij, aby wczytać dane mapy i wyniki analizy krzywej siły.
- Wybierz opcję Emodul z górnego menu rozwijanego Wyświetlany kanał, aby wyświetlić uzyskane wyniki modułu Younga jako obraz mapy. Ponadto wybierz opcję Emodul (jeśli nie została jeszcze wybrana) z menu rozwijanego Kanał danych znajdującego się pod wykresem histogramu, aby zobrazować rozkład wartości modułu Younga załadowanej mapy QI.
- Kliknij przycisk strzałki przepływu manipulacji, który znajduje się na środku interfejsu użytkownika i upewnij się, że jest skierowany w prawą stronę. Ustaw przełącznik filtra obrazu w pozycji Włączone w panelu filtrów znajdującym się nad osiami histogramu. Wybierz opcję Odręczny z menu rozwijanego Filtruj geometrię, a następnie kliknij przycisk Dodaj.
- Na obrazie górnego kanału narysuj maskę filtra, okrążając BM, przytrzymując lewy myszy. BM jest identyfikowalny na mapie modułu Younga jako jasna (wysokie wartości modułu Younga) struktura w porównaniu z sąsiednią miękką tkanką (patrz Rysunek 3A). Po zakończeniu rysowania maski zwolnij lewy myszy i kliknij dwukrotnie maskę, która ma zostać zastosowana do mapy. Wykres histogramu po prawej stronie pokazuje teraz tylko wartości modułu Younga dla regionów mapy, które są podświetlone na zielono (kolor domyślny; patrz Rysunek 3C-D).
- Aby utworzyć nowy plik wynikowy .tsv zawierający tylko wartości modułu maskowanego Younga, kliknij na górnym pasku menu interfejsu użytkownika Zapisz > Zapisz histogram > Zapisz dane. Możesz też kliknąć prawym przyciskiem myszy pusty obszar osi kreślenia histogramu i wybrać opcję Zapisz dane z menu kontekstowego.
- Kliknij Zaznacz wszystko w wyskakującym okienku z pytaniem, które wyniki zapisać w pliku .tsv. Następnie potwierdź wybór, klikając przycisk OK. Następnie wprowadź nazwę pliku .tsv w oknie dialogowym zapisywania, wybierz żądaną lokalizację zapisywania, a na koniec kliknij OK, aby zapisać przefiltrowane wyniki.
- Zamknij narzędzie do filtrowania wyników, klikając ikonę krzyżyka w prawym górnym rogu aplikacji.
- R2 Filtrowanie wyników
UWAGA: Ten krok protokołu zapewnia, że brane są pod uwagę tylko wyniki modułu Younga, w których zmodyfikowany model Hertza wykazał dobrą zgodność z krzywą siła-wgniecenie, do której został dopasowany. Szczegółową instrukcję obsługi narzędzia filtrującego R² można znaleźć tutaj: https://github.com/CANTERhm/CANTER_Processing_Tool/wiki/R%C2%B2-Filtering-Tool.- Uruchom narzędzie filtrujące R², wybierając je z listy aplikacji w oknie wyboru aplikacji w CANTER Processing Toolbox i klikając na Start Application.
- Przejdź do górnego paska menu interfejsu użytkownika i kliknij Otwórz plik .tsv. W kolejnym oknie dialogowym ładowania pliku zlokalizuj plik .tsv zawierający wyniki modułu Younga BM zapisane w poprzednim kroku 4.2.5 i wybierz go, klikając dwukrotnie.
- Zostanie wyświetlone okno dialogowe z listą kolumn danych zawartych w pliku tsv. Wybierz Emodul jako kolumnę zawierającą dane modułu Younga. Następnie, w osobnym oknie dialogowym listy żądającym danych R², wybierz rsquare_fit. Po zakończeniu procedury ładowania, załadowane dane modułu Younga są wyświetlane w postaci histogramu w lewym górnym rogu ekranu, podczas gdy rozkład danych R² jest przedstawiony na wykresie w prawym górnym rogu.
- Wpisz 0,96 w polu edycji znajdującym się pośrodku graficznego interfejsu użytkownika. Kliknij przycisk Filtruj dane, aby zastosować filtr R² przy użyciu wprowadzonej wartości. Ta akcja spowoduje zachowanie tylko tych wyników, które mają wartość R² równą 0,96 lub wyższą. Przefiltrowane rozkłady wyników modułu Younga i odpowiadające im wartości R² są wyświetlane w dolnej połowie interfejsu użytkownika.
- Wybierz pozycję Zapisz przefiltrowane dane na górnym pasku menu, aby utworzyć nowy plik tsv, który zawiera tylko wyniki spełniające zdefiniowane kryterium filtru R² > 0,96. Zapisane dane mogą być teraz wyświetlane jako histogram, na przykład za pomocą narzędzia do kreślenia histogramu, które wizualizuje rozkład modułu Younga dla sondowanego BM płucnego (patrz Rysunek 4A).
Wyniki
Po identyfikacji i pomiarze nienaruszonej ściany pęcherzyka płucnego, głównym wynikiem tego protokołu są przefiltrowane wartości modułu Younga dla BM. Należy zauważyć, że w każdym przekroju tkanki nie jest możliwe znalezienie odpowiedniej ściany pęcherzyka do pomiaru AFM. W naszych obserwacjach eksperymentalnych około 75% krioprzekrojów pobranych z próbek płuc myszych wykazywało mierzalną ścianę pęcherzyka. Aby dokładnie określić rozkład przestrzenny modułu Younga w płucnej BM, zalecamy stosowanie map sił obejmujących obszar 3 µm x 3 µm lub 4 µm x 4 µm. Takie podejście zapewnia wystarczającą rozdzielczość do badania płucnych BM myszy, których grubość zazwyczaj wynosi od 100 nm do 200 nm. W związku z tym podejście eksperymentalne polega na zarejestrowaniu 50 x 50 krzywych siły dla każdej mapy sił, co daje łącznie 2 500 krzywych siły. W obrębie mapy sił krzywe te są rozmieszczone równomiernie. Oznacza to, że oprócz modułu Younga dla BM, badane są również struktury tkankowe otaczające BM, nawet w przypadku małych map sił. Dlatego, aby dokładnie i selektywnie wyznaczyć moduł Younga wyłącznie dla płucnej BM, w niniejszym protokole zastosowano dwuetapowy proces filtrowania.
Pierwszy etap filtrowania przestrzennego, zależny od operatora, pozwala na wybranie wyników dopasowania krzywych siły pochodzących z błony podstawnej (BM) płuc myszy, co stanowi około 10% do 25% całkowitej liczby wartości wyników zawartych w analizowanej mapie sił. Po tym wstępnym filtrowaniu przestrzennym do dalszej analizy zachowuje się około 250 - 625 wyników dopasowania. Kolejny krok filtrowania zapewnia, że uwzględnione zostaną tylko wyniki związane z BM pochodzące z krzywych siły, które są odpowiednio opisane przez zmodyfikowany model Hertza. W związku z tym, jako kryterium filtrujące wykorzystuje się współczynnik determinacji (R2) dopasowania zmodyfikowanego modelu Hertza. Nasze doświadczenie empiryczne sugeruje, że zachowanie wyników z wartościami R2 wyższymi niż 0,96 jest odpowiednie dla wyników dopasowania uzyskanych przy przestrzeganiu niniejszego protokołu. Należy zauważyć, że wartość R2 jest w znacznym stopniu zależna od jakości (gładkości) i długości linii bazowej krzywej siły, wyznaczenia punktu kontaktu oraz zbieżności dopasowanego modelu. Po zastosowaniu obu procedur filtrowania dla BM pojedynczej ściany pęcherzyka zazwyczaj pozostaje około 100 do 500 wartości modułu Younga.
Rozkład pozostałych wartości modułu Younga dla BM można zwizualizować za pomocą histogramu (Rysunek 4A). Należy zauważyć, że otrzymane wartości modułu Younga dla BM płuc wykazują rozkład log-normalny, co jest powszechnie obserwowane w przypadku zmiennych losowych, które mogą przyjmować wyłącznie wartości dodatnie61. Jest to przedstawione na wykresie QQ na Rysunku 4B. W konsekwencji, do rozkładu logarytmicznie przekształconych wartości modułu Younga (E) można dopasować rozkład normalny (Gaussa). W tym przypadku do przekształcenia wartości E zastosowano logarytm naturalny (ln). Położenie szczytu rozkładu (µ) oraz odchylenie standardowe (σ) zostały wyznaczone z tego dopasowania, a następnie poddane odwrotnemu przekształceniu w celu uzyskania reprezentatywnego modułu Younga, oznaczonego jako EBM, przy użyciu następującego równania:
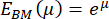
Należy zauważyć, że po przeprowadzeniu retransformacji przedział odchylenia standardowego nie jest już symetryczny względem wartości szczytowej. Negatywną (σ-) i pozytywną (σ+) krawędź przedziału odchylenia standardowego można obliczyć, korzystając z następujących wyrażeń:
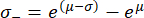
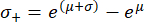
Równania te wynikają z faktu, że funkcja wykładnicza jest funkcją odwrotną do logarytmu naturalnego62.
Po ponownej transformacji wartości szczytowej μ = 9,31 oraz odchylenia standardowego σ = 0,18 wyznaczonych z histogramu na Rysunku 4A, reprezentatywna wartość modułu Younga wynosi EBM = 11,05 kPa z przedziałem odchylenia standardowego [-1,82 kPa, +2,18 kPa]. Alternatywnie, do histogramu nieprzetransformowanych wartości modułu Younga (E) można dopasować rozkład log-normalny, aby wyznaczyć charakterystyczne parametry rozkładu.
Zaleca się analizę co najmniej czterech ścian na mysz w celu uzyskania wiarygodnego, reprezentatywnego wyniku, co szczegółowo opisaliśmy w pracy Hartmann et al.59. Aby wyznaczyć reprezentatywny moduł Younga EBM dla danej myszy, wartości logarytmowane wszystkich czterech ścian naniesiono na jeden wspólny histogram, a następnie wyznaczono µ i σ poprzez dopasowanie rozkładu normalnego. Następnie wartości µ i σ poddano odwrotnej transformacji, zgodnie z wcześniejszym opisem, aby otrzymać EBM oraz przedział odchylenia standardowego dla badanej myszy.
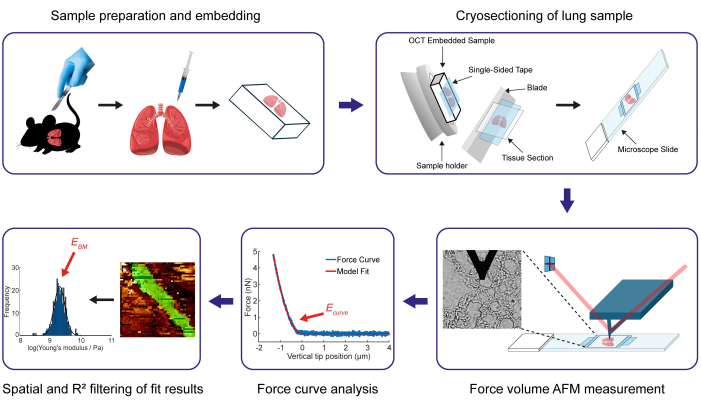
Rysunek 1: Przegląd głównych etapów protokołu służącego do oznaczenia modułu Younga błony podstawnej płuc myszy. Pierwszy krok obejmuje pozyskanie i przygotowanie płuc mysich, a następnie ich zatopienie. W tym celu do płuc wstrzykuje się mieszaninę medium OCT i PBS, a następnie całkowicie zanurza je w związku OCT. Następnie, za pomocą kriotomu, wykonuje się kriosekcjonowanie w celu uzyskania przekrojów tkanki płucnej o grubości 15 µm. W niniejszym protokole szczegółowo opisujemy proces wykorzystania jednostronnych i dwustronnych taśm klejących do unieruchomienia próbek podczas procesu cięcia. Następnie, poprzez pomiary mapy sił AFM na przekrojach tkankowych, wyznacza się wartości modułu Younga dla BM. Po zakończeniu procesu analizy krzywych siły zastosowano filtrowanie przestrzenne oraz filtrowanie R², aby wyodrębnić wyniki modułu Younga dla analizowanej struktury, konkretnie dla BM (zaznaczonej na zielono na mapie sił i ilościowo określonej na rozkładzie logarytmicznym modułu Younga). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
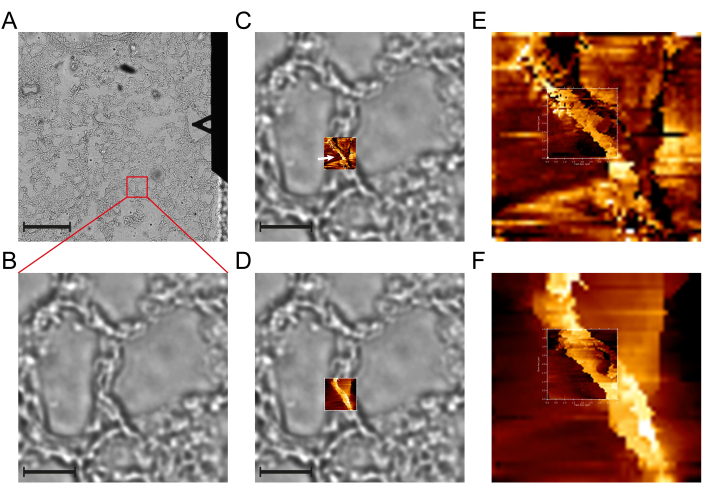
Rysunek 2: Przykładowy eksperyment mapowania sił AFM przeprowadzony na przekroju tkanki płuca myszy. (A) Obraz z mikroskopii w jasnym polu przedstawiający przekrój tkanki płuca myszy, umożliwiający identyfikację odpowiednich, nienaruszonych ścian pęcherzyków znajdujących się pomiędzy dwoma pęcherzykami płucnymi. Po prawej stronie obrazu widoczny jest trójkątny wspornik F MLCT urządzenia AFM. (B) Powiększony widok wybranej ściany w przekroju tkankowym. (C) Kanał nachylenia (slope) i (D) kanał wysokości (height) mapy ogólnej o rozmiarach 15 x 15 µm zawierającej 50 x 50 krzywych sił ściany pęcherzyka. W kanale nachylenia błona podstawna (BM) jest widoczna jako jasna linia (biała strzałka), co wskazuje na strukturę o zwiększonej sztywności w obrębie ściany. Kanał wysokości potwierdza integralność ściany, nie wykazując oznak przerwania. Po zidentyfikowaniu BM na mapie ogólnej 15 x 15 µm, zarejestrowano mniejszą mapę 4 x 4 µm (E: kanał nachylenia, F: kanał wysokości) z 50 x 50 krzywymi sił. Paski skali: (A) 200 µm oraz (B-D) 25 µm. Zakresy skal kolorystycznych dla przedstawionych obrazów AFM wynoszą (C) 2,36 - 9,29 nN/µm, (D) 0 - 3,38 µm, (E) 2,36 - 9,29 nN/µm (obraz ogólny) i 2,42 - 8,37 nN/µm (mniejszy obraz), (F) 0 - 3,38 µm (obraz ogólny) i 0 - 1,99 µm (mniejszy obraz), od ciemnego do jasnego. Dla wszystkich obrazów AFM zastosowano liniowe skale kolorów. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 3: Wizualizacja procedury filtrowania przestrzennego. (A) Mapa modułu Younga uzyskana z analizy krzywych siły, przedstawiona w narzędziu Result Filtering Tool w celu umożliwienia przestrzennego filtrowania wyników. Błonę podstawową (BM) można zidentyfikować jako jasny prążek (wysokie wartości modułu Younga) otoczony przez miększe obszary tkanki. (B) Histogram wartości modułu Younga odpowiadający niefiltrowanej mapie (A). Po (C) zastosowaniu maski filtra przestrzennego (obszar zielony), (D) histogram obejmuje wyłącznie wartości modułu Younga z zaznaczonego na zielono regionu, który zidentyfikowano jako BM. Należy zauważyć, że pozostałe niskie wartości widoczne po lewej stronie histogramu można przypisać słabo zbieżnym dopasowaniom, które zostaną usunięte w kolejnym kroku filtrowania R². Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
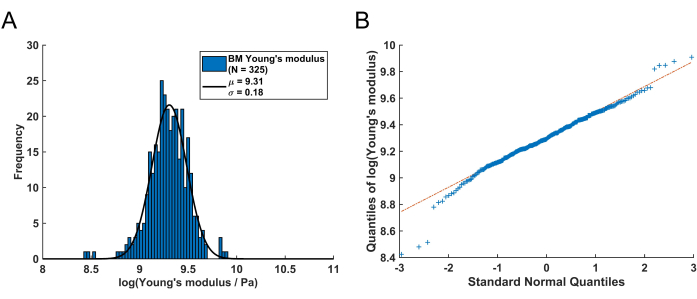
Rysunek 4: Rozkład modułu Younga mysiej macierzy pozakomórkowej (BM) płuc uzyskany po zastosowaniu niniejszego protokołu. (A) Logarytmicznie znormalizowany histogram otrzymanych wartości modułu Younga BM (N = 325). Poprzez dopasowanie rozkładu normalnego (czarna ciągła linia) wyznaczono wartość średnią µ = 9.31 z odchyleniem standardowym σ = 0.18. Po odwrotnej transformacji odpowiada to modułowi Younga BM wynoszącemu EBM = 11.05 kPa z asymetrycznym przedziałem odchylenia standardowego [-1.82 kPa, +2.18 kPa]. (B) Wykres QQ kwantyli zlogarytmowanych wartości modułu Younga BM w stosunku do kwantyli standardowego rozkładu normalnego. Wykres ten pokazuje, że z wyjątkiem niektórych wartości w lewym i prawym ogonie rozkładu, otrzymane wartości modułu Younga mają głównie rozkład log-normalny. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Charakterystyka mechaniczna BM spotkała się z dużym zainteresowaniem ze względu na ich wpływ na różne funkcje komórkowe, takie jak pączkowanie guza, różnicowanie komórkowe, ruch komórek i dostępność chromatyny 53,63,64,65,66,67,68 . W związku z tym istnieje niewypełniona luka w zdolności do oceny mechaniki BM w spójny i mierzalny sposób. Protokół ten ma na celu umożliwienie użytkownikom AFM określenia modułu Younga płucnych BM na podstawie zdrowych lub patologicznych próbek płuc myszy uzyskanych od myszy typu dzikiego lub zmodyfikowanego genetycznie. Przyjazna dla użytkownika aplikacja MATLAB CANTER Processing Toolbox56 oparta na graficznym interfejsie użytkownika ułatwia dalszą analizę danych AFM. Oczekuje się, że protokół ten będzie przydatny dla innych badaczy prowadzących badania, które mogą prowadzić do postępów w diagnostyce klinicznej, leczeniu lub nowych strategiach leczenia chorób płuc.
Krytyczne kroki w protokole obejmują zapewnienie, że podczas kriosekcji próbki płuc skrawki tkanek nie rozmrażają się w żadnym momencie, aby zapobiec zmianom właściwości mechanicznych spowodowanych cyklami zamrażania i rozmrażania. Dlatego ważne jest, aby do zbierania skrawków używać wyłącznie wstępnie schłodzonych szkiełek mikroskopowych i obchodzić się z nimi tylko w komorze kriotomu. Najważniejszym krokiem podczas rejestrowania map sił na ścianie wyrostka zębodołowego jest wykorzystanie wygenerowanego obrazu nachylenia, który zapewnia jakościowy przegląd rozkładu sztywności badanego obszaru, w celu określenia odpowiedniego miejsca pomiaru BM. Filtrowanie przestrzenne uzyskanych wartości modułu Younga stanowi krytyczny krok w protokole i jest kluczową cechą zestawu narzędzi do przetwarzania CANTER. Ten etap filtrowania umożliwia badaczowi zidentyfikowanie BM, który znajduje się między dwiema bardziej miękkimi warstwami komórek, poprzez jego charakterystyczny sztywniejszy ślad i wyodrębnienie odpowiednich wartości modułu Younga BM do dalszej analizy.
Ten zaawansowany proces analizy wykazał, że myszy z nokautem netryny-4 wykazywały znacznie (około dwukrotnie) wyższy moduł Younga w błonie podstawnej płuc w porównaniu z myszami z dzikim miotem53. W związku z tym niniejszy protokół ułatwia analizę porównawczą różnych warunków lub grup.
Oprócz AFM istnieje wiele metodologii badania właściwości mechanicznych biomateriałów, obejmujące pęsety optyczne lub magnetyczne 69,70,71 na poziomie molekularnym, techniki mikrowgłębień72,73 w skali pośredniej oraz testy kompresji ograniczonej lub nieograniczonej74,75 na poziomie makroskopowym. W szczególności miografia ciśnieniowa, próby rozciągania76,77 i reologia78 zostały wykorzystane do oceny sztywności BM próbek naczyniowych i odtworzonych matryc BM. Jednak techniki takie jak miografia ciśnieniowa i próba rozciągania mogą ocenić tylko właściwości mechaniczne całych tkanek lub całych struktur tkankowych, takich jak całe naczynia krwionośne, które obejmują różne warstwy komórek i elementy strukturalne. W rezultacie, przy stosowaniu tych metod do oceny biomechaniki BM, właściwości mechaniczne innych niż BM, takie jak składniki komórkowe, są zawsze nakładane na wyniki BM, co utrudnia wyizolowanie specyficznych właściwości samego BM.
W tym protokole cecha będąca przedmiotem zainteresowania (BM) jest wyodrębniana poprzez filtrowanie przestrzenne wyników mapy sił. Ograniczeniem tego podejścia jest wymóg, aby cecha będąca przedmiotem zainteresowania była dostrzegalna i możliwa do zidentyfikowania jako wyraźny wzór w uzyskanych mapach modułu Younga lub w dowolnym innym dostępnym kanale mapy. Na przykład BM w tkance wyrostka zębodołowego można zidentyfikować wyłącznie ze względu na jego wzajemnie połączoną strukturę, która wykazuje znacznie wyższy moduł Younga w porównaniu z otaczającymi komórkami. W związku z tym BM manifestuje się jako ciągły jasny pasek na uzyskanych mapach modułu Younga. Niemniej jednak inne struktury biologiczne wykazują właściwości mechaniczne, które nie różnią się na tyle od właściwości otaczającej tkanki, aby umożliwić filtrowanie przestrzenne w wynikach mapy. Chociaż protokół można łączyć z innymi metodami identyfikacji struktur na zarejestrowanych mapach sił, takimi jak barwienie immunofluorescencyjne, takie podejście może przynieść wyniki, które są trudne do interpretacji. To powikłanie może wystąpić, ponieważ procedury barwienia mogą zmienić właściwości mechaniczne tkanek. W związku z tym jakiekolwiek przetwarzanie lub barwienie tkanki przed pomiarami AFM powinno być przeprowadzane tylko wtedy, gdy nie jest dostępna żadna alternatywna metoda identyfikacji cechy będącej przedmiotem zainteresowania. Ponadto ważne jest przeprowadzenie odpowiednich eksperymentów kontrolnych porównujących właściwości biomechaniczne próbek barwionych i niebarwionych.
Protokół wprowadza metodę identyfikacji struktur docelowych na podstawie kontrastu modułu Younga. W związku z tym może być stosowany do tkanek o anatomicznym BM podobnym do płuc, w tym tarczycy, okrężnicy i prostaty. (patrz Rozszerzony rysunek danych w Hartmann et al.59). Chociaż początkowo został opracowany do analizy mechaniki BM, protokół ten i CANTER Processing Toolbox56 są wystarczająco wszechstronne, aby zbadać dowolny mechanicznie odrębny i połączony region na mapach sił AFM (patrz instrukcje na www.github.com/CANTERhm/CANTER_Processing_Tool/wiki). To szerokie zastosowanie sprawia, że narzędzie to jest cenne w całej dziedzinie AFM i wspiera rosnące zainteresowanie mechanobiologią w szerszej społeczności naukowej.
Oświadczenia
Autorzy deklarują brak sprzecznych interesów.
Podziękowania
B.H. i H.C.-S. potwierdzają finansowanie przez Bawarskie Ministerstwo Nauki i Sztuki przez Bawarski Focus Bawarski Focus Badawczy Herstellung und biophysikalische Charakterisierung von dreidimensionalen Geweben (CANTER) oraz Bawarskie Forum Akademickie (BayWISS)-Konsorcjum Doktoranckie Badań nad Zdrowiem. Opracowanie oprogramowania do analizy danych CANTER Processing Toolbox zostało sfinansowane przez Niemiecką Fundację Badawczą w ramach podprojektu 1 (CL 409/4-1/2) konsorcjum badawczego Badanie zwyrodnienia i regeneracji chrząstki stawowej oraz kości podchrzęstnej w chorobie zwyrodnieniowej stawów - ExCarBon (FOR2407-1/2). B.H. oraz H.C.-S. potwierdzić finansowanie przez Niemiecką Fundację Badawczą w ramach dużej kampanii dotyczącej oprzyrządowania GGA-HAW (INST 99/38-1). Prace te były dodatkowo wspierane przez Duńskie Towarzystwo Onkologiczne (R204-A12454 (R.R.)) oraz Niemiecką Fundację Badawczą (539446614 do R.R.).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Strzykawka 1 ml | B Braun | 9166017V | Injekt-F |
| 10 mL Strzykawka | B Braun | 4606108V | Injekt Luer Solo |
| 15 ml Rurka Falcon Rurka | nakrętką | Sarstedt | 62.554.002 |
| Wspornik - MLCT | Sondy AFM Bruker | 3444 | Wspornik AFM w kształcie piramidy |
| Ostrza kriotomu | Leica Biosystems | 14035843496 | Niskoprofilowe ostrza jednorazowe DB80LX |
| Uchwyt na próbki kriotomu | Leica Biosystems | 14047740044 | Dysk na próbki 30 |
| Cyotome | Leica Biosystems | CM1950 | Leica Cryostat |
| Direct Overlay Extension | Bruker | do oprogramowania JPK SPM, które umożliwia import obrazu optycznego mikroskopu odwróconego do przeglądarki danych oprogramowania SPM. | |
| Jednorazowa forma bazowa | Usługi naukowe | SA62534-15 | Tissue-Tek Cryomold 15x15x5 mm |
| Taśma | dwustronna tesa Film | 56661-00002 | Taśma do filmów fotograficznych |
| Uchwyt wspornikowy ze sprężyną | |||
| - Leica DMi8 | Leica Microsystems | ||
| JPK Zmotoryzowany stolik | montażowy Bruker | ||
| JPK NanoWizard 4XP BioScience | Oprogramowanie Bruker | ||
| JPK SPM | Mikroskop Bruker | ||
| K5 CMOS Kamera | Leica Microsystems | ||
| MATLAB | Mathworks | Wersja R2024a lub wyższa | |
| MATLAB - Zestaw narzędzi do dopasowywania krzywych | Mathworks | ||
| MATLAB - Zestaw narzędzi do przetwarzania obrazów | Mathworks | ||
| MATLAB - Przybornik do przetwarzania sygnałów | Mathworks | ||
| MATLAB - Zestaw narzędzi do statystyki i uczenia maszynowego | Preparaty mikroskopowe Mathworks | ||
| Carl Roth | H869.1 | Zwykłe szkiełka mikroskopowe do kalibracji wspornikowej Szkiełka | |
| mikroskopowe - matowa krawędź | Carl Roth | H870.1 | Szkiełka mikroskopowe z matową krawędzią do kriosekcji |
| Igła i ukośnik; 0,9 mm i razy; 25 mm | B Braun | 4657500 | OCT wstrzyknięcie do próbki płuc |
| Igła ø 0,9 mm i razy; 70 mm | B Braun | 4665791 | Długa igła do nakładania PBS pod związek AFM |
| OCT | Sakura Finetek | 4583 | Tissue-Tek O.C.T. Compound |
| Sól fizjologiczna buforowana fosforanem | Bio& Sprzedam | BS.L1825 | PBS bez Ca2+, Mg2+, 500 mL |
| QI Advanced Imaging Extension | Rozszerzenie oprogramowania Bruker | dla oprogramowania JPK SPM, które zapewnia dla każdego zarejestrowanego piksela obrazu całą podstawową krzywą siły. | |
| Skalpel | B Jednorazowe | skalpeli | 5518083 |
| M681700 Kaut-Bullinger | 13 cm | ||
| Taśma | jednostronna tesa Film | 57330-00000 | krystalicznie czysta taśma, 33 m x 19 mm |
| Pudełko na slajdy | GWL Systemy magazynowania | K50W | Slidebox na 50 szkiełek |
| Mikroskop stereoskopowy - Pęseta Zeiss | |||
| - Vomm SS-SA-ESD | Eleshop | ELE002121 |
Bibliografia
- Alsteens, D., et al. Atomic force microscopy-based characterization and design of biointerfaces. Nat Rev Mater. 2 (5), 17008(2017).
- Aro, E., et al. Severe extracellular matrix abnormalities and chondrodysplasia in mice lacking collagen prolyl 4-hydroxylase isoenzyme II in combination with a reduced amount of isoenzyme I. J Biol Chem. 290 (27), 16964-16978 (2015).
- Domke, J., Radmacher, M. Measuring the elastic properties of thin polymer films with the atomic force microscope. Langmuir. 14 (12), 3320-3325 (1998).
- Huth, S., Sindt, S., Selhuber-Unkel, C. Automated analysis of soft hydrogel microindentation: Impact of various indentation parameters on the measurement of Young's modulus. PLoS One. 14 (8), e0220281(2019).
- Krieg, M., et al. Atomic force microscopy-based mechanobiology. Nat Rev Phys. 1 (1), 41-57 (2019).
- Loparic, M., et al. Micro- and nanomechanical analysis of articular cartilage by indentation-type atomic force microscopy: validation with a gel-microfiber composite. Biophys J. 98 (11), 2731-2740 (2010).
- Plodinec, M., et al. The nanomechanical signature of breast cancer. Nat Nanotechnol. 7 (11), 757-765 (2012).
- Prein, C., et al. Structural and mechanical properties of the proliferative zone of the developing murine growth plate cartilage assessed by atomic force microscopy. Matrix Biol. 50, 1-15 (2016).
- Radmacher, M., Fritz, M., Kacher, C. M., Cleveland, J. P., Hansma, P. K. Measuring the viscoelastic properties of human platelets with the atomic force microscope. Biophys J. 70 (1), 556-567 (1996).
- Radmacher, M., Tillamnn, R. W., Fritz, M., Gaub, H. E. From molecules to cells: imaging soft samples with the atomic force microscope. Science. 257 (5078), 1900-1905 (1992).
- Stolz, M., et al. Early detection of aging cartilage and osteoarthritis in mice and patient samples using atomic force microscopy. Nat Nanotechnol. 4, 186-192 (2009).
- Stolz, M., et al. Dynamic elastic modulus of porcine articular cartilage determined at two different levels of tissue organization by indentation-type atomic force microscopy. Biophys J. 86 (5), 3269-3283 (2004).
- Florin, E. L., Moy, V. T., Gaub, H. E. Adhesion forces between individual ligand-receptor pairs. Science. 264 (5157), 415-417 (1994).
- Hansma, P. K., et al. Tapping mode atomic force microscopy in liquids. Appl Phys Lett. 64 (13), 1738-1740 (1994).
- Moy, V. T., Florin, E. L., Gaub, H. E. Intermolecular forces and energies between ligands and receptors. Science. 266 (5183), 257-259 (1994).
- Radmacher, M., Fritz, M., Hansma, H. G., Hansma, P. K. Direct observation of enzyme activity with the atomic force microscope. Science. 265 (5178), 1577-1579 (1994).
- Radmacher, M., Fritz, M., Hansma, P. K. Imaging soft samples with the atomic force microscope: gelatin in water and propanol. Biophys J. 69 (1), 264-270 (1995).
- Rief, M., Clausen-Schaumann, H., Gaub, H. E. Sequence-dependent mechanics of single DNA molecules. Nat Struct Biol. 6 (4), 346-349 (1999).
- Rief, M., Gautel, M., Oesterhelt, F., Fernandez, J. M., Gaub, H. E. Reversible unfolding of individual titin immunoglobulin domains by AFM. Science. 276 (5315), 1109-1112 (1997).
- Drake, B., et al. Imaging crystals, polymers, and processes in water with the atomic force microscope. Science. 243 (4898), 1586-1589 (1989).
- Clausen-Schaumann, H., Rief, M., Tolksdorf, C., Gaub, H. E. Mechanical stability of single DNA molecules. Biophys J. 78 (4), 1997-2007 (2000).
- Rotsch, C., Radmacher, M. Drug-induced changes of cytoskeletal structure and mechanics in fibroblasts: an atomic force microscopy study. Biophys J. 78 (1), 520-535 (2000).
- Lekka, M., et al. Elasticity of normal and cancerous human bladder cells studied by scanning force microscopy. Eur Biophys J. 28 (4), 312-316 (1999).
- Weisenhorn, A. L., Khorsandi, M., Kasas, S., Gotzos, V., Butt, H. J. Deformation and height anomaly of soft surfaces studied with an AFM. Nanotechnology. 4 (2), 106(1993).
- Rotsch, C., Jacobson, K., Radmacher, M. Dimensional and mechanical dynamics of active and stable edges in motile fibroblasts investigated by using atomic force microscopy. Proc Natl Acad Sci USA. 96 (3), 921-926 (1999).
- Goldmann, W. H., Ezzell, R. M. Viscoelasticity in wild-type and vinculin-deficient (5.51) mouse F9 embryonic carcinoma cells examined by atomic force microscopy and rheology. Exp Cell Res. 226 (1), 234-237 (1996).
- Tschaikowsky, M., et al. Hybrid fluorescence-AFM explores articular surface degeneration in early osteoarthritis across length scales. Acta Biomater. 126, 315-325 (2021).
- Tschaikowsky, M., et al. Proof-of-concept for the detection of early osteoarthritis pathology by clinically applicable endomicroscopy and quantitative AI-supported optical biopsy. Osteoarthr Cartilage. 29 (2), 269-279 (2021).
- Kinney, J. H., Balooch, M., Marshall, S. J., Marshall, G. W. Jr, Weihs, T. P. Atomic force microscope measurements of the hardness and elasticity of peritubular and intertubular human dentin. J Biomech Eng. 118 (1), 133-135 (1996).
- Symposium on Thin Films - Stresses and Mechanical Properties VI,. 1996 MRS Spring Meeting. Lundkvist, A., et al. , 353-358 (1997).
- Tao, N. J., Lindsay, S. M., Lees, S. Measuring the microelastic properties of biological material. Biophys J. 63 (4), 1165-1169 (1992).
- Radmacher, M. Measuring the elastic properties of biological samples with the AFM. IEEE Eng Med Biol Mag. 16 (2), 47-57 (1997).
- Becke, T. D., et al. Pilus-1 backbone protein RrgB of Streptococcus pneumoniae binds collagen I in a force-dependent way. ACS Nano. 13 (6), 7155-7165 (2019).
- Becke, T. D., et al. Single molecule force spectroscopy reveals two-domain binding mode of Pilus-1 tip protein RrgA of Streptococcus pneumoniae to fibronectin. ACS Nano. 12 (1), 549-558 (2018).
- Pill, M. F., East, A. L. L., Marx, D., Beyer, M. K., Clausen-Schaumann, H. Mechanical activation drastically accelerates amide bond hydrolysis, matching enzyme activity. Angew Chem Int Ed Engl. 58 (29), 9787-9790 (2019).
- Schmidt, S. W., Filippov, P., Kersch, A., Beyer, M. K., Clausen-Schaumann, H. Single-molecule force-clamp experiments reveal kinetics of mechanically activated silyl ester hydrolysis. ACS Nano. 6 (2), 1314-1321 (2012).
- Docheva, D., et al. Researching into the cellular shape, volume and elasticity of mesenchymal stem cells, osteoblasts and osteosarcoma cells by atomic force microscopy. J Cell Mol Med. 12 (2), 537-552 (2008).
- Docheva, D., Padula, D., Schieker, M., Clausen-Schaumann, H. Effect of collagen I and fibronectin on the adhesion, elasticity and cytoskeletal organization of prostate cancer cells. Biochem Biophys Res Commun. 402 (2), 361-366 (2010).
- Kiderlen, S., et al. Age related changes in cell stiffness of tendon stem/progenitor cells and a rejuvenating effect of ROCK-inhibition. Biochem Biophys Res Commun. 509 (3), 839-844 (2019).
- Reuten, R., et al. Structural decoding of netrin-4 reveals a regulatory function towards mature basement membranes. Nat Commun. 7, 13515(2016).
- Fleischhauer, L., et al. Nano-scale mechanical properties of the articular cartilage zones in a mouse model of post-traumatic osteoarthritis. Appl Sci. 12 (5), 2596(2022).
- Alberton, P., et al. Aggrecan hypomorphism compromises articular cartilage biomechanical properties and is associated with increased incidence of spontaneous osteoarthritis. Int J Mol Sci. 20 (5), 1-16 (2019).
- Alberton, P., et al. Aggrecan is critical in maintaining the cartilage matrix biomechanics which in turn influences the correct development of the growth plate. Osteoarthr Cartilage. 27, S178-S178 (2019).
- Gronau, T., et al. Forced exercise-induced osteoarthritis is attenuated in mice lacking the small leucine-rich proteoglycan decorin. Ann Rheum Dis. 76 (2), 442-449 (2017).
- Hartmann, B., et al. Early detection of cartilage degeneration: A comparison of histology, fiber Bragg grating-based micro-indentation, and atomic force microscopy-based nano-indentation. Int J Mol Sci. 21 (19), 7384-7398 (2020).
- Rellmann, Y., et al. ER stress in ERp57 knockout knee joint chondrocytes induces osteoarthritic cartilage degradation and osteophyte formation. Int J Mol Sci. 23 (1), 182(2021).
- Kamper, M., et al. Early changes in morphology, bone mineral density and matrix composition of vertebrae lead to disc degeneration in aged collagen IX -/- mice. Matrix Biol. 49, 132-143 (2016).
- Akhtar, R., Sherratt, M. J., Cruickshank, J. K., Derby, B. Characterizing the elastic properties of tissues. Mater Today. 14 (3), 96-105 (2011).
- Junior, C., et al. Baseline stiffness modulates the non-linear response to stretch of the extracellular matrix in pulmonary fibrosis. Int J Mol Sci. 22 (23), 12928(2021).
- Junior, C., et al. Multi-step extracellular matrix remodelling and stiffening in the development of idiopathic pulmonary fibrosis. Int J Mol Sci. 24 (2), 1708(2023).
- Sicard, D., Fredenburgh, L. E., Tschumperlin, D. J. Measured pulmonary arterial tissue stiffness is highly sensitive to AFM indenter dimensions. J Mech Behav Biomed Mater. 74, 118-127 (2017).
- Zemla, J., et al. AFM-based nanomechanical characterization of bronchoscopic samples in asthma patients. J Mol Recognit. 31 (12), e2752(2018).
- Reuten, R., et al. Basement membrane stiffness determines metastases formation. Nat Mater. 20 (6), 892-903 (2021).
- Johnstone, A. H. CRC Handbook of Chemistry and Physics. J Chem Technol Biotechnol. 50 (2), 294-295 (1991).
- Rico, F., et al. Probing mechanical properties of living cells by atomic force microscopy with blunted pyramidal cantilever tips. Phys Rev E. 72 (2), 1-10 (2005).
- CANTER Processing Toolbox v.5.7.0. , GitHub. (2022).
- Hutter, J. L. J. B. Calibration of atomic-force microscope tips. Rev Sci Instrum. 64 (7), 1868-1873 (1993).
- Schillers, H., et al. Standardized nanomechanical atomic force microscopy procedure (SNAP) for measuring soft and biological samples. Sci Rep. 7 (1), 5117(2017).
- Hartmann, B., et al. Profiling native pulmonary basement membrane stiffness using atomic force microscopy. Nat Protoc. 19 (5), 1498-1528 (2024).
- Dimitriadis, E. K., Horkay, F., Maresca, J., Kachar, B., Chadwick, R. S. Determination of elastic moduli of thin layers of soft material using the atomic force microscope. Biophys J. 82 (5), 2798-2810 (2002).
- Jolicoeur, P. Introduction to Biometry. , Springer US. Boston, MA. (1999).
- Bronshtein, I. N., Semendyayev, K. A., Musiol, G., Mühlig, H. Handbook of Mathematics. , 6th Edition, Springer. Berlin. (2015).
- Fiore, V. F., et al. Mechanics of a multilayer epithelium instruct tumour architecture and function. Nature. 585 (7825), 433-439 (2020).
- Koester, J., et al. Niche stiffening compromises hair follicle stem cell potential during ageing by reducing bivalent promoter accessibility. Nat Cell Biol. 23 (7), 771-781 (2021).
- Bedzhov, I., Zernicka-Goetz, M. Self-organizing properties of mouse pluripotent cells initiate morphogenesis upon implantation. Cell. 156 (5), 1032-1044 (2014).
- Kyprianou, C., et al. Basement membrane remodelling regulates mouse embryogenesis. Nature. 582 (7811), 253-258 (2020).
- Saraswathibhatla, A., Indana, D., Chaudhuri, O. Cell-extracellular matrix mechanotransduction in 3D. Nat Rev Mol Cell Biol. 24 (7), 495-516 (2023).
- Sherwood, D. R. Basement membrane remodeling guides cell migration and cell morphogenesis during development. Curr Opin Cell Biol. 72, 19-27 (2021).
- Ashkin, A., Dziedzic, J. M., Bjorkholm, J. E., Chu, S. Observation of a single-beam gradient force optical trap for dielectric particles. Opt Lett. 11 (5), 288(1986).
- Marago, O. M., Jones, P. H., Gucciardi, P. G., Volpe, G., Ferrari, A. C. Optical trapping and manipulation of nanostructures. Nat Nanotechnol. 8 (11), 807-819 (2013).
- Neuman, K. C., Nagy, A. Single-molecule force spectroscopy: optical tweezers, magnetic tweezers and atomic force microscopy. Nat Methods. 5 (6), 491-505 (2008).
- Marchi, G., et al. Microindentation sensor system based on an optical fiber Bragg grating for the mechanical characterization of articular cartilage by stress-relaxation. Sens Actuators B. 252, 440-449 (2017).
- Wakitani, S., et al. Repair of large full-thickness articular cartilage defects with allograft articular chondrocytes embedded in a collagen gel. Tissue Eng. 4 (4), 429-444 (1998).
- Moutos, F. T., Freed, L. E., Guilak, F. A biomimetic three-dimensional woven composite scaffold for functional tissue engineering of cartilage. Nat Mater. 6 (2), 162-167 (2007).
- Schwarz, S., et al. Contactless vibrational analysis of transparent hydrogel structures using laser-Doppler vibrometry. Exp Mech. 60 (8), 1067-1078 (2020).
- Bhave, G., Colon, S., Ferrell, N. The sulfilimine cross-link of collagen IV contributes to kidney tubular basement membrane stiffness. Am J Physiol Renal Physiol. 313 (3), F596-F602 (2017).
- Fisher, R. F., Wakely, J. The elastic constants and ultrastructural organization of a basement membrane (lens capsule). Proc R Soc Lond B Biol Sci. 193 (1113), 335-358 (1976).
- Wisdom, K. M., et al. Covalent cross-linking of basement membrane-like matrices physically restricts invasive protrusions in breast cancer cells. Matrix Biol. 85-86, 94-111 (2020).
Przedruki i uprawnienia
