Tutaj prezentujemy systematyczną metodę opisującą quasi-odwracalną samoorganizację agregatów złota o długości 20 nm pokrytych amyloidem beta 1-40 (Aβ 1-40). Zależna od nanorozmiaru, quasi-odwracalna sieć między peptydami została skorelowana z określonymi aminokwasami lub sekcjami monomeru Aβ 1-40.
Artykuł metodologiczny
Charakterystyka zależnej od pH odwracalnej samoorganizacji koloidów złota pokrytych amyloidem beta 1-40
W tym artykule
Podsumowanie
Streszczenie
Charakterystyka Aβ 1-40 pokrytego powierzchniami nano-złotych koloidalnych cząstek została przeprowadzona przy użyciu spektroskopii powierzchniowego rezonansu plazmonów (SPR) i transmisyjnej mikroskopii elektronowej (TEM). Obserwowane zależne od pH przesunięcie pasma SPR cząstek złota o długości fali 20 nm pokrytych Aβ 1-40 było skorelowane z naprzemiennością agregacji i dezagregacji obserwowaną na obrazach TEM. pH ~4 indukowało rozwiniętą konformację, a pH ~10 indukowało pofałdowaną konformację Aβ 1-40 na powierzchni złota. Ten odwracalny proces agregacji zaobserwowano za pomocą obrazowania ramanowskiego, gdy pH stopniowo zmieniało się z pH 4 na pH 10. Zaobserwowaliśmy zależną od pH zmianę morfologii Aβ 1-40 na powierzchni złota, gdzie przy pH 4 zaobserwowano klarowne agregaty. Zaobserwowaliśmy jednak bardzo subtelne różnice w widmie spektroskopii Ramana wzmocnionej powierzchniowo (SERS) między warunkami pH 4 i pH 10, przy czym najbardziej uderzającą różnicą jest gęstość widmowa w zakresie od 250 cm-1 do 1750 cm-1. W szczególności analiza modalna odwracalnej agregacji wykazała, że agregaty zostały utworzone przez rozwiniętą konformację Aβ 1-40, która obejmowała przekrój pierścienia benzenowego tyrozyny i fenyloalaniny. I odwrotnie, demontaż agregatów był związany ze zmianami konformacyjnymi w fałdowaniu białek Aβ 1-40 z udziałem histydyny, glutaminy, metioniny i kwasu asparaginowego.
Wprowadzenie
Fibrylogeneza peptydów beta amyloidu 1-40 (Aβ 1-40) lub 1-42 (Aβ 1-42) została dokładnie zbadana jako kluczowy składnik w tworzeniu blaszek amyloidowych, które są przyczyną choroby Alzheimera1,2,3,4,5,6,7,8,9,10,11. Kluczowym mechanizmem fibrylogenezy jest oligomeryzacja peptydów Aβ 1-40 lub Aβ 1-42 w celu utworzenia neurotoksycznego agregatu białkowego, a ponadto przeprowadzono szeroko zakrojone badania w celu zrozumienia mechanizmów tworzenia oligomerów 12,13,14. Podjęliśmy podejście polegające na zbadaniu peptydów amyloidogennych tworzących agregaty na powierzchni nano-złota i zidentyfikowaniu czynników, które są odpowiedzialne za tworzenie sieci między peptydami, które znajdują się z dala od powierzchni złota15,16,17,18,19,20,21,22.
Aβ 1-40 przyjmują konformację rozłożoną (A) w warunkach kwaśnych (pH ~4) i konformację fałdowaną (B) w warunkach podstawowych (pH ~10). Zaobserwowaliśmy rozproszone cząstki koloidu złota pokryte Aβ 1-40 o pH ~10 i duże agregaty koloidu złota pokryte Aβ 1-40 o pH ~ 4 ( Rysunek 1) < klasa sup = "xref" >23,24. Rozwinięta konformacja Aβ 1-40 w warunkach kwaśnych sprzyja tworzeniu się sieci peptydów między monomerami Aβ 1-40 na powierzchni złota-nanocząstek, co powoduje tworzenie się agregatów koloidu złota (patrz A w Rysunek 1). Gdy monomer Aβ 1-40 utrzymuje złożoną konformację na zasadowym lub obojętnym pH, Aβ 1-40, monomery nie łączą się w agregaty, a powlekane nanocząstki złota pozostają jako pojedyncze rozproszone cząstki (patrz B w Rysunek 1). Możemy zatem zbadać proces, w jaki sposób peptydy Aβ 1-40 przechodzą zmiany konformacyjne w sieci i tworzą agregaty, mierząc przesunięcie pasma SPR w zakresie warunków pH25,26,27,28,29,30,31.
Przetestowaliśmy kilka różnych rozmiarów nanocząsteczek złota i stwierdziliśmy, że koloid złota o długości fali 20 nm wykazywał najbardziej widoczny odwracalny proces samoorganizacji monomerów Aβ 1-40 w odpowiedzi na zewnętrzną zmianę pH (Rysunek 2). Jest to wyraźna wskazówka odwracalnej zmiany w konformacji peptydów, w której warunki kwasowe (A) indukują konformację rozłożoną, wzmacniając sieć i prowadząc do agregacji koloidów złota. Stwierdzono, że podstawowy warunek (B) indukuje pofałdowaną konformację monomerów26,27,28,29,30,31.
Protokół
1. Przygotowanie nanocząsteczek złota powlekanych Aβ1-40
- Za pomocą igły strzykawki dodaj 1 mL destylowanej wody dejonizowanej do 1 mg liofilizowanego Aβ1-40 (MW: 4,2 kDa, czystość HPLC 98%). Mieszaj roztwór w wirówce vortex przez około 30 s i upewnij się, że w roztworze w temperaturze pokojowej (RT; ~20 °C) nie obserwuje się żadnych cząstek stałych.
- Przygotuj wszystkie roztwory zapasowe, używając wody dejonizowanej i destylowanej (~18 MΩ·cm).
- Określ stężenie spektroskopowo, wykorzystując absorpcję tyrozyny przy 275 nm32, dla której współczynnik ekstynkcji molowej ε275 wynosi 1390 cm-1·M-1.
- Przechowuj roztwory zapasowe Aβ1-40 w temperaturze -80 °C. (Patrz Tabela materiałów w celu uzyskania informacji o produktach handlowych Aβ1-40.)
- Rozmroź roztwór zapasowy peptydów około 5 min przed rozpoczęciem gromadzenia danych. W probówce wirówkowej o pojemności 15 mL wymieszaj 8 μL roztworu peptydów z 800 μL koloidalnego złota. Dodaj 4,2 mL destylowanej wody dejonizowanej, a następnie wymieszaj próbkę w wirówce vortex przez 10 s30,31,33,34.
- Ustal stężenie peptydów Aβ1-40 na poziomie 1,8 nmol i dostosuj stosunek peptydów Aβ1-40. Liczba koloidów złota powinna mieścić się w zakresie od ~500:1 do ~2000:125.
2. Iteracyjna zmiana pH i monitorowanie odpowiadającego przesunięcia pasma SPR
- Ustaw temperaturę roztworu na określoną wartość (np. 25 °C) za pomocą modułu kontroli temperatury spektrofotometru UV-Vis-NIR (ultrafioletowego, widzialnego i bliskiej podczerwieni).
- Zmonitoruj początkowe pH roztworu próbki za pomocą pH-metru i ustaw je na wartość nieco poniżej pH 7. Zarejestruj widmo absorpcyjne w zakresie od 400 nm do 1000 nm.
- Zmień pH próbki na ~pH 4 (tj. pH 4,0 ± 0,3), dodając objętości 10 μL 0,1 M HCl, a następnie zarejestruj widmo absorpcyjne w zakresie od 400 nm do 1000 nm.
- Zmień pH próbki na ~pH 10 (tj. pH 10 ± 0,3), dodając objętości 10 μL 0,1 M NaOH, a następnie zarejestruj widmo absorpcyjne w zakresie od 400 nm do 1000 nm.
- Zmieniaj pH między pH 4 a pH 10 za pomocą HCl i NaOH 10 razy, rejestrując widmo absorpcyjne w sposób ciągły w temperaturze 25 ± 0,2 °C29,30.
UWAGA: Dla wszystkich roztworów próbek gęstość optyczna maksimum pasma SPR była utrzymywana na poziomie około 0,2. Przewiduje się wystąpienie efektu buforowego ze względu na pozostałą w roztworze sól buforową. W związku z tym końcową wartość pH określano po potwierdzeniu stanu równowagi. Wartość pH mierzono bezpośrednio w kuwecie pomiarowej za pomocą mikroelektrody pH o dokładności ±0,005 pH. - Pobierz zestaw danych w formacie ASCII zawierający długości fal jako funkcję absorbancji. Wyznacz średnią pozycję maksimów pasm za pomocą programu Peak Fit.
- Wykreśl zestaw danych, aby zobrazować gęstość optyczną jako funkcję długości fali (nm), korzystając z funkcji Plot.
- Zaznacz początkowe długości fal maksimów λ1, λ2 i λ3, wybierając ich przybliżone pozycje na wykreślonych danych, a następnie dopasuj dane za pomocą funkcji RUN.
- Uzyskaj wykres zawierający centralny szczyt dla każdego z nich (λi), XCi, wraz z powierzchnią każdego pasma (Ai).
- Wyeksportuj wyznaczone pozycje i powierzchnie maksimów do programu arkusza kalkulacyjnego i oblicz średnią pozycję maksimum dla danego pH.
- Wyznacz czynnik wagowy ai dla każdego centrum maksimum λi, porównując powierzchnię pasma (Ai) do całkowitej powierzchni wszystkich pasm według wzoru:
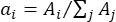 .
- Wyznacz średnią pozycję maksimum,
 (pH) korzystając z równania (1).
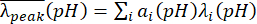 (1)
- Wyznacz czynnik wagowy ai dla każdego centrum maksimum λi, porównując powierzchnię pasma (Ai) do całkowitej powierzchni wszystkich pasm według wzoru:
- Wygeneruj wykres odwracalności zgodnie z poniższą procedurą:
- Zestaw w tabeli średnie pozycje maksimów, , jako funkcję numeru każdej „operacji”, n, jako vs. n. Przyjmij numer operacji n = 1 dla próbki przed dodaniem kwasu przy ~pH 7. Zwiększaj numer operacji o 1 przy każdej zmianie pH na ~pH 4 za pomocą HCl lub na ~pH 10 za pomocą NaOH. Przyjmij n parzyste dla warunków kwasowych (tj. ~pH 4) i n nieparzyste dla warunków zasadowych (tj. pH 10).
- Przeanalizuj pozycję maksimum dla każdego n, (n) = λ(n), korzystając ze wzoru30
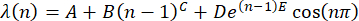 (2)
UWAGA: Początkową średnią pozycję maksimum dla n = 1 reprezentuje A. Parametry B i C wyrażają przesunięcie pozycji maksimum zależne od n. Parametr D stanowi amplitudę czynnika tłumienia E powtórzeń. Użyj funkcji sinus, aby zobrazować oscylację pozycji maksimum jako funkcję n. - Przenieś zestaw danych (x, y) do oprogramowania Origin i wykonaj wykres.
- Utwórz funkcję Customized zdefiniowaną w równaniu (2) w sekcji Nonlinear Curve Fitting Function Of Analysis. Wpisz początkowe wartości A, B, C, D i E, a następnie kliknij RUN, aby zakończyć dopasowanie.
- Zestaw w tabeli średnie pozycje maksimów,
- Obrazowanie TEM
- Przygotuj próbki TEM z koloidów złota o rozmiarze 20 nm powlekanych Aβ1-40 na miedzianych siatkach powlekanych Formvarem. Zbadaj próbki za pomocą TEM pracującego przy napięciu 80 kV.
- Wykonaj zdjęcia przy nominalnym powiększeniu 28 000x lub 71 000x za pomocą 4-megapikselowej cyfrowej kamery CCD model XR-40 (AMT). Wykonaj zdjęcia TEM dla złota 20 nm powlekanego Aβ1-40 dla każdego numeru operacji n = 1 (~pH 7), n = 2, 4, 6, 8 i 10 (pH 4) oraz n = 3, 5, 7 i 9 (pH 10).
3. Obrazowanie Ramanowskie i badanie odwracalnej agregacji
- Nanieś 100 μL roztworu na dysk mikowy (średnica 1 cm) dla każdej próbki przy numerze operacji n. Próbki suszyć przez noc przed dokonaniem pomiaru.
- Wykonaj obrazy w świetle białym dla każdego numeru operacji n. Przygotuj osobne próbki na dyskach mikowych, zmieniając sukcesywnie pH w zakresie od ~pH 4 do ~pH 10 dla każdego numeru operacji n (Rysunek 3).
- Wykonaj obraz Ramanowski dla każdego numeru operacji n przy użyciu lasera o długości fali λ = 633 nm i mocy 0,5 ± 0,05 mW, z rozdzielczością przestrzenną ~0,43 μm w siatce o wymiarach 100 × 100 pikseli, przy czasie całkowania 500 ms/spektrum dla zakresu między ~200 cm-1 a ~2 800 cm-1 (Rysunek 4).
- Wykreśl reprezentatywne widma dla każdego n w funkcji n i skonstruuj trójwymiarowe widmo SERS w funkcji n dla 20 nm złota powleczonego Aβ1-40 (Rysunek 5A). Wykorzystaj widok z góry trójwymiarowego widma SERS jako mapę konturową (Rysunek 5B), aby wyodrębnić konkretne mody związane z określonymi warunkami pH (tj. ~pH 4 i ~pH 10). Wyodręb wszystkie cechy spektralne wzmocnione wyłącznie dla nparzystych lub wyłącznie dla nnieparzystych.
Wyniki
Po przyłączeniu Aβ1-40 do powierzchni złotych nanocząsteczek koloidalnych, pasmo SPR w okolicach maksimum absorpcji 530 nm uległo znacznemu przesunięciu w stronę czerwieni do pozycji piku ok. 650 nm po zakwaszeniu roztworu (pH 4)35. Na podstawie obrazów TEM ustaliliśmy, że cechy spektroskopowe obserwowane przy pH 4 odpowiadają tworzeniu się agregatów koloidu złota z prawdopodobnie rozfałdowaną konformacją i sieciowaniem z otaczającymi rozfałdowanymi monomerami Aβ1-40 zaadsorbowanymi na powierzchni złota30. Zaobserwowaliśmy, że monomery Aβ1-40 powracają do konformacji sfałdowanej w warunkach zasadowych (pH 10), co prowadzi do deformacji agregatów w sposób quasi-odwracalny. Proces ten był widoczny poprzez zmianę średniej pozycji piku pasma ((n)), która przesuwała się między krótszą a dłuższą długością fali, a także poprzez różnice w morfologii (rozproszonej vs. zagregowanej) na obrazach TEM pomiędzy warunkami zasadowymi (pH = 10) a kwaśnymi (pH = 4). Wcześniej zaobserwowano, że część monomeru Aβ1-40 pozostaje rozfałdowana nawet po przywróceniu zasadowych warunków roztworu36. Wideo 1 przedstawia zależną od pH zmianę barwy Aβ1-40 oraz gołego koloidu złota o rozmiarze 20 nm.
Dla porównania przeprowadzono badanie wpływu zmian pH na koloid czystego złota o rozmiarze 20 nm (Rysunek 5C i D). W miarę postępu zmian pH zaobserwowano wzrost klasteryzacji koloidów złota, co odnotowano w przesunięciu pasma SPR, obrazach TEM oraz obrazach w świetle białym. Co interesujące, pojawiło się kilka linii widm SERS, zależnie od wartości nnieparzyste oraz nparzyste. Na przykład dla nparzyste (pH ~4) intensywnie obserwowano linię przy 275 cm-1, przypisaną modowi związanemu z Aun (n = 5, 6, 12, 16, 20, 58)37 lub modowi liganda Au-Cl-38. Z drugiej strony, dla nparzyste, przy 1008 cm-1 zaobserwowano drgania rozciągające C-N39, a przy 1291 cm-1 szeroko obserwowano drgania giętne CH239 oraz deformacje CH240.
W przeciwieństwie do wyraźnej, zależnej od pH i odwracalnej morfologii agregacji zaobserwowanej w obrazowaniu światłem białym, w cechach spektralnych widma SERS pomiędzy nnieparzystym a nparzystym występowały stosunkowo subtelne różnice. W pierwszym przybliżeniu gęstość linii spektralnych w obszarze między 250 cm-1 a 1750 cm-1 była wyższa dla nnieparzystych niż dla nparzystych. Linie spektralne w obszarze linii upadkowych (fingerprint region), 1250 cm-1 i 1750 cm-1 (pasma amidowe I, II i III) dla nnieparzystych wykazywały mniej rozdzielone cechy spektralne, co sugeruje albo poszerzenie, albo wzrost gęstości spektralnej. Na Rysunku 6 mapa konturowa przedstawiona na Rysunku 5B (Rysunek 6B) została zorganizowana z sygnałami SERS przy 761 cm-1 (czerwone) i 1395 cm-1 (niebieskie), reprezentującymi odpowiednio nacisk na nnieparzyste i nparzyste (Rysunek 6C). Jako reprezentatywne widma SERS dla nnieparzystych i nparzystych, u góry przedstawiono widma SERS dla n = 7 (czerwone) i n = 4 (niebieskie) (Rysunek 6A). Aby wykazać zgodność z przesunięciem pasma SPR dla 20 nm złota powlekanego Aβ1-40, z boku przedstawiono wykres przesunięcia pasma z Rysunku 3 (Rysunek 6D).
Choć dysponujemy wstępnymi danymi dotyczącymi pełnej atrybucji obserwowanego widma SERS, odnotowujemy tutaj kilka istotnych cech przesunięcia Ramanowskiego. Linie widmowe (i prawdopodobne przypisania) wzmocnione dla nnieparzystych znajdują się głównie w obszarze poniżej 1000 cm-1: 394 cm-1 (Trp)41,42,43, 761 cm-1 (His, Ala)39,44,45,46,47, 875 cm-1 (przesunięcie NH induolu, drgania rozciągające C-C w Met)39, 974 cm-1 (Glu, drgania rozciągające C-COO- w Asp, moda związana z cytrynianem)39,48,49. Przesunięcie Ramanowskie wzmocnione dla nparzystych wykazało istotne cechy spektroskopowe w obszarze linii fingerprintowych (Amid I, II i III): 1166 cm-1 (deformacja N-H+ w Tyr)39,41, 1227 cm-1 (Ala-Pro-Gly, Amid III)39,50,51, 1395 cm-1 (symetryczne drgania rozciągające COO- lub drgania nożycowe CH2- CH3- w Glu)39,48, 1585 cm-1 (drgania rozciągające pierścienia CC w Phe, asymetryczne rozciąganie grupy karboksylowej -Au, drgania rozciągające COO- cytrynianu, deformacja pierścienia benzenowego)39,41,45,46,47,49,52, 1592 cm-1 (Phe, Tyr, drgania rozciągające C=C w Tyr, drgania rozciągające CC pierścienia w Phe, drgania rozciągające pierścienia benzenowego i COO- w Phe i Tyr oraz asymetryczne rozciąganie OH)39,41,48,50,51 oraz 1628 cm-1 (podpik Amidu I charakterystyczny dla międzycząsteczkowych struktur β-kartek53, C=O oraz sprzężone mody wibracyjne CN/NH szkieletu białkowego pochodzące z struktur typu równoległych β-kartek, akumulacja zagregowanego Aβ54, random coils, β-zwroty, β-spinki)48. Sekwencje pojawiające się dla nnieparzystych lub nparzystych przedstawiono na Rysunku 7. Ogólnie, dla nparzystych, odpowiadających odwracalnej agregacji lub rozfałdowanej konformacji Aβ1-40, w zmianie konformacyjnej peptydy znacząco zaangażowane były: Phe/Tyr zawierające pierścień benzenowy, symetryczne rozciąganie COO-, mody nożycowe CH2- CH3- Glu oraz deformacja -NH+ Tyr. Podczas rozpadu agregatów, który obserwowano, gdy peptydy przyjmowały konformację sfałdowaną odpowiadającą modom dominującym dla nnieparzystych, zaangażowane wydawały się być Glu, Asp, Met, His i Ala.
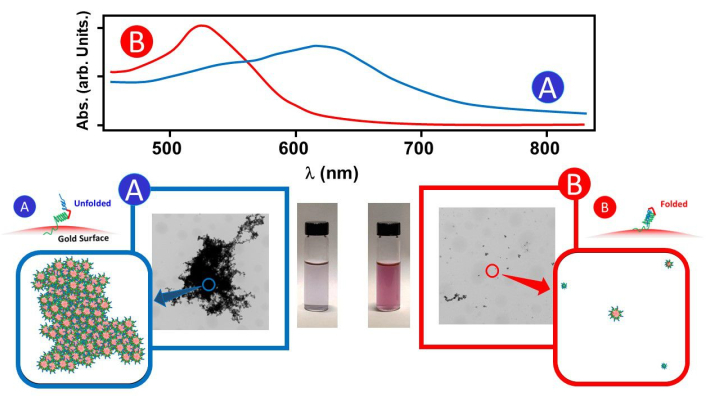
Rysunek 1: Absorbancja i morfologia zależne od pH. Przedstawiono widmo absorpcji przy pH 4 (A) i pH 10 (B) dla nanocząsteczek złota (20 nm) powlekanych Aβ1-40, a także odpowiadające im obrazy TEM, schematy agregacji/dyspersji cząstek oraz zdjęcia roztworów w probówkach. A przedstawia rozfałdowaną konformację monomerów Aβ1-40 w warunkach kwasowych, a B przedstawia konformację sfałdowaną w warunkach zasadowych. Schematy monomerów Aβ1-40 w każdej konformacji oraz morfologie agregacji/dyspersji są przedstawione obok obrazów TEM. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
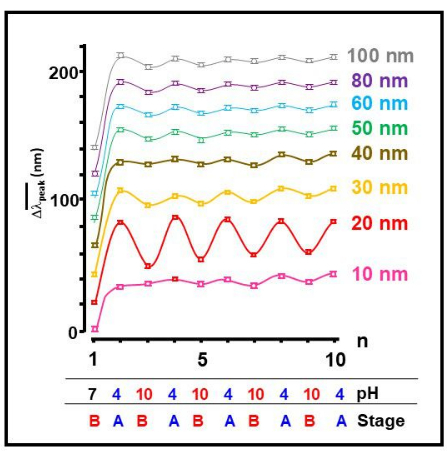
Rysunek 2: Odwracalność samoorganizacji zależna od wielkości nano-. Przesunięcie średniej pozycji piku pasma SPR, , w funkcji liczby operacji, n, dla wszystkich badanych rozmiarów cząsteczek koloidu złota. Podano również przybliżone wartości pH oraz odpowiadające im etapy agregacji przedstawione na Rysunku 1. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
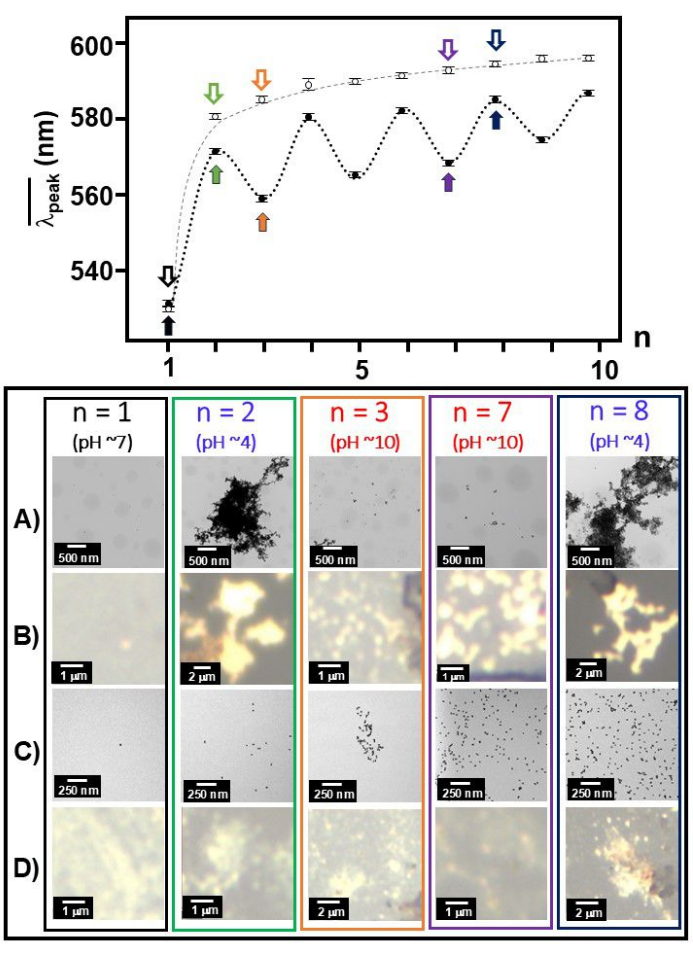
Rysunek 3:  oraz obrazy TEM/światła białego dla każdego numeru operacji. Wartość jako funkcja numeru operacji, n, została naniesiona dla złota 20 nm powlekanego Aβ1-40 (zamknięte kółka) oraz koloidu złota 20 nm (otwarte kółka), wraz z reprezentatywnymi obrazami TEM (A i C)/światła białego (B i D) dla wybranych numerów operacji (n = 1, 2, 3, 7 i 8 oznaczone strzałkami) dla złota 20 nm powlekanego Aβ1-40 (A i B) oraz koloidu złota 20 nm (C i D). Czcionka czarna oznacza pH 7, czcionka niebieska oznacza pH 4, a czcionka czerwona oznacza pH 10. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
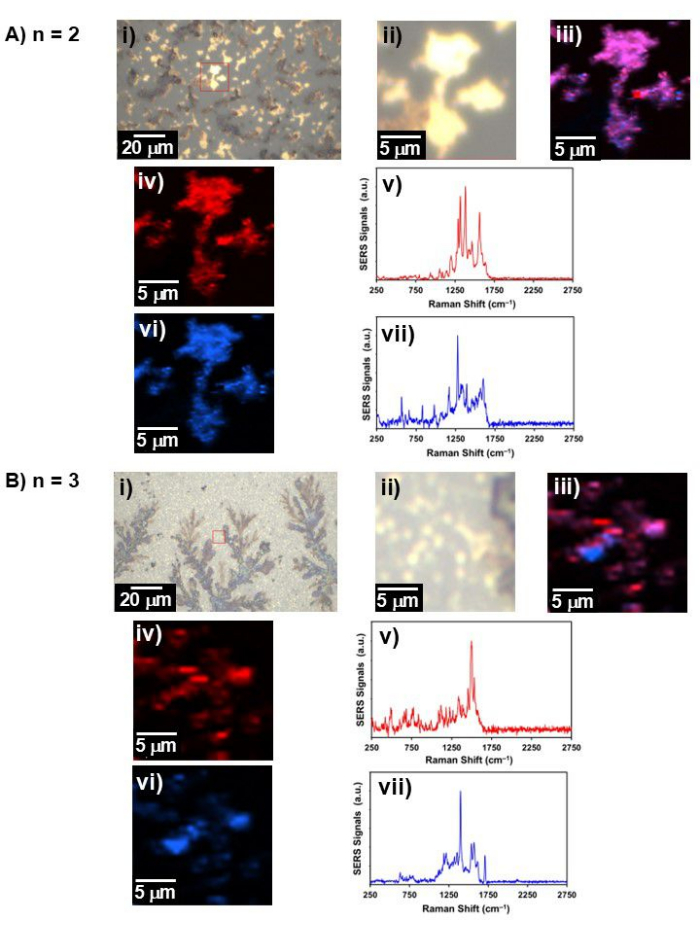
Rysunek 4: Reprezentatywne obrazy w świetle białym i Ramanowskie.Obraz w świetle białym, obraz Ramanowski oraz widmo SERS dla (A) n = 2 oraz (B) n = 3; i) obraz w świetle białym w szerokim polu widzenia, ii) obraz w świetle białym w obszarze, w którym wykonano obraz Ramanowski (oznaczony czerwonym kwadratem w i)), iii) połączony obraz Ramanowski dwóch komponentów, iv) obraz Ramanowski komponentu 1 oraz jego v) widmo SERS z iv), vi) obraz Ramanowski komponentu 2 oraz vii) widmo SERS z vi). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
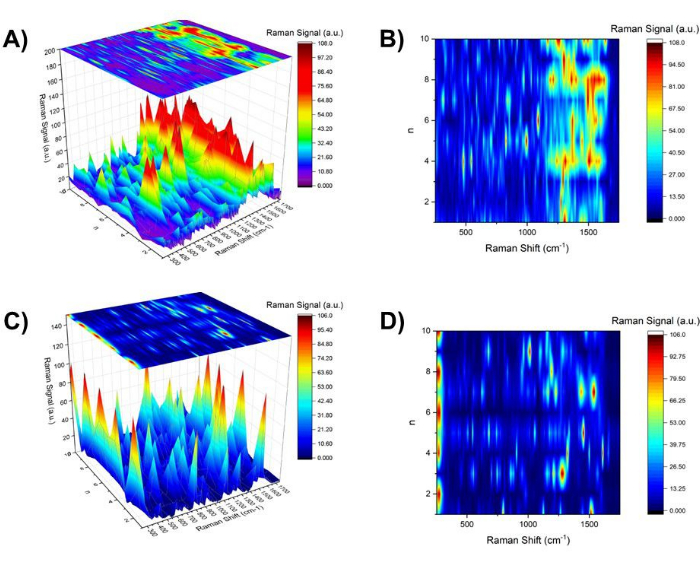
Rycina 5: Mapa konturowa widma SERS dla nnieparzystych, nparzystych oraz nwszystkich. (A) Trójwymiarowa mapa widma SERS w zakresie od 250 cm-1 do 1750 cm-1 jako funkcja n dla 20 nm złota pokrytego Aβ1-40, z mapą konturową przedstawioną w (B) na górze. (C) Trójwymiarowa mapa widma SERS w zakresie od 250 cm-1 do 1750 cm-1 jako funkcja n dla 20 nm złota, z mapą konturową przedstawioną w (D) na górze. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
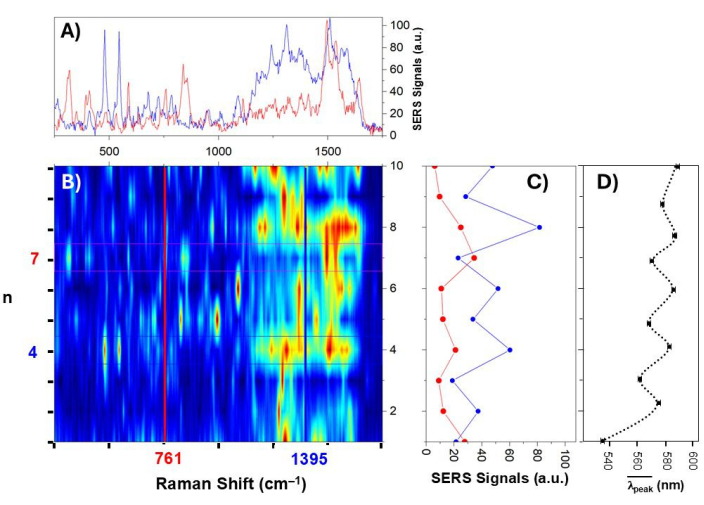
Rysunek 6: Mapa konturowa widma SERS. Mapa konturowa widma SERS w zależności od n (1-10). (A) Absorbancja przy 1395 cm-1 (niebieski) i 761 cm-1 (czerwony). (B-D) Dolny panel przedstawia widmo SERS, a prawy panel pokazuje amplitudę zmiany natężenia sygnału sygnałów SERS dla każdego n. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
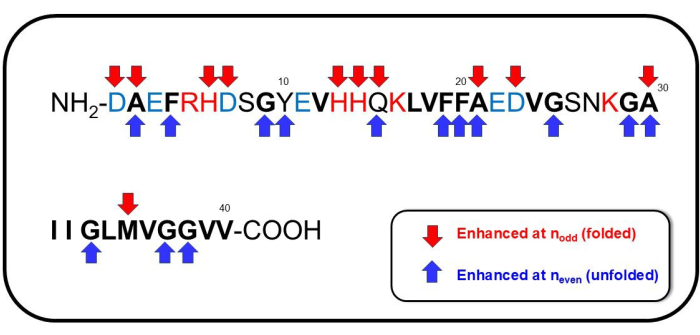
Rysunek 7: Charakterystyczne sekwencje Aβ1-40. Sekwencje przypisane do znaczącego udziału przy nnieparzystym (odpowiadające formowaniu konformacji złożonej) są zaznaczone czerwonymi strzałkami skierowanymi w dół, a sekwencje przypisane do znaczącego udziału przy nparzystym (odpowiadające formowaniu konformacji rozłożonej) są zaznaczone niebieskimi strzałkami. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Wideo 1: Zależna od pH zmiana barwy Aβ1-40 i koloidu czystego złota o rozmiarze 20 nm. Kliknij tutaj, aby pobrać to wideo.
Dyskusja
Kluczową kwestią w badaniach konformacji peptydów jest utrzymanie próbki, ponieważ próbki ulegną pogorszeniu, jeśli będą niewłaściwie przechowywane. Próbki peptydów otrzymano w postaci liofilizowanej i zaczęły się denaturować po ponownym uwodnieniu destylowaną wodą dejonizowaną, nawet gdy były przechowywane w temperaturze -80 °C. Czystość koloidów złota została zweryfikowana za pomocą analizy kontroli jakości. W celu utrzymania stabilności koloidów przechowywano je w temperaturze 4 °C i nie zamrażano. Roztwory koloidu złota były przygotowywane świeże do każdego eksperymentu, ponieważ roztwór buforowy soli destabilizowałby koloid złota. Roztwory HCl i NaOH przygotowywano świeże dla każdego eksperymentu.
Wyzwania techniczne związane z ręcznym odczytem i zapisem pH roztworu za pomocą delikatnych przyrządów przy jednoczesnej zmianie pH w zakresie od 4 do 10 ograniczają precyzję raportowanych przez nas wyników. W związku z tym nie zaobserwowaliśmy spójnych wyników w natężeniu sygnałów SERS. To prawdopodobnie wprowadziło błąd do amplitudy, która została użyta dla wykresu konturowego. Przyszłe prace mające na celu weryfikację modów związanych z nparzystymi lub nnieparzystymi mogą wprowadzić mutacje w celu zastąpienia aminokwasów w sekwencji Aβ 1-40, które, jak twierdzimy, są zaangażowane w zmianę konformacyjną białka, takie jak pojedyncze reszty tyrozyny lub asparaginy.
"Oddziaływanie między monomerem Aβ1-40 a powierzchnią złota uważa się za oddziaływanie dipolowe, a poziom wiązań wodorowych został postawiony w pracy przez H. Schmidbauera i wsp.55. W osobnej pracy badaliśmy spektroskopię SERS w funkcji ilości Aβ1-40 w warunkach kwaśnych, wyekstrahowano tworzenie adsorpcji zależnej od nanowielkości56. W przypadku złota o długości 20 nm spekulowano, że wiązanie C=C lub -C-N histydyny (His) inicjuje adsorpcję; Jednak w przypadku złota o długości fali 80 nm tryb oddychania pierścieniem benzenowym fenyloalaniny (Phe) lub tyrozyny (Tyr) dociera do powierzchni złota w celu zainicjowania adsorpcji. Uznano, że proces adsorpcji Aβ1-40 na powierzchni złota w warunkach obojętnych lub zasadowych (pH ~ 10) utrzymuje hydrofilowy koloid złota pokryty Aβ1-40 , ponieważ w stanie wodnym nie powstają żadne osady. Jednak osady obserwowano przy pH 4, co sugeruje, że agregaty były hydrofobowe.
Obrazy TEM i obrazy w świetle białym tylko pośrednio pokazują dowody agregacji. Podjęliśmy próbę przeprowadzenia spektroskopii dichroizmu kołowego (CD) w celu skorelowania morfologii obserwowanej w odwracalnej agregacji ze strukturami drugorzędowymi. Jednak rozpraszające się linie bazowe uniemożliwiły nam uzyskanie powtarzalnych sygnałów CD. Zamiast tego zastosowaliśmy spektroskopię Ramana, skupiając się bardziej na modach wzmocnionych albo gdy agregacja (rozłożona konformacja Aβ1-40) zachodziła pod pH ~4, albo gdy dezagregacja (rozwinięta konformacja Aβ1-40) pod pH ~10. W związku z tym najlepsze spekulacje na temat identyfikacji struktury drugorzędowej w tej pracy ograniczały się do monitorowania węzłów związanych ze strukturami drugorzędnymi. Wykazano to w obserwacji arkusza β na wysokości 1628 cm-1, szczególnie w warunkach pH 4.
W badaniu tym zaobserwowano tylko zmianę konformacji peptydów dla koloidów złota o średnicy 20 nm i zbadano tylko n do 10. Właściwości konformacji i agregacji peptydu Aβ 1-40 mogą być zmienione przez wielkość cząstki, do której adsorbują się do56. Dlatego potrzebne są dalsze prace, aby zrozumieć właściwości peptydów, które opierają się na połączeniu sieciowym między monomerami oraz tych, na które wpływają właściwości fizyczne powierzchni adsorpcji. W badanych przez nas warunkach tylko koloidy złota o średnicy 20 nm wykazywały odwracalność morfologii agregacji, a mechanizmy wpływu średnicy koloidu na odwracalność tej właściwości nie są znane. Zwiększenie n do 20 może dostarczyć więcej informacji na temat zależnego od modu stopnia odwracalności morfologii agregacji. Badania nad tym, w jaki sposób wielkość koloidu złota wpływa na agregację peptydów beta amyloidu, przyniosą ważne informacje na temat mechanizmów molekularnych patologii choroby Alzheimera.
Oświadczenia
Autorzy oświadczają, że nie mają żadnych konfliktów interesów w związku z tą pracą, aby ujawnić.
Podziękowania
K.Y. jest wspierany przez NSF-MRI Grant #2117780. Fundacja Geneseo wsparła początkowy etap tego projektu. A. I. jest wdzięczna absolwentom Wydziału Chemii SUNY Geneseo Summer Research Scholarship ('19 Rhodes Award i '20 Lipkowitz Award) oraz Dreyfus Foundation Undergraduate Summer Research Scholarship za ich wsparcie.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Peptyd beta amyloidu 1-40 (Aβ 1– 40 peptyd) | r-peptyd (Bogart, GA, USA) | A-1156-2 | |
| Aparat cyfrowy | CCD AMT | XR-40 4-megapikselowy CCD | |
| Destylowana woda dejonizowana z systemu wodnego Milli-Q- Millipore | Sigma (Burlington, MA, USA) | Milli-Q IQ 7000 | |
| Zamrażarka -86 | Thermo Scientific | Revco Chilly Willy Identyfikator jednostki serii RLE 187004 numer kompilacji 40.04 | |
| Złoty koloid (10 nm) | Ted Pella, Inc. (Redding, Kalifornia, USA) | 15703-20 | |
| Złoty koloid (100 nm) | Ted Pella, Inc. (Redding, Kalifornia, USA) | 15711-22 | |
| Złoty koloid (15 nm) | Ted Pella, Inc. (Redding, Kalifornia, USA) | 15704-20 | |
| Złoty koloid (20 nm) | Ted Pella, Inc. (Redding, Kalifornia, Stany Zjednoczone) | 15705-20 | |
| Złoty koloid (50 nm) | Ted Pella, Inc. (Redding, Kalifornia, USA) | 15708-21 | |
| Złoto koloidowe (80 nm) | Ted Pella, Inc. (Redding, Kalifornia, USA) | 15710-22 | |
| Najwyższej jakości krążki mikowe V1AFM 10 mm | Ted Pella Inc. | #50 | |
| Kwas solny roztwór wzorcowy, 1,0 N | Fluka | Lot# SHBB4705V 318949-2L | |
| Makro kwitet kwarcowy Ścieżka światła 10 mm | Nauka o ognistej muchy | Type1-MC-PathMikroelektroda pH 10mm | |
| HORIBA | Model 9618S (MFG nr 9Y8E0050) | ||
| Peak Fit Program | Origin (Northampton, MA, USA) | OriginPro2018b (64-bit) b9.5.5.409 (Academic) | |
| pH 4,00 Roztwór buforowy | VWR | Nr kat. 34170-127 | |
| pH 7,00 Roztwór buforowy | Fisher Chemical | SB107-4 Lot 191041 | |
| pH-metr | HORIBA | Model F-72G (MFG nr B27M0017) | |
| Końcówki do pipet Maxi Porady 1– 5 ml | Fisher | 02-707-467 | |
| Końcówki do pipet 10 ml | Fisher | 02-717-135 | |
| Końcówki do pipet 1000 ml | Fisher | 02-717-156 | |
| Końcówki do pipet 1– 200 ml | Fisher | 02-717-143 | |
| Pikultarka Fisher Brand Elite 0.5– 5 ml | |||
| Fisher Brand Elite 100– 1000 ml | |||
| Fisher Brand Elite 10– 100 ml | Fisher | MU10985 | |
| Pipeter Fisher Brand Elite 1– 10 ml | Fisher | MU08178 | |
| roztwór wodorotlenku sodu 1,0 m | Fluka | Lot#05096BPV 319511-2L | |
| TEM | FEI Co | Morgagni model 268 | |
| Probówki TempAssure PCR, płaskie nakrętki, naturalne | USA Naukowy | polipropylen. 0,2 ml indywidualne cienkościenne probówki z dołączonymi matowymi płaskimi nasadkami | |
| Spektrofotometr UV-Vis-NIR | Varian | CARY 5000 UV1106M074 | |
| WI Tec alpha300R Konfokalny mikroskop Ramana | WITec-Oxford Instrument | XMB3000-3001 |
Bibliografia
- Kirschner, D. A., et al. Synthetic peptide homologous to beta protein from Alzheimer disease forms amyloid-like fibrils in vitro. Proc Natl Acad Sci U S A. 84 (19), 6953-6957 (1987).
- Lomakin, A., Chung, D. S., Benedek, G. B., Kirshner, D. A., Teplow, D. B. On the nucleation and growth of amyloid -protein fibrils: detection of nuclei and quantitation of rate constants. Proc Natl Acad Sci U S A. 93 (3), 1125-1129 (1996).
- Walsh, D. M., Lomakin, A., Benedek, G. B., Condron, M. M., Teplow, D. B. Amyloid -protein fibrillogenesis. J Biolog Chem. 272 (3), 22364-22372 (1997).
- Lambert, M. P., et al. nonfibrillar ligands derived from Ab1-42 are potent central nervous system neurotoxins. Proc Natl Acad Sci U S A. 95 (11), 6448-6453 (1998).
- Bucciantini, M., et al. Inherent toxicity of aggregates implies a common mechanism for protein misfolding diseases. Nature. 416 (6880), 507-511 (2002).
- Walsh, D. M., et al. Naturally secreted oligomers of amyloid beta protein potently inhibit hippocampal long-term potentiation in vivo. Nature. 416 (6880), 535-539 (2002).
- Rocha, S., et al. Adsorption of amyloid beta-peptide at polymer surfaces: A neutron reflectivity study. ChemPhysChem. 6 (12), 2527-2534 (2005).
- Attanasio, F., et al. Carnosine inhibits Ab1-42 aggregation by perturbing the H-bond network in and around the central hydrophobic cluster. ChemBioChem. 14 (5), 583-592 (2013).
- Politi, J., Spadavecchia, J., Iodice, M., de Stefano, L. Oligopeptide-heavy metal interaction monitoring by hybrid gold nanoparticle based assay. Analyst. 140 (1), 149-155 (2015).
- Moshe, A., Landau, M., Eisenberg, D. Preparation of Crystalline samples of amyloid fibrils and oligomers. Methods Mol Biol. 1345, 201-210 (2016).
- Scarff, C. A., Ashcroft, A. E., Radford, S. E. Characterization of amyloid oligomers by electrospray ionization-ion mobility spectrometry-mass spectrometry (ESI-IMS-MS). Methods Mol Biol. 1345, 115-132 (2016).
- Sabaté, R., Gallardo, M., Estelrich, J. Temperature dependence of the nucleation constant rate in β amyloid fibrillogenesis. Int J Biol Macromol. 35 (1-2), 9-13 (2005).
- Niraula, T. N., et al. Pressure-dissociable reversible assembly of intrinsically denatured lysozyme is a precursor for amyloid fibrils. Proc Natl Acad Sci U S A. 101 (12), 4089-4093 (2004).
- Miller, A. E., et al. Behavior of β-Amyloid 1-16 at the air-water interface at varying pH by nonlinear spectroscopy and molecular dynamics simulations. J Phys Chem A. 115 (23), 5873-5880 (2011).
- Majzika, A., et al. Functionalization of gold nanoparticles with amino acid, -amyloid peptides and fragment. Colloids Surf B Biointerfaces. 81 (1), 235-241 (2010).
- Liu, L., et al. Electrochemical detectionof β-amyloid peptides on electrode covered with N-terminus-specific antibody based on electrocatalytic O2 reduction by Aβ(1-16)-heme-modified gold nanoparticles. Biosens Bioelectron. 49, 231-235 (2013).
- Elbassal, E. A., et al. Gold Nanoparticles as a Probe for Amyloid-β Oligomer and Amyloid Formation. J Phys Chem C Nanomater Interfaces. 121 (36), 20007-20015 (2017).
- Olmedo, I., et al. How changes in the sequence of the peptide CLPFFD-NH2 can modify the conjugation and stability of gold nanoparticles and their affinity for beta-amyloid fibrils. Bioconjug Chem. 19 (16), 1154-1163 (2008).
- Xu, Y., et al. Attenuation of the aggregation and neurotoxicity of amyloid peptides with neurotransmitter-functionalized ultra-small-sized gold nanoparticles. Eng Sci. 6, 53-63 (2019).
- John, T., Gladytz, A. K., Martin Clemens, L. L., Risselada, H. J., Abel, B. Impact of nanoparticles on amyloid peptide and protein aggregation: A review with a focus on gold nanoparticles. Nanoscale. 45, 20894-20913 (2018).
- Li, J., et al. Reduced aggregation and cytotoxicity of amyloid peptides by graphene oxide/gold nanocomposites prepared by pulsed laser ablation in water. Small. 10 (21), 4386-4394 (2014).
- Araya, E., et al. Gold nanoparticles and microwave irradiation Inhibit beta-amyloid amyloidogenesis. Nanoscale Res Lett. 3, 435(2008).
- Barrow, C. J., Yasuda, A., Kenny, P. T., Zagorski, M. G. Solution conformations and aggregational properties of synthetic amyloid beta-peptides of Alzheimer's disease. Analysis of circular dichroism spectra. J Mol Biol. 225 (4), 1075-1093 (1992).
- Wood, S. J., MacKenzie, L., Maleeff, B., Hurle, M. R., Wetzel, R. Selective inhibition of Ab fibril formation. J Biolog Chem. 271 (8), 4086-4092 (1996).
- Yokoyama, K. Nanoscale Surface Size Dependence in Protein Conjugation. Advances in Nanotechnology. , Nova Science Publishers. New York, NY. (2010).
- Yokoyama, K. Nanoscale Protein Conjugation. Advances in Nanotechnology. , Nova Science Publishers. New York, NY. (2010).
- Yokoyama, K. Modeling of Reversible Protein Conjugation on Nanoscale Surface in Computational Nanotechnology: Modeling and Applications with MATLAB. , CRC Press. Boca Raton. (2011).
- Yokoyama, K. Nano Size Dependent Properties of Colloidal Surfaces. Colloids: Classification, Properties and Applications. , Nova Science Publishers. New York, NY. (2012).
- Yokoyama, K. Controlling Reversible Self-Assembly Path of Amyloid Beta Peptide over Gold Colloidal Nanoparticle's Surface. Nanoscale Spectroscopy with Applications. , CRC Press, Taylor and Francis Group, LLC. (2013).
- Yokoyama, K., et al. Nanoscale size dependence in the conjugation of amyloid beta and ovalbumin proteins on the surface of gold colloidal particles. Nanotechnology. 19, 375101(2008).
- Yokoyama, K., Welchons, D. R. The conjugation of amyloid beta protein on the gold colloidal nanoparticles' surfaces. Nanotechnology. 18, 105101(2007).
- Edelhoch, H. Spectroscopic determination of tryptophan and tyrosine in proteins. Biochemistry. 6 (7), 1948-1954 (1967).
- Yokoyama, K., et al. Examination of adsorption orientation of amyloidogenic peptides over nano-gold colloidal particles surfaces. Int J Mol Sci. 20 (21), 5354-5380 (2019).
- Yokoyama, K., Ichiki, A. Oligomerization and Adsorption Orientation of Amyloidogenic Peptides over Nano-Gold Colloidal Particle Surfaces. Advances in Chemistry Research. , NOVA Science Publishers. New York, NY. (2020).
- Fan, X., Zheng, W., Singh, D. J. Light scattering and surface plasmons on small spherical particles. Light Sci Appl. 3, e179(2014).
- Yokoyama, K., et al. Microscopic investigation of reversible nanoscale surface size dependent protein conjugation. Int J Mol Sci. 10 (5), 2348-2366 (2009).
- Vishwanathan, K. Symmetry of gold neutral clusters Au3-20 and normal modes of vibrations by using the numerical finite difference method with density-functional tight-binding (DFTB) approach. Arch Chem Res. 2 (1), 4(2017).
- Gao, P., Weaver, M. J. Metal-adsorbate vibrational frequencies as a probe of surface bonding: halides and pseudohalides at gold electrodes. J Phys Chem. 90, 4057-4063 (1986).
- Stewart, S., Fredericks, P. M. Surface-enhanced raman spectroscopy of peptides and proteins adsorbed on an electrochemically prepared silver surface. Spectrochim Acta AMol Biomol Spectrosc. 55 (7-8), 1615-1640 (1999).
- Palings, I., et al. Assignment of fingerprint vibrations in the resonance Raman spectra of rhodopsin, isorhodopsin, and bathorhodopsin: Implications for chromophore structure and environment. Biochem. 26 (9), 2544-2556 (1987).
- Szekeres, G. P., Kneipp, J. SERS probing of proteins in gold nanoparticle agglomerates. Front Chem. 7, 30(2019).
- Lin, V. J. C., Koenig, J. L. Raman studies of bovine serum albumin. Biopolymers. 15 (1), 203-218 (1976).
- Hornemann, A., Drescher, D., Flemig, S., Kneipp, J. Intracellular SERS hybrid probes using BSA-reporter conjugates. Anal Bioanal Chem. 405 (19), 6209-6222 (2013).
- Dong, J., et al. Metal binding and oxidation of amyloid-beta within isolated senile plaque cores: Raman microscopic evidence. Biochemistry. 42 (10), 2768-2773 (2003).
- Carey, P. R. Biochemical Applications of Raman and Resonance Raman Spectroscopies. , Academic Press. New York, NY. (1982).
- Harada, I., Takeuchi, H. Raman and Ultraviolet Resonance Raman Spectra of Proteins and Related Compounds. Spectroscopy of Biological Systems : Advances in Infrared and Raman Spectroscopy. , Wiley. Chichester, UK. (1986).
- Overman, S. A., Thomas, G. J. Jr Raman markers of nonaromatic side chains in an α-helix assembly: Ala, Asp, GGly, Ile, Leu, Lys, Ser, and Val residues of phage fd subunits. Biochemistry. 38 (13), 4018-4027 (1999).
- Talaga, D., et al. Total internal reflection tip-enhanced Raman spectroscopy of tau fibrils. J Phys Chem B. 126 (27), 5024-5032 (2022).
- Grys, D. -B., et al. Citrate coordination and bridging of gold nanoparticles: The role of gold adatoms in AuNP aging. ACS Nano. 14 (7), 8689-8696 (2020).
- Guo, T., et al. Full-scale label-free surface-enhanced Raman scattering analysis of mouse brain using a black phosphorus-based two-dimensional nanoprobe. Appl Sci. 9 (3), 398-408 (2019).
- Walther, M., Plochocka, P., Fischer, B., Helm, H., Uhd Jepsen, P. Collective vibrational modes in biological molecules investigated by Terahertz time-domain spectroscopy. Biopolymers. 67 (4-5), 310-313 (2002).
- Lochocki, B., et al. label-free fluorescence and Raman imaging of amyloid deposits in snap-frozen Alzheimer's disease human brain tissue. Commun Biol. 4 (1), 474-486 (2021).
- Palombo, F., et al. Detection of Aβ plaque-associated astrogliosis in Alzheimer's disease brain by spectroscopic imaging and immunohistochemistry. Analyst. 143 (4), 850-857 (2018).
- Khoury, Y. E., et al. Raman imaging reveals accumulation of hemoproteins in plaques from Alzheimer's diseased tissues. ACS Chem Neurosci. 12 (15), 2940-2945 (2021).
- Schmidbaur, H., Raubenheimer, H. G., Dobrzańska, L. The gold-hydrogen bond, Au-H, and the hydrogen bond to gold Au∙∙∙H-X. Chem Soc Rev. 43 (1), 345-380 (2014).
- Yokoyama, K., et al. Protein corona formation and aggregation process of amyloid beta 1-40 coated gold nano-colloids. Langmuir. 40 (3), 1728-1746 (2024).
Przedruki i uprawnienia
