Protokół opisuje metodę hybrydyzacji in situ z uwzględnieniem polimorfizmów pojedynczego nukleotydu (SNP-FISH) w celu rozróżnienia transkryptów rybosomalnego RNA pochodzących z locus rybosomalnego DNA chromosomu X lub Y u Drosophila melanogaster.
Artykuł metodologiczny
Wykrywanie rybosomalnego RNA specyficznego dla polimorfizmu pojedynczego nukleotydu FISH u Drosophila melanogaster
W tym artykule
Podsumowanie
Streszczenie
Aby zapewnić wystarczającą ilość transkrybowanego rybosomalnego RNA (rRNA) dla funkcji rybosomów, genomy zawierają setki tandemowych duplikacji sekwencji kodujących rRNA, tworząc regiony zwane loci rybosomalnego DNA (rDNA). Genomy wielu organizmów zawierają więcej niż jeden locus rDNA rozmieszczony na różnych chromosomach, a rRNA może być transkrybowane z wielu loci rDNA lub tylko jednego locus. Zmiany w źródłach transkrypcji rRNA często wskazują na zaburzenia rybosomalne. Jednak jednorodność rRNA utrudnia rozróżnienie, czy rRNA jest transkrybowane z wielu czy z jednego locus rDNA. W tym miejscu opisujemy metodę, która wykorzystuje fluorescencyjną hybrydyzację in situ wrażliwą na polimorfizm pojedynczego nukleotydu (SNP-FISH) w celu rozróżnienia transkrypcji rRNA między loci rDNA Drosophila melanogaster na chromosomach X i Y. Metoda ta wykorzystuje warianty rRNA specyficzne dla locus, aby umożliwić łatwe wykrycie źródła transkrypcji rRNA z rozdzielczością pojedynczej komórki. Test ten może być stosowany do dowolnego typu komórek Drosophila i może być dostosowany do stosowania w innych systemach.
Wprowadzenie
Rybosomalne RNA (rRNA) 18S, 5.8S i 28S wymagane do funkcjonowania rybosomów są współtranskrybowane w pojedynczym cistronie zwanym pre-rRNA 45S. Trzy rRNA są oddzielone w pre-rRNA 45S przez dwie wewnętrzne transkrybowane sekwencje dystansowe (ITS) i otoczone zewnętrznymi transkrybowanymi sekwencjami dystansowymi (ETS) na końcu 5' i 3'. Wszystkie te sekwencje dystansowe są usuwane z pre-rRNA 45S, aby dojrzałe rRNA zostały włączone do rybosomów (patrz1). Aby sprostać wysokiemu zapotrzebowaniu na produkcję rRNA potrzebną do wspierania aktywności rybosomów, wszystkie genomy eukariotyczne zawierają setki kopii sekwencji 45S. Kopie te są grupowane razem w powtórzeniach tandemowych, tworząc regiony genomowe zwane loci rybosomalnego DNA (rDNA). Większość genomów eukariotycznych zawiera wiele loci rDNA rozmieszczonych na oddzielnych chromosomach (patrz2). Wysoka redundancja kopii 45S oznacza, że zazwyczaj jest o wiele więcej kopii 45S niż jest to konieczne do transkrypcji, a większość kopii 45S jest transkrypcyjnie cicha i zakopana w heterochromatynie3. Aktywność transkrypcyjna nie jest jednolita we wszystkich loci rDNA, a zmienność transkrypcji locus rDNA jest szeroko obserwowana w różnych organizmach4,5,6, co wskazuje, że transkrypcja 45S jest różnie regulowana w poszczególnych loci rDNA. U roślin, bezkręgowców i kręgowców zaobserwowano wyciszenie rDNA w całym locus7,8,9,10, co sugeruje, że wyciszanie rDNA w całym locus jest głównym mechanizmem regulacji dawki rRNA11. Transkrypcja rRNA jest kluczowym etapem regulacyjnym w produkcji rybosomów, a zmiany w transkrypcji rRNA, które modulują aktywność translacyjną, są ważną cechą zarówno normalnego różnicowania, jak i stanów chorobowych12. Zmiany w transkrypcji locus rDNA są również związane ze zmniejszeniem całkowitej liczby kopii rDNA13. Tak więc zmieniona transkrypcja rDNA specyficzna dla locus może być ważnym wskaźnikiem zaburzonej fizjologii komórkowej.
Podczas gdy wyciszanie specyficzne dla locus wydaje się być głównym źródłem regulacji transkrypcji rRNA, mechanizmy ustanawiające to wyciszenie i kierujące, które loci rDNA są aktywne transkrypcyjnie, są w dużej mierze nieznane. Jednorodność sekwencji rDNA utrudnia ocenę transkrypcji poszczególnych locus rDNA, uniemożliwiając powszechną analizę aktywności transkrypcyjnej rDNA specyficznej dla locus. Wyzwanie to może być możliwe do pokonania poprzez wykorzystanie strukturalnej i pojedynczej zmienności sekwencji nukleotydowej między kopiami rDNA w tym samym genomie4,5,6,13. Niektóre z tych wariantów mogą być wspólne dla większości lub wszystkich kopii w pojedynczym locus, tworząc unikalne haplotypy locus rDNA wielu wariantów, które odróżniają locus rDNA. Rzeczywiście, niedawne mapowanie wariantów rDNA do określonych loci przez konsorcjum telomerów ujawniło wspólne warianty rDNA specyficzne dla locus w ludzkim genomie14. Takie mapy locus rDNA mogą umożliwiać identyfikację transkrypcji specyficznej dla locus na podstawie zestawów danych sekwencjonowania; Jednak dostępność tych map jest obecnie ograniczona i nie jest łatwo je wyprodukować. Ponieważ loci rDNA znajdują się tylko na chromosomach płci u Drosophila melanogaster (po jednym locus na każdym chromosomie X i Y)15, locus rDNA chromosomu Y jest nieobecny u samic XX. Ta naturalna izolacja od locus chromosomu Y oznacza, że warianty polimorfizmu pojedynczego nukleotydu (SNP) między loci rDNA X i Y można łatwo zidentyfikować w sekwencjonowaniu z krótkim odczytem jako dowolne warianty, które są obecne u mężczyzn (XY), ale nieobecne u samic (XX). Wcześniej zidentyfikowane SNP mogą być szybko testowane w niegenotypowanych szczepach Drosophila poprzez prosty PCR i sekwencjonowanie Sangera DNA od samców i samic. Co więcej, dostępność szczepów Drosophila z chromosomem X, który nie ma locus rDNA16 oznacza, że poszczególne loci rDNA X i Y mogą być indywidualnie izolowane w celu jeszcze dokładniejszej charakterystyki rDNA SNP. Ta łatwa identyfikacja wariantów SNP między loci rDNA Drosophila umożliwia określenie unikalnych haplotypów rDNA X i Y SNP13. Loci rDNA chromosomu X są również zazwyczaj całkowicie nieme u samców Drosophila, ale oba loci chromosomu X są transkrybowane u samic 10,17, co czyni Drosophila użytecznym systemem do badania wyciszania rDNA w całym locus.
Fluorescencyjna hybrydyzacja in situ (FISH) to potężne narzędzie do wizualizacji obecności specyficznych sekwencji RNA lub DNA w poszczególnych komórkach tkanki. Znaczniki FISH celują w sekwencje RNA lub DNA za pomocą antysensownych sond oligonukleotydowych sprzężonych z fluoroforami. Sondy FISH zazwyczaj muszą mieć długość ~ 20 nukleotydów, aby zapewnić wystarczająco stabilne wiązanie celu, aby można je było zwizualizować, ale tak długie sondy mogą również łatwo wiązać się z sekwencjami niedocelowymi, które różnią się tylko pojedynczym nukleotydem (Rysunek 1A). I odwrotnie, sondy wystarczająco krótkie, aby nadać swoistość pojedynczemu nukleotydowi, nie wiążą się wystarczająco stabilnie do wizualizacji. Aby zrównoważyć specyficzność i stabilność, wrażliwy na SNP FISH (SNP-FISH) łączy antysensowną sondę fluorescencyjną o długości ~26 nukleotydów z niefluorescencyjnym oligonukleotydem maskującym, który wiąże się ze wszystkimi oprócz końca 5' sondy18. Ta maska pozostawia tylko 10 najbardziej 5' nukleotydów sondy jednoniciowych i dostępnych do wiązania celu (Rysunek 1B). Ta krótka, jednoniciowa część sondy nadaje specyficzność celowi, ale zapobiega reaktywności krzyżowej z RNA, które mają nawet pojedynczą niezgodność z tymi 10 nukleotydami (Rysunek 1B)". Gdy końcówka 5' sondy zwiąże swój cel, przemieszczenie nici pasywnej usuwa maskę z sondy, pozwalając obszarowi 3' związać cel i tworząc stabilne oznaczenie celu (Rysunek 1B) 18. Dlatego SNP-FISH może w różny sposób wizualizować RNA, które różnią się pojedynczym SNP, używając pary sond, które mają różne fluorofory, z których każda uzupełnia inny SNP, ale ma wspólną maskę (Figura 1C). Chociaż ta metoda rekrutuje tylko pojedynczą sondę sprzężoną z fluoroforem do docelowego SNP, łączenie wielu zestawów maski sondy do kilku SNP w ramach wspólnego haplotypu rDNA może być wykorzystane do amplifikacji wrażliwego na SNP wykrywania pojedynczego rRNA (Figura 1D). Ponadto, ponieważ rRNA jest tak obficie transkrybowane, transkrypty rRNA można łatwo wizualizować w eksperymentach FISH przy użyciu niewielkiej liczby znaczników fluorescencyjnych na RNA. To niskie zapotrzebowanie na fluorofor na RNA oznacza, że SNP-FISH może wizualizować rRNA z określonego locus z zaledwie kilkoma unikalnymi SNP. Ta metoda może łatwo wykryć specyficzną dla locus transkrypcję rRNA w różnych tkankach Drosophila i stadiach rozwojowych17. Jest szczególnie skuteczny w męskich komórkach macierzystych linii rozrodczej Drosophila, które zmieniają się między wyłączną transkrypcją Y-rDNA a koekspresją loci rDNA chromosomu X i Y podczas starzenia13. W tym miejscu udostępniamy protokół SNP-FISH do wizualizacji odrębnych transkryptów rRNA X i Y w jądrze Drosophila, aby osiągnąć ogólny cel, jakim jest ocena wyciszenia rRNA specyficznego dla locus. Metoda ta wykorzystuje cztery SNP wcześniej scharakteryzowane między loci rDNA na chromosomach X i Y wspólnego laboratoryjnego szczepu Drosophila y1w1 (Rysunek 1D).
Protokół
1. Przygotowanie i odczynników
UWAGA: W krokach 1, 3 i 4 należy stosować technikę bez RNaz i należy stosować certyfikowane odczynniki wolne od RNaz.
- W kapturze chemicznym przygotuj 40 ml 4% formaldehydu w 1x roztworze utrwalającym PBS, dodając 10 ml 16% formaldehydu i 4 ml 10 PBS bez RNaz do 26 ml wody wolnej od RNaz. Rozprowadzić w 1 ml porcji i przechowywać w temperaturze -20 °C w ciągu 30 minut od przygotowania. Roztwór utrwalający można przechowywać w temperaturze -20 °C przez okres do 6 miesięcy.
UWAGA: Roztwór zawiera formaldehyd. Obchodź się z nimi w rękawicach i odpowiednich środkach ochrony osobistej i bezpiecznie je zutylizuj. - Przygotować 10 ml buforu hybrydyzacyjnego, mieszając 1 ml 20 x RNazo-wolnego cytrynianu soli fizjologicznej (SSC), 1 g siarczanu dekstranu, 100 μl 100 mg/ml tRNA Saccharomyces cerevisiae, 100 μl 200 mM kompleksu rybonukleozydów wanadylu, 1 ml 5% BSA wolnego od RNaz, 1 ml dejonizowanego formamidu w połączeniu z 6 ml wody wolnej od RNaz. Rozprowadzić do 1 ml porcji w 1,5 ml probówkach do mikrofuge i przechowywać w temperaturze -20 °C przez okres do 1 miesiąca.
- Przygotować 50 ml buforu do płukania, dodając 5 ml 20 x SSC bez RNaz, 5 ml dejonizowanego formamidu, 50 μl Triton-X do 40 ml wody wolnej od RNaz. Przechowywać w temperaturze pokojowej w ciemności do 1 miesiąca.
- Przygotuj 10 ml buforu do izolacji DNA, dodając 100 μl 1M Tris-HCl pH 7,5-8,0, 20 μl 0,5M EDTA i 50 μl 5M NaCl do 9,8 ml wody.
2. Genotypowanie próbki dla SNP rRNA specyficznych dla X i Y
- Zebrać pojedyncze, niekryte homozygotyczne samice i samce X posiadające ten sam chromosom X w probówkach o pojemności 0,2 ml i schłodzić na lodzie.
- Połącz 50 μl buforu do izolacji DNA z 0,5 μl 20 mg / ml proteinazy K na próbkę.
- Dodać 50 μl buforu do izolacji DNA / proteinazy K do próbki Drosophila i homogenizować próbkę za pomocą końcówki pipety.
- Próbki należy inkubować w temperaturze 37°C przez 30 minut, a następnie w temperaturze 95°C przez 2 minuty. Przenieś 40 ml próbki (unikaj odchodów zwierzęcych) do czystej probówki o pojemności 1,5 ml.
- Oddzielnie amplifikować każdy region docelowy SNP z każdej próbki DNA metodą PCR przy użyciu stężenia 10 μM następujących par starterów: 18S SNP do przodu + do tyłu; ITS1 SNP Do przodu + do tyłu; 28S SNP do przodu + do tyłu. Sekwencja startera i oczekiwana wielkość amplikonu PCR znajdują się w Tabeli 1.
- Użyj elektroforezy żelowej, aby oddzielić całą próbkę PCR od 1% agarozy 1x żel TAE, aby potwierdzić oczekiwany produkt PCR. Oczekiwane rozmiary produktów podano w tabeli 1.
- Wyizolować produkt PCR z żelu za pomocą dowolnego dostępnego na rynku zestawu do ekstrakcji żelu.
- Sekwencjonowanie produktów PCR metodą sekwencjonowania Sangera. Sekwencjonować próbki w obu kierunkach, stosując oddzielne indywidualne reakcje dla startera F i R dla każdego celu.
- Określić wariant SNP chromosomu X w pozycjach podanych w tabeli 2 w niedopasowanej próbce DNA samicy. Oczekiwany haplotyp X opisano w tabeli 2.
- Obserwuj pozycje SNP w chromatogramie sekwencjonowania męskiej próbki DNA. Wywnioskuj wariant SNP chromosomu Y na podstawie już określonego wariantu X SNP w każdej pozycji SNP. Przewidywany haplotyp Y opisano w tabeli 2.
| Nazwa podkładu | kolejność | Oczekiwany rozmiar amplikonu |
| 18S SNP F | GACTACCATGGTTGCAACGG | 652 punktów bazowych |
| 18S SNP R | TTCACCTCTCGCGTCGTAAT | |
| ITS1 SNP F | CTTGCGTGTTACGGTTTTTTC powiedział: | 955 punktów bazowych |
| ITS1 SNP R | ACAGCATGGACTGCGATATG powiedział: | |
| 28S SNP F | ATGCGTAGAAGTGTTTGGCG powiedział: | 598 punktów bazowych |
| 28S SNP R | GCCGACTTCCCTTACCTACA powiedział: |
Tabela 1: Sekwencje starterów do sekwencjonowania SNP rDNA. Pary starterów do amplifikacji regionów rDNA, które zawierają wcześniej scharakteryzowane SNP w regionach rDNA 18S, ITS1 i 28S. Wymieniona jest sekwencja oligonukleotydów starterowych i oczekiwana wielkość amplikonu PCR.
powiedział: powiedział: powiedział: powiedział:| Haplotyp | Pozycja SNP | Sekwencja | ||
| X rDNA | 18S | 1603-ATACTTGTATTTTTTCATATG-1625 | ||
| ITS1-1 | 2873-CGTTAATAAATATTTGTAATT-2895 | |||
| ITS1-2 | 3115-GAAAATCGAAGAAACAAAATT-3137 | |||
| 28S | 5932-AACAAAAATGCCTAACTATAT-5954 | |||
| Y rDNA | 18S | 1603-ATACTTGTATCTTTTCATATG-1624 | ||
| ITS1-1 | 2873-CGTTAATAAACATTTGTAATT-2895 | |||
| ITS1-2 | 3115-GAAAATCGAAAAAACAAAATT-3137 | |||
| 28S | 5932-AACAAAAATGGCTAACTATAT-5954 | |||
Tabela 2: Oczekiwane haplotypy rDNA. Oczekiwane SNP w loci rDNA chromosomów X i Y w szczepie y1w1 Drosophila. SNP zaznaczone pogrubioną czcionką i podkreślone. Pozycja wymieniona na podstawie konsensusu 45S rRNA sekwencja (plik uzupełniający 1).
3. Rozwarstwienie, utrwalenie i przepuszczalność jądra
- Wyczyść mikroskop stereoskopowy, stację roboczą, naczynie preparacyjne i kleszcze preparacyjne 70% etanolem (lub innym zabiegiem RNazy).
- Pod mikroskopem stereoskopowym przeprowadź sekcję Drosophila, aby wyizolować jądra w 1x PBS wolnym od RNAzy. Chwyć środek brzucha zwierzęcia jedną parą kleszczy i chwyć koniec brzucha drugą parą kleszczy, aby delikatnie rozsunąć zwierzę. Jądra odłączą się od zwierzęcia i mogą być dalej oddzielone za pomocą kleszczy. Zbierz 30 - 40 jąder na próbkę.
- Za pomocą kleszczy podnieś jądra i przenieś je z naczynia preparacyjnego do 1,5 ml probówki do mikrofuge zawierającej 0,5 ml 1x PBS wolnego od RNaz.
- Odessać PBS i dodać 1 ml roztworu utrwalającego. Inkubować w temperaturze pokojowej na wytrząsarce nutującej przez 30 minut. Aspirować utrwalacz .
- Przemyć 2x 1 ml 1x PBS bez RNaz przez 5 minut każdy na wytrząsarce nutacyjnej. Odessać 1x PBS i dodać 1 ml 70% etanolu (EtOH) bez RNaz. Inkubować w temperaturze 4 °C przez noc na wytrząsarce do nutowania.
4. Ryba rybosomalnego RNA wrażliwego na SNP
- Odessać etanol i dodać 1 ml buforu do płukania. Inkubować w temperaturze pokojowej przez 3 minuty na wytrząsarce do nutowania, a następnie 2 minuty probówki w pozycji pionowej.
- Wymieszaj sondy i maski z buforem hybrydyzacyjnym, uzyskując 100 μl całkowitej objętości na próbkę. Sekwencje sondy, maski i etykiety fluoroforowe są wymienione w Tabeli 3. Używając wszystkich 4 SNP, przygotuj 80 μl buforu hybrydyzacyjnego, po 1 μl każdej z 10 μM Y-SNP sondy (łącznie 4 μL), po 1 μL każdej z 10 μM X-SNP sondy (łącznie 4 μL) i 3 μL po 10 μM wspólnej maski (łącznie 12 μL)
- Odessać bufor do płukania, a następnie dodać 100 μl roztworu hybrydyzacyjnego. Na krawędzie probówki nałożyć przezroczystą folię, owinąć folią aluminiową w celu ochrony przed światłem i inkubować w łaźni wodnej o temperaturze 37 °C przez co najmniej 24 godziny.
- Dodać 1 ml buforu do przemywania do próbki bez zasysania roztworu hybrydyzacyjnego. Inkubować w łaźni wodnej o temperaturze 37 °C przez 30 minut w ciemności.
- Odessać bufor do przemywania się, a następnie dodać 1 ml buforu do przemywania do próbki. Inkubować w łaźni wodnej o temperaturze 37 °C przez 30 minut w ciemności.
- Odessać bufor do przemywania i dodać 50 μl podłoża montażowego. Próbki można natychmiast zamontować na szkiełkach podstawowych lub przechowywać do 1 tygodnia w temperaturze 4 °C przed montażem.
| Pozycja SNP | Oligonukleotyd | Sekwencja | 3' sprzężony fluorofor | |
| 18S | Sonda X SNP | AAAAAATACAAGTATTTAATCACATA | Asystent 488 | |
| Sonda Y SNP | AAAAGATACAAGTATTTAATCACATA | Asystent 647 | ||
| maska | TATGTGATTAAATACT | |||
| ITS1-1 | Sonda X SNP | AAATATTTATTAACGGTAAGGATATT | Asystent 488 | |
| Sonda Y SNP | AAATGTTTATTAACGGTAAGGATATT | Asystent 647 | ||
| maska | AATATCCTTACCGTTA | |||
| ITS1-2 | Sonda X SNP | GTTTCTTCGATTTTCATGTTCGAAAC | Asystent 488 | |
| Sonda Y SNP | GTTTTTTCGATTTTCATGTTCGAAAC | Asystent 647 | ||
| maska | GTTTCGAACATGAAAA | |||
| 28S | Sonda X SNP | TTAGGCATTTTTTTTTTTTACTTGAAAA | Asystent 488 | |
| Sonda Y SNP | TTAGCCATTTTTTTTTTTTACTTGAAAA | Asystent 647 | ||
| maska | TTTTCAAGTAAAACAA | |||
Tabela 3: Sekwencje sondy i maski dla rDNA SNP-FISH. Pozycje SNP są wyróżnione pogrubioną czcionką. Część sondy, która wiąże się z oligonukleotydem maski, jest podkreślona. Wymienione są przykłady odpowiednich fluoroforów sprzężonych 3', ale można użyć dowolnych kompatybilnych fluoroforów.
5. Przygotowanie próbek do obrazowania
- Pracując pod stereoskopowym mikroskopem preparacyjnym, użyj pipety o szerokim otworze, aby przenieść próbkę na szkiełko mikroskopowe.
- Za pomocą kleszczyków ułóż jądra w linii, aby ułatwić znalezienie próbek podczas obrazowania (nie jest wymagana określona orientacja). Przykryj próbkę szkiełkiem nakrywkowym. Osusz krawędzie szkiełka nakrywkowego chusteczką higieniczną, aby usunąć nadmiar podłoża montażowego.
- Uszczelnij krawędzie szkiełka nakrywkowego lakierem do paznokci. Pozostaw szkiełko w ciemności w temperaturze pokojowej na 10 minut, aby lakier do paznokci wyschł. Preparaty mogą być używane natychmiast do obrazowania konfokalnego lub przechowywane przez okres do jednego miesiąca w temperaturze 4 °C przed obrazowaniem.
Wyniki
Oczekuje się, że wyniki sekwencjonowania z genotypowania SNP wykażą różnice w SNP pomiędzy locusami rDNA X i Y. SNP te są wykrywane poprzez bezpośrednią analizę pozycji SNP na chromatogramach sekwencyjnych. (Rycina 2)Oczekuje się, że sekwencjonowanie próbek żeńskich wykaże pojedynczy sygnał sekwencjonowania w pozycji SNP, co wskazuje na homozygotyczność SNP pomiędzy dwoma chromosomami X (Rysunek 2A)Oczekuje się, że wyniki sekwencjonowania próbek męskich będą wykazywać podwójny pik w pozycji SNP (Rycina 2B)Na podstawie genotypu chromosomu X określonego na podstawie sekwencjonowania próbek żeńskich wywnioskowano, że wariant nie-X jest polimorfizmem pojedynczego nukleotydu (SNP) rDNA chromosomu Y (tj. X = T, Y = C dla sekwencjonowania SNP 18S w Rysunek 2Alternatywnie, pojedynczy piki sekwencjonowania w pozycji SNP w próbce męskiej wskazywałby na homozygotyczność loci rDNA u samca i samicy w tej pozycji SNP, a pozycja ta nie byłaby przydatna do analizy rRNA SNP-FISH.
Zgodnie z protokołem SNP FISH, próbki można wizualizować poprzez osadzenie ich na szkiełkach przedmiotowych i przykrycie szczelnie szkiełkiem nakrywowym, a następnie poddać analizie za pomocą mikroskopii konfokalnej. Wykorzystując sondy wymienione w Tabela 3sygnał rRNA pochodzący z chromosomu Y jest wykrywany za pomocą emisji Alexa Fluor 647, a sygnał rRNA pochodzący z chromosomu X jest wykrywany za pomocą emisji Alexa Fluor 488. Oczekuje się, że sygnały rRNA będą widoczne w jąderku, które można zidentyfikować jako obszar o niskim natężeniu barwienia DAPI w obrębie jądra komórkowego (Rysunek 3A)Jąderko jest szczególnie łatwe do zidentyfikowania w komórkach linii zarodkowej ze względu na ich duże jądro komórkowe i duże jąderko. (Rysunek 3A)Słaby sygnał może być zazwyczaj widoczny również w cytoplazmie (Rycina 3), ale jest to sygnał niespecyficzny, który może być wykryty również w próbkach niezawierających rRNA z komplementarnym SNP (np. sygnał Y w komórkach pozbawionych rDNA Y lub sygnał X w komórkach pozbawionych rDNA X; Rycina 3B-C). Ponadto sztuczne współoznaczenie rRNA X i Y może być niekiedy wykrywane w centrum somatycznym (somatic hub), nawet w próbkach pozbawionych loci rDNA X lub Y (Rycina 3B-C, żółte strzałki). Zatem do oceny transkrypcji specyficznej dla locus należy wykorzystywać wyłącznie sygnały jądrowe. Przewiduje się, że większość komórek, w szczególności komórki somatyczne, będzie wykazywać jedynie sygnał rRNA z chromosomu Y, co wskazuje, że rRNA jest transkrybowane wyłącznie z locus rDNA chromosomu Y (Rycina 3A, żółte przerywane koło i czerwona strzałka)10,17Jednakże często wykrywa się koekspresję rRNA X i Y w komórkach linii zarodkowej, w szczególności w macierzystych komórkach linii zarodkowej.13 (Rycina 3A, białe przerywane okręgi). Sygnały rRNA X i Y w komórkach wykazujących koekspresję mogą znajdować się obok siebie i tworzyć pojedynczy jąderko (Rysunek 3A górna część komórki) lub mogą być oddzielne, tworząc dwa jąderka (Rycina 3A dolna komórka).Przykłady w Rycina 3 uzyskano za pomocą metody rDNA SNP-FISH z wykorzystaniem zestawów sond celujących w tylko dwa SNP (dwa SNP w regionie ITS1), co dowodzi, że do przeprowadzenia rDNA SNP-FISH wystarczą tylko dwa SNP. Niemniej jednak silniejsze sygnały obserwuje się przy zastosowaniu sond celujących we wszystkie cztery SNP13.
Kontrole negatywne są istotnym elementem tego testu, służącym potwierdzeniu, że sondy nie wykazują reaktywności krzyżowej z niewłaściwym docelowym SNP, szczególnie podczas pierwszej optymalizacji metody. Kontrole negatywne dla chromosomu X obejmują każdy stan, w którym brakuje rDNA chromosomu X, na przykład u mężczyzn z delecją rDNA w chromosomie X. W przypadku kontroli negatywnych dla chromosomu X oczekuje się wykrycia wyłącznie sygnału rRNA chromosomu Y, bez obecności rRNA chromosomu X. (Rysunek 3B)Kontrole negatywne dla chromosomu Y obejmują każdy stan, w którym brakuje rDNA chromosomu Y. Przykładami takich stanów są wszelkie tkanki żeńskie XX, tkanki mężczyzn pozbawionych chromosomu Y lub mężczyzn posiadających chromosom Y z delecją rDNA.15Oczekuje się, że w kontrolach negatywnych dla chromosomu Y zostanie wykryty jedynie sygnał rRNA X i nie będzie wykrywalnego sygnału rRNA Y. (Rysunek 3C)Należy zauważyć, że kontrole te są istotne nie tylko dla określenia specyficzności sond, ale także dla wyznaczenia tła sygnału lub artefaktów. Wszelkie nowe sondy lub warunki analizy, które zapewniają specyficzność w takich kontrolach, mogą być precyzyjnie wykorzystane do wykrywania transkrypcji rDNA specyficznej dla danego locus.
Różne warunki genetyczne, rozwojowe lub środowiskowe mogą zmieniać prawdopodobieństwo, że rDNA jest transkrybowany wyłącznie z locus rDNA chromosomu Y13,17. Częstotliwość transkrypcji rDNA z pojedynczego lub wielu loci można określić ilościowo i bezpośrednio porównać między próbkami. Aby ilościowo porównać różnice w transkrypcji locus rDNA, każdą komórkę należy indywidualnie sklasyfikować jako z dominacją Y (Y-dominant), kodominacyjną (Co-dominant) lub z dominacją X (X-dominant). Komórki są klasyfikowane jako z dominacją Y lub X tylko wtedy, gdy wykryty zostanie wyłącznie odpowiedni sygnał. Każda komórka z sygnałami rRNA zarówno Y, jak i X jest uważana za kodominacyjną, nawet jeśli jeden sygnał jest znacznie słabszy od drugiego. Zatem komórki zawierające bardzo silne sygnały X i Y są jakościowo uważane za takie same, jak komórki z silnym sygnałem Y i słabym X lub silnym sygnałem X i słabym Y. Całkowity procent wszystkich komórek we wszystkich próbkach w każdej kategorii można porównać między próbkami za pomocą testu chi-kwadrat. Choć ten test dobrze sprawdza się w jakościowym określeniu, czy dany locus rDNA jest transkrybowany, czy nie, nie zaobserwowaliśmy spójnych wyników między próbkami podczas bezpośredniego pomiaru ilościowego intensywności fluorescencji poszczególnych sygnałów SNP-FISH. Dlatego nie zalecamy dokonywania ilościowych ocen intensywności sygnału FISH między próbkami ani względnej intensywności sygnałów rDNA X i Y w obrębie jednej komórki. Przyczyna tej niespójności intensywności fluorescencji nie jest jasna, choć może ona wynikać z nieefektywnego wiązania sond maskujących, które nie wiążą się ze wszystkimi docelowymi rRNA.

Rycina 1: Schemat metody SNP-FISH. (A) Tradycyjne antysensowne sondy oligonukleotydowe FISH wykazują reakcje krzyżowe z niecelowymi cząsteczkami RNA, które różnią się tylko jednym nukleotydem. (B) Metoda SNP-FISH wykorzystuje komplementarną maskującą sondę oligonukleotydową związaną z regionem 3' sondy oligonukleotydowej. Maska pozostawia wolnych tylko 10 nukleotydów do związania z sekwencją docelową. Niezamaskowany region sondy nie wiąże się stabilnie z sekwencjami niecelowymi, które różnią się jednym lub większą liczbą nukleotydów. Maska dysocjuje od sondy po związaniu sondy z celem, umożliwiając stabilne wiązanie między sondą a celem. (C) Różnie znakowane pary sond SNP połączone ze wspólną maską specyficznie wiążą cele różniące się pojedynczym nukleotydem bez reakcji krzyżowych. (D) Wiele sond można połączyć w celu specyficznego znakowania odrębnych haplotypów rRNA. Między locusami rDNA X i Y w szczepie y1w1 Drosophila melanogaster scharakteryzowano cztery różnice SNP. Jeden SNP w 18S rRNA, jeden w 28S rRNA oraz dwa w części ITS1 pre-rRNA. Przedstawiono haplotypy rRNA specyficzne dla X i Y użyte do SNP-FISH. Sondy celujące w wariant rDNA X w czterech miejscach SNP rRNA są sprzężone ze wspólnym fluorochromem (zielony), a sondy celujące w warianty rDNA Y są sprzężone z innym fluorochromem (magenta). Dla każdego SNP stosowana jest wspólna maska (łącznie cztery). Specyficzne wiązanie sond w każdym położeniu SNP na rRNA może specyficznie znakować rRNA z locusów rDNA X i Y za pomocą do czterech oligonukleotydowych sond FISH. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
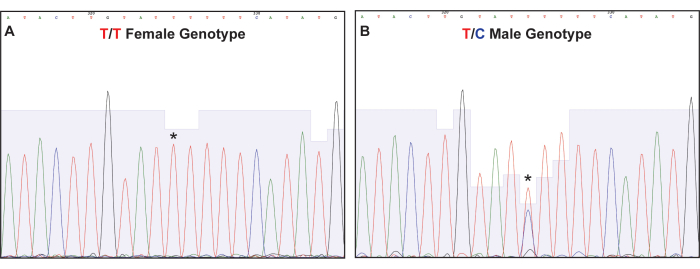
Rysunek 2: Przykłady wyników sekwencjonowania homozygotycznych i heterozygotycznych SNP rDNA. Przykładowe chromatogramy sekwencjonowania SNP 18S z DNA z próbek (A) samicy i (B) samca. Pozycja SNP 18S zaznaczona gwiazdką (*). Pojedynczy sygnał tyminy (T) w pozycji SNP w próbce samicy wskazuje na obecność tyminy w pozycji SNP w locus rDNA chromosomu X. Podwójny sygnał w pozycji SNP, podzielony między tyminę a cytozynę (C) w próbce samca, wskazuje na obecność cytozyny w pozycji SNP w locus rDNA chromosomu Y (wnioskowano to na podstawie obecności tyminy w locus chromosomu X). Wyniki sekwencjonowania przeanalizowano za pomocą programu ApE – edytora plazmidów19. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
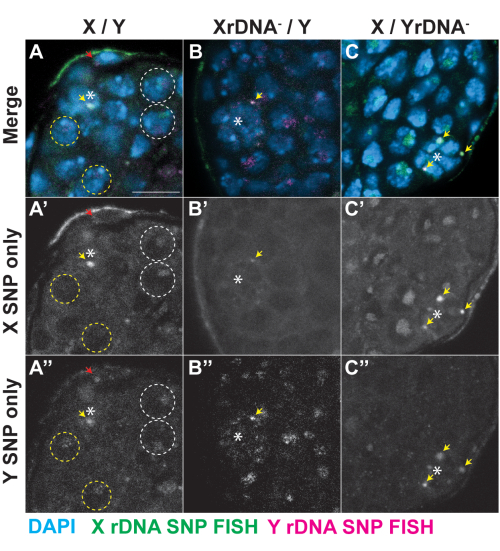
Rycina 3: Przykłady wyników SNP-FISH w jądrach Drosophila przy użyciu tylko dwóch zestawów sond SNP-FISH. Przykłady SNP-FISH w jądrach zwierząt z (A)rdNA X i Y, (B) tylko rdNA Y lub (C) tylko rdNA X. Te przykłady wykorzystują jedynie zestawy sond znakujących dwa SNP rRNA w regionie ITS1, co demonstruje, że metoda rRNA SNP FISH działa przy użyciu nawet dwóch SNP docelowych. Komórki zarodkowe rozpoznaje się po dużym, okrągłym jądrze, a komórki somatyczne po mniejszym i mniej okrągłym jądrze. Komórki macierzyste linii zarodkowej rozpoznaje się po położeniu bezpośrednio obok somatycznego centrum (hub), oznaczonego gwiazdką (*). Komórki zarodkowe, które transkrybują rdNA z obu loci rdNA X i Y, są zidentyfikowane przez sygnały FISH w jądrach dla X i Y (białe przerywane okręgi, A-A''). Komórki zarodkowe transkrybujące DNA tylko z locus rdNA Y wykazują jedynie sygnał FISH dla Y w jądrze (żółty przerywany okrąg). Komórki somatyczne wykazujące ekspresję wyłącznie Y są zaznaczone czerwoną strzałką. Sztuczne współznakowanie loci rdNA X i Y można zaobserwować w somatycznym centrum (żółta strzałka). Pasek skali odpowiada 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Plik uzupełniający 1: sekwencja rRNA locus chromosomu X. Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
W tym miejscu opisano metodę wykorzystania SNP-FISH do rozróżnienia transkryptów 45S rRNA pochodzących z loci rDNA chromosomów X i Y w tkankach Drosophila melanogaster . Najważniejszym krokiem w tym protokole jest dokładne genotypowanie SNP 45S, które mają być wykorzystane jako cele SNP-FISH. Zapewniamy startery i protokół do genotypu czterech znanych SNP Drosophila 45S, ale inne metody sekwencjonowania mogą ujawnić nowe SNP, które można alternatywnie wykorzystać do testu. Żadne pozycje SNP, które okazały się identyczne między loci rDNA chromosomu X i Y (tj. w próbkach męskiego DNA, występuje pojedynczy pik sekwencjonowania) nie mogą być stosowane dla SNP FISH. Może się okazać, że niektóre pozycje SNP są niejednorodne w obrębie pojedynczego locus rDNA (tj. wyniki sekwencjonowania nie dają pojedynczego wariantu SNP dla próbek XX lub tylko bardzo niewielki drugi pik sekwencjonowania w próbkach XY). SNP, które są heterogenne w obrębie pojedynczego locus rDNA, również nie nadają się do tego testu, ponieważ jeden z wariantów byłby współdzielony przez dwa loci rDNA, co sprawia, że transkrypcja z jednego locus lub wielu loci jest nie do odróżnienia. Ponadto, ze względu na magazynowanie nasienia u samic20, DNA wyizolowane od pokrytych samic może zawierać rDNA chromosomu Y. Dlatego tak ważne jest, aby niekryte samice były wykorzystywane do analizy sekwencjonowania XX. Co ważne, metoda ta wymaga co najmniej dwóch SNP specyficznych dla chromosomów, aby umożliwić co najmniej dwóm sondom specyficznym dla locus związanie każdej cząsteczki rRNA w celu wykrycia, ograniczając jej zastosowanie do loci rDNA z co najmniej dwoma rozróżniającymi SNP między nimi. Dostępność większej liczby SNP pozwala na wiązanie każdego rRNA przez większą liczbę sond i może zapewnić większą skuteczność sygnału. Co ciekawe, metoda ta znakuje tylko rRNA w jąderku, pomimo dwóch par sond celujących w SNP w 18S i 28S rRNA, które są eksportowane do cytoplazmy (rRNA zawierające dwa miejsca docelowe ITS1 występuje tylko w jąderku). Brak cytoplazmatycznego sygnału FISH sugeruje dwie niewyłączne możliwości: 1) same sondy 18S i 28S są niewystarczające do wykrycia cytoplazmatycznego rRNA, być może dlatego, że rRNA jest bardziej rozproszone w cytoplazmie niż w jąderku, lub 2) istnieje niższa wydajność wiązania sondy z rRNA zintegrowanymi z dojrzałymi podjednostkami rybosomalnymi niż z nieprzetworzonym 45S rRNA. Dodatkowe SNP w obrębie 18S i 28S rRNA mogą umożliwić wrażliwe na SNP wykrywanie cytoplazmatycznych rRNA przez FISH.
Inne metody oceny transkrypcji rRNA specyficznej dla locus obejmują podejścia sekwencjonowania rRNA, które różnicują ekspresję wariantów rRNA przypisanych do określonych loci6. Podobnie, qPCR może w różny sposób oceniać ekspresję wariantów rRNA, które są wystarczająco wyraźne, aby umożliwić unikalne wykrycie 5,21, chociaż nie jest jasne, czy wyciszenie tych wariantów reprezentuje wyciszenie całego locus rDNA. Chociaż metody te mogą być skuteczne w ilościowym określaniu ekspresji określonych wariantów rRNA, nie można ich wykonać w rozdzielczości pojedynczej komórki. Niejednorodność wyciszania rDNA chromosomu X w tkankach Drosophila sugeruje, że istnieje silna zmienność między komórkami w transkrypcji locus rDNA17 i podkreśla potrzebę technik, które mogą wyjaśnić tę zmienność. Cechy obrazowania związane z aktywną transkrypcją w loci rDNA, takie jak wariant histonu H3.310 lub czynnik transkrypcyjny Pol I UBF22, zostały wykorzystane do identyfikacji transkrypcji rRNA specyficznej dla locus z rozdzielczością pojedynczej komórki. Jednak obie te metody wymagają skondensowanych chromosomów komórek mitotycznych w celu odróżnienia transkrypcji zachodzącej w dowolnym konkretnym locus rDNA. W komórkach Drosophila loci rDNA na chromosomach X i Y można zidentyfikować na podstawie kształtu chromosomu10, ale identyfikacja aktywnych transkrypcyjnie loci rDNA w komórkach ludzkich wymaga również współbarwienia z etykietami specyficznymi dla chromosomów22. Metoda SNP-FISH nie wymaga ani wspólnego znakowania specyficznego dla chromosomu, ani znakowania markerów transkrypcyjnych i może być oceniana na dowolnym etapie cyklu komórkowego lub w komórkach postmitotycznych, co zapewnia elastyczność stosowania w różnych tkankach i warunkach eksperymentalnych.
Ta metoda rRNA SNP-FISH może być zmodyfikowana do stosowania z innymi SNP, które rozróżniają rRNA Drosophila lub potencjalnie może być stosowana do SNP, które rozróżniają loci rDNA w innych organizmach. Zastosowanie tej metody do organizmów z więcej niż dwoma loci rDNA będzie wymagało, aby locus miał unikalny haplotyp wariantu rDNA zawierający co najmniej dwa SNP, które nie są obecne w żadnym innym locus rDNA i które są wspólne dla wszystkich kopii 45S w tym locus. Wymóg ten oznacza, że metoda będzie w stanie określić transkrypcję tylko z jednego określonego locus w porównaniu ze wszystkimi innymi (tj. SNP rRNA z locus 1 w porównaniu z SNP współdzielonymi przez loci 2 i 3). Jeśli jednak każdy locus rDNA ma zgodny haplotyp, wiele eksperymentów można połączyć, aby indywidualnie ocenić transkrypcję każdego locus pojedynczo. Stosunkowo niska rygorystyczność temperatury hybrydyzacji (37 °C) zastosowana w tym protokole pozwala na silne wiązanie sondy, szczególnie biorąc pod uwagę krótką, niezamaskowaną część sondy, chociaż wykazano, że hybrydyzacja w wyższych temperaturach (50-75 °C) wzmacnia sygnał niektórych sond FISH23. Wyższe temperatury hybrydyzacji mogą zwiększyć przemieszczenie nici maski i zwiększyć wiązanie sondy, ale zbyt wysokie temperatury mogą zdestabilizować wiązanie sonda-maska i stracić specyficzność SNP. Z tego powodu nie oczekujemy, że SNP-FISH będzie specyficznie znakować DNA, ponieważ temperatury potrzebne do stopienia dwuniciowych celów DNA, aby umożliwić wiązanie sondy, zdestabilizowałyby również wiązanie sonda-maska i wyeliminowały specyficzność celu wrażliwego na SNP. Mimo to optymalizacja temperatury hybrydyzacji dla nowych sond SNP rRNA może zwiększyć sygnał, szczególnie gdy dostępne są tylko dwa miejsca SNP. Utrata wyciszenia rDNA chromosomu X wiąże się ze zmniejszeniem liczby kopii rDNA u Drosophila13, więc opracowanie testów SNP-FISH w celu scharakteryzowania transkrypcji rRNA specyficznej dla locus w innych systemach może służyć jako użyteczne narzędzie do oceny integralności rDNA i funkcji rybosomów. Co więcej, metoda ta została zmodyfikowana do stosowania z wariantem delecji u Drosophila, a ten pojedynczy strukturalny wariant rRNA był odpowiedni do wykrycia (być może ze względu na większe powinowactwo wiązania celu bez maski sondy)17. Zastosowanie strukturalnych wariantów rRNA potencjalnie połączonych z wariantami SNP poszerza potencjał do zastosowania w innych układach. Ponieważ mechanizmy regulujące transkrypcję locus rDNA pozostają w dużej mierze niejasne, elastyczność i potencjalna zdolność adaptacji rRNA SNP-FISH do innych systemów sprawiają, że jest to potężne narzędzie do przyszłych badań nad transkrypcją rRNA.
Oświadczenia
Autorzy nie mają żadnych konfliktów interesów, które mogliby ujawnić.
Podziękowania
Dziękujemy Bloomington Drosophila Stock Center, Kyoto Drosophila Stock Center i FlyBase za ich zasoby. Prace te były wspierane przez fundusze start-upowe zapewnione przez Wydział Biochemii i Biologii Komórki Uniwersytetu Stony Brook oraz Renaissance School of Medicine (JON).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| PTC Tempo 96 Thermal Cycler | Bio Rad | 12015382 | Można użyć dowolnego termocyklera |
| 0,2 ml 8-paskowe płaskie probówki PCR | VWR | 89133-912 | Można użyć dowolnych kompatybilnych probówek |
| 1 kb Drabinka DNA | NEB | N3232S | Do użycia podczas sprawdzania sekwencjonowania Wielkość amplikonu PCR za pomocą elektroforezy żelowej |
| 1,5 ml Probówki do mikrowirówek z podziałką | USA Scientific | 1615-5510 | Każda certyfikowana probówka wolna od RNaz zrobi |
| 2 mM dNTP Mix | ThermoFisher Scientific | R0241 | |
| 50x TAE Buffer | Bio Rad | 1610743 | Służy do elektroforezy żelowej. Można użyć dowolnego bufora TAE. |
| 5M NaCl | Każdy NaCl może być używany lub przygotowywany z dowolnego źródła | ||
| Agaroza | VWR | 97064-250 | Można użyć dowolnej agarozy |
| ApE - A Oprogramowanie do edycji plazmidów | N/A | N/A | |
| Bezbarwny lakier | Można użyć dowolnego lakieru do paznokci z dowolnego sprzedawcy | ||
| Szkło nakrywkowe, nr 1 Grubość | Thomas Scientific | 6672A38 | |
| Dejonizowany formamid | Fisher Scientific | NC9569627 | |
| Siarczan dekstranu Sód | Sigma Aldrich | D8906-10G | |
| DreamTaq Green PCR Master Mix | Kleszcze ThermoFisher Scientific | K1081 | |
| Dumont #5 | Fine Science Tools | 11252-20 | Służy do preparowania próbek |
| EDTA (0,5 M), Ph 8,0 | ThermoFisher Scientific | R1021 | Można użyć dowolnego porównywalnego produktu |
| Etanol | VWR | 89125-172 | Można użyć dowolnego 200-procentowego etanolu. Służy do rozcieńczania do 70% etanolu w celu przepuszczalności i czyszczenia w warunkach wolnych od rnazy |
| Bromek etydyny | ThermoFisher Scientific | 15585011 | |
| Poziomy system elektroforezy żelowej | Fisher Scientific | 14-955-170 | Można użyć dowolnego systemu elektroforezy żelowej |
| Kimwipes | Fisher Scientific | 06-666 | |
| Naczynie do barwienia mikrotestowego | Electron Nauki mikroskopowe | 71564 | Służy do preparowania próbek |
| Wytrząsarka do nutowania | Sigma Aldrich | BMSB3D1020 | Można użyć dowolnej wytrząsarki do nutowania |
| Parafilm | USA Scientific | 3023-4526 | |
| Sól fizjologiczna buforowana fosforanami (10X) pH 7,4, bez RNaz | Technologies | AM9624 | |
| Pierce 16% Formaldehyd (w/v), bez metanolu | Life Technologies | 28908 | |
| Precision General Purpose Water Bath | Life Technologies | TSGP02 | Można użyć dowolnej kąpieli wodnej |
| Zestaw do ekstrakcji żelu QIAquick | Qiagen | 28704 | Można użyć dowolnego zestawu do ekstrakcji żelu |
| Rekombinowany roztwór proteinazy K (20 mg / ml) | Invitrogen | AM2546 | Można użyć dowolnego porównywalnego produktu |
| rnazy UltraPure BSA | ThermoFisher Scientific | AM2618 | |
| S. cerevisiae tRNA | Sigma Aldrich | R8759 | |
| SSC (20X), bez RNaz | Fisher Scientific | AM9763 | |
| Triton-X 100 | Life Technologies | A16046.AE | |
| UltaPure 1M Tris-HCl Buffer, pH 7,5 | ThermoFisher Scientific | 15567027 | Można użyć |
| dowolnego porównywalnego produktuUltraPure DNazo/RNaz Technologie życia w wodzie destylowanej | 10977023 | ||
| kompleks rybonukleozydów wanadylu | Nośniki | montażowe NEB S1402S | |
| VECTASHIELD z DAPI | Vector Laboratories | H-1200-10 | |
| Szkiełko mikroskopowe VWR Superfrost | VWR | 48311-601 | |
| y[1]w[1] linia Drosophila melanogaster | Bloomington Drosophila Stock Center | 1495 | |
| Mikroskop konfokalny Zeiss LSM 980 | Mikroskopia | Można użyć dowolnego mikroskopu konfokalnego z kompatybilną emisją i detekcją | |
| Mikroskop stereoskopowy Zeiss Stemi 2000-C i mikroskop źródła światła | 455053 | centralny | Można użyć dowolnego steromikroskopu |
Bibliografia
- Baßler, J., Hurt, E. Eurokaryotic ribosome assembly. Ann Rev Biochem. 88 (1), 1-26 (2018).
- Hall, A. N., Morton, E., Queitsch, C. First discovered, long out of sight, finally visible: ribosomal DNA. Trend Genet. 38 (6), 587-597 (2022).
- Srivastava, R., Srivastava, R., Ahn, S. H. The epigenetic pathways to ribosomal DNA silencing. Microbiol Mol Biol Rev. 80 (3), 545-563 (2016).
- Kuo, B. A., Gonzalez, I. L., Gillespie, D. A., Sylvester, J. E. Human ribosomal RNA variants from a single individual and their expression in different tissues. Nucl Acid Res. 24 (23), 4817-4824 (1996).
- Tseng, H., et al. Mouse ribosomal RNA genes contain multiple differentially regulated variants. PLoS ONE. 3 (3), e1843(2008).
- Locati, M. D., et al. Expression of distinct maternal and somatic 5.8S, 18S, and 28S rRNA types during zebrafish development. RNA. 23 (8), 1188-1199 (2017).
- Roussel, P., André, C., Comai, L., Hernandez-Verdun, D. The rDNA transcription machinery is assembled during mitosis in active NORs and absent in inactive NORs. J Cell Biol. 133 (2), 235-246 (1996).
- Pontes, O., et al. Postembryonic establishment of megabase-scale gene silencing in nucleolar dominance. PLoS ONE. 2 (11), e1157(2007).
- Earley, K. W., et al. Mechanisms of HDA6-mediated rRNA gene silencing: suppression of intergenic Pol II transcription and differential effects on maintenance versus siRNA-directed cytosine methylation. Gene Dev. 24 (11), 1119-1132 (2010).
- Greil, F., Ahmad, K. Nucleolar dominance of the Y chromosome in Drosophila melanogaster. Genetics. 191 (4), 1119-1128 (2012).
- Preuss, S., Pikaard, C. S. rRNA gene silencing and nucleolar dominance: Insights into a chromosome-scale epigenetic on/off switch. Biochim Biophys Acta. 1769 (5-6), 383-392 (2007).
- Sharifi, S., Bierhoff, H. Regulation of RNA pPolymerase I transcription in development, disease, and aging. Ann Rev Biochem. 87 (1), 1-23 (2018).
- Lu, K. L., Nelson, J. O., Watase, G. J., Warsinger-Pepe, N., Yamashita, Y. M. Transgenerational dynamics of rDNA copy number in Drosophila male germline stem cells. eLife. 7, e32421(2018).
- Nurk, S., et al. The complete sequence of a human genome. Science. 376 (6588), 44-53 (2022).
- Ritossa, F. M. Unstable redundancy of genes for ribosomal RNA. Proc Natl Acad Sci. 60 (2), 509-516 (1968).
- Nelson, J. O., Slicko, A., Yamashita, Y. M. The retrotransposon R2 maintains Drosophila ribosomal DNA repeats. Proc Natl Acad Sci. 120 (23), e2221613120(2023).
- Warsinger-Pepe, N., Li, D., Yamashita, Y. M. Regulation of nucleolar dominance in Drosophila melanogaster. Genetics. 214 (4), (2020).
- Levesque, M. J., Ginart, P., Wei, Y., Raj, A. Visualizing SNVs to quantify allele-specific expression in single cells. Nat Meth. 10 (9), 865-867 (2013).
- Davis, M. W., Jorgensen, E. M. ApE, a plasmid editor: A freely available DNA manipulation and visualization program. Front Bioinfo. 2, 818619(2022).
- Qazi, M. C. B., Heifetz, Y., Wolfner, M. F. The developments between gametogenesis and fertilization: ovulation and female sperm storage in Drosophila melanogaster. Dev Biol. 256 (2), 195-211 (2003).
- Rogers, M. J., et al. Structural features of the large subunit rRNA expressed in Plasmodium falciparum sporozoites that distinguish it from the asexually expressed subunit rRNA. RNA. 2 (2), 134-145 (1996).
- Potapova, T., et al. Epigenetic control and inheritance of rDNA arrays. bioRxiv. , (2024).
- Tang, Y. Z., Gin, K. Y. H., Lim, T. H. High-temperature fluorescent in situ hybridization for detecting Escherichia coli in seawater samples, using rRNA-targeted oligonucleotide probes and flow cytometry. Appl Environ Microbiol. 71 (12), 8157-8164 (2005).
Przedruki i uprawnienia
