Tutaj przedstawiamy protokół ustanawiający mysi model reumatoidalnego zapalenia stawów (RA) poprzez adoptywny transfer limfocytów T CD4+ od myszy SKG, dostarczając szybkiego i niezawodnego narzędzia eksperymentalnego do badania mechanizmów immunologicznych, patologicznego postępu i rozwoju nowych metod leczenia RZS.
Artykuł metodologiczny
Adoptywny model transferowy reumatoidalnego zapalenia stawów u myszy
W tym artykule
Podsumowanie
Streszczenie
Reumatoidalne zapalenie stawów (RZS) jest przewlekłą, ogólnoustrojową autoimmunologiczną chorobą zapalną, która może prowadzić do uszkodzenia stawów, deformacji, niepełnosprawności, a nawet śmierci. Ze względu na złożoną etiologię i niejednorodny obraz kliniczny, obecne strategie leczenia pozostają niewystarczające do skutecznego kontrolowania postępu choroby, w szczególności do wczesnego diagnozowania i zapewniania spersonalizowanych terapii. Dlatego tak ważne jest opracowanie nowatorskich podejść terapeutycznych. Aby to osiągnąć, niezbędne są wiarygodne modele zwierzęce do badania patogenezy RZS. Obecnie stosuje się kilka zwierzęcych modeli RZS, w tym model zapalenia stawów wywołanego kolagenem (CIA), model K/BxN i mysz SKG. Chociaż modele te mogą z powodzeniem naśladować mechanizmy immunologiczne i objawy kliniczne RZS, każdy z nich ma znaczące ograniczenia.
W tym protokole opisujemy proces tworzenia modelu myszy RA poprzez adoptywny transfer limfocytów T CD4+ od myszy SKG. W porównaniu z konwencjonalnymi modelami, model ten oferuje krótszy czas założenia i wyższą częstość występowania (100%) u myszy C57BL/6. Jest stosunkowo opłacalny, obejmuje proste procedury i niezawodnie replikuje odpowiedzi immunologiczne za pośrednictwem limfocytów T, zapewniając doskonałą kontrolę eksperymentalną i odtwarzalność. Przeprowadziliśmy kompleksową ocenę modelu, oceniając fenotyp kliniczny, taki jak objawy stawowe. Poprzez kliniczną ocenę fenotypu zaobserwowaliśmy znaczny obrzęk stawów i reakcje zapalne. Dodatkowo, wykorzystując technologię PCR do pomiaru poziomów ekspresji kluczowych czynników transkrypcyjnych, stwierdziliśmy, że model ten skutecznie symuluje odpowiedzi immunologiczne za pośrednictwem limfocytów T i kluczowe patologiczne cechy RZS. Dzięki temu modelowi naukowcy mogą lepiej symulować odpowiedź immunologiczną za pośrednictwem limfocytów T i kluczowe patologiczne cechy RZS, zapewniając w ten sposób wiarygodne i skuteczne narzędzie eksperymentalne do badania mechanizmów immunologicznych i patologicznej progresji oraz opracowywania nowych terapii RZS.
Wprowadzenie
RA jest przewlekłą, ogólnoustrojową autoimmunologiczną chorobą zapalną, która dotyka około 1% światowej populacji, powodując wysoką zachorowalność i duże obciążenie społeczno-ekonomiczne1,2. Choroba charakteryzuje się uporczywym zapaleniem błony maziowej, niszczeniem chrząstki i erozją kości, co ostatecznie prowadzi do deformacji stawów, niepełnosprawności, a w ciężkich przypadkach do przedwczesnej śmierci3,4,5. Patogeneza RZS obejmuje wzajemne oddziaływanie czynników genetycznych, środowiskowych i immunologicznych, z kluczowymi cechami, takimi jak nieprawidłowa aktywacja odporności komórkowej, nadmierne uwalnianie cytokin prozapalnych i zakłócenie tolerancji immunologicznej6,7. W tym procesie autoreaktywne limfocyty T, w szczególności limfocyty T CD4 +, jako kluczowe czynniki regulacji immunologicznej, bezpośrednio promują patologiczny postęp RZS poprzez wiele mechanizmów.
T komórki pomocnicze (Th)1 wytwarzają interferon-gamma (IFN-γ), który aktywuje makrofagi i fibroblasty maziowe, powodując uwolnienie czynnika martwicy nowotworu (TNF)-α i interleukiny (IL)-6 i powodując zapalenie błony maziowej. Komórki Th17 wydzielają IL-17, która wspomaga aktywację komórek maziowych i osteoklastów, nasilając niszczenie chrząstki i erozję kości8,9. Dodatkowo, limfocyty T CD4 + wzmacniają reakcje zapalne poprzez aktywację komórek B poprzez sygnały kostymulujące, indukując produkcję przeciwciał przeciwko cytrulinowanym białkom (ACPA) i czynnikom reumatoidalnym (RF)10. Tymczasem defekty w funkcji i zmniejszenie liczby komórek Treg są kluczowymi przyczynami braku równowagi immunologicznej w RZS, prowadzącym do niekontrolowanego stanu zapalnego11,12. Ze względu na złożoną etiologię i niejednorodny obraz kliniczny wczesna diagnoza jest trudna, a obecne leczenie RZS jest niezadowalające. W związku z tym kluczowe znaczenie ma opracowanie nowatorskich podejść terapeutycznych. Wiarygodne modele zwierzęce mają kluczowe znaczenie dla badania patogenezy RZS w celu lepszego zrozumienia potencjalnych mechanizmów RZS i zbadania nowych strategii leczenia.
Tradycyjne modele RA, takie jak modele myszy CIA i K/BxN13,14,15, przyczyniają się do lepszego zrozumienia RA. Modele te wykazują jednak znaczne ograniczenia. Na przykład model CIA w myszach C57BL/6 ma niski wskaźnik sukcesu i długi okres indukcji, co zmniejsza jego użyteczność w niektórych warunkach eksperymentalnych. Podobnie, chociaż model K/BxN jest cenny, jego ustalenie jest kosztowne i ma ograniczenia w replikowaniu złożonej patologii ludzkiego RZS, w szczególności interakcji między komórkami odpornościowymi a cytokinami.
Aby rozwiązać te ograniczenia, opracowaliśmy nowy model myszy RA, przenosząc limfocyty T CD4+ z myszy SKG z tłem C57BL/6 do immunokompetentnych myszy C57BL/6, w połączeniu z aktywacją immunologiczną wywołaną przez mannan. Model ten skutecznie replikuje kluczowe cechy RZS, w tym odpowiedzi immunologiczne za pośrednictwem limfocytów T i podstawowe cechy patologiczne, takie jak zapalenie błony maziowej i erozja stawów, oferując jednocześnie korzyści w zakresie odtwarzalności, prostoty i opłacalności. Nakreśliliśmy szczegółową metodologię ustanawiania tego modelu, która obejmuje generowanie myszy SKG na tle C57BL / 6, izolację limfocytów T CD4 + od myszy SKG, ich adoptywny transfer, a następnie indukcję przez mannan. Dodatkowo opisujemy kryteria kliniczne i histologiczne stosowane do oceny ciężkości zapalenia stawów, zapewniając jego wiarygodność i odtwarzalność. Poprzez konsekwentne naśladowanie odpowiedzi immunologicznej za pośrednictwem limfocytów T i podstawowych patologicznych cech RZS, model ten służy jako solidne i wydajne narzędzie eksperymentalne do badania mechanizmów immunologicznych, progresji choroby i opracowywania nowych terapii RZS.
Protokół
Wszystkie procedury eksperymentalne w tym badaniu ściśle przestrzegały wytycznych zawartych w "National Institutes of Health Guide for the Care and Use of Laboratory Animals", w tym hodowla zwierząt, operacje eksperymentalne i eutanazja, i zostały zatwierdzone przez Komitet Etyki Zwierząt Tongji Medical College, Huazhong University of Science and Technology.
1. Zwierzęta
- Generacja myszy SKG (tło C57BL/6)
- Strategia edycji genów
- Zaprojektuj specyficzny przewodnik RNA (gRNA) ukierunkowany na gen ZAP70 (sekwencja gRNA: 5'-CAGCCCACGAGCGAATGCCCTGG-3') i przeprowadź edycję genów za pomocą systemu CRISPR/Cas9. Zaprojektuj DNA dawcy z mutacją ZAP70 (W163C), aby zapewnić precyzyjną inkorporację mutacji (tutaj CAGGCCCCACAGGTGGAGAAGCTCATTG
CTACCACAGCCACGAGCGAATGCCCTG
CTATCACAGCAGCCTGACTCGTGAGGAG
GCCGAGCGCAAACTCTTATTCCGGCCA).
UWAGA: gRNA kieruje białko Cas9 do określonego miejsca genu ZAP70 w celu precyzyjnego cięcia. Podkreślona zasada w sekwencji DNA dawcy wskazuje na zmutowane zasady. Mutacja ta odpowiada mutacji W163C (TGG→TGC) w białku ZAP70, które znajduje się w krytycznej domenie funkcjonalnej.
- Zaprojektuj specyficzny przewodnik RNA (gRNA) ukierunkowany na gen ZAP70 (sekwencja gRNA: 5'-CAGCCCACGAGCGAATGCCCTGG-3') i przeprowadź edycję genów za pomocą systemu CRISPR/Cas9. Zaprojektuj DNA dawcy z mutacją ZAP70 (W163C), aby zapewnić precyzyjną inkorporację mutacji (tutaj CAGGCCCCACAGGTGGAGAAGCTCATTG
- Iniekcja mikrostrzykawki
- Użyj mikroiniekcji, aby wprowadzić mRNA, gRNA i DNA dawcy Cas9 do zapłodnionych jaj myszy C57BL / 6. Współwstrzyknij białko Cas9 i gRNA, aby rozszczepiły gen ZAP70 i wstawiły mutację ZAP70 (W163C) poprzez rekombinację homologiczną. Przeszczep wstrzyknięte zapłodnione jaja do pseudociężarnych samic myszy, odczekaj około 20 dni i oznacz urodzone myszy jako pokolenie F0. Zidentyfikuj genotypy poprzez amplifikację PCR i sekwencjonowanie (patrz krok 1.1.5.3).
- Genotypowanie myszy generacji F0
- Wykonaj PCR i sekwencjonowanie na myszach generacji F0, aby potwierdzić nabycie mutacji ZAP70 (W163C) (patrz krok 1.1.5.3).
UWAGA: Myszy z pokolenia F0 są chimeryczne ze względu na szybkie rozszczepienie zarodka. Mogą nie mieć stabilnej transmisji genetycznej. Zaimplementuj hodowlę seryjną, aby ustanowić stabilne linie.
- Wykonaj PCR i sekwencjonowanie na myszach generacji F0, aby potwierdzić nabycie mutacji ZAP70 (W163C) (patrz krok 1.1.5.3).
- Akwizycja i identyfikacja genotypowa myszy generacji F1
- Hoduj myszy F0 dodatnie z myszami C57BL / 6J typu dzikiego, aby uzyskać myszy generacji F1, i przeprowadź genotypowanie za pomocą PCR i sekwencjonowania, aby uzyskać myszy SKG (tło C57BL / 6; patrz krok 1.1.5.4).
- Metody genotypowania oparte na PCR dla pokoleń F0 i F1
- Odetnij 0,5 cm kawałek od ogona sterylnymi nożyczkami.
- Ekstrakcja DNA myszy za pomocą zestawu do ekstrakcji genomowego DNA zwierzęcego.
- Dla F0 należy przygotować następujący układ reakcyjny PCR: 13,2 μL ddH2O, 2 μL buforu PCR, 2 μL 2,5 mM dNTP, po 0,5 μL każdego ze starterów do przodu (5'-GATGCCTAGGTGGGGGGGGGG-3') i do tyłu (5'-ACTTGCCTACGCTACTGCTCTACA-3') (10 pmol/μL), 0,8 μL polimerazy DNA, i 1 μl genomowego DNA (50–100 ng/μl) wyekstrahowanego z ogonów myszy, dla końcowej objętości reakcji 20 μl. Przeprowadzić amplifikację genu przy użyciu następującego programu PCR: 94 °C przez 3 min; 98 °C przez 15 s, 58 °C przez 15 s i 68 °C przez 1 minutę przez 35 cykli; 68 °C przez 5 min; przechowywać w temperaturze 12 °C.
- Dla F1 przygotować następujący układ reakcyjny PCR: 14,9 μLddH2O, 2 μL 10x buforu Taq PCR, 1 μL 2,5 mM dNTP, 0,5 μL każdego z pierwszych (5'-GATGCCTAGGTGGGGGGGGTTCC-3') i odwrotnych (5'-ACTTGCCTACGCTACTGCTCTACA-3') starterów (10 pmol/μL), 0,1 μL polimerazy DNA Taq, i 1 μl genomowego DNA (50–100 ng/μl) wyekstrahowanego z ogonów myszy, dla końcowej objętości reakcji 20 μl. Przeprowadzić amplifikację genu przy użyciu następującego programu PCR: 94 °C przez 5 min; 94 °C przez 30 s, 58 °C przez 30 s, 72 °C przez 1 min, powtarzane przez 35 cykli; 72 °C przez 5 min; przechowywać w temperaturze 12 °C.
- Uruchom elektroforezę, aby potwierdzić produkty o oczekiwanej wielkości.
- Sekwencjonuj produkty PCR, aby zweryfikować zarówno genotyp, jak i specyficzną mutację.
- Strategia edycji genów
- Wybór myszy dawcy i biorcy
- Wybierz myszy SKG w wieku 6-8 tygodni (samiec lub samica) jako myszy dawcy.
- Wybierz myszy C57BL/6 w wieku 6-8 tygodni (najlepiej samicę w celu uzyskania spójnych wyników eksperymentalnych) jako myszy biorców.
- Trzymanie myszy C57BL/6 i SKG (w wieku 6-8 tygodni) w warunkach SPF w indywidualnie wentylowanych klatkach. Zapewnij swobodny dostęp do paszy z filtrem SPF i sterylnej wody w 12-godzinnym cyklu światła/ciemności. Aklimatyzuj myszy przez 1 tydzień przed rozpoczęciem eksperymentów.
2. Izolacja i oczyszczanie limfocytów T CD4+ od myszy SKG
- Poddaj myszy SKG eutanazji pod sterylnym okapem z przepływem laminarnym za pomocą uduszenia CO2 . Zanurz myszy w 75% alkoholu na 5 minut w celu dezynfekcji. Zlokalizuj śledzionę w jamie brzusznej, a także węzły chłonne (pachwinowe i podkolanowe) w okolicy pachwinowej i podkolanowej. Ostrożnie wypreparuj śledzionę i węzły chłonne za pomocą sterylnych kleszczy i nożyczek i natychmiast przenieś je do wstępnie schłodzonego PBS.
- Umieść śledzionę i węzły chłonne na osobnych szalkach Petriego. Przeciśnij tkanki przez sitko o wielkości 70 μm za pomocą tłoka sterylnej strzykawki i stopniowo dodawaj 10-12 ml wstępnie schłodzonego PBS, aby uzyskać jednolitą zawiesinę komórek. Przepuścić zawiesinę komórkową przez to samo sitko o wielkości 70 μm do probówki wirówkowej o pojemności 15 ml, a następnie odwirować przy 300 × g przez 7 minut w temperaturze 4 °C. Odrzucić supernatant i zachować osad komórkowy.
- Wykonaj barwienie błękitem trypanowym, aby ocenić żywotność komórek. Policz komórki i potwierdź, że żywotność wynosi ≥90%.
- Dostosuj stężenie komórek do 1 × 10⁸ komórek/ml za pomocą buforu dostarczonego w zestawie do izolacji limfocytów T CD4 +.
- Przenieść 100 μl zawiesiny komórek (10,7 komórek) do nowej probówki. Dodać 10 μl koktajlu biotyny-przeciwciała, dokładnie wymieszać i inkubować na lodzie przez 15 minut.
- Zawieś ponownie koraliki, wirując z maksymalną prędkością. Dodać 10 μl zawiesiny kulek streptawidyny, dobrze wymieszać i inkubować na lodzie przez 15 minut.
- Dodaj 2,5 ml buforu znajdującego się w zestawie do izolacji limfocytów T CD4+ i umieść probówkę w magnesie na 5 minut.
- Ostrożnie przelać płyn (komórki docelowe) z probówki do nowej sterylnej probówki, a następnie odwirować w temperaturze 4 °C, 300 × g przez 5 minut. Odrzucić supernatant i zachować osad komórek.
- Dodać wystarczającą ilość sterylnego roztworu PBS, aby dostosować stężenie komórek do 2 × 10⁶ komórek/ml i przechowywać zawiesinę na lodzie do późniejszego użycia.
- Użyj cytometrii przepływowej, aby ocenić czystość posortowanych komórek (rysunek uzupełniający S1). Oblicz czystość komórek jako: (Liczba limfocytów T CD4 + / Całkowita liczba komórek) × 100%. Upewnij się, że czystość wynosi ≥90%16.
3. Adoptywny transfer limfocytów T CD4+
- Znieczulenie myszy C57BL/6 za pomocą 2%-3% izofluranu, osiągając głębokość znieczulenia, w której myszy tracą wszelką mobilność, ale zachowują normalny spontaniczny oddech.
- Delikatnie wyczyść wewnętrzną kantę (kącik oka) myszy sterylnym wacikiem, aby usunąć wydzieliny i włosy, odsłaniając żyłę.
- Unieruchom mysz ręcznie. Pobrać 200 μl zawiesiny limfocytów T CD4+ (2 × 10⁵-5 × 10⁵ komórek na mysz) do strzykawki o pojemności 1 ml. Wbij igłę pod kątem 10-15° do zatoki zaoczodołowej (potwierdzono, że jest równie wydajna, bardziej jednorodna i mniej stresująca w porównaniu z iniekcją do żyły ogonowej), zapewniając dokładne umieszczenie. Zawiesinę komórkową należy wstrzykiwać powoli i równomiernie przez 10-15 sekund.
- Po wyjęciu igły delikatnie uciskaj obszar zatoki zaoczodołowej sterylnym wacikiem przez 3-5 sekund, aby zapobiec krwawieniu.
- Umieść mysz w cichej, suchej i czystej klatce w celu monitorowania, aż w pełni odzyska przytomność, ze stabilnym oddechem i bez nietypowych zachowań (takich jak drgawki lub nagła śmierć). Przenieś mysz do standardowej klatki w obudowie po potwierdzeniu stabilnego stanu pooperacyjnego.
UWAGA: Ponieważ zatoka żylna zaoczodołowa jest mała, delikatne obchodzenie się z nią i kontrolowana prędkość infuzji mają kluczowe znaczenie dla uniknięcia pęknięcia żyły lub zablokowania komórek spowodowanego nadmierną prędkością. - Zapisz szczegóły infuzji i oznacz myszy z grupy modelowej i kontrolnej (po cztery zwierzęta w grupie), aby zapobiec pomyłkom w kolejnych eksperymentach. Podawaj limfocyty T CD4 + do modelowania myszy i pozostaw myszy kontrolne nieleczone. Upewnij się, że wszystkie myszy są myszami biorców.
4. Stymulacja i indukcja mannanu
- Wykonaj indukcję mannanu w 4 dniu (72 godziny po infuzji limfocytów T CD4 +). Zastosuj te same warunki indukcji do wszystkich myszy eksperymentalnych i kontrolnych.
- Zważyć mannan w proszku i rozpuścić go w sterylnym PBS do stężenia 100 mg/ml. Wysterylizuj roztwór przez filtrację przez sterylny filtr strzykawkowy 0,22 μm.
- Przytrzymaj mysz prawidłowo, aby odsłonić jej brzuch. Zdezynfekować skórę jodoforem i zidentyfikować miejsce wstrzyknięcia (~1 cm z boku linii środkowej brzucha).
- Dokładnie wymieszaj roztwór mannanu i nabierz odpowiednią objętość (20-30 mg na mysz) do strzykawki o pojemności 1 ml. Wprowadzić igłę pod kątem 45° do jamy otrzewnej i powoli wstrzykiwać roztwór, aby zapewnić równomierne rozprowadzenie. Powoli wyjmować igłę i delikatnie uciskać miejsce wstrzyknięcia sterylnym wacikiem przez kilka sekund, aby zapobiec wyciekowi lub zakażeniu.
- Umieść mysz, której wstrzyknięto śluzę, w cichej i czystej klatce i uważnie monitoruj przez 5-10 minut, aby upewnić się, że nie ma wycieku w miejscu wstrzyknięcia, wzdęcia brzucha lub nieprawidłowego oddychania.
- Zapisz szczegółowo szczegóły wstrzyknięcia dla każdej myszy.
5. Pomiary
- Obserwacja fenotypu klinicznego
- Ocena objawów zapalenia stawów
- Wspólne oceny należy wykonywać co 3 dni po indukcji mannanu. Sprawdź wszystkie stawy kończyn przednich i tylnych, zwracając szczególną uwagę na stawy kolanowe, skokowe, nadgarstkowe i palcowe/palce. Oceń nasilenie zapalenia stawów przy użyciu standardowych kryteriów (Tabela 1)17. Zapisz i porównaj całkowite wyniki w każdym punkcie czasowym, aby ocenić postęp zapalenia stawów.
- Ocena objawów zapalenia stawów
- Rejestrowanie cech patologicznych tkanek
- Po miesiącu indukcji mannanu poddaj myszy eutanazji pod sterylnym kapturem z przepływem laminarnym za pomocą uduszenia CO2 (zgodnie z wytycznymi komisji etycznej), zabezpiecz mysz na płycie piankowej i odsłoń tylne kończyny. Naciąć skórę zaczynając od kostki i peelować w górę, aby odsłonić mięśnie i stawy. Zidentyfikuj staw skokowy (między piszczelem/strzałkowym a strzałkowym) i stawy śródstopno-paliczkowe (między śródstopiem a bliższymi paliczkami) i wypreparuj te stawy do analizy histologicznej i przygotuj skrawki parafinowe.
- Utrwal wycięte tkanki w 4% formalinie przez 72 godziny, a następnie przenieś je do 10% kwasu etylenodiaminotetraoctowego (EDTA, pH 7,4) na 4 tygodnie odwapnienia, aby zapewnić całkowite odwapnienie.
- Po odwapnieniu umyj tkanki PBS, aby usunąć wszelkie pozostałości utrwalacza, a następnie odwodnić tkanki za pomocą serii stopniowanych etanoli (75%, 80%, 95%, 100%).
UWAGA: Formalina może podrażniać oczy, skórę i drogi oddechowe. Należy go obsługiwać w dygestorium. - Zanurz tkankę w parafinie za pomocą maszyny do zatapiania parafiny. Za pomocą mikrotomu pokrój osadzoną tkankę na plastry o grubości 4 μm. Zanurzyć sekcje w łaźni wodnej o temperaturze 40 °C zawierającej wodę destylowaną.
- Przenieś i wysusz sekcje. Umieść sekcje na szkiełkach podstawowych. Suszyć je przez noc w temperaturze pokojowej (RT). Przechowuj szkiełka w RT w celu zabrudzenia.
- Barwienie hematoksyliną i eozyną (H&E)
- Umieść szkiełka w piekarniku o temperaturze 60 °C na 2 godziny, aby usunąć parafinę.
- W temperaturze pokojowej zanurz szkiełka w następującej kolejności na 5 minut każda: ksylen → ksylen → 100% etanolu → 100% etanolu → 95% etanolu → 80% etanolu → 75% etanolu. Płukać w wodzie destylowanej przez 2 min.
- Szkiełka barwić sekwencyjnie w roztworze hematoksyliny przez 5 min, płukać w wodzie dejonizowanej przez 2 min, następnie traktować 0,1% amoniakiem przez 1 min, płukać przez 3 x 2 min w wodzie dejonizowanej, barwić eozyną przez 1 min, a na koniec płukać w wodzie dejonizowanej przez 2 min.
- Zanurz szkiełka na 5 minut każda w 80% etanolu → 95% etanolu → 100% etanolu → ksylenie → ksylenie.
- Prowadnice należy wysuszyć na powietrzu w naturalny sposób i zamontować za pomocą neutralnej żywicy.
- Barwienie Safranin O-Fast Green
- Odparafinować skrawki parafiny do wody i zabarwić je za pomocą zestawu do barwienia Van Giesona. Po zabarwieniu zamontuj szkiełka za pomocą neutralnej żywicy i uchwyć obrazy pod mikroskopem (przygotowanym w kroku 5.2.5).
- Zmiany w limfocytach T i cytokinach
- Usuń śledzionę z myszy za pomocą sterylnych narzędzi chirurgicznych.
- Ekstrahuj całkowite RNA z tkanki śledziony za pomocą zestawu do ekstrakcji RNA zgodnie z instrukcjami producenta. Określ ilościowo stężenie i czystość RNA za pomocą spektrofotometru i upewnij się, że stosunek A260/A280 wynosi od 1,8 do 2,0.
- Zsyntetyzuj cDNA z wyekstrahowanego RNA za pomocą zestawu do odwrotnej transkrypcji. Postępuj zgodnie z protokołem producenta dotyczącym konfiguracji reakcji i warunków cyklu. Przechowywać cDNA w temperaturze -20 °C do późniejszej analizy qPCR.
- Wykonaj qPCR: Zmierz względne poziomy ekspresji mRNA Tbx21, Gata3, Il-17 i Foxp3 w tkance śledziony mierzono za pomocą SYBR Green qPCR w 10 μl reakcjach zawierających: 5 μL 2x SYBR Green master mix, po 0,2 μL starterów do przodu i do tyłu (10 μM; sekwencje w tabeli 2), 0,5-1 μL cDNA (50-100 ng/μL) i woda wolna od nukleaz do objętości. Stosować następujące warunki cykli termicznych: początkowa denaturacja w temperaturze 95 °C przez 30 s, a następnie 40 cykli w temperaturze 95 °C przez 10 s i 60 °C przez 30 s, z analizą krzywej topnienia (65–95 °C). Znormalizować poziomy ekspresji do Gapdh przy użyciu metody 2(-ΔΔCt).
- Izolacja surowicy i analiza cytometryczna matrycy perełkowej (CBA)
- Pobrać krew od myszy za pomocą oczodołowego pobierania krwi metodą enukleacji, przenieść krew do probówki zbiorczej pokrytej antykoagulantem i pozostawić w temperaturze pokojowej na 30 minut. Odwirować zakrzepłą krew w temperaturze 4 °C, 1000 × g przez 15 minut, ostrożnie zebrać supernatant (surowicę) i przechowywać go w temperaturze -80 °C do czasu analizy.
- Oznaczyć poziomy ekspresji IL-6, IL-10, IL-17, TNF-α i IFN-γ w surowicy za pomocą zestawu CBA zgodnie z instrukcjami producenta.
- Usuń śledzionę z myszy za pomocą sterylnych narzędzi chirurgicznych.
Wyniki
Ocena kliniczna obrzęku stawów i wskaźnik zapadalności u myszy
Rysunek 1 przedstawia oceny kliniczne obrzęku stawów oraz wskaźnik zapadalności u myszy modelowych. Wyniki wskazują, że wszystkie myszy w grupie modelowej rozwinęły chorobę (n = 4), przy wskaźniku zapadalności wynoszącym 100%. Wyniki punktowe w grupie modelowej znacząco wzrosły, wykazując krótkotrwałą poprawę w drugim tygodniu, a następnie ponownie rosły w okresie 6 tygodni.
Objawy obrzęku stawów u myszy
Stawy myszy w grupie modelowej wykazują znaczne pogrubienie i obrzęk, przy czym zauważalny obrzęk i pogrubienie stwierdzono również w kończynach przednich i tylnych (Rysunek 2).
Wyniki patologiczne stawów skokowych myszy
Wyniki patologiczne wskazują, że w porównaniu z grupą kontrolną, myszy z grupy modelowej wykazują znaczne pogrubienie błony maziowej w stawach skokowych, przerwy w ciągłości kości oraz wyraźną agregację komórek zapalnych (Rycina 3, Rycina 4 i Rycina 5).
Surowicze zapalne czynniki związane z limfocytami T
W porównaniu z grupą kontrolną, myszy w grupie modelowej wykazały istotne wzrosty poziomów surowiczych IL-10 (7,51 vs 2,15 pg/mL), TNF (78,83 vs 13,11 pg/mL), IL-17 (101,6 vs 12,64 pg/mL) oraz IFN-γ (5,15 vs 1,90 pg/mL) (p < 0,05). Poziom IL-6 również istotnie wzrósł w porównaniu z grupą kontrolną (15,59 vs 6,27 pg/mL) (p = 0,05, Rycina 6).
Zmiany w subpopulacjach limfocytów T Th1/2/17 oraz Treg w śledzionie
Poziomy ekspresji mRNA dla Tbx21 (Th1), Gata3 (Th2), Il-17 (Th17) oraz Foxp3 (Treg) zostały zmierzone w celu oceny zmian w subpopulacjach limfocytów T w śledzionie. Geny te kodują kluczowe czynniki transkrypcyjne i cytokiny, które określają różnicowanie i funkcję odpowiednich subpopulacji limfocytów T. W porównaniu z grupą kontrolną, myszy z grupy modelowej wykazały istotnie zwiększoną ekspresję mRNA Tbx21 (1,68 vs 0,61) oraz Il-17 (26,30 vs 0,75) w śledzionie (p < 0,05) w stosunku do genu referencyjnego Gapdh.
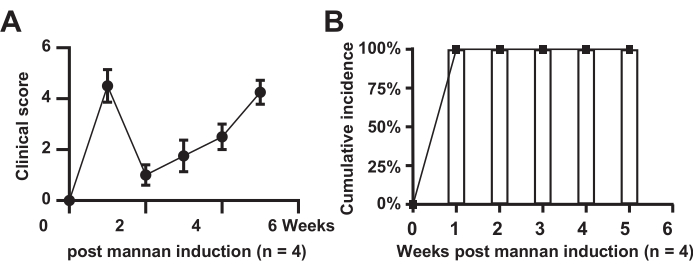
Rysunek 1: Ocena kliniczna obrzęku stawów. (A) Myszy z grupy modelowej; (B) Skumulowana zapadalność w grupie myszy modelowych. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
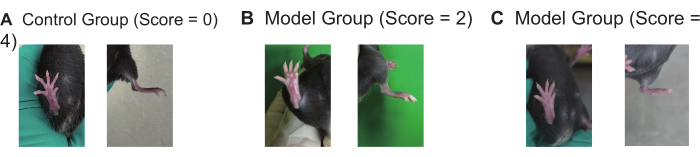
Rycina 2: Objawy obrzęku stawów u myszy z grupy kontrolnej i modelowej (n = 4). (A-C) Reprezentatywne obrazy oceny obrzęku łap i stawów (0, 2, 4) w kontrolnych i modelowych grupach myszy. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
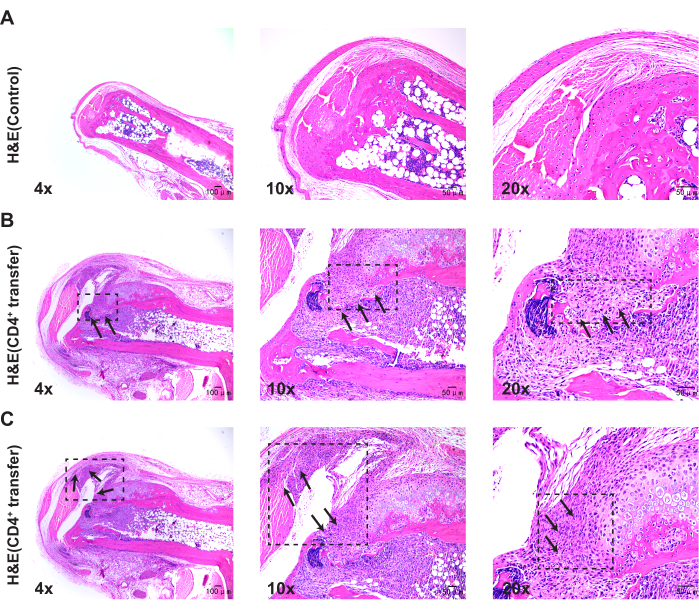
Rysunek 3: Zmiany histologiczne w stawach skokowych myszy grup kontrolnej i modelowej obserwowane przy użyciu barwienia hematoksyliną i eozyną. (A) Staw skokowy myszy kontrolnej; (B) Przerwa w ciągłości kości w stawie skokowym myszy z grupy modelowej; (C) Proliferacja błony maziowej w stawie skokowym myszy z grupy modelowej. Paski skali = 50 µm (pierwsza kolumna), 100 µm (druga i trzecia kolumna). Obrazy na Rys. 3B i 3C pochodzą od tej samej myszy, wykazując różne fenotypy patologiczne. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
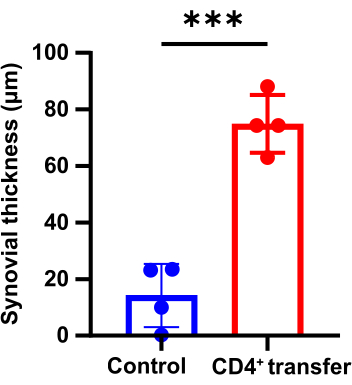
Rysunek 4: Różnice w grubości błony maziowej stawów skokowych między myszami z grupy kontrolnej a myszami z grupy modelowej (p < 0,05). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
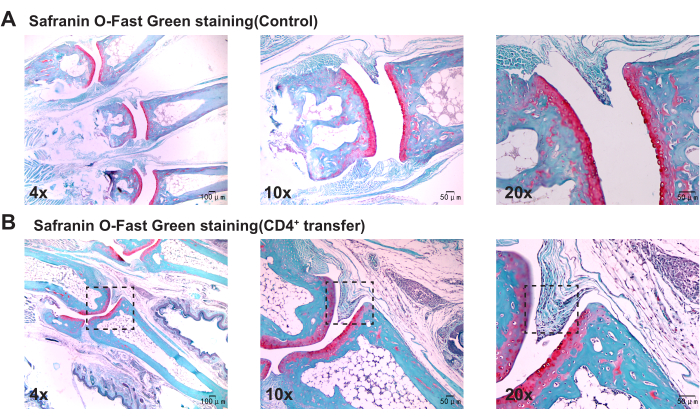
Rysunek 5: Zmiany histologiczne w stawach skokowych myszy z grupy kontrolnej i grupy modelowej obserwowane przy barwieniu Safraniną O i Fast Green. (A) Staw skokowy myszy z grupy kontrolnej; (B) Proliferacja błony maziowej w stawie skokowym myszy z grupy modelowej. Paski skali = 50 µm (pierwsza kolumna), 100 µm (druga i trzecia kolumna). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
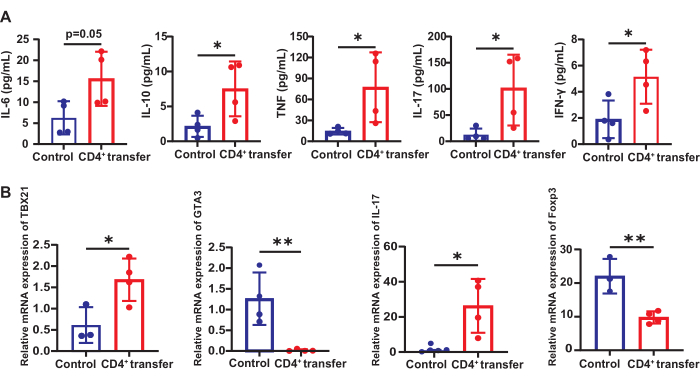
Rysunek 6: Zmiany czynników zapalnych związanych z limfocytami T i ich subpopulacjami u myszy z grupy kontrolnej i modelowej. (A) Ekspresja czynników zapalnych związanych z limfocytami T w surowicy myszy z grupy kontrolnej i modelowej oraz (B) zmiany w subpopulacjach limfocytów T Th1/2/17 i Tregs w śledzionie. *p < 0.05, **p < 0.01. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Wynik | Obrzęk (zakres 0-4) | Rumień (zakres 0-2) |
| 0 | Proszę podać tekst źródłowy do tłumaczenia. | Proszę podać tekst źródłowy do tłumaczenia. |
| 1 | Dowolna cyfra | lekki |
| 2 | Łapa | Ekstremalne |
| 3 | Nadgarstek/kostka | |
| 4 | Cała kończyna |
Tabela 1: Kryteria oceny stanu zapalnego stawów. W celu oceny zapalenia stawów każda kończyna jest oceniana pod kątem obrzęku i rumienia, przypisując każdej z nich wartość od 0 do 6. Wyniki dla wszystkich czterech kończyn są sumowane, aby uzyskać całkowity wskaźnik zapalenia stawów dla każdej myszy.
| Sekwencje starterów | |
| Nazwa oligonukleotydu | Sekwencja od 5' do 3' |
| Tbx21-Forward | AGCAAGGAGCGAATGTT |
| Tbx21-odwrotny | GGGTGGACATATAAGCGGTTC |
| Gata3-Forward | CTCGGCCATTCGTACATGGAA |
| Gata3-Reverse | GGATACCTCTGCACCGTAGC |
| Il-17a-Forward | TTTAACTCCCTTGGCGCAAAA |
| Il-17a-Reverse | CTTTCCCTCCGCATTGACAC |
| Foxp3-Forward | CCCTTGACCTCAAAACCAAG |
| Foxp3-odwrotna | GTGTGACTGCATGACTAACTTTGA |
| Gapdh-Forward | GGTTGTCTCCTGCGACTTCA |
| Gapdh-odwrócony | TGGTCCAGGGTTTCTTACTCC |
Tabela 2: Lista sekwencji starterów.
Rycina dodatkowa S1: Strategia bramkowania dla sortowania limfocytów T CD4+ metodą cytometrii przepływowej. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Rozwój RZS jest ściśle związany z nieprawidłowym naciekaniem komórek odpornościowych w tkance maziowej, gdzie rozregulowana aktywacja tych komórek odpornościowych prowadzi do uwalniania różnych cytokin prozapalnych, które dodatkowo przyczyniają się do uszkodzenia struktur maziowych i stawowych18,19. Kilka modeli zwierzęcych RA zostało szeroko ocenionych, w tym model CIA, model K/BxN i myszy SKG 13,20,21. Chociaż modele te z powodzeniem replikują mechanizmy immunologiczne i objawy kliniczne RZS, wszystkie mają istotne ograniczenia. Na przykład model CIA u myszy C57BL/6 ma niższy wskaźnik sukcesu, dłuższy okres początkowy i jest pod znacznym wpływem warunków środowiskowych i eksperymentalnych, co czyni go mniej praktycznym w niektórych warunkach eksperymentalnych. Myszy SKG reprezentują mysi model RZS oparty na mutacji genu ZAP-70, która powoduje nagłą anomalię w sygnalizacji receptora komórek T (TCR) i indukuje autoimmunologiczne zapalenie stawów22. Model ten jest jednak kosztowny, a warunki indukcji łatwo wpływają na odtwarzalność wyników eksperymentalnych. K/BxN jest dziedzicznym modelem zapalenia stawów wywołanym przez kooperacyjną aktywność komórek T i B, wykazującym wyraźną odpowiedź immunologiczną23. Jednak skonstruowanie tego modelu jest kosztowne, a jego specyficzność jest ograniczona, co prowadzi do ograniczonej odpowiedzi immunologicznej, która nie może w pełni uchwycić wieloaspektowego procesu patologicznego ludzkiego RZS. Dlatego tak ważne jest opracowanie modelu zwierzęcego, który będzie w stanie odtworzyć kluczowe cechy patologiczne RZS, spełni różne wymagania doświadczalne i zapewni wysoką odtwarzalność.
W tym badaniu przedstawiamy metodę ustalania modelu RA poprzez adoptywny transfer adaptacyjnych limfocytów T CD4 + od myszy SKG. Konstrukcja tego modelu opiera się na selekcji limfocytów T CD4 + od myszy SKG z tłem C57 / BL6 i indukcji mannanu, procesu, który zapewnia sukces modelu. Powszechnie wiadomo, że myszy SKG na tle BALB / c są nosicielami spontanicznej mutacji genu ZAP70 (W163C), która powoduje nieprawidłową selekcję sygnalizacji TCR, prowadząc do wysoce samoreaktywnych limfocytów T24. Powoduje to nadmierną aktywację limfocytów T oraz początek zapalenia błony maziowej i zniszczenia stawów, naśladując w ten sposób kluczowe procesy patologiczne RZS, takie jak naprawa błony maziowej i aktywacja komórek odpornościowych25,26. Cechy kliniczne myszy SKG są bardzo podobne do objawów u pacjentów z RZS.
Aby wprowadzić tę mutację do tła C57BL/6, zastosowaliśmy technologię CRISPR/Cas9, aby z powodzeniem wygenerować model myszy SKG z tłem C57BL/6 z mutacją ZAP70 (W163C). CRISPR/Cas9 oferuje wysoką precyzję i wydajność, umożliwiając celowe wprowadzenie pożądanej mutacji przy zachowaniu niskiego wskaźnika insercji poza celem lub niepożądanych modyfikacji genetycznych związanych z tradycyjnymi metodami indukcji losowej, zapewniając w ten sposób stabilność i unikalność modelu27,28. Co ważniejsze, technika ta znacznie skraca również czas potrzebny na budowę modelu, zwiększając zarówno sterowność, jak i wydajność opracowywania modelu. Korzystając z tego modelu, możemy precyzyjnie odtworzyć zapalenie błony maziowej za pośrednictwem limfocytów T i wspólne niszczenie RZS na tle C57BL / 6. W porównaniu z tłem BALB/C u tradycyjnych myszy SKG, myszy modelowe na tle C57BL / 6 mają szersze zastosowanie w badaniach immunologicznych i mogą być łatwiej łączone z innymi modelami transgenicznymi (np. Rag1-/- lub IL17-/-). To sprawia, że nadają się do badania roli mutacji ZAP70 w RZS i innych chorobach autoimmunologicznych, takich jak toczeń rumieniowaty układowy czy stwardnienie rozsiane.
Opierając się na kluczowej roli29,30 limfocytów T CD4+ w aktywacji RZS, wybraliśmy je jako kluczowe mediatory. Limfocyty T są głównymi czynnikami napędzającymi odpowiedź immunologiczną w RZS i mogą bezpośrednio indukować uszkodzenie błony maziowej poprzez aktywację podzbiorów efektorów Th1 / Th1731, w zależności od czynników zapalnych, takich jak IL-6, IL-17 i TNF-α 32,33. Jako kluczowe mediatory regulacji immunologicznej, limfocyty T CD4 + wydzielają cytokiny prozapalne, wyzwalając i utrzymując kaskadę zapalną, która prowadzi do proliferacji błony maziowej i uszkodzenia stawów, bezpośrednio sprzyjając w ten sposób patologicznemu postępowi RZS. Odgrywają one zasadniczą rolę we wspomaganiu limfocytów B w wytwarzaniu specyficznych przeciwciał (np. ACPA)34. Tymczasem typową cechą histopatologiczną błony maziowej RZS jest agregacja limfocytów T CD4+. Niektóre geny głównego kompleksu zgodności tkankowej (MHC) klasy II, zwłaszcza "wspólne epitopy" związane z izotypem ludzkiego antygenu leukocytarnego DR (HLA-DR), są uważane za ściśle związane z patogenezą RA35. Co więcej, strategia blokowania kostymulacji limfocytów T cytotoksycznym antygenem 4 (CTLA4)-Ig związanym z limfocytami T wykazała znaczącą skuteczność kliniczną w RZS36. Dodatkowo, indukcja mannan służy jako silny aktywator modelu, promując aktywację wrodzonych składników odpornościowych, takich jak komórki dendrytyczne i makrofagi37. Ten krok dodatkowo ułatwia aktywację limfocytów T CD4 + i odpowiedź immunologiczną, znacznie zwiększając atak układu odpornościowego na własne tkanki, symulując w ten sposób patologiczne cechy dysregulacji immunologicznej i uszkodzenia błony maziowej w RZS.
Po zakończeniu indukcji modelu przeprowadziliśmy systematyczną weryfikację grupy modelowej przy użyciu wielu parametrów, w tym klinicznej oceny obrzęku stawów, walidacji patologicznej (obserwowanie patologii tkanki maziowej i cech destrukcji stawów) oraz walidacji immunologicznej (ekspresja komórek Th1/2/17 i Treg w surowicy i śledzionie). Wyniki pokazały, że nasz model z powodzeniem replikował zapalenie błony maziowej za pośrednictwem limfocytów T i niszczenie stawów w RZS, indukując charakterystyczną aktywację immunologiczną i patologiczne zmiany błony maziowej zgodne z głównymi mechanizmami patofizjologicznymi RZS, ze 100% częstością występowania. Warto zauważyć, że w naszym modelu kliniczny wynik obrzęku stawów myszy osiąga szczyt po 1 tygodniu, wykazuje wyraźne zmniejszenie w drugim tygodniu, a następnie stopniowo ponownie rośnie w późniejszych stadiach, co nie jest całkowicie zgodne z typowym przebiegiem choroby obserwowanym w konwencjonalnych modelach zwierzęcych zapalenia stawów38. Może to być spowodowane tym, że po 1 tygodniu od indukcji układ odpornościowy u myszy modelowych znajduje się w intensywnie aktywowanej fazie początkowej przez wstrzyknięcie mannanu, co powoduje szczyt zapalenia stawów. W drugim tygodniu mechanizmy regulacji immunologicznej i samoregeneracji prowadzą do tymczasowego złagodzenia objawów klinicznych. W miarę postępu choroby tolerancja immunologiczna stopniowo zanika, a odpowiedź immunologiczna ponownie się nasila, co objawia się stopniowym pogarszaniem się stanu w późniejszych stadiach.
Chociaż ten model jest stosunkowo prosty w porównaniu z innymi modelami, nadal istnieje kilka kluczowych punktów, które należy poruszyć podczas procesu modelowania. Po pierwsze, aktywność i czystość limfocytów T CD4 + od myszy SKG stanowi podstawę sukcesu modelu. Czystość komórek powinna przekraczać 90%, aby zapewnić spójność i wiarygodność wyników eksperymentalnych. Po drugie, szybkość wstrzykiwania do żyły przyśrodkowej kantalowej powinna być dokładnie kontrolowana, aby uniknąć pęknięcia żyły w wyniku zbyt szybkiego wstrzyknięcia lub wycieku komórek w wyniku zbyt wolnego wstrzyknięcia. Ponadto kluczowe znaczenie ma dobór dawki komórek. Zbyt niska dawka może prowadzić do niewydolności modelu, podczas gdy zbyt wysoka dawka może wywołać nieswoiste reakcje zapalne. Dlatego podczas procesu modelowania ogólny stan myszy powinien być ściśle monitorowany, a wszelkie nietypowe objawy powinny być rejestrowane niezwłocznie, aby zapewnić płynny postęp eksperymentu i naukową wiarygodność danych.
W porównaniu z konwencjonalnymi modelami, model ten ma krótszy okres rozwoju, osiąga wyższy wskaźnik częstości występowania u myszy C57BL/6 i pozostaje stosunkowo opłacalny i łatwy w obsłudze. Przyjęcie transferu autoreaktywnych limfocytów T CD4 + dokładnie odtwarza odpowiedzi immunologiczne za pośrednictwem limfocytów T i wychwytuje kluczowe patologiczne cechy RZS, takie jak obrzęk i uszkodzenie stawów. Co więcej, jego objawy kliniczne są zgodne z objawami ludzkiego RZS, oferując bardziej autentyczne odzwierciedlenie klinicznych i patologicznych procesów RZS. Co więcej, połączenie infuzji z żyły kantalnej przyśrodkowej i indukcji mannanu dodatkowo poprawia sterowalność i stabilność eksperymentalną modelu, czyniąc go wysoce powtarzalnym i oferującym doskonałą kontrolę eksperymentalną. Oczywiście ten model ma jeszcze pewne ograniczenia. Koncentruje się głównie na odpowiedziach immunologicznych napędzanych przez limfocyty T; symulacja kolaboracyjnych ról odpowiedzi przeciwciał za pośrednictwem limfocytów B i innych komórek odpornościowych (takich jak komórki NK i komórki Treg) jest niewystarczająca, co utrudnia pełne przedstawienie wielokomórkowych mechanizmów patologicznych RZS. Niemniej jednak ten mysi model RZS pozostaje stabilnym i niezawodnym modelem zwierzęcym, zapewniając naukowcom lepszą platformę do symulacji odpowiedzi immunologicznych za pośrednictwem limfocytów T i głównych patologicznych cech RZS. Model ten pozwala naukowcom zagłębić się w mechanizmy immunologiczne i patologiczny postęp RZS, dostarczając ważnych dowodów eksperymentalnych i narzędzi do opracowywania nowych terapii, w szczególności w zrozumieniu dysregulacji immunologicznej sterowanej przez limfocyty T i identyfikacji celów terapeutycznych.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez granty z Narodowej Fundacji Nauk Przyrodniczych Chin (82270903, 82401588 i 81974254) oraz Chińskiej Fundacji Nauk Podoktoranckich (2024M751019).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agarose | Yeasen | 10208ES60 | Przygotowanie żelu agarozowego do stosowania w eksperymentach elektroforezy DNA |
| Bezwodny etanol | Shanghai HuShi Laboratory Instruments Co., Ltd. | 100009218 | Środek odwadniający i utrwalający |
| Startery ZAP 70 Startery | Tsingke | stosowane do wykrywania ekspresji genu ZAP70, powszechnie stosowane w eksperymentach PCR do genotypowania myszy | |
| 0,5 M roztworu EDTA (pH = 7,4) | Biosharp | R00521 | Stosowany do odwapniania w celu zapewnienia jakości skrawków tkanek i barwienia tkanek zawierających wapń, przy jednoczesnym zachowaniu integralności strukturalnej tkanki |
| 1,5 ml bezenzymatyczne probówki ep | LABSELECT | MCT-001-150-S | Używane do różnych eksperymentów, takich jak przechowywanie próbek, separacja odśrodkowa itp |
| 2x Q3 SYBR qPCR Master Mix (uniwersalny) | ToloBio | 22204 | Służy do przeprowadzania wysoce specyficznych i bardzo czułych reakcji qPCR. |
| 2x Magic Green Taq SuperMix | TOLOBIO | 21502-04 | Roztwór buforowy do elektroforezy wstępnej |
| 4% roztwór formaldehydu (paraformaldehydu) | Biosharp | BL539A | Stosowany jako utrwalacz w celu zachowania struktury tkanki i morfologii komórki, zapewniając stabilne i dobrze zachowane próbki do kolejnych etapów barwienia |
| Zestaw do izolacji całkowitego RNA tkanek zwierzęcych/komórek | Servicebio | MPC2409122 | Ekstrakcja całkowitego RNA z tkanek / komórek zwierzęcych |
| BD Cytometric Bead Array (CBA) Mysz Zestaw cytokin Th1 / Th2 / Th17 BD | Biosciences | 560485 | Zmierz ekspresję cytokin Th1/2/17 w surowicy myszy. |
| Naczynie do hodowli komórkowych | LABSELECT | 12211 | Pojemnik na płyn komórkowy ze śledziony i węzłów chłonnych |
| Dimetylobenzen | Chiny National Pharmaceutical Group Chemical Reagents Co., Ltd. | 10023418 | Stosowany jako środek deparafinowający i oczyszczający |
| Sześcioportowa komora do liczenia komórek Easyfive | CytoEasy | N3EF110 | Służy do liczenia komórek |
| Ulepszony roztwór barwiący Safranin O-Fast Green do barwienia chrząstek. | Solarbio | G1371 | Wybarwić tkanki chrzęstne i kostne, aby zaobserwować patologiczne zmiany w okolicy stawu. |
| Szkiełko | szklane CITOTEST | 188105 | Podstawowe wsparcie dla krojenia tkanek Roztwór |
| do barwienia hematoksyliną | Servicebio | G1005-1 | Dying |
| Roztwór do barwienia hematoksyliny | Servicebio | G1001 | Dying |
| Wolnoobrotowa wirówka z chłodzeniem | Cence | F14300021010004 | Służy do wirowania i wytrącania |
| Mannan | Sigma | m7504 | Aktywator do modelu. Rozpuścić w sterylnym PBS w stężeniu 2 mg/ml, dokładnie wymieszać i przefiltrować przez 0,22 μ m membrany w celu wyeliminowania wszelkich cząstek lub możliwych źródeł zanieczyszczenia. |
| MojoSort Magnet | Biolengend | 480019 | Służy do izolowania i oczyszczania limfocytów T CD4 + ze śledziony, węzłów chłonnych myszy |
| MojoSort Zestaw do izolacji komórek T CD4 Mysz | Biolengend | 480033 | Służy do izolowania i oczyszczania limfocytów T CD4 + ze śledziony, węzłów chłonnych myszy. Użyj metody selekcji negatywnej, która bezpośrednio wiąże się z cząsteczką CD4 w celu wyizolowania limfocytów T CD4 +, zachowując integralność antygenów powierzchniowych bez wpływu na funkcjonalność cząsteczki CD4, dzięki czemu nadaje się do eksperymentów infuzyjnych limfocytów T CD4 +. |
| Nano-300 | ALLSHENG | AS-11020-00 | Dokładne wykrywanie kwasów nukleinowych, białek i roztworów komórkowych |
| Neutralny środek do montażu żywicy | Biosharp | BL704A | Napraw i zakonserwuj poplamione skrawki tkanek |
| Mikrotom parafinowy | KEDEE | KD-3389 | Stosowany do skrawków parafiny |
| Sól fizjologiczna buforowana fosforanami (PBS) | Pricella | WHB824P281 | Stosowany jako bufor rozpuszczalnik lub środek czyszczący, |
| sterylny filtr komórkowy (70 &mikro; m) | Biosharp | BS-70-CS | Usuń duże zanieczyszczenia lub zagregowane skupiska komórek z zawiesiny komórek, aby zapewnić czystość próbki i jednorodność komórek |
| Sterylna strzykawka (1 ml) | Aparat medyczny Lingyang | 20241020 | Wstrzyknięcie do wewnętrznej żyły kantalowej |
| Stołowa wirówka z mikrochłodzeniem | SCILOGEX | S1010E | Służy do wirowania i wytrącania |
| Bufor do herbaty (50x) | Yeasen | 60116ES76 | Stabilizuje pH, pomaga chronić i zachować cząsteczki, takie jak DNA i RNA, stosowany w eksperymentach elektroforezy |
| ToloScript All-in-one RT EasyMix do qPCR | ToloBio | 22107 | Służy do przekształcania matryc RNA w cDNA, ułatwiając późniejszą analizę ekspresji genów, qPCR i inne eksperymenty biologii molekularnej. |
| Pipety Transefer | BIOFIL | 240515-133-A | Służy do przenoszenia roztworów |
| Roztwór niebieskiego barwnika trypanowego | Biosharp | 7009529 | Powszechnie stosowany do testów żywotności komórek, pomaga odróżnić żywe komórki od martwych |
Bibliografia
- Global, regional, and national burden of rheumatoid arthritis, 1990-2020, and projections to 2050: A systematic analysis of the global burden of disease study. Lancet Rheumatol. 5 (10), e594-e610 (2021).
- Radu, A. F., Bungau, S. G. Management of rheumatoid arthritis: An overview. Cells. 10 (11), 2857(2021).
- Di Matteo, A., Bathon, J. M., Emery, P. Rheumatoid arthritis. Lancet. 402 (10416), 2019-2033 (2023).
- Bernard, L., et al. Management of patients with rheumatoid arthritis by telemedicine: Connected monitoring. A randomized controlled trial. Joint Bone Spine. 89 (5), 105368(2022).
- Jang, S., Kwon, E. J., Lee, J. J. Rheumatoid arthritis: Pathogenic roles of diverse immune cells. Int J Mol Sci. 23 (2), 905(2022).
- Daikh, D. I. Rheumatoid arthritis: Evolving recognition of a common disease. Best Pract Res Clin Rheumatol. 36 (1), 101740(2022).
- Bhamidipati, K., Wei, K. Precision medicine in rheumatoid arthritis. Best Pract Res Clin Rheumatol. 36 (1), 101742(2022).
- Meyer, A., Parmar, P. J., Shahrara, S. Significance of IL-7 and IL-7R in RA and autoimmunity. Autoimmun Rev. 21 (7), 103120(2022).
- Yu, X., et al. Synergistic induction of CCL5, CXCL9 and CXCL10 by IFN-γ and NLRS ligands on human fibroblast-like synoviocytes-a potential immunopathological mechanism for joint inflammation in rheumatoid arthritis. Int Immunopharmacol. 82, 106356(2020).
- Wu, X., et al. Single-cell sequencing of immune cells from anticitrullinated peptide antibody positive and negative rheumatoid arthritis. Nat Commun. 12 (1), 4977(2021).
- Wei, X., Niu, X. T follicular helper cells in autoimmune diseases. J Autoimmun. 134, 102976(2023).
- Mcelwee, M. K., Dileepan, T., Mahmud, S. A., Jenkins, M. K. The CD4+ T cell repertoire specific for citrullinated peptides shows evidence of immune tolerance. J Exp Med. 220 (12), e20230209(2023).
- Ahmed, S., et al. Dual inhibition of glycolysis and glutaminolysis for synergistic therapy of rheumatoid arthritis. Arthritis Res Ther. 25 (1), 176(2023).
- Wu, J., et al. Tnf antagonist sensitizes synovial fibroblasts to ferroptotic cell death in collagen-induced arthritis mouse models. Nat Commun. 13 (1), 676(2022).
- Huo, F., Hou, J., Zhu, Y., Feng, Z. ferroptosis inducer ike ameliorate pulmonary fibrosis in collagen-induced arthritis (CIA) mice via decreasing the expression of IL-6, CCL5 and CXCL9. Xi Bao Yu Fen Zi Mian Yi Xue Za Zhi. 40 (2), 114-120 (2024).
- Sun, H., et al. ID2 exacerbates the development of rheumatoid arthritis by increasing IFN-γ production in CD4+ T cells. Clin Transl Med. 15 (3), e70242(2025).
- Murayama, M. A., et al. CTRP6 is an endogenous complement regulator that can effectively treat induced arthritis. Nat Commun. 6, 8483(2015).
- Kadura, S., Raghu, G. Rheumatoid arthritis-interstitial lung disease: Manifestations and current concepts in pathogenesis and management. Eur Respir Rev. 30 (160), 210011(2021).
- Mueller, A. L., et al. Recent advances in understanding the pathogenesis of rheumatoid arthritis: New treatment strategies. Cells. 10 (11), 3017(2021).
- Sun, H., et al. Gut commensal parabacteroides distasonis alleviates inflammatory arthritis. Gut. 72 (9), 1664-1677 (2023).
- Li, Z. Y., Zhou, J. J., Luo, C. L., Zhang, L. M. Activation of tgr5 alleviates inflammation in rheumatoid arthritis peripheral blood mononuclear cells and in mice with collagen II-induced arthritis. Mol Med Rep. 20 (5), 4540-4550 (2019).
- Mccarthy, E. E., et al. Endogenous antigens shape the transcriptome and TCR repertoire in an autoimmune arthritis model. J Clin Invest. 135 (2), e174647(2024).
- Chen, J., et al. Annexin A1 attenuates cardiac diastolic dysfunction in mice with inflammatory arthritis. Proc Natl Acad Sci U S A. 118 (38), e2020385118(2021).
- Owada, T., et al. LAT1-specific inhibitor ameliorates severe autoimmune arthritis in skg mouse. Int Immunopharmacol. 109, 108817(2022).
- Zhang, A., et al. Nrf2 activation improves experimental rheumatoid arthritis. Free Radic Biol Med. 207, 279-295 (2023).
- Sakaguchi, N., et al. Altered thymic T-cell selection due to a mutation of the ZAP-70 gene causes autoimmune arthritis in mice. Nature. 426 (6965), 454-460 (2003).
- Van Hees, M., et al. New approaches to moderate CRISPR-Cas9 activity: Addressing issues of cellular uptake and endosomal escape. Mol Ther. 30 (1), 32-46 (2022).
- Tyumentseva, M., Tyumentsev, A., Akimkin, V. CRISPR/Cas9 landscape: Current state and future perspectives. Int J Mol Sci. 24 (22), 16077(2023).
- Wu, F., et al. B cells in rheumatoid arthritis: pathogenic mechanisms and treatment prospects. Front Immunol. 12, 750753(2021).
- Dunlap, G., et al. Clonal associations between lymphocyte subsets and functional states in rheumatoid arthritis synovium. Nat Commun. 15 (1), 4991(2024).
- Okamoto, K., Takayanagi, H. Effect of T cells on. Bone. 168, 116675(2023).
- Wang, X. Q., et al. Dopamine D2 receptor on CD4+ T cells is protective against inflammatory responses and signs in a mouse model of rheumatoid arthritis. Arthritis Res Ther. 25 (1), 87(2023).
- Wang, X. Q., Liu, Y., Cai, H. H., Peng, Y. P., Qiu, Y. H. Expression of tyrosine hydroxylase inCD4+ T cells contributes to alleviation of Th17/Treg imbalance in collagen-induced arthritis. Exp Biol Med (Maywood). 241 (18), 2094-2103 (2016).
- Anaparti, V., et al. Increased frequency of TIGIT+ CD4 T cell subset in autoantibody-positive first-degree relatives of patients with rheumatoid arthritis. Front Immunol. 13, 932627(2022).
- Lei, Y., et al. Synovial microenvironment-influenced mast cells promote the progression of rheumatoid arthritis. Nat Commun. 15 (1), 113(2024).
- Jinno, S., et al. Comparison of retention of biologics in Japanese patients with elderly-onset rheumatoid arthritis-the answer cohort study. Rheumatology (Oxford). 64 (2), 509-516 (2025).
- Hagert, C., et al. Rapid spread of mannan to the immune system, skin and joints within 6 hours after local exposure. Clin Exp Immunol. 196 (3), 383-391 (2019).
- Cheng, W. J., et al. Deer velvet antler extracts exert anti-inflammatory and anti-arthritic effects on human rheumatoid arthritis fibroblast-like synoviocytes and distinct mouse arthritis. Am J Chin Med. 50 (6), 1617-1643 (2022).
Przedruki i uprawnienia
