Linie komórkowe są przydatne w badaniach nad organizmami wewnątrzkomórkowymi, które nie mogą być hodowane poza komórkami gospodarza. Chociaż linie zakażone Wolbachią umożliwiły wiele odkryć, niejednorodność w obrębie tych linii może prowadzić do zmiennych wyników eksperymentalnych. Przedstawiamy protokół generowania klonów jednokomórkowych i ciągłych hodowli z komórek JW18 zakażonych Wolbachią.
Artykuł metodologiczny
Generacja kultur monoklonalnych z linii komórkowej Drosophila melanogaster JW18 zakażonej Wolbachią
W tym artykule
Podsumowanie
Streszczenie
Linie komórkowe są szeroko stosowanymi modelami w badaniach biologicznych. Są one szczególnie przydatne w badaniach nad bakteriami wewnątrzkomórkowymi, które nie mogą być skutecznie rozmnażane poza organizmami gospodarza. Wolbachia, wewnątrzkomórkowy symbiont wielu bezkręgowców, wywołuje silne działanie rozrodcze i przeciwwirusowe u swoich owadzich gospodarzy. Komórki owadów zakażone Wolbachią są szeroko stosowane do badania fenotypów Wolbachia . Jednak te linie komórkowe często składają się z mieszanych populacji komórek o potencjalnie różniących się fenotypach i odpowiedziach na eksperymentalne leczenie. W szczególności doniesiono, że linie komórkowe z Wolbachia wykazują zmienne tempo wzrostu i zmienne rozpowszechnienie infekcji Wolbachia z jednego przejścia na drugie. Aby temu zaradzić, wygenerowaliśmy monoklonalne linie komórkowe z zakażonej Wolbachią linii komórkowej JW18 pochodzącej z Drosophila melanogaster. Te linie klonalne zostały ustanowione w różnych punktach czasowych i wykazują różne statusy infekcji Wolbachia . Ta zmienność sugeruje, że każde leczenie zastosowane w populacji rodzicielskiej JW18 może prowadzić do selekcji subpopulacji, a nie wpływać na fizjologię całej kultury. W tym miejscu przedstawiamy protokół generowania klonów pojedynczych komórek i ciągłych kultur klonalnych z komórek owadów zakażonych Wolbachią, umożliwiając bardziej kontrolowane i powtarzalne eksperymenty.
Wprowadzenie
Komórki Drosophila melanogaster są szeroko stosowane w badaniach genetycznych, badaniach nad chorobami oraz jako platforma do wysokoprzepustowych badań przesiewowych leków1. Są również pomocne w badaniu jednego z najbardziej rozpowszechnionych drobnoustrojów wewnątrzkomórkowych na naszej planecie: Wolbachia. Wolbachia jest Gram-ujemną obligatoryjną bakterią wewnątrzkomórkową występującą u 40-70% gatunków owadów 2,3,4, gdzie rozprzestrzenia się matczyno i wywołuje manipulacje reprodukcyjne 5,6,7,8. Wolbachia może również zapewnić zakażonym gospodarzom ochronę przeciwwirusową 9,10,11,12,13,14,15, która wraz z manipulacjami reprodukcyjnymi jest wykorzystywana do kontrolowania przenoszenia arbowirusa z komarów na ludzi16,17. Wykazano, że w różnych systemach Wolbachia kontroluje apoptozę18, dostarcza niezbędnych składników odżywczych19 oraz zmienia ekspresję genów i białek 20,21,22,23,24,25.
Linie komórkowe pojawiły się jako model do badania Wolbachia ze względu na ich prostą biologię, wygodę i zdolność do rozmnażania się w dużych ilościach. Linie komórkowe okazały się przydatne we wstępnej adaptacji Wolbachii do symbiozy z nowymi gospodarzami26 i umożliwieniu Wolbachii akumulacji mutacji27,28. Wykorzystano je do badań przesiewowych w kierunku związków anty-Wolbachia, które mogą być pomocne w leczeniu chorób filarialnych29 i badaniu interakcji translacji Wolbachia-gospodarz 30. Chociaż linie komórkowe są niezbędne w badaniach nad symbiozami Wolbachia 29,30,31, mechanizmy leżące u podstaw większości fenotypów Wolbachia pozostają nieznane. Sugeruje to, że system modelowania hodowli komórkowych można jeszcze ulepszyć.
Linie komórkowe owadów zakażonych Wolbachią pochodzą z zarodków i larw owadów. Aa23, pochodząca z zarodków Aedes albopictus, była pierwszą stabilną liniązakażoną Wolbachią 32, następnie wykorzystaną do wielu badań nad symbiozą Wolbachia 33,34,35. Linia komórkowa JW18 była jedną z pierwszych naturalnie zakażonych Wolbachią linii wygenerowanych z D. melanogaster29,36. Linia ta, pochodząca z zarodków muchówek zakażonych Mel wciągu 1 do 15 godzin, służyła również jako źródło Wolbachia dla innych linii komórkowych Drosophila: 1182-4H i S2R+37. Ponieważ zarodki mają wysoki odsetek komórek pluripotencjalnych, przystosowując się do wzrostu w plastiku, mogą nabywać nowe cechy, czasami różne dla poszczególnych linii komórkowych. Może to wyjaśniać niejednorodność morfologii komórek i częstości infekcji Wolbachia obserwowanych w tych komórkach w dowolnym czasie i na przestrzeni pokoleń29.
Różnorodność komórkowa w kulturze JW18 budzi obawy, ponieważ badania nad liniami komórkowymi komarów, takimi jak Aag2, wykazały, że monoklonalne i rodzicielskie linie komórkowe mogą różnie reagować na leczenie ze względu na różnice w charakterystyce komórek38. W związku z tym podawanie terapii mieszanej populacji komórek może przynieść mylące wyniki. Aby zbadać odpowiedź jednorodnej populacji komórek na leczenie (nie selekcję dla poszczególnych typów komórek), wygenerowaliśmy hodowle monoklonalne z rodzicielskiej linii komórkowej JW18. Nie podjęto wcześniej żadnych prób wygenerowania kultur monoklonalnych z tych komórek. Protokół polega na izolowaniu pojedynczych komórek z rodzicielskiej linii komórkowej JW18, a następnie ich utrzymaniu i przeniesieniu do kolb w celu ustanowienia ciągłych kultur klonalnych. Sprawdziliśmy status zakażenia Wolbachia poszczególnych linii, wykazując, że różnią się one tą kluczową cechą. Jednorodne hodowle komórkowe mają kluczowe znaczenie dla zapewnienia dokładności i odtwarzalności przyszłych eksperymentów.
Protokół
UWAGA: Wszystkie prace z żywymi komórkami i ich pożywkami muszą być wykonywane w komorze bezpieczeństwa biologicznego, aby uniknąć zanieczyszczenia.
1. Przygotowanie podłoża
- Przygotuj świeżą pożywkę hodowlaną, uzupełniając pożywkę Shield i Sang Insect 10% płodową surowicą bydlęcą (FBS).
- Zużyte i kondycjonowane media
- Hodować komórki JW18 w kolbie o średnicy 25cm2 zawierającej świeżą pożywkę Shield i Sang Insect uzupełnioną 10% FBS w temperaturze 25 °C. Inkubować, aż komórki osiągną zbieg (~1 tydzień).
- Przefiltruj 1-tygodniową pożywkę do hodowli zużytych komórek używaną do hodowli komórek, aby usunąć Wolbachię, resztki komórek i inne zanieczyszczenia: użyj sterylnego filtra 5 μm, a następnie sterylnego filtra 0,2 μm umieszczonego w strzykawce o pojemności 50 ml.
- Przygotować kondycjonowaną pożywkę, uzupełniając świeżą pożywkę 20% zużytego podłoża. Przygotować wystarczającą ilość kondycjonowanego podłoża na jedną płytkę 96-dołkową (~30 ml); za pomocą pipety serologicznej wymieszać 6 ml przefiltrowanej zużytej pożywki z 24 ml świeżej pożywki Shield and Sang Insect uzupełnionej 10% FBS.
2. Przygotowanie płytki 96-dołkowej
- Przygotowanie zawiesiny komórek JW18
- Zeskrobać komórki z zlewającej się, 1-tygodniowej kolby za pomocą skrobaka do komórek i ponownie je zawiesić za pomocą pipety serologicznej.
- Policz komórki za pomocą komory Neubauera i rozcieńcz je kondycjonowaną pożywką, aby uzyskać końcowe stężenie 2 x 10³ komórek/ml.
- Dodawanie kondycjonowanego podłoża do płytki
- Przenieś przygotowane kondycjonowane podłoże do zbiornika odczynnika.
- Za pomocą pipety wielokanałowej dodać 100 μl kondycjonowanego podłoża do każdego dołka płytki 96-dołkowej, z wyjątkiem basenika A1.
- Seryjne rozcieńczanie zawiesiny komórek
- Dodać 200 μl zawiesiny komórkowej do dołka A1.
- Za pomocą pipety jednokanałowej przenieść 100 μl z dołka A1 do dołka B1 i delikatnie wymieszać (unikać pęcherzyków), jak pokazano na rysunku 1A.
- Powtórzyć rozcieńczanie seryjne w dół kolumny 1, odrzucając ostatnie 100 μl z ostatniego dołka.
- Rozcieńczenie na płytce
- Dodać 100 μl kondycjonowanej pożywki do każdej studzienki w pierwszej kolumnie, do całkowitej objętości 200 μl. Delikatnie wymieszać.
- Za pomocą pipety wielokanałowej przenieść 100 μl z pierwszej kolumny do drugiej. Delikatnie wymieszaj.
- Powtórz ten proces dla wszystkich kolumn (1-12) w poprzek płyty (Rysunek 1A).
- Po ponownym zamieszaniu odrzucić 100 μl z ostatniej kolumny. W tym momencie każda studzienka zawiera 100 μl zawiesiny komórkowej.
- Dodać dodatkowe 100 μl pożywki hodowlanej do wszystkich studzienek, zwiększając końcową objętość w każdym dołku do 200 μl.
3. Identyfikacja pojedynczych komórek
- Przykryj płytkę, uszczelnij ją Parafilmem i odpowiednio oznacz.
- Obserwuj płytkę pod mikroskopem, dokładnie sprawdzając każdą studzienkę pod kątem pojedynczych komórek (ryc. 1B). Pamiętaj, aby dokładnie zeskanować studzienki i krawędzie, aby potwierdzić obecność tylko jednej komórki.
UWAGA: Jest to jeden z najbardziej krytycznych kroków w protokole. - Zapisz liczbę pojedynczych komórek studzienki na 96-dołkowej mapie płytki (na papierze).
UWAGA: Bardziej prawdopodobne jest, że pojedyncze komórki zostaną znalezione w studzienkach po prawej i na dole płytki. - Po zidentyfikowaniu i oznaczeniu pojedynczych komórek należy przechowywać płytkę w inkubatorze w temperaturze 25 °C. Monitorować komórki co 2 dni.
4. Konserwacja i transfer komórek
- Monitorowanie komórek
UWAGA: Komórki JW18 zwykle potrzebują 3 dni, aby zacząć dzielić się z pojedynczej komórki, a populacje klonów mogą rosnąć w różnym tempie (ryc. 2).- Monitoruj studzienki co 2-3 dni pod kątem skażenia bakteryjnego i upewnij się, że podłoże nie wyschło. Jeśli wydaje się, że studzienki wysychają, w razie potrzeby uzupełnij je świeżym podłożem.
- Ekspansja komórek
- Gdy komórki osiągną konfluencję w 96-dołkowej płytce, przenieś je na 24-dołkową płytkę (ryc. 1D).
- Następnie przenieś komórki na płytkę 6-dołkową, a na koniec do kolby (ryc. 1E, F).
UWAGA: Ta stopniowa ekspansja zwiększa prawdopodobieństwo ustanowienia ciągłej klonalnej linii komórkowej.
- Zamrażanie komórek
- Po ustaleniu hodowli klonalnej zamroź część komórek do wykorzystania w przyszłości.
- Zeskrobać komórki z kolby za pomocą skrobaka do komórek i przenieść je do probówki wirówkowej o pojemności 15 ml. Wirować przy 250 x g przez 5 minut w temperaturze 4 °C.
- Przygotuj 2x pożywkę do zamrażania (Shield i Sang Insect Medium uzupełnione o 20% FBS i 10% DMSO).
- Po odwirowaniu odrzucić część supernatantu, pozostawiając połowę końcowej pożądanej objętości. Dodać równą objętość 2x pożywki zamrażającej do pozostałego supernatantu i delikatnie ponownie zawiesić osad za pomocą pipety.
- Podaniec 1 ml zawiesiny do każdego 1,5 ml kriowialu i umieścić fiolki na lodzie. Przechowywać fiolki w temperaturze -80 °C przez noc, a następnie następnego dnia przenieść je do zbiornika z ciekłym azotem w celu długotrwałego przechowywania.
- Po ustaleniu hodowli klonalnej zamroź część komórek do wykorzystania w przyszłości.
5. PCR w celu potwierdzenia statusu Wolbachia
- Ekstrahować DNA z próbek kultur monoklonalnych przy użyciu metody fenolowo-chloroformowej39.
- Umieścić 1 ml zlejących się zeskrobanych i ponownie zawieszonych komórek w pożywce w probówce do mikrowirówek o pojemności 1,5 ml i odwirować komórki przy 290 x g przez 5 minut w temperaturze 4 °C. Odrzucić supernatant (pożywkę do hodowli komórkowych) i umieścić probówkę na lodzie.
- Dodać 250 μl roztworu A, który składa się z 0,1 M Tris HCl (pH 9,0), 0,1 M EDTA i 1% SDS. Zawiesić komórki i inkubować w temperaturze 70 °C przez 30 minut w bloku grzewczym.
- Po inkubacji dodać 35 μl 8 M octanu potasu, delikatnie wstrząsnąć probówką (unikać wirowania) i inkubować na lodzie przez kolejne 30 minut.
- Wirować z prędkością 13 000 obr./min przez 15 minut w temperaturze 4 °C, przenieść supernatant do nowej probówki i dodać równą objętość chloroformu fenolowego. Dobrze wstrząśnij i ponownie zakręć, powtarzając ten krok raz.
- Przenieść supernatant do nowej probówki, następnie dodać 150 μl izopropanolu, wstrząsnąć i wirować z prędkością 10 000 obr./min przez 5 minut. Ostrożnie usunąć supernatant, umyć osad 1 ml 70% etanolu i wirować z prędkością 13 000 obr./min.
- Po suszeniu granulatu przez 10 min w temperaturze pokojowej, należy go ponownie zawiesić w 100 μl buforu TE. Określić ilościowo DNA i przechowywać w temperaturze -20 °C.
- Wykonaj konwencjonalny PCR z DNA wyekstrahowanym z próbek kultur monoklonalnych w celu wykrycia Wolbachia przy użyciu głównej mieszanki DreamTaq Green PCR. Użyj starterów wsp 81F i wsp 691R40 dla starterów Wolbachia i Drosophila rpl32 41 do kontroli jakości DNA.
- Dodać 7,5 μl mieszanki wzorcowej, 0,5 μl każdego startera w 10 μM, 1 μl DNA rozcieńczonego w stosunku 1:50 i 5,5 μl wody molekularnej, aby uzyskać 15 μl mieszaniny reakcyjnej.
- Użyj następującego programu PCR: 94 °C przez 4 min, 30 cykli x (94 °C przez 40 sekund, 55 °C przez 40 sekund, 72 °C przez 30 sekund), 72 °C przez 10 min. Po PCR zachować próbki w temperaturze 4 °C.
- Przeprowadzić elektroforezę w żelu agarozowym w 2% żelu agarozowym w buforze TAE pod napięciem 90 V z otrzymanymi produktami PCR w celu uwidocznienia pasm. Dodaj drabinkę DNA obok, aby zidentyfikować prążki dla wsp (632 pz) i rpl32 (194 pz).
6. Barwienie ryb w celu wizualizacji infekcji Wolbachia w liniach komórkowych
- Wykonaj fluorescencyjną hybrydyzację in situ (FISH) zgodnie z opisem w protokole Stellaris FISH dla komórek adherentnych do barwienia Wolbachia za pomocą zestawu sond 16s rRNA FISH znakowanych Quasar 670. Wybarwić kwasy nukleinowe za pomocą Hoechst 33342.
UWAGA: Ten zestaw sond został zaprojektowany w oparciu o sekwencję rDNA Mel16S i pasuje do zestawu sond opublikowanego w Schneider et al.42 (patrz tabela uzupełniająca S1).- Przygotować odczynniki (bufor utrwalający, bufor hybrydyzacyjny, bufor płuczący A i B, odtworzony zestaw sond niestandardowych) zgodnie z instrukcjami producenta43.
- Hoduj przylegające komórki na 70% sterylizowanym etanolem okrągłym szkle nakrywkowym o średnicy 18 mm na 24-dołkowej płytce hodowlanej. Gdy komórki osiągną pożądane zbiegowisko, odessać pożywkę wzrostową i przemyć 1 ml 1x PBS. Dodać 1 ml buforu utrwalającego i inkubować w temperaturze pokojowej przez 10 minut. Umyj komórki dwukrotnie 1 ml 1x PBS.
- Przepuszczalność przez zanurzenie szkiełka nakrywkowego z komórkami w 1 ml 70% etanolu i inkubować przez noc w temperaturze 4 °C; Przechowuj próbki w etanolu w tej temperaturze do 1 tygodnia przed hybrydyzacją. Odessać etanol i dodać 1 ml buforu płuczącego A; Inkubować w temperaturze pokojowej przez 2-5 minut.
- Przygotuj nawilżoną komorę, umieszczając nasączony wodą ręcznik papierowy i warstwę Parafilmu w naczyniu hodowlanym o średnicy 150 mm. Odpipetować 100 μl buforu hybrydyzacyjnego zawierającego 1 μl 12,5 μM materiału sondowego na Parafilm. Delikatnie odwróć szkło nakrywkowe, umieszczając komórki stroną do dołu na kropli buforu hybrydyzacyjnego. Przykryć i uszczelnić komorę Parafilmem, a następnie inkubować w ciemności w temperaturze 37 °C przez co najmniej 4 godziny (w razie potrzeby do 16 godzin).
- Po hybrydyzacji ostrożnie przenieść szklane komórki pokrywowe do świeżej studzienki zawierającej 1 ml buforu płuczącego A i inkubować w temperaturze 37 °C przez 30 minut. Odessać bufor i dodać 0,5 μl 20 mM zapasu Hoechst do 700 μl buforu do przemywania A; inkubować w temperaturze 37 °C przez 30 minut w ciemności.
- Usunąć roztwór Hoechsta i dodać 1 ml buforu do przemywania B; Inkubować w temperaturze pokojowej przez 2-5 minut. Na koniec umieść małą kroplę (10 μl) podłoża montażowego na szkiełku mikroskopowym i zamontuj szklane komórki pokrywy stroną do dołu na kropli. Delikatnie odchabnij nadmiar medium montażowego i uszczelnij obwód szkła nakrywkowego przezroczystym lakierem do paznokci.
- Przechowywać szkiełka w temperaturze 4 °C i jak najszybciej przystąpić do obrazowania.
- Przetwarzaj obrazy za pomocą ImageJ44. Podziel kanały i zmień paletę kolorów zgodnie z wymaganiami.
Wyniki
Proces tworzenia kultur monoklonalnych obrazowano za pomocą mikroskopii świetlnej od dnia przygotowania zawiesiny pojedynczych komórek i ich wysiewania (dzień 0) aż do momentu ustanowienia ciągłych linii komórkowych (dzień 45 lub 77, Rycina 2). Pierwsze oznaki podziału komórek zaobserwowano w 3. dniu (4 dni po wysiewie, ponieważ wysiew wykonano w dniu 0), kiedy w każdej studzience znajdowały się już cztery komórki (Rycina 2). W 14. dniu klony rosły albo jako monowarstwa (JW18-B9, C7 i E5), albo jako sferoid (JW18-G4), który został rozbity podczas pasażowania. W 28. dniu różnice w tempie wzrostu między liniami komórkowymi były najbardziej widoczne. Kultura JW18-C7 osiągnęła konfluencję w 45. dniu, podczas gdy pozostałe kultury klonalne zostały ustanowione dopiero w 77. dniu. Obrazowano również cztery różne kultury 30 pasaży po ich ustanowieniu, aby uchwycić różnice w morfologii komórek (Rycina 3).
Aby określić status infekcji Wolbachia w kulturach monoklonalnych, przeprowadziliśmy analizę PCR (Rycina 4) oraz FISH (Rycina 5). Zaobserwowano, że wszystkie klony z wyjątkiem jednego (JW18-C7) wykazały obecność prążka dla genu wsp, co wskazuje na infekcję Wolbachia. Analiza FISH potwierdziła wyniki PCR: klony JW18-B9, JW18-E5 i JW18-G4 zachowały infekcję Wolbachia, natomiast klon JW18-C7 nie był zainfekowany Wolbachia. Łącznie z mieszanej populacji komórek JW18 udało nam się ustanowić cztery kultury klonalne, z których trzy zachowały pierwotną infekcję Wolbachia. Surowe dane są dostępne w serwisie Figshare: https://figshare.com/s/15fde47ca7338f31dda9.
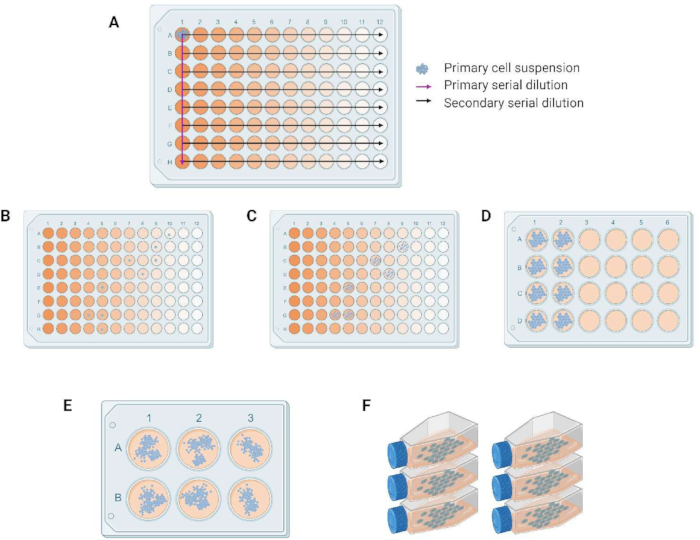
Rycina 1: Schemat generowania kultur monoklonalnych. (A) Rozcieńczenia pierwotne i wtórne w płytce 96-dołkowej. (B) Pojedyncze komórki po rozcieńczeniach seryjnych. (C-E) Postęp w namnażaniu komórek i ich przenoszenie odpowiednio z płytki 96-dołkowej do płytki 24- i 6-dołkowej. (F) Kultury ciągłe w kolbach do hodowli komórkowej o powierzchni 25 cm2 . Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
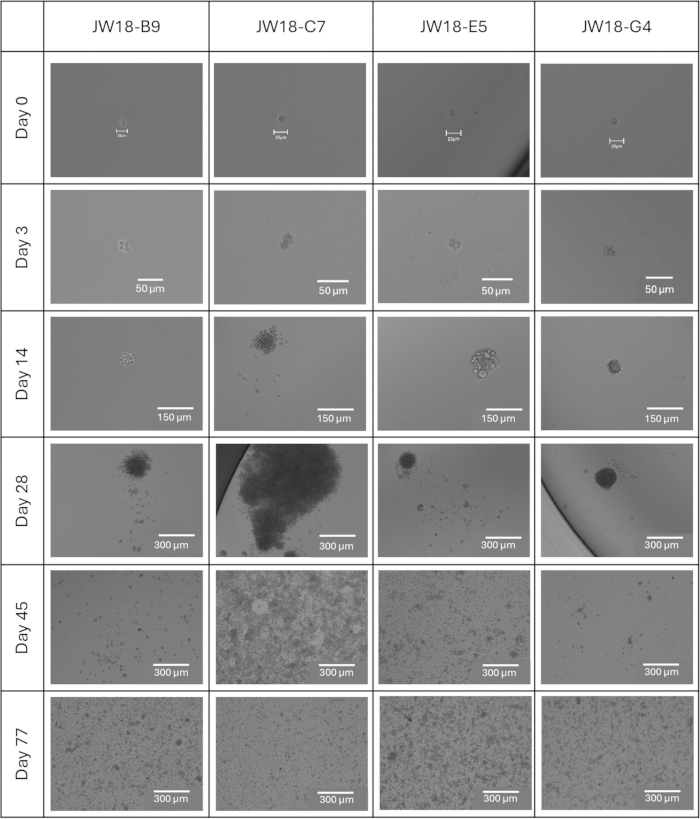
Rysunek 2: Progresja klonalnych linii JW18 od pojedynczej komórki do kultury wielokomórkowej. Obrazy w polu jasnym linii klonalnych od dnia 0 (dzień wysiewania) do dnia 77, kiedy wszystkie linie zostały pomyślnie ustanowione w kolbie do hodowli komórkowej o powierzchni 25 cm2. Paski skali = 25 µm (dzień 0), 50 µm (dzień 3), 150 µm (dzień 14), 300 µm (dni 28, 45, 77). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
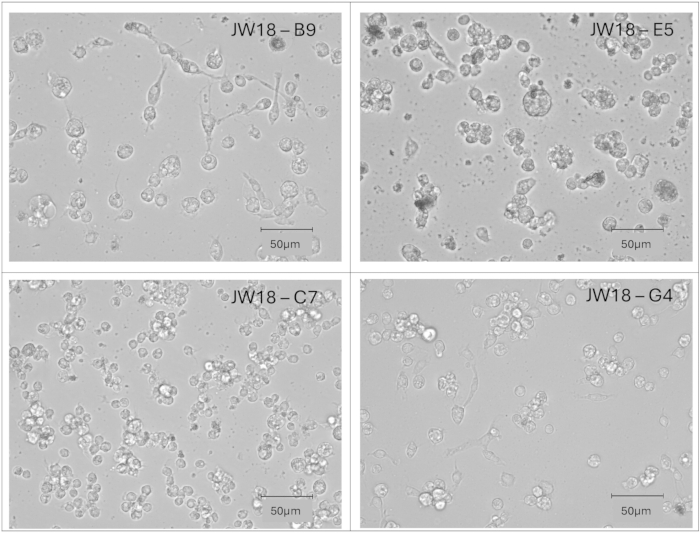
Rysunek 3: Morfologia poszczególnych linii klonalnych JW18. Obrazy w polu jasnym linii klonalnych przedstawiające morfologię komórek w 30. pasażu po ustanowieniu. Paski skali = 50 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
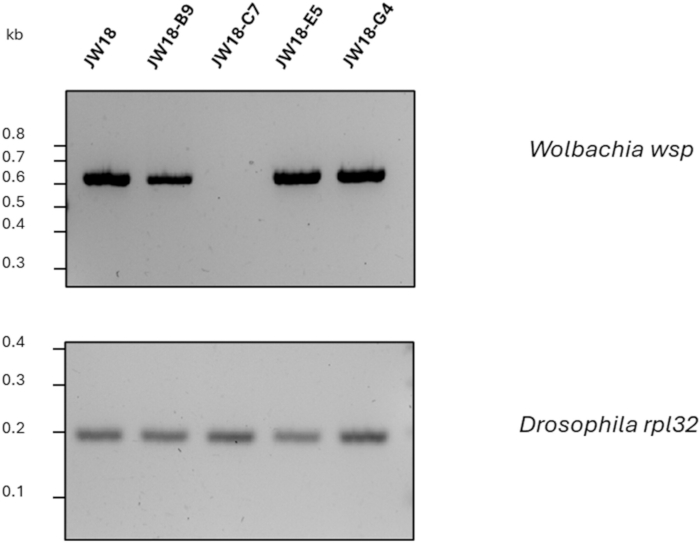
Rycina 4: Wolbachia ocena stanu kultur klonalnych za pomocą PCR. PCR dla Wolbachia w linii komórkowej macierzystej JW18 oraz liniach klonalnych JW18-B9, JW18-C7, JW18-E5 i JW18-G4 w 11. pasażu po ustanowieniu. Wolbachiawsp prążek potwierdza obecność Wolbachiapodczas gdy Drosophilarpl32 prążek stanowi kontrolę jakości DNA w reakcji PCR. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
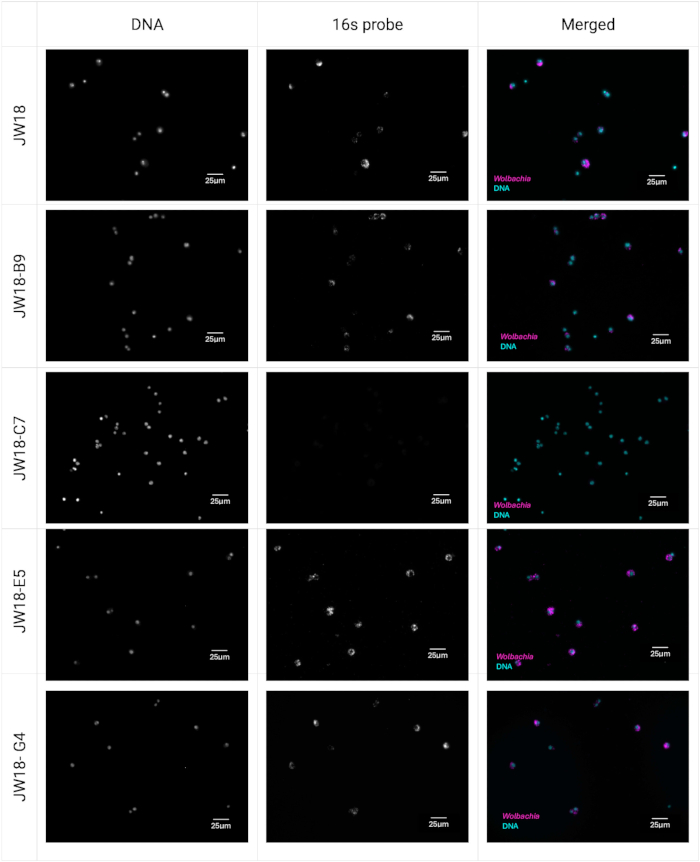
Rysunek 5: Wolbachia status kultur klonalnych badany metodą FISH. Linia komórkowa macierzysta JW18 oraz klony JW18-B9, JW18-C7, JW18-E5, JW18-G4 zwizualizowane za pomocą barwienia FISH w 13. pasażu po ustanowieniu linii. Wolbachia barwione zestawem sond Stellaris FISH do 16S rRNA z znacznikiem Quasar 670 w kolorze purpurowym, a kwasy nukleinowe są barwione Hoechst 33342 w kolorze cyjanowym. Paski skali = 25 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela uzupełniająca S1: Sondy oligonukleotydowe zaprojektowane przeciwko Wolbachia wMel 16S rDNA oraz ich porównanie z sondami opublikowanymi przez Schneidera i współpracowników42. Proszę kliknąć tutaj, aby pobrać tę tabelę.
Dyskusja
W tym miejscu przedstawiamy znormalizowaną metodę generowania klonów jednokomórkowych z linii komórkowej JW18 D.melanogaster, którą można zastosować do innych linii komórkowych Drosophila i owadów. Protokół polega na seryjnym rozcieńczaniu przygotowanej zawiesiny komórek na 96-dołkowej płytce w celu wyizolowania pojedynczych komórek. Komórki te są następnie inkubowane w optymalnych warunkach w celu utworzenia ciągłych hodowli. Protokół obejmuje również dodanie 20% kondycjonowanych pożywek w celu promowania przeżycia komórek i podziału pojedynczej komórki45,46.
Krytycznym krokiem w protokole jest weryfikacja obecności pojedynczej komórki w każdym dołku po seryjnym rozcieńczeniu. Ten krok wymaga skrupulatnej uwagi, ponieważ ma zasadnicze znaczenie dla powodzenia całego protokołu. Aby ułatwić przyszłe potwierdzenie pochodzenia pojedynczej komórki, zaleca się wykonanie zdjęć wybranych studzienek pod różnymi kątami.
Kolejnym kluczowym krokiem jest przenoszenie komórek między szalkami hodowlanymi. Aby zapewnić pomyślne ustanowienie ciągłej hodowli, komórki powinny być przenoszone dopiero po osiągnięciu konfluencji. Jeśli wzrost komórek utrzymuje się w stagnacji przez ponad dwa tygodnie, odświeżenie pożywki może sprzyjać dalszemu wzrostowi. Przedwczesny transfer komórek przed konfluencją może spowodować śmierć komórki.
Chociaż protokół ten jest bardziej czasochłonny i pracochłonny niż inne powszechnie stosowane metody, takie jak sortowanie komórek aktywowanych fluorescencją (FACS)38,46, ma kilka zalet. Należą do nich opłacalność, minimalne ryzyko uszkodzenia komórek, brak konieczności stosowania markerów fluorescencyjnych, drogi sprzęt i czas optymalizacji. Ogólnie rzecz biorąc, protokół ten dobrze nadaje się do generowania jednorodnych populacji komórek owadów z ciągłych linii komórkowych.
Właściwości kultur monoklonalnych
Nasze wyniki pokazują, że kultury monoklonalne różnią się pod względem szybkości ich zakładania i statusu zakażenia Wolbachia (ryc. 2, ryc. 4 i ryc. 5). Klon JW18-C7 wolny od Wolbachii był najszybszym, który osiągnął konfluencję w naszym protokole izolacji pojedynczej komórki. Wolbachia mogła albo zawsze być nieobecna w tej linii komórkowej, albo mogła zostać utracona z powodu niezdolności do nadążania za tempem podziału komórki gospodarza. Mógł również zostać utracony z powodu początkowej niskiej gęstości komórek w naszym protokole klonowania. Ponieważ jednak nie zdarzyło się to w przypadku innych klonalnych linii komórkowych, uważamy to za mało prawdopodobne. Eksperymentalne zakażenie JW18-C7 Wolbachią (wraz z innymi klonami leczonymi tetracykliną) może odpowiedzieć na pytanie, czy ta linia jest pobłażliwa dla symbionta.
Heterogeniczność komórkowa nie jest unikalna dla linii komórkowej JW18 i została wcześniej opisana dla innych linii komórkowych zakażonych Wolbachią 32,47,48,49,50,51,52. Poprzednia próba jego poprawy polegała na przeniesieniu Wolbachia z jaj D. simulans lub komórek Aa23 do linii komórkowej C7-10 A. albopictus 53. C7-10 został sklonowany na wiele lat przed transferami Wolbachia 54,55, a transfery te nie stanowią naturalnej infekcji, którą zamierzamy badać.
Różnica w statusie zakażenia Wolbachia i czasie założenia hodowli monoklonalnej (wskazująca na różnice w szybkości podziału komórek) dla poszczególnych klonów JW18 może mieć głębokie implikacje dla wcześniejszych badań łączących miano Wolbachia i tempo wzrostu komórek owadów w odpowiedzi na określone leczenie. Zmieniona liczba komórek, gęstość symbiontów lub zmiany w ekspresji genów po leczeniu mogą wynikać z selekcji typów komórek o określonych właściwościach, a nie ze zmian w stanie wszystkich komórek w populacji mieszanej. Podawanie terapii mieszanej populacji komórek ze zmiennością kluczowych cech może zatem dawać stronnicze, niepowtarzalne wyniki.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Dziękujemy Williamowi Sullivanowi (Uniwersytet Kalifornijski, Santa Cruz, USA), Laurze Serbus (Florida International University, USA) i Luisowi Teixeirze (Universidade Católica Portuguesa, Lizbona, Portugalia) za linię komórkową JW18 i przydatne sugestie, jak z nią pracować. Jesteśmy wdzięczni Nidhi Krishna Shrivastava (Uniwersytet Jagielloński, Kraków, Polska) za przydatne sugestie dotyczące protokołu. Dziękujemy Yuliyi Chykunovej (Uniwersytet Jagielloński, Kraków, Polska) za korektę manuskryptu.
Rysunek 1 został stworzony za pomocą BioRender (Chrostek, E. (2024) https://BioRender.com/o69b306).
Praca ta jest wspierana przez ERC Starting Grant (Grant agreement ID: 101040311) przyznany Komisji Europejskiej oraz staż doktorski ze Szkoły Doktorskiej Nauk Ścisłych i Przyrodniczych Uniwersytetu Jagiellońskiego przyznany NF. Wyrażone poglądy i opinie są jednak wyłącznie poglądami i opiniami autorów i niekoniecznie odzwierciedlają poglądy i opinie Unii Europejskiej lub Agencji Wykonawczej Europejskiej Rady ds. Badań Naukowych. Ani Unia Europejska, ani organ przyznający pomoc nie mogą być za nie pociągnięte do odpowiedzialności.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,22 &mikro; m strzykawka fliter | TPP (TPP) | 99722 | Sterylny |
| 10x sól fizjologiczna buforowana fosforanami (PBS) | ThermoFisher Naukowy | 70011044 | Sterylny |
| Okrągłe szkło nakrywkowe 12 lub 18 mm | Dowolna marka | ||
| 15 ml probówek Falcon | Genoplast (Klej) | 601052 | Sterylny |
| Płytka 24-dołkowa | CytoOne | CC7682-7524 powiedział: | Hodowla tkankowa poddana zabiegowi |
| 5 & mikro; M Filtr strzykawkowy | Whatman | 10462000 | Sterylny |
| Płytka 6-dołkowa | CytoOne | Zobacz materiał CC7682-7506 | Hodowla tkankowa poddana zabiegowi |
| Płytka 96-dołkowa | CytoOne | CC7682-7596 powiedział: | Hodowla tkankowa poddana zabiegowi |
| Agarozy | ThermoFisher Naukowy | Zobacz materiał J66501.30 | |
| Kolba do hodowli komórkowych, 25 cm2 | Greiner Bio-one | 391-3103 | Sterylny |
| Skrobaki do komórek | Greiner Bio-one | 391-3010 | Sterylny |
| Bezbarwny lakier do paznokci | Dowolna marka | ||
| Fiolki CryoPure | Sarstedt powiedział: | 72.379 | Sterylny |
| DMSO, klasa hodowli komórkowej | Merck | D2650-100ML | Sterylny |
| DreamTaq PCR Master Mix | ThermoFisher Naukowy | Zobacz materiał K1081 | |
| EDTA | Merck | 324503-100GM | Sterylny |
| Zasilacz do elektroforezy | Merck | Zobacz materiał PS 251-2 | |
| Eppendorf Koncentrator Plus | Merck | EP5305000509 | Zamiast tego można użyć koncentratora próżniowego dowolnej marki. |
| Etanol | Merck | 1009861000 | |
| System obrazowania EVOS M5000 | ThermoFisher Naukowy | AMF5000 | Odwrócony mikroskop dowolnej marki może być używany do monitorowania postępu klonów. Mikroskop fluorescencyjny jest wymagany do wizualizacji RYB. |
| Surowica bydlęca płodu | Merck | Zobacz materiał F9665 powiedział: | Inaktywowany termicznie |
| Formaldehyd | ThermoFisher Naukowy | 047377.9L | |
| Formamid | Merck | F7503-100ML | |
| Zbiorniki do elektroforezy żelowej | Tasak naukowy | Protokół MSMIDI | |
| Obrazowanie żelowe | Przedsiębiorstwo BioRad | 12009077 | System obrazowania żelu GelDoc Go |
| GeneRuler 100 bp Drabinka DNA | ThermoFisher Naukowy | Zobacz materiał SM0243 | |
| Blok grzewczy | ThermoFisher Naukowy | 88870005 | |
| Herasafe 2025 Klasa II Szafa Bezpieczeństwa Biologicznego | ThermoFisher Naukowy | 51033314 | Szafa bezpieczeństwa biologicznego dowolnej marki może być używana, o ile utrzymuje sterylne środowisko wewnątrz. |
| Hoechst 33342 Roztwór (20 mM) 5 ml | ThermoFisher Naukowy | 62249 | Przechowywać w ciemności. |
| Kwas solny | Merck | 258148-2.5L | |
| Integra Biosciences Corp PIPETBOY acu 2 Pomoc do pipet | Fisher Naukowy | NC0085686 | Można użyć serologicznego kontrolera pipet dowolnej marki. |
| Izopropanol | Merck | I9516-1L | |
| Zamrażarka laboratoryjna | Liebherr | LGUex 1500 MediLine | Każda zamrażarka zdolna do utrzymania stałej temperatury jest odpowiednia. |
| Zbiornik ciekłego azotu | ThermoFisher Naukowy | CY50985 | |
| Szkiełka mikroskopowe | Merck | CLS294875X25-72EA | |
| Woda klasy molekularnej | |||
| Pipeta wielokanałowa | Eppendorf powiedział: | 3125000036 | |
| Kropla nano | Peqlab | Zobacz materiał ND-1000 | |
| Hemocytometr Neubauera | Merck | BR717810-1EA | |
| Parafilm M Folia uszczelniająca | Merck | HS234526B-1EA | |
| Inkubator chłodzony ogniwem Peltiera | Memmert powiedział: | IPP55plus | Dowolny inkubator zdolny do utrzymania stałej 25? C jest odpowiednie. Nie jest wymagana kontrola CO2 dla linii komórkowej JW18 lub jej klonów. |
| Fenol/chloroform/alkohol izoamylowy (25:24:1) | ThermoFisher Naukowy | 327115000 | |
| Zestaw pipet | Eppendorf powiedział: | EP2231300008 | |
| Octan potasu | Merck | Zobacz materiał P1190-500G | Sterylny |
| Kwazar Sonda 16s rRNA FISH z tagiem 670 zbiór | Technologie biosearch | Wykonane na zamówienie, sekwencje sond można znaleźć w tabeli 1. | |
| Mikrowirówka z chłodzeniem | Labnet | Silnik C2500-R | |
| rpl32 podkład naprzód 5'-CCGCTTCAAGGGACAGTATC-3' | Genomika Eurofins | Wykonane na zamówienie w oparciu o odniesienie cytowane w artykule | |
| rpl32 podkład odwrotny 5'-CAATCTCCTTGCGCTTCTTG-3' | Genomika Eurofins | Wykonane na zamówienie w oparciu o odniesienie cytowane w artykule | |
| SDS | ThermoFisher Naukowy | Zobacz materiał AM9823 | Sterylny |
| Pipety serologiczne | Corning | 357771 | |
| Tarcze i Sang M3 Medium Owad | Merck | Zobacz materiał S8398 powiedział: | Sterylny |
| Bufor hybrydyzacyjny Stellaris RNA FISH | Technologie biosearch | Przekaźnik SMF-HB1-10 | Sterylny |
| Stellaris RNA FISH Bufor do płukania A | Technologie biosearch | SMF-WA1-60 | Sterylny |
| Stellaris RNA FISH Bufor do płukania B | Technologie biosearch | Przekaźnik SMF-WB1-20 | Sterylny |
| Sterylne zbiorniki na odczynniki | ThermoFisher Naukowy | 8094 | Sterylny |
| Bufor TAE | Merck | 1061741000 | 1x |
| Bufor TE | Merck | 93283 | Sterylny |
| Termocykler | Syngen Biotech | Termoblok 96 | Zamiast tego można użyć termocyklera dowolnej marki. |
| Baza Tris | Merck | 10708976001 | Sterylny |
| Zamrażarka o bardzo niskiej temperaturze | Korporacja PHC | MDF-DU502VH-PE | Każda zamrażarka laboratoryjna zdolna do utrzymania -80 ? Można użyć C. |
| Średni montaż Vectashield | Laboratoria wektorowe | H-1000-10 | |
| Podkład WSP do przodu 5'-TGGTCCAATAAGTGATGAAGAAAC-3' | Genomika Eurofins | Wykonane na zamówienie w oparciu o odniesienie cytowane w artykule | |
| wsp starter rewers 5'-AAAAATTAAACGCTACTCCA-3' | Genomika Eurofins | Wykonane na zamówienie w oparciu o odniesienie cytowane w artykule |
Bibliografia
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
Przedruki i uprawnienia
