Zaparcia to powszechna cecha choroby Parkinsona (PD), która często objawia się wiele lat przed diagnozą. Badanie to potwierdziło proponowaną metodę pomiaru zaparć u Drosophila melanogaster i potwierdzono deficyty w różnych modelach muchowej monogenowej choroby Parkinsona.
Artykuł metodologiczny
Wady pasażu jelitowego w modelach Drosophila monogenowej choroby Parkinsona przy użyciu testu zaparć
W tym artykule
Podsumowanie
Streszczenie
Choroba Parkinsona (PD) jest powszechnym neurodegeneracyjnym zaburzeniem motorycznym i często towarzyszy jej kilka objawów niezwiązanych z motoryką. Wśród tych ostatnich problemy żołądkowo-jelitowe, w tym zaparcia, często pojawiają się na wiele lat przed wystąpieniem trudności z poruszaniem się i przed ustaleniem diagnozy PD. W niedawnym badaniu zaproponowano metodę pomiaru zaparć w modelu muchy PD, która wyraża ludzką alfa-synukleinę typu dzikiego. W tym badaniu zbadaliśmy wykonalność tej metody i sprawdziliśmy, czy inne genetyczne modele PD much w równym stopniu powodują zaparcia. Do pomiaru poziomu zaparć w autosomalnych dominujących i recesywnych modelach PD wykorzystano dostępne linie muchowe, w tym trzy różne zmutowane ludzkie linie Drosophila z ekspresją alfa-synukleiny oraz muchy z niedoborem Pink1 i Parkin. Muchy te i odpowiadające im kontrole umieszczono na niebiesko zabarwionym pokarmie na dzień przed eksperymentem w celu wywołania niebieskich plam kałowych. W dniu eksperymentu muchy te przeniesiono do standardowej mąki kukurydzianej. Odsetek niebieskich plam kałowych w stosunku do całkowitej liczby plam kałowych był rejestrowany i obliczany co 90 minut. Różne modele PD much wykazują wolniejsze lub niepełne wydalanie pokarmu o niebieskim kolorze w porównaniu z odpowiednimi muchami kontrolnymi. W związku z tym wcześniej zaproponowana metoda pomiaru zaparć została zwalidowana i zastosowana do różnych modeli much różnych form genetycznej choroby Parkinsona.
Wprowadzenie
Choroba Parkinsona (PD) jest zaburzeniem neurodegeneracyjnym charakteryzującym się głównie dysfunkcją motoryczną, w tym głównymi objawami diagnostycznymi, takimi jak bradykinezja, sztywność i drżenie. Chociaż PD jest najbardziej znana ze swoich objawów motorycznych, objawy niemotoryczne są powszechne, w tym depresja, ból, zaburzenia snu i zaparcia1,2. Często te objawy niemotoryczne pojawiają się na wczesnym etapie przebiegu choroby i mogą wyprzedzać objawy motoryczne o kilka lat3. Rozpoznanie tych cech niemotorycznych w początkowej fazie choroby może mieć kluczowe znaczenie we wczesnej diagnozie choroby Parkinsona, potencjalnie ułatwiając szybszą interwencję i leczenie choroby.
Zaparcia i zmiany w motoryce jelit są często zgłaszanymi objawami niemotorycznymi w PD i często występują na długo przed wystąpieniem objawów motorycznych3,4. Co więcej, ich nasilenie i częstość wzrasta wraz z progresją PD5. Niemniej jednak nasza wiedza na temat wzorców i mechanizmów zaparć pozostaje ograniczona. W związku z tym wczesna identyfikacja zaparć związanych z chorobą Parkinsona może pomóc w diagnozowaniu choroby Parkinsona na etapie, na którym interwencje terapeutyczne mogą być bardziej skuteczne w spowalnianiu postępu choroby. Pomimo tego znaczenia, zrozumienie mechanizmów leżących u podstaw zaparć w chorobie Parkinsona pozostaje ograniczone, częściowo z powodu braku odpowiednich modeli eksperymentalnych i projektu. Ostatnie postępy w badaniu zaparć u Drosophila melanogaster przy użyciu nadekspresji ludzkiej alfa-synukleiny typu dzikiego stanowią cenne narzędzie do badania mechanizmów leżących u podstaw tego wczesnego objawu niemotorycznego6.
SNCA, kodujący alfa-synukleinę, stanowi pierwszą zidentyfikowaną przyczynę PD7. Zarówno namnażanie genów (duplikacja i triplikacja), jak i mutacje punktowe w SNCA prowadzą do dziedziczenia autosomalnego dominującego PD8. Warto zauważyć, że zaparcia dotykają do 90% pacjentów z mutacjami SNCA5. Ponadto zidentyfikowano kilka innych genów, które powodują PD po mutacji, w tym VPS35, który również powoduje autosomalne dominujące formy PD8. Inne geny, takie jak PINK1 i Parkin, powodują autosomalną recesywną chorobę Parkinsona po mutacji9. Objawy niemotoryczne występują również w tych innych genetycznych formach PD; Jednak zgłoszone dane są nieliczne, a co za tym idzie, trudne do wyciągnięcia wniosków lub zbadania mechanizmów leżących u ich podstaw10,11.
Dla PD stworzono kilka modeli zwierzęcych, w tym u Drosophila melanogaster12. Chociaż Drosophila nie zawiera genu SNCA, nadekspresja dzikich i zmutowanych form genu indukuje fenotypy parkinsonowskie, w tym objawy motoryczne13. Ponadto, zmutowane muchy vps35, pink1 i parkin sprzężone z PD są dobrze znanymi modelami do badania wpływu odpowiednich zmutowanych genów w odniesieniu do PD12. Co więcej, możliwość pomiaru zaparć w różnych modelach choroby Parkinsona Drosophila, w tym w postaci dominującej i recesywnej, pozwala na bardziej dogłębną analizę dysfunkcji przewodu pokarmowego, a tym samym lepsze zrozumienie szlaków zaangażowanych w zaparcia związane z chorobą Parkinsona.
Tutaj oceniono i zweryfikowano wykonalność ostatnio zaproponowanej metody pomiaru zaparć6 przy użyciu różnych genetycznych modeli PD. Rozszerzając zastosowanie tej metody na inne genetyczne modele PD i dokonując korekt, potwierdzamy wykonalność tej metody jako ogólnego testu do pomiaru zaparć lub zmienionej motoryki jelit i popieramy możliwość wykonywania badań przesiewowych modyfikatorów w celu uzyskania wglądu w mechanizmy molekularne leżące u podstaw zaparć PD.
Protokół
Dziesięciodniowe samce much zostały użyte w tym teście. Do nadekspresji SNCA użyto wszechobecnego sterownika DaughterlessGal4.
Muchy użyte w tym teście:
w1118;; SNCA p.A53T/DaGal4 i jego sterowanie w1118; SNCA p.A53T
w1118;; SNCA p.A30P/DaGal4 i jego sterowanie w1118; SNCA p.A30P
w1118;; SNCA p.V15A/DaGal4 i jego sterowanie w1118; SNCA p.V15A
w1118;; Vps35D650N/DaGal4 i jego sterowanie w1118; vps35D650N
w różowy1B9;; i ich kontrola w różowym1RV;;
w1118;; parkD1/D21 i ich sterowanie w1118; zaparkowanysamochód kempingowy
SNCA p.A53T, SNCA p.A30P, w*;; P(EP)park1, w*;; parkΔ21, Vps35D650N i DaGal4 zostały uzyskane komercyjnie (patrz Tabela materiałów). w pink1B9 null mutants and controls (w pink1RV) zostały uprzejmie dostarczone przez Jeehye Park i Jongkyeong Chung (Korea Advanced Institute of Science and Technology)14. Muchy SNCA p.V15A zostały wcześniej utworzone15. Odczynniki i sprzęt używany w tym badaniu są wymienione w Tabeli Materiałów.
1. Przygotowanie niebieskiego jedzenia
- Przygotuj świeże standardowe podłoże z muchy kukurydzianej i utrzymuj je w cieple i płynie.
UWAGA: Można użyć wstępnie przygotowanego podłoża muchowego, ale należy je podgrzać, aby podłoże stało się płynne. Standardowa mąka kukurydziana składa się z 50 g mąki kukurydzianej, 7 g drożdży, 7 g agaru, 13,5 g dekstrozy, 10 ml etanolu (100%), 1,1 g metalo-4-hydroksybenzoesanu, 55 g melasy i 4,8 ml kwasu propionowego na 1 l podłoża muchowego. - Wymieszaj niebieski barwnik spożywczy z wodą destylowaną w stosunku 1:1 (v/v).
- Dodaj niebieską mieszankę spożywczą do standardowego podłoża z mąki kukurydzianej, aby nasycić ją niebieską żywnością i uzyskać jednolity niebieski kolor.
UWAGA: W tym badaniu zastosowano stosunek 1:100. - Dozuj niebieską żywność do dużych fiolek z żywnością za pomocą pipety Pasteura tak, aby dno było przykryte, i pozwól im wyschnąć na powietrzu do zestalenia.
- Przygotuj taką samą liczbę fiolek z żywnością ze standardowym podłożem z mąki kukurydzianej.
- Podczas suszenia przykryj fiolki z żywnością cienkim ręcznikiem papierowym, aby zapobiec gromadzeniu się wilgoci i zanieczyszczeń.
2. Przygotowanie testu
- Umieść mokry papier Whatman w pustych fiolkach z jedzeniem.
UWAGA: Upewnij się, że papier Whatman przykleił się do dna, gdy muchy zostaną przeniesione do fiolek z niebieskim podłożem. - Dodaj 15-20 much do każdej fiolki i pozostaw je na 1 h.
UWAGA: Znieczulenie much umożliwiło selekcję much o prawidłowym genotypie. Następnie muchy przetarto w fiolce za pomocą szczoteczki i leżakowano przez dziesięć dni. Przenoszenie much odbywa się poprzez ostrożne przerzucanie much z jednej fiolki do drugiej i używanie korków, aby zapobiec ucieczce much .
- Przenieść muchy do fiolek zawierających niebieską pożywkę i pozostawić je na noc w inkubatorze w temperaturze 25 °C.
3. Wykonanie testu na zaparcia
- Następnego ranka przenieść muchy do fiolek ze standardową pożywką z mąki kukurydzianej i umieścić je z powrotem w inkubatorze na 90 min.
UWAGA: Można sprawdzić, czy brzuchy wszystkich much w fiolkach są niebieskie, umieszczając je pod mikroskopem. - Po 90 minutach policz liczbę niebieskich i bezbarwnych, nieprzezroczystych kropek, zaznacz je kolorowym markerem, zapisz je i umieść muchy z powrotem w inkubatorze (Rysunek 1).
UWAGA: Oznaczenie już policzonych kropek pozwala uniknąć wielokrotnego liczenia. Co więcej, kropki na jedzeniu lub zatyczce fiolki zostały zignorowane. - Powtórz krok 4.2 jeszcze cztery razy z tymi samymi muchami, aby uzyskać przebieg kropek kałowych w czasie. Za każdym razem używano markera w innym kolorze, aby uniknąć wielokrotnego liczenia poprzednich rund.
4. Analiza
- Oblicz procenty niebieskich kropek w stosunku do całkowitej liczby kropek (niebieskich i nieprzezroczystych kropek) dla każdego punktu czasowego.
- Wykreśl dane na wykresie, używając procentu niebieskich kropek w różnych punktach czasu, a za pomocą analizy "obszar pod krzywą" w GraphPad obliczono i wykreślono obszar pod krzywą.
- Przeanalizuj dane w GraphPad Prism, aby wykonać niesparowany test t z poprawką Welcha 16.
UWAGA: Poprawka Welcha została uwzględniona, ponieważ nie można było przetestować równych odchyleń standardowych we wszystkich populacjach.
Wyniki
Wprowadzono niewielkie modyfikacje w wcześniej przedstawionej metodzie pomiaru zaparć u much7 oraz testowania funkcji jelit w różnych genetycznych modelach much związanych z PD. Inkubacja much przez noc na niebieskim podłożu spowodowała, że brzuchy much stały się niebieskie (Rycina 2), a materiał kałowy pozostawiał niebieskie plamki na fiolce z pożywką dla much (Rycina 2). Z czasem brzuchy z niebieskiego koloru powróciły do normalnego, żółtawego zabarwienia (Rycina 2). Dodatkowo niebieskie plamki kału znikały, a w ich miejsce obserwowano narastające żółte, nieprzezroczyste plamki (Rycina 2). Przejście z niebieskich w żółte plamki pozwala ocenić poziom motywności jelit lub stopień zaparć. W muchach kontrolnych przejście to było całkowite po 7 h 30 min, natomiast w muchach związanych z PD usuwanie niebieskiego podłoża następowało wolniej (Rycina 2).
Wcześniej opisano opóźnione oczyszczanie z niebieskiego podłoża u 10-dniowych much wykazujących ekspresję alfa-synukleiny typu dzikiego7, co sugeruje występowanie u tych much zaparć lub opóźnionego oczyszczania wynikającego ze zmian w motoryce jelit w porównaniu z muchami kontrolnymi. Oprócz duplikacji lub triplikacji genu SNCA, w SNCA zidentyfikowano kilka patogennych wariantów missense związanych z chorobą Parkinsona, dlatego przetestowano trzy powszechne patogenne warianty missense w SNCA. Ekspresja zmutowanej alfa-synukleiny (p.A30P, p.A53T oraz p.V15A) doprowadziła do niepełnego oczyszczenia z niebieskiego podłoża w czasie 7 h 30 min, co sugeruje obecność zaparć u tych much w porównaniu z muchami kontrolnymi (Rycina 3).
Alfa-synukleina jest powiązana z autosomalnymi dominującymi postaciami PD. Co ciekawe, ekspresja alfa-synukleiny obniża poziom białka VPS3517. VPS35 jest podjednostką retromeru, a jego mutacja powoduje PD9,18,19. Zwiększone zaparcia zaobserwowano u much wykazujących ekspresję zmutowanego vps35 w porównaniu z muchami kontrolnymi (Rycina 4).
Muchy z niedoborem Pink1 i Parkin wykazują opóźnione usuwanie niebieskiego medium; jednak po 7 h 30 min u tych mutantów nie stwierdzono już niebieskich plamek kałowych (Rycina 5).
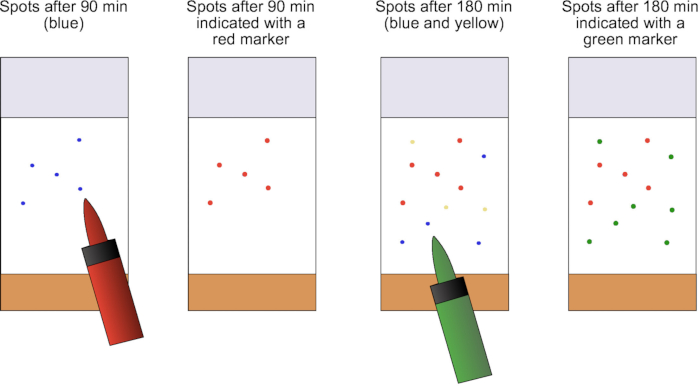
Rycina 1: Schematyczny przedstawienie procesu liczenia z użyciem kolorowych znaczników. Po 90 min policzono plamy kału i oznaczono je kolorowym markerem, aby zapobiec ich ponownemu przeliczeniu w następnej rundzie. W kolejnej rundzie liczenia użyto innego koloru do oznaczenia dodatkowych plam kału. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
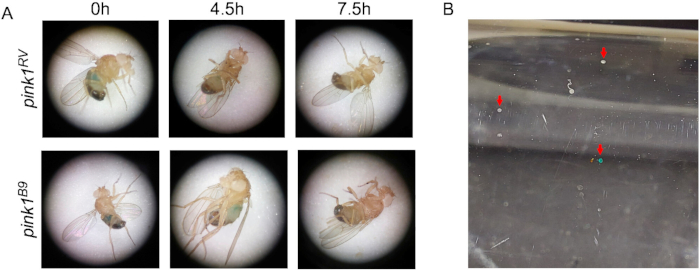
Rycina 2: Niebieska pożywka skutkuje niebieskim odwłokiem i niebieskimi plamami odchodów. (A) Obrazy odwłoków much kontrolnych (pink1RV) oraz much z mutacją pink1 w punktach czasowych 0 h, 4 h 30 min oraz 7 h 30 min pokazują zanikanie niebieskiego koloru. (B) Niebieskie i żółte, nieprzezroczyste plamy odchodów na fiolce z pożywką dla much są wskazane czerwonymi strzałkami. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
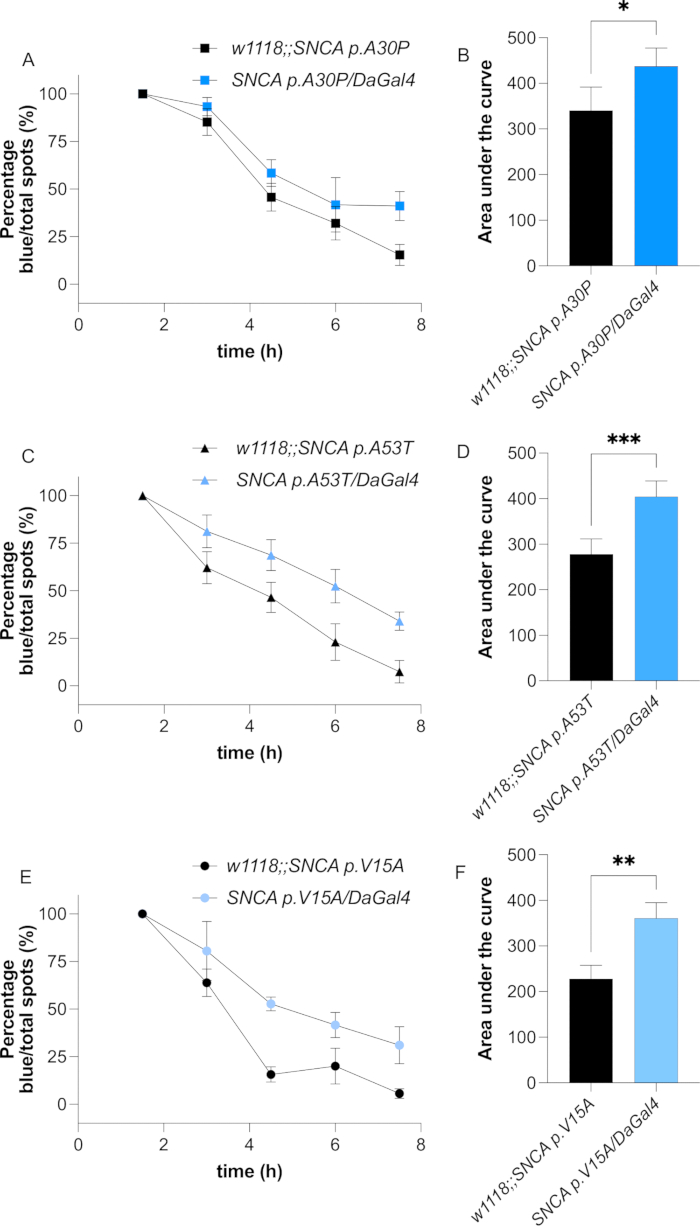
Rycina 3Ekspresja zmutowanej alfa-synukleiny prowadzi do zaparć. Procent niebieskich plamek w odchodach w czasie u much z nadekspresją SNCA p.A30P (A), SNCA p.A53T (C), oraz SNCA p.V15A (E), oraz ich odpowiednie kontrole. Powiązana powierzchn pod krzywą (B,D,F) przedstawiono. Dane stanowią średnią i odchylenie standardowe. n ≥ 3 fiolki z 15–20 muchami w każdej fiolce. Test Welcha Test t-Studenta wykonano; *: p < 0.05; **: p < 0.01; ***: p < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
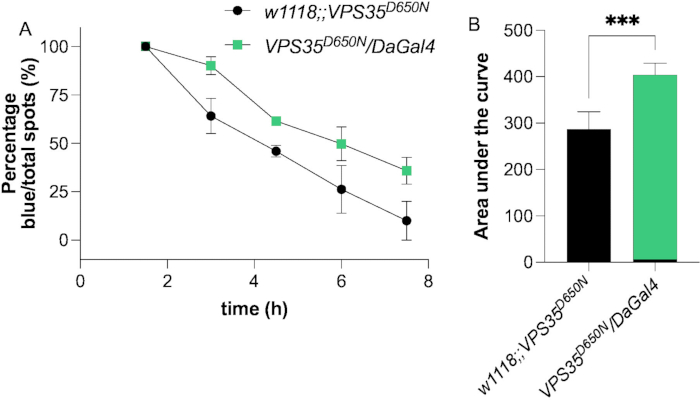
Rysunek 4Ekspresja zmutowanego genu vps35 prowadzi do zaparć. (A) Procent niebieskich plamek w odchodach w czasie u much z nadekspresją mutanta vps35 związanego z chorobą ParkinsonaD650N oraz jego kontroli. (BPrzedstawiono pole pod krzywą. Dane stanowią średnią i odchylenie standardowe. n = 3 fiolki z 15–20 muchami na fiolkę. Test Welcha Test t-Studenta przeprowadzono; ***: p < 0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
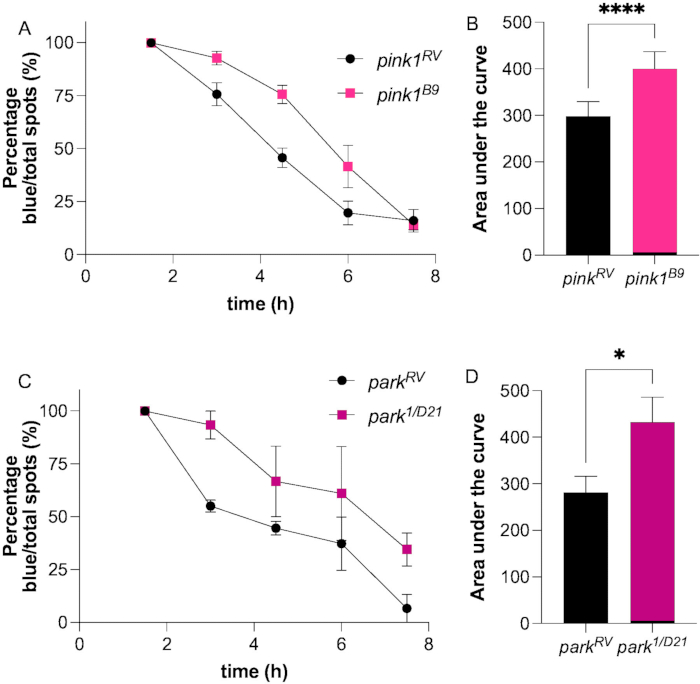
Rycina 5Niedobór Pink1 i Parkiny indukuje opóźnione opróżnianie jelit z kału. Procent niebieskich plamek w kale w czasie u Pink1- (A) oraz z niedoborem Parkiny (C) oraz ich odpowiednie muchy kontrolne. Powiązana powierzchn pod krzywą (B,D) przedstawiono. Dane stanowią średnią z odchyleniem standardowym. n ≥ 3 fiolki zawierające po 15–20 much na fiolkę. Test Welcha Test t-Studenta wykonano; *: p < 0.05; ****: p < 0.0001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Niedawno zaproponowano metodę pomiaru zaparć u Drosophila melanogaster . Przy zastosowaniu tej metody zaobserwowano zaparcia lub zmienioną motorykę jelit u muszek wykazujących ekspresję alfa-synukleiny7 typu dzikiego. Metoda ta została zwalidowana z kilkoma zmianami i zidentyfikowano zaparcia we wszystkich testowanych genetycznych modelach PD.
W porównaniu z pierwotnym opisem metody wprowadzono kilka zmian w celu zwiększenia wykonalności i odporności. Aby uniknąć zmian w nasyceniu niebieskiego podłoża, przygotowano jedną partię niebieskiego podłoża i podzielono je na wymaganą liczbę fiolek z żywnością. Co więcej, przed dodaniem much do niebieskiego podłoża były one na krótko pozbawione pożywienia, zapewniając jedynie dostęp do wody. Ten etap został dodany w celu stymulowania wchłaniania niebieskiego podłoża. Bez tego dodatkowego kroku nie wszystkie muchy wykazywały wyraźny niebieski brzuch, co było krytycznym punktem wyjścia do uzyskania reprezentatywnych wyników. Wreszcie, kilka modeli muchy PD wykazuje poziom wrażliwości na huk 13,14,20. W związku z tym muchy nie były przenoszone podczas każdego etapu liczenia, aby uniknąć wpływu tej wrażliwości na wydalanie kału. Jednak do wskazania plam użyto różnokolorowych markerów, aby uniknąć podwójnego liczenia.
Podobnie jak w pierwotnym opisie, zaobserwowano również, że muchy rzadziej wypróżniają się w godzinach popołudniowych. Niemniej jednak, ponieważ dotyczy to zarówno muchówek kontrolnych, jak i zmutowanych, nie doprowadziło to do nieprawidłowości w rejestrowaniu plamek. Co więcej, posiadanie wystarczającej ilości miejsc kałowych do policzenia w każdym punkcie czasowym jest kluczem do uzyskania solidnych wyników. W związku z tym zaleca się co najmniej piętnaście much na fiolkę7.
W oryginalnym manuskrypcie zaparcia obserwowano u muszek 10-dniowych, ale nie u much jednodniowych. Tak więc w tym teście test zaparć przeprowadzono u dziesięciodniowych muszek, a zaparcia lub zmienioną ruchliwość jelit zaobserwowano we wszystkich badanych modelach much PD. Wcześniejsze badania lokomocji wykazały, że zaparcia poprzedzają dysfunkcję motoryczną u muszek wykazujących ekspresję alfa-synukleiny, a zaburzenia lotu stają się widoczne dopiero w wieku trzech tygodni w wieku16 lat. Ta czasowa sekwencja objawów odzwierciedla postęp obserwowany u pacjentów z chorobą Parkinsona, u których problemy żołądkowo-jelitowe często objawiają się przed deficytami motorycznymi. W przeciwieństwie do modeli alfa-synukleiny, muchy z mutacją pink1 lub parkiny wykazują upośledzenie już pierwszego dnia po eklozji21. W związku z tym zbadanie, czy defekty pasażu jelitowego ujawniają się w tym wczesnym momencie, dostarczyłoby cennych informacji na temat progresji objawów niemotorycznych w tych modelach genetycznych. W związku z tym należy przeprowadzić bardziej dogłębne eksperymenty, aby lepiej zrozumieć biologię leżącą u podstaw.
Opisany tutaj test ułatwia ilościową ocenę motoryki przewodu pokarmowego i fenotypów zaparć, ale nie może ocenić takich parametrów, jak konsystencja kału, zawartość, zabarwienie lub morfologia. Wcześniej mierzono wydalanie kału, w którym kolor i morfologię oceniano przy użyciu ustalonych metodologii w modelach Drosophila 22,23,24. Test ten wymaga jednak specjalistycznego sprzętu (np. skanerów przezroczystości) i dedykowanego oprogramowania analitycznego, co wprowadza odrębne względy techniczne i dotyczące zasobów w porównaniu z opisanym tutaj protokołem. Niemniej jednak test ten wykazuje wady żołądkowo-jelitowe u much z niedoborem Pink122,23.
Dysfunkcje przewodu pokarmowego są rozpoznawane jako współistniejące objawy wielu zaburzeń neurologicznych i neurodegeneracyjnych, w tym zaburzeń ze spektrum autyzmu, choroby Alzheimera i stwardnienia rozsianego 25,26,27,28, na które Drosophila melanogaster służy jako podatny organizm modelowy do badania mechanistycznych podstaw. Ramy metodologiczne ustalone do badania motoryki jelit i zaparć u Drosophila można ekstrapolować na te choroby.
Podsumowując, badanie to potwierdziło wykonalną i solidną metodę zaprezentowaną wcześniej do pomiaru zaparć u much. Test ten pokazuje, że zaparcia są obecne w wielu genetycznych modelach PD Drosophila , które są szczególnie dobrze przystosowane do badania zaparć, ponieważ oferują możliwość badania genetycznie zdefiniowanych much zagrożonych, zanim pojawią się objawy cech motorycznych. Ponadto za pomocą tego można ocenić inne modele choroby u Drosophila , które wykazują nieprawidłowości w motoryce jelit, a także badania przesiewowe leków.
Oświadczenia
C. K służył jako konsultant dla Centogene, Takeda, Biogen i Fundacji Lundbeck, otrzymał honoraria prelegentów od Bial oraz fundusze na badania od DFG, MJFF i ASAP.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Bacto Agar | Becton, Dickinson and company | 214010 | |
| Korki Ceapran | Greiner Bio-One | 330070 | |
| Mąka kukurydziana | Dr. Oetker GmbH | ||
| Dekstroza | Sigma-Aldrich | D9434-1KG | |
| Pojemnik Drosophila | Greiner Bio-One | 217101 | |
| Etanol (100%) | J.T. Baker | BAK8025 2500 | |
| Filterpapier celuloza, Whatman (klasa 3) | Sigma-Aldrich | WHA1003185 | |
| GraphPad Prism | GraphPad | ||
| Metylo-4-hydroksybenzoat | Sigma-Aldrich | H5501-100G | |
| Melasa | Rapunzel Naturkost GmbH | ||
| trwały kolorowy marker | Stadtler | 11-348 | |
| Kwas propionowy | Thermo Fisher Scientific Inc. | ||
| Royal Blue Azul prawdziwy kolor lukru | Wilton Lebensmittelfarben | ||
| Mikroskop stereoskopowy | Nikon | ||
| Drożdże | Algist Bruggeman | 1278 | |
| Drosophila stocks | |||
| DaGal4 | Bloomington Stock Center | 95282 | |
| park< sup>D1/D21 | Jeehye Park i Jongkyeong Chung | ||
| parkRV | Jeehye Park i Jongkyeong Chung | ||
| SNCA p.A53T | Bloomington Stock Center | 8148 | |
| SNCA p.A30P | Bloomington Stock Center | 8147 | |
| SNCA p.V15A | wcześniej utworzony w laboratorium | ||
| Vps35D650N | Bloomington Stock Center | 91646 | |
| w różowy1B9 | Jeehye Park i Jongkyeong Chung | ||
| w różowym1RV | Jeehye Park i Jongkyeong Chung | ||
| w1118 | Bloomington Stock Center | 3605 |
Bibliografia
- Fanciulli, A., et al. Diagnosis and treatment of autonomic failure, pain and sleep disturbances in Parkinson's disease: Guideline "Parkinson's disease" of the German Society of Neurology. J Neurol. 272 (1), 1-32 (2025).
- Kasten, M., Marras, C., Klein, C. Nonmotor signs in genetic forms of Parkinson's disease. Int Rev Neurobiol. 133, 129-178 (2017).
- Bloem, B. R., Okun, M. S., Klein, C. Parkinson's disease. Lancet. 397 (10291), 2284-2303 (2021).
- Higinbotham, A. S., Kilbane, C. W. The gastrointestinal tract and Parkinson's disease. Front Cell Infect Microbiol. 13, 1158986(2023).
- Yuan, X. Y., Chen, Y. S., Liu, Z. Relationship among Parkinson's disease, constipation, microbes, and microbiological therapy. World J Gastroenterol. 30 (3), 225-237 (2024).
- Sodders, M. J., Shen, M., Olsen, A. L. Measuring constipation in a Drosophila model of Parkinson's disease. J Vis Exp. (199), e65966(2023).
- Spillantini, M. G., et al. Alpha-synuclein in Lewy bodies. Nature. 388 (6645), 839-840 (1997).
- Trinh, J., et al. Genotype-phenotype relations for the Parkinson's disease genes SNCA, LRRK2, VPS35: MDSGene systematic review. Mov Disord. 33 (12), 1857-1870 (2018).
- Kasten, M., et al. Genotype-phenotype relations for the Parkinson's disease genes Parkin, PINK1, DJ1: MDSGene systematic review. Mov Disord. 33 (5), 733-741 (2018).
- Deutschländer, A., Ross, O. A., Wszolek, Z. K. VPS35-related Parkinson disease. GeneReviews. , https://www.ncbi.nlm.nih.gov/books/NBK447258/ (2023).
- Wasner, K., Grünewald, A., Klein, C. Parkin-linked Parkinson's disease: From clinical insights to pathogenic mechanisms and novel therapeutic approaches. Neurosci Res. 159, 34-39 (2020).
- Vos, M., Klein, C. The importance of Drosophila melanogaster research to uncover cellular pathways underlying Parkinson's disease. Cells. 10 (3), 579(2021).
- Feany, M. B., Bender, W. W. A Drosophila model of Parkinson's disease. Nature. 404 (6776), 394-398 (2000).
- Park, J., et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 441 (7097), 1157-1161 (2006).
- Diaw, S. H., et al. Characterization of the pathogenic α-synuclein variant V15A in Parkinson's disease. NPJ Parkinsons Dis. 9 (1), 148(2023).
- Ruxton, G. D. The unequal variance t-test is an underused alternative to Student's t-test and the Mann-Whitney U test. Behav Ecol. 17 (4), 688-690 (2006).
- Lin, G., et al. Phospholipase PLA2G6, a Parkinsonism-associated gene, affects Vps26 and Vps35, retromer function, and ceramide levels, similar to α-synuclein gain. Cell Metab. 28 (4), 605-618.e6 (2018).
- Mandik, F., Vos, M. Neurodegenerative disorders: Spotlight on sphingolipids. Int J Mol Sci. 5 (21), ijms222111998(2021).
- Vos, M., Klein, C., Hicks, A. A. Role of ceramides and sphingolipids in Parkinson's disease. J Mol Biol. 435 (12), 168000(2023).
- Clark, I. E., et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 441 (7097), 1162-1166 (2006).
- Vos, M., et al. Vitamin K2 is a mitochondrial electron carrier that rescues pink1 deficiency. Science. 336, 1306-1310 (2012).
- Fedele, G., et al. Suppression of intestinal dysfunction in a Drosophila model of Parkinson's disease is neuroprotective. Nat Aging. 2 (4), 317-331 (2022).
- Popovic, R., et al. Blocking dPerk in the intestine suppresses neurodegeneration in a Drosophila model of Parkinson's disease. Cell Death Dis. 14 (3), 1-9 (2023).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Heston, M. B., et al. Gut inflammation associated with age and Alzheimer's disease pathology: A human cohort study. Sci Rep. 13 (1), 1-12 (2023).
- Levinthal, D. J., et al. Adding to the burden: Gastrointestinal symptoms and syndromes in multiple sclerosis. Mult Scler Int. 2013, 319201(2013).
- Sorboni, S. G., et al. A comprehensive review on the role of the gut microbiome in human neurological disorders. Clin Microbiol Rev. 35 (1), e0033820(2022).
- Salim, S., et al. The gut-microbiota-brain axis in autism: What Drosophila models can offer. J Neurodev Disord. 13 (1), 37(2021).
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny