Protokół ten mierzy stężenia cyklicznego monofosforanu guanozyny (cGMP) w tkankach stałych za pomocą konkurencyjnego testu immunoenzymatycznego (ELISA). Protokół opisuje, w jaki sposób przetwarzać tkankę stałą, przeprowadzać konkurencyjny test ELISA, przeliczać absorbancję na stężenia cGMP w pikomolach na mililitr i obliczać końcowe stężenia jako nanomole cGMP na gram tkanki.
Artykuł metodologiczny
Pomiar cyklicznego monofosforanu guanozyny (cGMP) w tkankach stałych przy użyciu konkurencyjnego testu immunoenzymatycznego (ELISA)
W tym artykule
Podsumowanie
Streszczenie
Głównym szlakiem, który wytwarza cykliczny monofosforan guanozyny (cGMP), jest szlak tlenku azotu (NO)-cGMP. W tym szlaku NO stymuluje aktywność katalityczną rozpuszczalnej cyklazy guanylowej (sGC), która przekształca trifosforan guanozyny w cGMP. NO jest interesujący, ponieważ u ssaków działa jako główny środek rozszerzający naczynia krwionośne, inhibitor agregacji płytek krwi, mediator funkcji immunologicznej, neuroprzekaźnik i poprawia wytrzymałość podczas aktywności fizycznej, a także pełni inne funkcje fizjologiczne. Pomiar obfitości NO w różnych tkankach może pomóc w wyjaśnieniu jego funkcji. Jednak NO nie może być mierzony bezpośrednio ze względu na jego krótszy niż sekundowy okres półtrwania. Zazwyczaj metabolity NO, azotany i azotyny, są mierzone w celu oszacowania obfitości NO. Dzieje się tak, ponieważ cząsteczki te mogą być przekształcane in vivo w reakcjach redoks. Mniej powszechna metoda szacowania obfitości NO wymaga pomiaru stężenia cGMP, cząsteczki sygnałowej za NO. Jednak pomiar cGMP w tkankach jest rzadko wykonywany, mimo że stwarza możliwość lepszego zrozumienia funkcji NO w narządach. W związku z tym istnieje potrzeba opracowania protokołu do pomiaru stężeń cGMP w narządach i tkankach stałych. W tym protokole pobrane tkanki świni poddano homogenizacji, na przetworzonych próbkach przeprowadzono konkurencyjny test ELISA, a absorbancje przekształcono w nanomole cGMP na gram oryginalnej tkanki. Krótko mówiąc, protokół ten określa uproszczoną metodę pomiaru stężeń cGMP w tkankach stałych przy użyciu cyklicznego zestawu GMP ELISA.
Wprowadzenie
Cykliczny monofosforan guanozyny (cGMP) jest cząsteczką sygnałową zdolną do wywoływania zmian fizjologicznych poprzez szlak tlenku azotu (NO)-cGMP. W szlaku NO-cGMP NO wiąże się z rozpuszczalną cyklazą guanyliową, enzymem cytozolowym, który przekształca trifosforan guanozyny w cGMP, zwiększając jego aktywność katalityczną 1,2. Późniejszy wzrost stężeń cGMP aktywuje szlaki sygnałowe, które sprzyjają rozszerzeniu naczyń krwionośnych3, prowadząc do obniżenia ciśnienia krwi 4,5, głównej reakcji fizjologicznej charakterystycznej dla obecności NO in vivo. Ponadto wiadomo, że NO wpływa na funkcjeodpornościowe6, poprawia wytrzymałośćpodczas aktywności fizycznej4 i zapobiega krzepnięciu krwi poprzez hamowanie agregacji płytek krwi7.
Bezpośredni pomiar NO jest utrudniony ze względu na jego krótszy niż sekundowy okres półtrwania in vivo8 w większości tkanek biologicznych. W związku z tym wyjaśnienie fizjologicznych skutków NO wymaga metody pomiaru jego obfitości ex vivo. W związku z tym w stosowanych metodach ilościowych unika się bezpośredniego pomiaru NO. Powszechną metodą szacowania stężeń NO w tkankach jest pomiar bardziej stabilnych metabolitów NO: azotynów i azotanów 4,5,9,10,11. Główną komplikacją stosowania stężeń azotynów i azotanów jako miar obfitości NO jest to, że oba metabolity służą również odpowiednio jako prekursor NO i cząsteczka magazynująca. Metabolity NO, zwłaszcza azotany, występują obficie w niektórych produktach spożywczych. W związku z tym zmiany w stężeniach cGMP, przy czym cGMP jest następcą NO, są przydatne do szacowania ilości aktywnego NO, a obfitość NO można określić bez ingerencji wcześniej obecnych azotynów i azotanów.
Wcześniejsze badania opierały się na pomiarze stężeń cGMP w osoczu12 i płytkach krwi13, ale rzadziej spotykany jest pomiar stężeń cGMP w tkankach stałych. Możliwość pomiaru stężeń cGMP w tkankach stałych pozwoliłaby na scharakteryzowanie aktywności NO w konkretnych narządach. Celem było zidentyfikowanie uproszczonej metody pomiaru cGMP w tkankach stałych za pomocą konkurencyjnego testu ELISA. Jedną z zalet korzystania z konkurencyjnego testu ELISA jest to, że wymaga on sprzętu powszechnie spotykanego w większości laboratoriów zainteresowanych NO, takiego jak czytnik mikropłytek często używany do innych celów. Dla porównania, niektóre inne metody pomiarowe wymagają sprzętu rzadko używanego podczas eksperymentów skoncentrowanych na NO, takiego jak mikroskopy14,15, licznik scyntylacyjny16 lub laser17. Oprócz dostępności, pomiar cGMP za pomocą konkurencyjnego testu ELISA jest czuły; Stężenia cGMP można wykryć z dokładnością do 0,1 pikomolu (pmol) cGMP/ml18. Z niewielkimi modyfikacjami w protokole18 zestawu cGMP ELISA (Tabela materiałów) ustalono metodę pomiaru cGMP w tkankach stałych przy użyciu konkurencyjnego ELISA.
Protokół
Wszystkie procedury z udziałem zwierząt zostały przeprowadzone zgodnie z protokołem badań nad zwierzętami Oddziału Medycyny Molekularnej (Molecular Medicine Branch), zatwierdzonym przez Komitet ds. Opieki i Korzystania ze Zwierząt NIDDK (ASP K049-MMB-23). Pobieranie tkanek odbyło się zgodnie z wytycznymi ustalonymi przez Instytucjonalny Komitet ds. Opieki i Korzystania ze Zwierząt MedStar Health Research Institute (numer protokołu: 2006001373 2020-017). W badaniu wykorzystano młode świnie rasy Yorkshire cross (dwa samce i dwie samice) w wieku 3 miesięcy, o masie ciała od 30 do 35 kg. Rycina 1 przedstawia schemat etapów protokołu zestawu ELISA do oznaczania cGMP. Odczynniki i sprzęt wykorzystane w badaniu wyszczególniono w Tabeli materiałów.
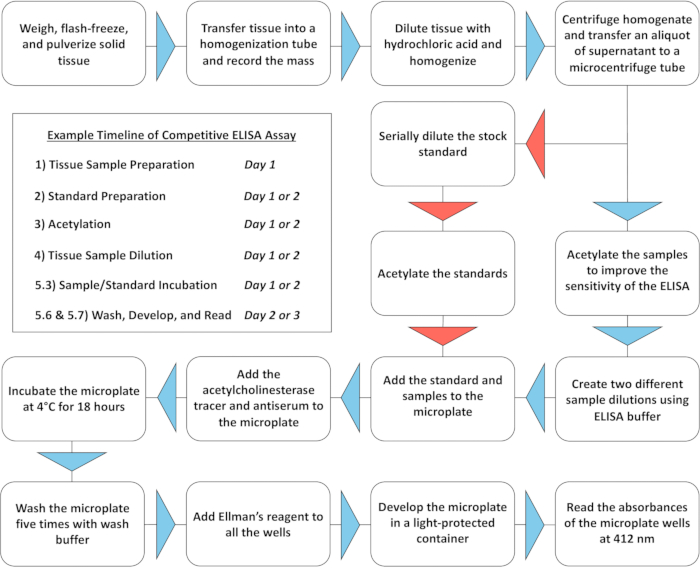
Rycina 1Schemat protokołu. Schemat przedstawiający poszczególne etapy protokołu zestawu ELISA do oznaczania cGMP. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
1. Przygotowanie próbki tkanki
UWAGA: Przed pobraniem tkanki poddano perfuzji roztworem heparyny sodowej, a następnie przechowywano w temperaturze -80 °C do momentu użycia. Szczegółowe informacje na temat pobierania próbek tkanek znajdują się w pracy Park et al.19.
- Obróbka próbki tkanki
- Przed rozpoczęciem procedury schłodzić rozdrabniacz do tkanek, pęsetę i łyżeczkę na suchym lodzie przez 10 min.
- Odważyć nadmiar tkanki, ponieważ część może zostać utracona podczas rozdrabniania (wydajność około 90%).
UWAGA: Wcześniej nadmiar rzędu 170 mg przyniósł pomyślne rezultaty. Masę można zwiększyć lub zmniejszyć, jeśli jest to pożądane. Należy upewnić się, że masa tkanki zapewni wystarczającą objętość próbki dla etapów acetylacji i rozcieńczania próbki tkanki. - Umieścić tkankę w rozdrabniaczu na suchym lodzie.
- Szybko zamrozić tkankę ciekłym azotem i poczekać do całkowitego odparowania ciekłego azotu.
- Założyć pokrywę rozdrabniacza i uderzyć w nią młotkiem 15 razy.
UWAGA: Jeśli zestaw do rozdrabniania jest niedostępny lub nie może być użyty, próbkę należy pociąć na jak najmniejsze kawałki za pomocą nożyczek lub skalpela, utrzymując ją w stanie zamrożonym lub co najmniej schłodzoną na lodzie. Krok ten zapewnia dobrą homogenizację i jest kluczowy, zwłaszcza w przypadku twardych tkanek. - Wytarować probówkę do homogenizatora kulkowego i przenieść rozdrobnioną tkankę do probówki za pomocą schłodzonej łyżeczki i pęsety.
- Zanotować masę tkanki dodanej do probówki homogenizatora kulkowego, aby móc później przeliczyć stężenia z molarności na mole na jednostkę masy. Próbkę przechowywać na lodzie.
- Do probówki do homogenizacji dodać objętość kwasu solnego 0,1 N w mikrolitrach równą wielokrotności masy tkanki wyrażonej w miligramach.
UWAGA: Odpowiednie rozcieńczenia sprawiają, że pomiary próbek mieszczą się w obrębie krzywej wzorcowej. Rozcieńczenia te dobiera się dla różnych typów tkanek metodą prób i błędów. W poprzednich eksperymentach pomyślne rezultaty uzyskano przy stosunku rozcieńczenia 1:10 dla tkanki mięśnia szkieletowego i 1:5 dla tkanki wątroby. Dla przykładu, przy rozcieńczaniu 100 mg tkanki, stosunek 1:10 wymagałby 1 000 µL kwasu solnego 0,1 N, a stosunek 1:5 wymagałby 500 µL. - Zhomogenizować próbki tkanki za pomocą homogenizatora kulkowego lub porównywalnej techniki.
UWAGA: Podczas homogenizacji okresowo chłodzić próbkę za pomocą lodu. Jeśli homogenizator kulkowy nie jest dostępny, można zastosować inne metody homogenizacji, które skutecznie niszczą komórki i tworzą homogenat tkankowy, w tym homogenizator rotacyjny lub homogenizator ultradźwiękowy. - Centryfugować homogenaty przez 30 min przy prędkości 17 000 x g, utrzymując temperaturę próbki 4 °C.
UWAGA: Niedostatecznie rozcieńczone homogenaty tkanki mięśnia szkieletowego stają się zbyt lepkie i żelowe. Jest to najlepiej widoczne po wirowaniu. - Przenieść nadsącz do probówki do mikrocentryfugi i wirować go przez 10 min przy 17 000 x g, utrzymując temperaturę 4 °C.
- Przenieść alikwot nadsączu do probówki do mikrocentryfugi i przechowywać próbkę na lodzie.
UWAGA: Acetylacja 250 μL nadsączu przyniosła pomyślne rezultaty. Aby wstrzymać protokół, zamrozić te próbki w temperaturze -80 °C i przechowywać do 48 h. Zaleca się, aby objętość nadsączu do procesu acetylacji odmierzyć w dniu przeprowadzania acetylacji.
2. Standardowe przygotowanie
UWAGA: Standardy należy przygotować w dniu przygotowania mikropłytki ELISA.
- Przygotowanie buforu do testu ELISA
- Dodać rozmrożony 10x koncentrat buforu ELISA do szklanej butelki zawierającej 90 mL wody ultraczystej.
UWAGA: Należy starannie wypłukać pozostałości 10x koncentratu buforu ELISA przygotowanym buforem ELISA i przelać go z powrotem do szklanej butelki. Przechowywać w temperaturze 4 °C przez maksymalnie 2 miesiące.
- Dodać rozmrożony 10x koncentrat buforu ELISA do szklanej butelki zawierającej 90 mL wody ultraczystej.
- Przygotowanie roztworu podstawowego standardu
- Dodać 1 mL buforu ELISA do fiolki ze standardem i wstrząsnąć do rozpuszczenia.
UWAGA: Przechowywać w temperaturze 4 °C przez maksymalnie 6 tygodni.
- Dodać 1 mL buforu ELISA do fiolki ze standardem i wstrząsnąć do rozpuszczenia.
- Seryjne rozcieńczenie standardów
- Oznaczyć jedną probówkę jako standard B oraz dziewięć probówek jako standard 0 do standard 8.
- Dodać 9,9 mL buforu ELISA do probówki oznaczonej jako standard B.
- Przenieść 100 µL roztworu podstawowego standardu (300 pmol/mL cGMP) do probówki standard B i dokładnie wymieszać na wortexie.
- Przenieść 1 000 µL roztworu z probówki standard B do probówki standard 1.
- Dodać 500 μL buforu ELISA do probówki oznaczonej jako standard 0 oraz do probówek od standard 2 do standard 8.
- Wymieszać standard 1 na wortexie, a następnie przenieść 500 µL roztworu ze standardu 1 do standardu 2.
- Wymieszać standard 2 na wortexie, a następnie przenieść 500 µL roztworu ze standardu 2 do standardu 3.
- Kontynuować przenoszenie 500 μL ze standardu n-1 do standardu n, upewniając się, że standardy są dokładnie mieszane na wortexie po każdym dodaniu.
- Odrzucić 500 µL roztworu ze standardu 8.
UWAGA: Aby uzyskać optymalną krzywą standardową, należy mieszać standardy na wortexie zgodnie z instrukcją. Objętość standardów od 0 do 8 wynosi 500 μL. Przechowywać standardy w temperaturze 4 °C do momentu użycia. Standardy należy wykorzystać w dniu ich przygotowania.
3. Acetylacja
UWAGA: Podczas reakcji acetylacji do grupy hydroksylowej 2' cząsteczki cGMP dodawana jest grupa acetylowa, co modyfikuje strukturę cGMP i prowadzi do zwiększenia powinowactwa wiązania przeciwciał, zwiększając czułość analizy około 10-krotnie. W próbkach zawierających powyżej 1,0 pmol/mL cGMP pomiary można przeprowadzać bez acetylacji, a ten etap można pominąć. Konieczność przeprowadzenia acetylacji należy ustalić eksperymentalnie dla każdego przypadku z osobna.
- Przygotowanie wodorotlenku potasu
- Do butelki z wodorotlenkiem potasu dodać 10 mL wody ultrapure, aby uzyskać roztwór 4 M.
UWAGA: Nie zakładać zakrętki na butelkę podczas rozpuszczania wodorotlenku potasu. Przechowywać przez kilka miesięcy w temperaturze pokojowej.
- Do butelki z wodorotlenkiem potasu dodać 10 mL wody ultrapure, aby uzyskać roztwór 4 M.
- Acetylowanie próbek tkanek
- Do 250 μL alikwotu próbki dodać 50 μL (5:1) 4 M wodorotlenku potasu, a następnie niezwłocznie dodać 12,5 μL (20:1) bezwodnika octowego.
- Mieszać w wirówce Vortex przez 15 s.
- Do próbki dodać 12,5 μL 4 M wodorotlenku potasu i krótko mieszać w wirówce Vortex.
- Opcjonalnie: Jeśli próbki mięśnia szkieletowego zastygną po etapach acetylowania, odwirować próbki przy 17 000 x g przez 10 min.
- Acetylowanie standardów
- Do probówki oznaczonej jako standard 0 dodać 100 μL 4 M wodorotlenku potasu, a następnie niezwłocznie 25 μL bezwodnika octowego.
- Mieszać standard w wirówce Vortex przez 15 s.
- Do standardu dodać 25 μL 4 M wodorotlenku potasu i krótko mieszać w wirówce Vortex.
- Powtórzyć te kroki dla pozostałych ponumerowanych standardów.
UWAGA: Wszystkie próbki i standardy należy mieszać w wirówce Vortex przez ten sam czas, aby zapewnić spójność wyników.
4. Rozcieńczanie próbek tkanek
- Do probówki do mikrowirówki dodać wcześniej określone proporcje buforu do testu ELISA oraz alikwot acetylowanej próbki.
UWAGA: Dla każdej próbki wymagane są dwa różne rozcieńczenia. Proporcje rozcieńczeń, dzięki którym zmierzone stężenia cGMP mieszczą się w zakresie krzywej wzorcowej, ustala się metodą prób i błędów. Rozcieńczenia muszą zostać określone eksperymentalnie dla każdego rodzaju tkanki, aby wartość procentowa mieściła się w przedziale od 20% do 80%. W poprzednich eksperymentach z zastosowaniem tkanek wątroby proporcje rozcieńczeń 1:2 i 1:3 pozwoliły uzyskać prawidłowe wartości procentowe . Proporcje te przyniosły również pomyślne wyniki dla mięśni szkieletowych. Jednakże różnice w tkance mięśni szkieletowych mogą wymagać zastosowania większych rozcieńczeń próbek.
- Opcjonalnie: Jeśli po dodaniu próbki tkanki do buforu ELISA powstanie osad, odwiruj próbkę przez 10 min przy 17 000 x g.
5. Przygotowanie mikropłytki do testu ELISA
- Przygotowanie znacznika acetylcholinesterazy (AChE)
- Do fiolki ze znacznikiem AChE dodać 6 mL buforu ELISA i delikatnie wstrząsnąć w celu rozpuszczenia.
UWAGA: Próbkę przechowywać w temperaturze 4 °C przez maksymalnie 2 tygodnie. Nie mieszać w wortexie.
- Do fiolki ze znacznikiem AChE dodać 6 mL buforu ELISA i delikatnie wstrząsnąć w celu rozpuszczenia.
- Przygotowanie antyserum
- Do fiolki z antyserum dodać 6 mL buforu ELISA i delikatnie wstrząsnąć w celu rozpuszczenia.
UWAGA: Przechowywać w temperaturze 4 °C przez co najmniej 4 tygodnie. Nie mieszać w wortexie.
- Do fiolki z antyserum dodać 6 mL buforu ELISA i delikatnie wstrząsnąć w celu rozpuszczenia.
- Inkubacja próbek i standardów
- Wymieszać standard 0 w wortexie.
- Do mikropłytki ELISA dodać aliquoty standardu 0 o objętości 50 µL do 5 dołków (NSB i B0; Rysunek 2).
- Do dwóch dołków (NSB; Rysunek 2) zawierających standard 0 dodać 50 μL buforu ELISA.
- Za pomocą jednej końcówki pipety dodać aliquoty standardów od 1 do 8 o objętości 50 µL do mikropłytki ELISA w duplikacie. Należy zacząć od standardu o najniższym stężeniu (standard 8), a następnie przechodzić do kolejnych, aż do dodania wszystkich standardów.
UWAGA: Przed dodaniem każdego standardu do dołka należy go kilkakrotnie zasysać i wydmuchiwać. Przed dodaniem standardów do dołków wymieszać je w wortexie. - Każdą próbkę wymieszać w wortexie przed dodaniem aliquotów o objętości 50 µL do dołków w duplikacie lub triplikacie.
- Do każdego dołka NSB, B0, standardu i próbki dodać 50 μL znacznika AChE (Rysunek 2).
- Do każdego dołka B0, standardu i próbki dodać 50 μL antyserum (Rysunek 2).
- Przykryć mikropłytkę ELISA i inkubować w temperaturze 4 °C przez 18 h.
UWAGA: Należy mieszać w wortexie zawsze wtedy, gdy jest to wskazane, aby uzyskać spójne wyniki.
- Przygotowanie buforu do mycia
- Do szklanej butelki dodać 200 mL wody ultrapure oraz 500 µL koncentratu buforu do mycia 400x.
- Za pomocą strzykawki dodać 100 µL polisorbatu 20 do szklanej butelki.
- Delikatnie wstrząsnąć butelką w celu wymieszania.
UWAGA: Bufor do mycia przechowywać w temperaturze 4 °C przez maksymalnie 2 miesiące. W przypadku pełnej mikropłytki 96-dołkowej z próbkami należy podwoić objętości wody ultrapure, koncentratu buforu do mycia 400x oraz polisorbatu 20. - Przed użyciem przelać bufor do mycia do butelki z atomizerem.
- Przygotowanie odczynnika Ellmana
UWAGA: Przygotować w dniu rozwoju mikropłytki ELISA.- Do naczynia chronionego przed światłem dodać 20 mL wody ultrapure.
- Użyć części wody ultrapure do rozpuszczenia odczynnika Ellmana.
- Przenieść odczynnik Ellmana do naczynia chronionego przed światłem.
- Użyć odczynnika Ellmana do wypłukania butelki, w której się znajdował.
- Przenieść cały roztwór z powrotem do naczynia chronionego przed światłem za pomocą pipety.
- Mycie mikropłytki ELISA
- Usunąć zawartość mikropłytki ELISA poprzez jej odwrócenie. Upewnić się, że dołki są puste, uderzając odwróconą mikropłytką o ręcznik papierowy.
- Wypełnić dołki buforem do mycia za pomocą butelki z atomizerem.
- Delikatnie agitować mikropłytkę ELISA przez 5 s, a następnie wylać bufor do mycia i odprowadzić pozostałą ciecz na ręcznik papierowy.
- Wypełnić mikropłytkę ELISA buforem do mycia, delikatnie agitować mikropłytkę przez 30 s, a następnie wylać zawartość. Powtórzyć tę czynność cztery razy, po każdym wylaniu uderzając mikropłytką o ręcznik papierowy, aby usunąć pozostałą ciecz.
UWAGA: Aby uniknąć niedokładnych odczytów absorbancji, należy dokładnie umyć mikropłytkę ELISA.
- Rozwój i odczyt mikropłytki ELISA
- Przenieść odczynnik Ellmana do zbiornika.
- Szybko, za pomocą pipety wielokanałowej, nanieść aliquoty odczynnika Ellmana o objętości 200 µL do dołków blank, NSB, B0, TA, standardów oraz próbek.
- Do dołka TA dodać 5 μL znacznika AChE.
- Przykryć mikropłytkę ELISA parafilmem, umieścić ją w naczyniu chronionym przed światłem i inkubować w temperaturze pokojowej przez 60-90 min z agitacją.
UWAGA: Dołków B0 należy używać jako wskaźników odpowiedniego czasu inkubacji. Idealne dołki B0 powinny mieć widoczny żółty kolor, ale nie być ciemne. - Zdjąć film parafinowy i odczytać mikropłytkę ELISA przy gęstości optycznej 412 nm.
UWAGA: Dołki B0 z absorbancją między 0,3 AU a 1,0 AU (po odjęciu wartości blank) wskazują, że mikropłytka ELISA została rozwinięta prawidłowo. - Opcjonalnie: Jeśli mikropłytka ELISA jest niedorozwinięta, należy ponownie przykryć ją filmem parafinowym i inkubować w naczyniu chronionym przed światłem przez dodatkowy czas. Jeśli mikropłytka ELISA jest nadmiernie rozwinięta, należy wylać odczynnik Ellmana, raz wypłukać buforem do mycia i ponownie rozwinąć mikropłytkę odczynnikiem Ellmana.
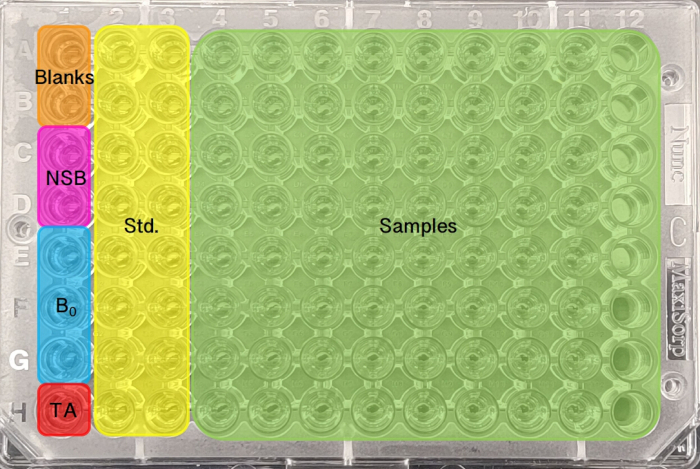
Rysunek 2: Układ mikropłytki. Przykład układu mikropłytki dla konkurencyjnego testu ELISA. NSB oznacza studzienkę wiązania niespecyficznego. B0 oznacza studzienkę maksymalnego wiązania. TA oznacza studzienkę całkowitej aktywności. Std. oznacza studzienkę standardu z odpowiadającym jej numerem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
6. Przeliczanie na stężenie
- Obliczenia znacznika związanego AChE
- Obliczyć średnią absorbancję dwóch próbek ślepych i odjąć tę średnią od absorbancji każdej dołka.
UWAGA: W pozostałych obliczeniach należy stosować absorbancje po odjęciu wartości próbek ślepych. - Obliczyć średnią absorbancję dla dołków NSB, B0 oraz próbek ślepych.
- Użyć poniższego równania do obliczenia skorygowanej absorbancji B0 :
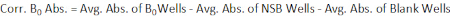
UWAGA: Corr. oznacza wartość skorygowaną, Abs. oznacza absorbancję, a Avg. oznacza średnią. Jeśli średnia absorbancja próbek ślepych (po odjęciu średniej dla próbek ślepych) jest liczbą ujemną, w obliczeniach należy przyjąć wartość zero. - Obliczyć stosunek dla każdego standardu i próbki, korzystając z poniższego równania:

- Pomnożyć stosunek każdej próbki przez 100, aby obliczyć procent .
UWAGA: Próbki mieszczące się w przedziale od 20% do 80% znajdują się na krzywej wzorcowej.
- Obliczyć średnią absorbancję dwóch próbek ślepych i odjąć tę średnią od absorbancji każdej dołka.
- Obliczenia krzywej wzorcowej
- Obliczyć średni stosunek dla powtórznych pomiarów w dołkach każdego standardu (od 1 do 8).
- Obliczyć logit średniego stosunku każdego standardu, korzystając z poniższego równania:
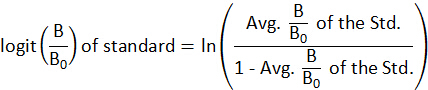
- Przyjmując znane stężenia każdego standardu (Tabela 1) jako wartości X oraz logit
 każdego standardu jako wartości Y, obliczyć nachylenie i punkt przecięcia z osią Y.
- Obliczyć współczynnik determinacji, przyjmując log10 znanych stężeń standardów cGMP jako wartości X oraz logit każdego standardu jako wartości Y.
UWAGA: Należy sprawdzić, czy współczynnik determinacji jest bliski 1.
- Obliczyć średni stosunek
- Obliczenia stężenia cGMP w pmol/mL
- Obliczyć logit każdej próbki, korzystając z poniższego równania:
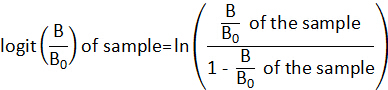
- Aby obliczyć stężenie cGMP w każdej próbce (w pikomolach cGMP na mililitr próbki), należy zastosować poniższe równanie:
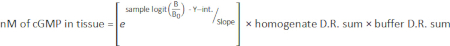
UWAGA: D.R. oznacza stopień rozcieńczenia. Suma D.R. homogenatu dla próbek wątroby rozcieńczonych kwasem solnym w stosunku 1:5 wynosi 6. Suma D.R. buforu dla próbek wątroby rozcieńczonych buforem ELISA w stosunku 1:2 wynosi 3. Zatem wyrazy w nawiasach są mnożone przez 18.
- Obliczyć logit
- Obliczenia stężenia cGMP w nmol/g
- Obliczyć liczbę nanomoli cGMP na dołek za pomocą następującego równania:

- Obliczyć masę tkanki w gramach w każdej acetylowanej próbce za pomocą następującego równania:
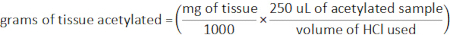
UWAGA: „mg of tissue” to masa tkanki dodana do probówki do homogenizacji w miligramach. „volume of HCl used” to objętość 0,1 N kwasu solnego użytego do rozcieńczenia próbek przed homogenizacją. - Obliczyć masę tkanki w gramach w każdej próbce rozcieńczonej buforem ELISA za pomocą następującego równania:

UWAGA: „volume of sample diluted” to objętość próbki rozcieńczonej buforem ELISA. „250 μL” to objętość próbki acetylowanej. Wymienione „reagents” to odczynniki do acetylowania: 4 M KOH i bezwodnik octowy. - Obliczyć masę tkanki w gramach na dołek za pomocą następującego równania:
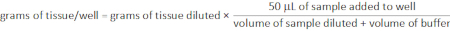
UWAGA: „volume of buffer” to objętość buforu ELISA użytego do rozcieńczenia próbek tkanki przed ich dodaniem do dołków. - Podzielić liczbę nanomoli cGMP na dołek przez masę tkanki w gramach na dołek, aby obliczyć stężenie cGMP w nmol/g.
- Obliczyć liczbę nanomoli cGMP na dołek za pomocą następującego równania:
| Numer standardu | Stężenia cGMP (pmol/mL) |
| Standard 1 | 3.0 |
| Standard 2 | 1.5 |
| Standard 3 | 0.75 |
| Standard 4 | 0.375 |
| Standard 5 | 0.1875 |
| Standard 6 | 0.09375 |
| Standard 7 | 0.046875 |
| Standard 8 | 0.0234375 |
Tabela 1: Standardowe stężenia. Znane stężenia standardów od 1 do 8.
Wyniki
Świnie domowe rasy Yorkshire, którym podawano w diecie chlorek sodu (0,15 mmol/kg) lub azotan znakowany 15N (0,15 mmol/kg) raz dziennie przez pięć kolejnych dni w formie bolusa w karmie, zostały poddane perfuzji roztworem heparyny sodowej (0,9% chlorku sodu) przed pobraniem tkanek; wszystkie szczegóły poboru zostały opublikowane wcześniej19. Stężenia cGMP w mięśniach pośladkowych i wątrobach czterech świń domowych rasy Yorkshire zmierzono zgodnie z opisanym protokołem ELISA. Tkanki wątroby rozcieńczono w stosunku 1:5, a mięśnie pośladkowe w stosunku 1:10, używając 0,1 N kwasu solnego (HCl) w celu wytrącenia białek. Homogenaty rozcieńczone HCl poddano acetylacji, a następnie rozcieńczono buforem ELISA w stosunku 1:2 i 1:3 dla próbek wątroby i mięśnia pośladkowego. Stężenia cGMP zmierzono zgodnie z powyższym opisem. Wartości absorbancji przeliczono na pikomole cGMP na mililitr przygotowanej próbki, a następnie na nanomole cGMP na gram tkanki (nmol/g tkanki), zgodnie z powyższym protokołem.
Stężenia cGMP zmierzone w tkance wątroby dostarczyły optymalnych wyników eksperymentalnych w powyższych warunkach. Stężenia cGMP w grupie kontrolnej i grupie traktowanej azotanami w wątrobie świni wyniosły odpowiednio 0,0202 nmol/g ± 0,003 nmol/g tkanki oraz 0,0364 nmol/g ± 0,011 nmol/g tkanki (Rysunek 3). Kilka wartości potwierdza wiarygodność wyników. Absorbancje studni B0 po odjęciu ślepej próby, mieszczące się w zakresie od 0,466 do 0,475, mieszczą się w przedziale od 0,3 AU do 1,0 AU, co potwierdza prawidłowy rozwój mikro płytki z odczynnikiem Ellmana. Wysoka jakość krzywej wzorcowej jest wykazana zarówno przez stopniowy wzrost absorbancji od standardu 1 do standardu 8, jak i liniowość krzywej wzorcowej, potwierdzoną współczynnikiem determinacji wynoszącym 0,99. Procent dla każdej zmierzonej studni (31,5%-71,2%) mieści się między 20% a 80%, co potwierdza, że wszystkie próbki mieszczą się na krzywej wzorcowej. Próbki posiadające określone charakterystyki nadają się do interpretacji.
Stężenia cGMP zmierzone w tkance mięśnia pośladkowego przyniosły suboptimalne wyniki eksperymentalne. Oznaczenie suboptimalne przypisano wynikom dla mięśnia pośladkowego, ponieważ większość wartości procentowych dla dołków z mięśnia pośladkowego (3,69%–27,3%) spadła poniżej 20%, co wskazuje, że do uzyskania absorbancji mieszczących się na krzywej wzorcowej wymagane były bardziej rozcieńczone próbki. Stężenia cGMP w grupie kontrolnej oraz w grupie traktowanej azotanami w mięśniu pośladkowym świni wynoszą odpowiednio 1,22 nmol/g ± 0,49 nmol/g tkanki oraz 0,732 nmol/g ± 0,18 nmol/g tkanki (wykres nie przedstawiono). Próbki mięśnia pośladkowego dzielą wartości absorbancji z dołkami B0 i standardami próbek wątroby. Wykorzystanie tych suboptimalnych próbek może prowadzić do błędnych wniosków; w związku z tym konieczne jest przygotowanie bardziej rozcieńczonych próbek i ponowny pomiar stężeń cGMP.
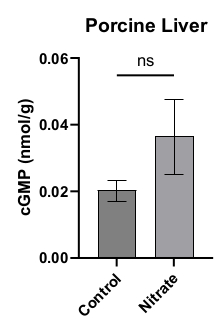
Rycina 3: Stężenie cGMP w tkance wątroby. Średnie stężenie cGMP w wątrobie świń traktowanych chlorkiem sodu (0,15 mmol/kg) lub azotanem znakowanym 15N (0,15 mmol/kg) w nmol/g tkanki. n = 4; słupki błędów oznaczają odchylenie standardowe; dane analizowano za pomocą testu t Welcha; ns oznacza brak istotności statystycznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Protokół zawiera instrukcje dotyczące kroków wymaganych do pomiaru stężeń cGMP w tkankach stałych przy użyciu konkurencyjnego testu ELISA. Różnice w stężeniach cGMP mogą wskazywać na różnice w obfitości NO w tkankach. Badając te różnice w tkankach stałych, można uzyskać informacje na temat NO w różnych narządach.
W protokole próbki tkanek zostały najpierw zhomogenizowane w ramach przygotowań do testu ELISA. Zaczęło się od błyskawicznego zamrożenia masy tkanki stałej, a następnie sproszkowania jej. Rozbijanie tkanek przed etapem homogenizacji ma na celu pomóc homogenizatorowi kulkowemu w lizie komórek. Tkanki homogenizowano w 0,1 N kwasie solnym w celu wytrącenia białek, technika stosowana w innych metodach 20,21. Na koniec ciała stałe i osad oddzielono od rozpuszczalnych składników poprzez odwirowanie. Aby uzyskać krzywą wzorcową, zapas cGMP (300 pmol cGMP/ml) został seryjnie rozcieńczony w celu wytworzenia ośmiu różnych wzorców. Wzorce i próbki poddano acetylacji w celu poprawy czułości testu poprzez wykrywanie stężeń do 0,1 pmol cGMP/ml. Ten wzrost czułości osiąga się, gdy grupa acetylowa tworzy wiązanie z cGMP, poprawiając zdolność każdego przeciwciała (obecnego w surowicy) do wiązania się z acetylowanym cGMP18. Acetylacja zarówno wzorców, jak i próbek zapewnia jednorodność wiązania cGMP między studzienkami. Etap acetylacji można pominąć zarówno w przypadku wzorców, jak i próbek, jeżeli oczekuje się, że stężenie cGMP w studzienkach mikropłytki przekroczy 1,0 pmol/ml18.
W ramach przygotowań do dodania próbek do studzienek, próbki rozcieńczano buforem ELISA. Dodatkowe rozcieńczenie pozwoliło na to, aby próbki spadły na krzywą wzorcową i bardziej przypominały zawartość studni NSB, B0 i standardowych, tworząc jednorodność. Wraz z próbkami i wzorcami w studzienkach miesza się kilka innych roztworów. W studzienkach NSB dodaje się bufor ELISA (z odczynnikami acetylacji i bez nich), podczas gdy surowica jest wstrzymywana. Ma to na celu określenie ilości znacznika AChE (acetylocholinoesterazy związanej z cGMP), który wiąże się z mysią IgG przylegającą do dołka przy braku specyficznego przeciwciała wchodzącego w skład surowicy. Studzienki B0 zawierały bufor ELISA (z odczynnikami acetylacji), znacznik AChE i surowicę odpornościową; w związku z tym studzienki B0 wykazują zdolność wiązania znacznika AChE bez konkurencji cGMP. Po odpowiednim napełnieniu wszystkich studzienek mikropłytka jest inkubowana, a następnie myta. Do studni dodano odczynnik Ellmana. Wreszcie, znacznik AChE został dodany do TA dobrze po dodaniu odczynnika Ellmana. To dobrze reprezentuje aktywność katalityczną znacznika AChE niezależnie od tego, ile znacznika było związane z mikropłytką przez przeciwciała. Mikropłytka została opracowana w temperaturze pokojowej, dzięki czemu znacznik AChE może katalizować reakcję kolorymetryczną.
Kilka etapów protokołu może zmienić wyniki testu; Należy zachować szczególną ostrożność podczas wykonywania kolejnych kroków, aby uzyskać optymalne wyniki. Określenie odpowiednich rozcieńczeń dla każdego typu tkanki dla etapu homogenizacji i po acetylacji jest konieczne w celu zagwarantowania, że próbki mieszczą się na krzywej wzorcowej. Podczas przygotowywania wzorców, roztwory powinny być dokładnie zawirowane lub wymieszane przed usunięciem podwielokrotności lub po dodaniu podwielokrotności. Ten krok jest ważny, aby osiągnąć oczekiwane stężenia cGMP dla każdego wzorca. Podczas etapów acetylacji każdy wzorzec i próbka powinny być wirowane przez ten sam czas, aby uzyskać spójne odczyty absorbancji. Wzorce i próbki powinny być również wirowane bezpośrednio przed dodaniem podwielokrotności do odpowiedniego studzienki. Praktyka ta skutkuje dokładniejszymi stężeniami cGMP. Dokładne mycie mikropłytki poprawia również dokładność wartości absorbancji, ponieważ usuwa cały niezwiązany znacznik AChE ze studzienki. Po dodaniu odczynnika Ellmana należy pozostawić odpowiedni czas na rozwinięcie się mikropłytki, zwracając uwagę na kolor i, co najważniejsze, absorbancję studzienek B0 . Ważne jest, aby zdać sobie sprawę, że stężenie cGMP między duplikatami lub potrójnymi może różnić się bardziej w próbkach o niższych poziomach cGMP w porównaniu z próbkami o wyższych stężeniach. Pomiar bardziej skoncentrowanej próbki może pomóc w rozwiązaniu tego problemu. Dodatkowo, aby uwzględnić wszelkie różnice między mikropłytkami, próbki tego samego typu tkanki powinny być mierzone na tej samej płytce, gdy tylko jest to możliwe. Oczekuje się, że przestrzeganie tych wytycznych poprawi jakość danych wynikowych testu.
Powyższy protokół można ekstrapolować na inne tkanki miękkie, stałe. Dalszy rozwój podrozdziału dotyczącego przygotowania tkanek w powyższym protokole może doprowadzić do opracowania metody odpowiedniej do przetwarzania tkanek twardych, w tym kości, które mogą być interesujące ze względu na swoje unaczynienie. Ciągły rozwój tej techniki może zaowocować uzyskaniem metody odpowiedniej do pomiaru stężeń cGMP w szerokiej gamie tkanek stałych, co zaowocuje użyteczną metodą zbierania dodatkowych informacji na temat obfitości NO w praktycznie każdej tkance. Chociaż konkurencyjny protokół ELISA, o którym mowa powyżej, jest przydatną techniką pomiaru cGMP i szacowania obfitości NO, ma dwa istotne ograniczenia: (1) Ten test nie rozróżnia cGMP syntetyzowanego przez rozpuszczalną cyklazę guanylilu i cGMP syntetyzowanego przez cząsteczkową cyklazę guanylilu (pGC). Peptydy natriuretyczne stymulują aktywność pGC22 , a zatem zmiany w cGMP przez ten szlak nie wskazują na zmiany w obfitości NO; (2) Dodatkowo enzymy fosfodiesterazy (PDE) wpływają na wyniki testu ELISA. Kilka PDE hydrolizuje cGMP, zmniejszając jego stężenie po stymulacji sGC przez NO23. W związku z tym aktywność katalityczna PDE może przesłaniać związek między stężeniami cGMP a obfitością NO. Dodanie inhibitora PDE5, takiego jak sildenafil, w celu zapobieżenia utracie cGMP jest wskazane w przypadku eksperymentów skoncentrowanych przede wszystkim na uzyskaniu dokładnych stężeń cGMP, w przeciwieństwie do uzyskiwania pomiarów w celu obserwacji trendów stężeń cGMP. Inhibitory PDE5 mogą być podawane zwierzętom w postaci syldenafilu na około 1 godzinę przed pobraniem próbki (efekty utrzymują się do 4 godzin24) lub, jeśli takie podanie nie jest możliwe, syldenafil można dodać do pobranych próbek. Podczas hamowania PDE po pobraniu tkanek należy dodać syldenafil do 0,1 N kwasu solnego, aby tkanki były homogenizowane w obecności syldenafilu. Należy wykonać pomiary z syldenafilem i bez niego, aby upewnić się, że nie ma wzajemnych oddziaływań między leczeniem zwierząt a syldenafilem.
Nawet ze swoimi ograniczeniami, test jest wykorzystywany jako informacyjny wgląd w dalszą transmisję sygnału NO. Podsumowując, sprzężenie pomiaru stężeń cGMP w tkankach stałych z innymi metodami pomiaru NO pozwala na lepsze zrozumienie wpływu NO na narządy.
Oświadczenia
Autorzy oświadczają, że nie mają konfliktu interesów.
Podziękowania
Praca ta była wspierana przez grant 1ZIADK025104-18 przyznany Alanowi N. Schechterowi przez NIDDK/NIH.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1 ml przezroczystej strzykawki doustnej BD | Becton Dickinson | 50382903052177 | |
| 14 ml probówka z okrągłym dnem | Sokół | 352059 | |
| Mikroprobówki 2,0 ml, różne | Olympus Plastics | 24-283A | |
| 30-300 i mikro; Pipeta wielokanałowa L | Eppendorf powiedział: | 3125000052 | |
| Bezwodnik octowy (w zestawie cGMP) | Firma chemiczna Kajmanów | 400031 | 98% czysty Zagrożenie: Łatwopalny,: poważnie poparzenia skóry, uszkodzenie oczu, Ostra toksyczność Bezpieczna obsługa: Przechowywać z dala od źródeł zapłonu, pracować w przewiewnym miejscu, nosić rękawice |
| cGMP Acetylocholinoesterazy Znacznik (w zestawie cGMP) | Firma chemiczna Kajmanów | 481020 | fosforan potasu dwuzasadowy, chlorek sodu, fosforan potasu jednozasadowy, albumina bydlęca, azydek sodu, EDTA, cGMP AChE tracer Hazard: Zagrożenie dla zdrowia: toksyczność narządowa spowodowana powtarzającym się narażeniem, : uszkodzenie oczu, Działa drażniąco na skórę i drogi oddechowe Bezpieczna obsługa: Praca w wentylowanym pomieszczeniu, Nosić rękawiczki |
| Surowica odpornościowa cGMP ELISA (w zestawie cGMP) | Firma chemiczna Kajmanów | 481022 | fosforan potasu dwuzasadowy, chlorek sodu, fosforan potasu jednozasadowy, albumina bydlęca, Azydek sodu, EDTA, królicze anty-cGMP poliklonalne Antysurowica Zagrożenie: Zagrożenie dla zdrowia: toksyczność narządowa spowodowana powtarzającym się narażeniem, : uszkodzenie oczu, Działa drażniąco na skórę i drogi oddechowe, Toksyczność ostra Bezpieczna obsługa: Pracuj w wentylowanym pomieszczeniu, nosić rękawice |
| Wzorzec cGMP ELISA (w zestawie cGMP) | Firma chemiczna Kajmanów | 481024 | fosforan potasu dwuzasadowy, chlorek sodu, fosforan potasu jednozasadowy, albumina bydlęca, azydek sodu, EDTA, norma cGMP Zagrożenie: Zagrożenie dla zdrowia: toksyczność narządowa spowodowana powtarzającym się narażeniem, : uszkodzenie oczu, Działa drażniąco na skórę i drogi oddechowe Bezpieczny Obsługa: Pracuj w wentylowanym pomieszczeniu, nosić rękawice |
| Cykliczny zestaw ELISA GMP | Firma chemiczna Kajmanów | 581021 | |
| Koncentrat buforowy ELISA 10X (w zestawie cGMP) | Firma chemiczna Kajmanów | 400060 | 1 M fosforan, 1% BSA, 4 M chlorek sodu, 10 mM EDTA, 0,1% azydek sodu Zagrożenie: Zagrożenie dla zdrowia: toksyczność narządów spowodowana powtarzającym się narażeniem, : uszkodzenie oczu, Działa drażniąco na skórę i drogi oddechowe Bezpieczny Obsługa: Pracuj w przewiewnym miejscu, przechowuj w pojemniku z zamykaną pokrywą, nosić rękawice |
| Zbiornik odczynnika ELISA | Pierce (obecnie Thermo Fisher Scientific) | 15075 | |
| Odczynnik Ellmana (w zestawie cGMP) | Firma chemiczna Kajmanów | 400050 | fosforan potasu dwuzasadowy, chlorek sodu, fosforan potasu jednozasadowy, acetylotiocholina (jodek), kwas 5,5'-ditiobis-(2-nitrobenzoesowy) Zagrożenie: Ostra toksyczność, Zagrożenie dla zdrowia: toksyczność narządowa,: Uszkodzenie oczu, Drażniące skórę, Drażniący reprymalny Bezpieczna obsługa: Pracuj w przewiewnym miejscu, nosić rękawice |
| Kwas solny | Sigma-Aldrich | 320331 | Hazard:: powoduje korozję metalu, silne oparzenia skóry, Uszkodzenie oczu, Działa drażniąco na drogi oddechowe Bezpieczna obsługa: Pracuj w przewiewnym miejscu, nosić rękawice |
| Ciekły azot | Tlen Roberta | Azot Zagrożenie: Sprężony gaz: Ryzyko oparzeń kriogenicznych, frosbite, uduszenia Bezpieczna obsługa: Pracuj w wentylowanym miejscu, nosić rękawice | |
| Mysia płytka pokryta IgG Anti-Rabbit (w zestawie cGMP) | Firma chemiczna Kajmanów | 400006 | Zagrożenie: Brak |
| Nowy klasyczny balans MF | Mettler Toledo | ||
| Wytrząsarka orbitalna | Stovall Life Science, Inc. (obecnie IBI Scientific) | 15-453-211 (Różnie) | |
| Parafilm | Firma Bemis, Inc. | 3023-4526 (Różnie) | |
| Polisorbat 20 (w zestawie cGMP) | Firma chemiczna Kajmanów | 400035 | Zagrożenie: Brak |
| Wodorotlenek potasu (w zestawie cGMP) | Firma chemiczna Kajmanów | 400029 | 85% czysty Zagrożenie:: powoduje korozję metali i skóry, Uszkodzenie oczu, Toksyczność ostra Bezpieczna obsługa: Pracuj w przewiewnym miejscu, nosić rękawice |
| Homogenizator Precellys Evolution | Technologie Bertin | PE000062-PEVO0-A | |
| Zestaw do lizowania Precellys Homogenizacja tkanek twardych | Technologie Bertin | P000911-LYSK0-A | |
| Czytnik mikropłytek Sense | KRYJÓWKA | 425-301 | |
| Wirówka Sorvall Legend Micro 17R | Thermo Fisher Naukowy | 75002441 | |
| Rozdrabniacz tkanek | Kruszarka do komórek | Zestaw do kruszenia komórek | |
| Dżin wirowy 2 | Branże naukowe | SI-0246 powiedział: | |
| Butelka do mycia | Sigma-Aldrich | Z423092 | |
| Koncentrat buforowy do przemywania 400X (w zestawie cGMP) | Firma chemiczna Kajmanów | 400062 | fosforan potasu dwuzasadowy, fosforan potasu jednozasadowy, woda Zagrożenie:: Uszkodzenie oczu, Ostra toksyczność, Działa drażniąco na skórę, Toksyczność narządowa Bezpieczna obsługa: Pracuj w przewiewnym miejscu, nosić rękawice |
Bibliografia
- Dierks, E. A., Burstyn, J. N. Nitric oxide (NO), the only nitrogen monoxide redox form capable of activating soluble guanylyl cyclase. Biochem Pharmacol. 51 (12), 1593-1600 (1996).
- Koglin, M., Behrends, S. A functional domain of the alpha1 subunit of soluble guanylyl cyclase is necessary for activation of the enzyme by nitric oxide and YC-1 but is not involved in heme binding. J Biol Chem. 278 (14), 12590-12597 (2003).
- Olson, L. J., Knych, E. T., Herzig, T. C., Drewett, J. G. Selective guanylyl cyclase inhibitor reverses nitric oxide-induced vasorelaxation. Hypertension. 29 (1), 254-261 (1997).
- Bailey, S. J., et al. Dietary nitrate supplementation reduces the O2 cost of low-intensity exercise and enhances tolerance to high-intensity exercise in humans. J Appl Physiol (1985). 107 (4), 1144-1155 (2009).
- Vanhatalo, A., et al. Acute and chronic effects of dietary nitrate supplementation on blood pressure and the physiological responses to moderate-intensity and incremental exercise. Am J Physiol Regul Integr Comp Physiol. 299 (4), R1121-R1131 (2010).
- Qin, X., et al. Balancing role of nitric oxide in complement-mediated activation of platelets from mcd59a and mcd59b double-knockout mice. Am J Hematol. 84 (4), 221-227 (2009).
- Radomski, M. W., Palmer, R. M., Moncada, S. An l-arginine/nitric oxide pathway present in human platelets regulates aggregation. PNAS. 87 (13), 5193-5197 (1990).
- Thomas, D. D., Liu, X., Kantrow, S. P., Lancaster, J. R. The biological lifetime of nitric oxide: Implications for the perivascular dynamics of NO and O2. PNAS. 98 (1), 355-360 (2001).
- Park, J. W., et al. Preparation of rat skeletal muscle homogenates for nitrate and nitrite measurements. J Vis Exp. (173), e62427(2021).
- Park, J. W., et al. Potential roles of nitrate and nitrite in nitric oxide metabolism in the eye. Sci Rep. 10 (1), 13166(2020).
- Srihirun, S., et al. Nitrate uptake and metabolism in human skeletal muscle cell cultures. Nitric Oxide. 94, 1-8 (2020).
- Montoliu, C., et al. Correlation of nitric oxide and atrial natriuretic peptide changes with altered cGMP homeostasis in liver cirrhosis. Liver Int. 25, 787-795 (2005).
- Origlia, C., et al. Platelet cGMP inversely correlates with age in healthy subjects. J Endocrinol Invest. 27 (2), RC1-RC4 (2004).
- Calamera, G., et al. Fret-based cyclic GMP biosensors measure low cGMP concentrations in cardiomyocytes and neurons. Commun Biol. 2, 394(2019).
- Rutkowski, N., et al. Real-time imaging of cGMP signaling shows pronounced differences between glomerular endothelial cells and podocytes. Sci Rep. 14, 26099(2024).
- Straub, A. C., Beuve, A. A primer for measuring cGMP signaling and cGMP-mediated vascular relaxation. Nitric Oxide. 117, 40-45 (2021).
- Huang, K. T., Lin, T. J., Hsu, M. H. Determination of cyclic GMP concentration using a gold nanoparticle-modified optical fiber. Biosens Bioelectron. 26 (1), 11-15 (2010).
- Cyclic gmp elisa kit. , https://cdn.caymanchem.com/cdn/seawolf/insert/581021.pdf (2024).
- Park, J. W., et al. Dietary nitrate metabolism in porcine ocular tissues determined using 15N-labeled sodium nitrate supplementation. Nutrients. 16 (8), 1154(2024).
- Cgmp enzyme immunoassay kit, direct technical bulletin. , https://www.sigmaaldrich.com/deepweb/assets/sigmaaldrich/product/documents/289/571/cg200bul.pdf?srsltid=AfmBOoqWnOVurQ549ESXk_E7DJoqNs7v268ktTabHHYc6I_6NZkc-j_V (2025).
- Cyclic gmp competitive elisa lysate and homogenate samples. , https://assets.thermofisher.com/TFS Assets/LSG/certificate/Certificates%20of%20Analysis/RA229061_EMSCGMPL.pdf (2025).
- Hamad, A. M., Range, S., Holland, E., Knox, A. J. Regulation of cGMP by soluble and particulate guanylyl cyclases in cultured human airway smooth muscle. Am J Physiol. 273 (4), L807-L813 (1997).
- Mo, E., Amin, H., Bianco, I. H., Garthwaite, J. Kinetics of a cellular nitric oxide/cGMP/phosphodiesterase-5 pathway. J Biol Chem. 279 (25), 26149-26158 (2004).
- Corbin, J. D., et al. [3h]sildenafil binding to phosphodiesterase-5 is specific, kinetically heterogeneous, and stimulated by cGMP. Mol Pharmacol. 63 (6), 1364-1372 (2003).
Przedruki i uprawnienia
