Rozwój płciowy zarodźca zachodzi w jelicie środkowym komara. Celowanie w stadia płciowe pasożyta jest obiecującą strategią blokowania transmisji. Opracowaliśmy Ookluc, transgeniczny P. berghei wykazujący ekspresję nanolucyferazy po utworzeniu zygoty, umożliwiający wysokoprzepustowe badania przesiewowe związków blokujących transmisję. W tym artykule szczegółowo opisano metody badań przesiewowych przy użyciu Ookluc.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ookluc: Linia Plasmodium berghei do identyfikacji związków blokujących transmisję
W tym artykule
Podsumowanie
Streszczenie
Malaria pozostaje światowym wyzwaniem zdrowotnym; W 2023 roku na całym świecie zgłoszono 263 miliony przypadków i 597 000 zgonów. Cykl życiowy pasożyta jest złożony i potrzebne są ukierunkowane interwencje w krytycznych stadiach rozwoju, aby skutecznie kontrolować chorobę. Strategie blokowania transmisji (TB) mają na celu przerwanie transmisji Plasmodium poprzez celowanie w wektora komara lub stadia płciowe pasożyta za pomocą szczepionek i leków. Interwencje gruźlicy mogą koncentrować się na gametocytach w ludzkim gospodarzu lub innych formach w jelicie środkowym komara, takich jak gamety, zygoty, ookinety i oocysty.
Opracowanie nowych metod leczenia gruźlicy stoi przed poważnymi wyzwaniami. Badanie stadiów płciowych pasożyta jest z natury trudne, a wysokoprzepustowe badania przesiewowe (HTS) pod kątem związków gametocytocydowych opierają się głównie na kulturach P. falciparum . Solidne narzędzia in vitro do oceny interwencji w późniejszych stadiach płciowych są jednak nadal ograniczone. Aby przyspieszyć odkrywanie związków gruźlicy, nasza grupa opracowała nowatorski test HTS do aktywacji i zapłodnienia gametocytów przy użyciu P. berghei, mysiego modelu infekcji Plasmodium . Transgeniczny pasożyt, Ookluc, ulega ekspresji nanolucyferazy wyłącznie po utworzeniu zygoty, ze szczytem luminescencji podczas rozwoju ookinte. Ten test oparty na luminescencji zapewnia ilościowy odczyt różnicowania gamet do zygoty i zygoty do ookinte, gdzie zwiększona luminescencja bezpośrednio koreluje z tworzeniem ookinte. W tym artykule wideo przedstawiono metody badań przesiewowych związków gruźlicy malarii przy użyciu Ookluc.
Wprowadzenie
Malaria to starożytna choroba, która głęboko ukształtowała historię ludzkości. Tylko w 2023 roku w 85 krajach endemicznych zgłoszono 263 miliony przypadków, co spowodowało 597 000 zgonów1. Choroba jest wywoływana przez pasożyty pierwotniaków z rodzaju Plasmodium, należące do gromady Apicomplexa. Spośród pięciu gatunków, które zarażają ludzi - P. falciparum, P. vivax, P. knowlesi, P. ovale i P. malariae - P. falciparum i P. vivax stanowią większość przypadków. P. falciparum jest związany z ciężką postacią malarii i dominuje w Afryce, podczas gdy P. vivax ma najszersze rozmieszczenie geograficzne, jest bardziej rozpowszechnione w Ameryce Południowej i Azji2.
Złożoność cyklu życiowego Plasmodium , który obejmuje wiele etapów rozwojowych u dwóch gospodarzy, ułatwia jego przenoszenie i utrzymywanie się w regionach endemicznych3. Kluczowym krokiem w tym cyklu jest przejście od człowieka do wektora komara, co czyni go kluczowym celem interwencji. Transmisja rozpoczyna się w ludzkim gospodarzu, gdzie etapy płciowe Plasmodium rozwijają się, gdy merozoity różnicują się w gametocyty męskie i żeńskie. Po spożyciu przez komara, sygnały środowiskowe wyzwalają aktywację gametocytów i tworzenie gamet, co prowadzi do zapłodnienia w świetle jelita środkowego. Powstała zygota różnicuje się w ruchliwy ookinet, który aktywnie atakuje nabłonek jelita środkowego i przekształca się w oocystę w blaszce podstawnej. Wewnątrz oocysty wytwarzane są tysiące sporozoitów, które następnie są uwalniane do hemolimfy, umożliwiając im migrację do gruczołów ślinowych. Tam sporozoity atakują komórki groniaste i przemieszczają się do światła gruczołu, gdzie pozostają do momentu, gdy komar spożyje kolejny posiłek z krwi, przenosząc pasożyta na ludzką skórę4.
Poszukiwanie nowych strategii blokowania transmisji (TB) ma kluczowe znaczenie ze względu na ograniczenia dostępnych leków i rosnącą oporność na leki przeciwmalaryczne5. Tradycyjne metody badań przesiewowych, takie jak infekcje komarami, ręczna analiza mikroskopowa lub inkorporacja radioaktywnej hipoksantyny, są pracochłonne, trudne do standaryzacji i nieodpowiednie do zastosowań o wysokiej przepustowości 6,7. Nowsze podejścia wykorzystujące detekcję opartą na fluorescencji (np. barwienie DNA lub reportery GFP) poprawiły skuteczność, jednak nadal istnieją poważne wyzwania w ocenie związków, które celują w stadia płciowe pasożyta 6,7,8.
Aby sprostać tym wyzwaniom, opracowano transgeniczną linię P. berghei wykazującą ekspresję nanolucyferazy (nLuc), nazwaną Ookluc 8. W tym systemie gen nLuc jest umieszczany pod kontrolą specyficznego dla ookinete promotora białka związanego z okosynoitem i TRAP (CTRP), który jest aktywowany w zygotach, co prowadzi do produkcji nLuc rozpoczynającej się około 6 godzin po aktywacji gamet i osiągającej szczyt 24 godziny po teście konwersji8. Konstrukcja ta umożliwia zautomatyzowaną, opartą na luminescencji kwantyfikację żywotności pasożyta wkrótce po zapłodnieniu - eliminując potrzebę bezpośredniej manipulacji wektorami - i ułatwia wysokoprzepustowe badania przesiewowe tysięcy związków8.
Chociaż ekspresja nLuc zachodzi niezależnie od żywotności ookinatów, co ogranicza wykrywanie związków, które specyficznie wpływają na późniejsze etapy, takie jak morfogeneza ookinate, Ookluc pozostaje wysoce skuteczny w identyfikacji związków gruźlicy, które celują w gametogenezę, rekombinację płciową lub przeżycie pasożyta w komara, w tym czynników indukujących produkcję reaktywnych form tlenu. Poprzednie badania potwierdziły ten system, skutecznie identyfikując związki, o których wiadomo, że hamują etapy płciowe Plasmodium 9,10,11,12,13,14,15. W związku z tym Ookluc stanowi solidną i innowacyjną platformę do wysokoprzepustowych badań przesiewowych stadiów płciowych Plasmodium, ułatwiając odkrywanie nowych związków gruźlicy i przyspieszając wysiłki na rzecz eliminacji malarii w nadchodzących latach8. Protokół ten przedstawia zastosowanie systemu Ookluc do badań przesiewowych leków i oznaczania stężenia hamującego 50% (IC50).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty na zwierzętach były prowadzone w ścisłej zgodności z wytycznymi etycznymi i zostały zatwierdzone przez Komisję Etyki ds. Wykorzystania Zwierząt Instytutu Nauk Biomedycznych Uniwersytetu w São Paulo (CEUA-ICB/USP). Zwierzęta były kwaterowane i utrzymywane zgodnie ze standardami ustalonymi przez tę komisję. Eksperymenty obejmujące genetycznie zmodyfikowane pasożyty Plasmodium, a także ich przechowywanie w kriokonserwacji w temperaturze -80 °C, były prowadzone zgodnie z przepisami ustanowionymi przez Instytucjonalny Komitet Bezpieczeństwa Biologicznego Instytutu Nauk Biomedycznych Uniwersytetu w São Paulo (CIBio-ICB/USP). W badaniu wykorzystano łącznie trzy samice myszy BALB/c w wieku 3-5 tygodni – dwie zainfekowane i jedną niezainfekowaną.
1. Materiały i odczynniki
- Przygotować pożywkę dla ookinetów, uzupełniając RPMI 1640 o 0,025 M HEPES, penicylinę-streptomycynę-neomycynę (PSN), 50 mg/L hypoksantyny oraz 100 µM kwasu ksanturenowego. Dostosować pH do 8,38,16.
- Przygotować roztwór roboczy do analizy luminescencyjnej poprzez zmieszanie 1 objętości substratu z 50 objętościami buforu lizującego dołączonego do zestawu do analizy lucyferazy.
- Ustawić inkubator na 21 °C.
2. Zakażanie i pobieranie krwi z pasożytami
- Zakaź dwie samice myszy BALB/c (w wieku 4-6 tygodni) poprzez wstrzyknięcie dojambrzuszne (IP) 150 µL kriokonserwowanego szczepu Ookluc (Dzień 0).
UWAGA: W niniejszym protokole zalecamy stosowanie myszy BALB/c ze względu na ich łatwą dostępność i powszechne wykorzystanie w hodowlach zwierząt. Jednakże każdy szczep myszy typu dzikiego, który jest podatny na zakażenie P. berghei i umożliwia gametocytogenezę, powinien być odpowiedni do zastosowania. - Rozpocznij od Dnia 3 ocenę parasitemii i gametocytemii poprzez badanie mikroskopowe rozmazów krwi barwionych giemsą.
- Gdy parasitemia i gametocytemia osiągną odpowiednio około 5% i 0,5% (zazwyczaj w Dniu 4), pobierz krew poprzez punkcję serca przy użyciu strzykawek z heparyną i połącz krew od obu zakażonych myszy.
UWAGA: Chociaż jest to linia transgeniczna P. berghei, jej wzrost i profil gametocytemii są podobne do tych obserwowanych w szczepie ANKA. W tym kontekście proporcja gametocytów w stosunku do całkowitej parasitemii jest około 10x niższa.
UWAGA: Idealnie płytka z inhibitorami (patrz poniżej) powinna być przygotowana przed pobraniem krwi z pasożytami, aby krew można było nanieść pipetą na płytkę natychmiast po pobraniu. Jeśli krew myszy musi być pobrana w innym pomieszczeniu lub z jakiegokolwiek innego powodu nie może zostać natychmiast naniósiona na płytkę z inhibitorami, pobraną krew należy przechowywać w temperaturze 37 °C nie dłużej niż przez 30 min.
3. Test konwersji – przesiewanie w płytkach 96-dołkowych
UWAGA: Aby zapewnić spójność wyników, cały eksperyment należy powtórzyć trzykrotnie w różne dni w celu potwierdzenia otrzymanych danych.
- Przygotować próbki związków, używając pożywki dla ookinet jako rozcieńczalnika (stężenie końcowe 10 µM). Rozcieńczyć zapas związku do stężenia 1 mM, a następnie przygotować próbki robocze poprzez rozcieńczenie zapasu 1 mM w stosunku 1:100 v:v w pożywce dla ookinet. Dla jednego testu wykonanego w duplikacie przygotować końcową objętość 200 µL próbki roboczej.
- Jeśli związek jest rozpuszczony w rozpuszczalniku innym niż woda, należy uwzględnić próbkę kontrolną zawierającą rozpuszczalnik rozcieńczony w pożywce dla ookinet w takim samym stosunku, jak w próbce badanej, aby upewnić się, że wszelkie zaobserwowane hamowanie wynika z działania związku, a nie rozpuszczalnika.
UWAGA: Jako przykład przesiewamy 90 związków. - Używając dwóch płytek 96-dołkowych, nanieść 80 µL próbek do każdego dołka, zgodnie z poniższym opisem i ilustracją na Rysunku 1, w duplikacie (dwie płytki): Kontrola pozytywna: 80 µL pożywki dla ookinet; Kontrola negatywna: 80 µL pożywki dla ookinet; Kontrola rozpuszczalnika: 80 µL pożywki dla ookinet z 1% DMSO; Próbki: 80 µL każdego związku o stężeniu 10 µM w pożywce dla ookinet.
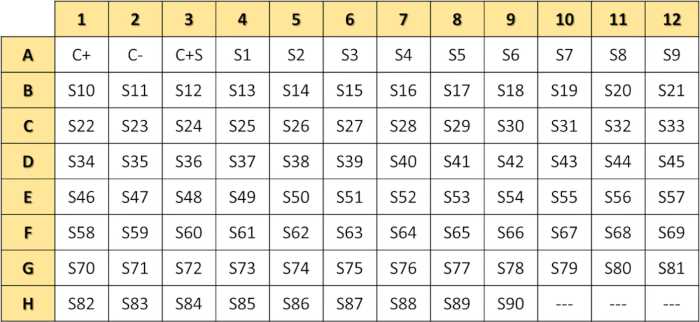
Rysunek 1: Schematyczny układ płytki 96-dołkowej przeznaczonej do screeningu związków. Układ płytki obejmuje kontrolę pozytywną (C+), kontrolę negatywną (C-), kontrolę z rozpuszczalnikiem do rozcieńczeń (C+S) oraz 90 badanych związków (S1-S90). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Do każdego dołka płytki 96-dołkowej, z wyjątkiem kontroli negatywnej (C-), dodać 4 µL krwi mysiej z pasożytami w stosunku 1:20 v:v. Delikatnie homogenizować poprzez pipetowanie.
UWAGA: Uwzględniając straty, zapotrzebowanie na krew z pasożytami szacujemy na ~400 µL na każdą płytkę. - W przypadku kontroli negatywnej dodać niezinfekowaną krew mysią w stosunku 1:20 (v:v, krew:próbka). Delikatnie homogenizować.
- Inkubować w temperaturze 21 °C przez 6 h lub 24 h.
UWAGA: Aktywność nLuc jest wykrywalna po 6 h inkubacji i osiąga szczyt po 24 h trwania testu8. Test nie pozwala na identyfikację związków wykazujących aktywność po formowaniu się zygot, np. związków hamujących morfogenezę ookinetów, ponieważ uformowane zygoty będą kumulować nLuc niezależnie od ukończenia morfogenezy. Zatem 6 h inkubacji jest wystarczające do wykrycia wszystkich związków, które zablokują aktywność nLuc poprzez hamowanie gametogenezy, rekombinacji płciowej lub wykażą wczesną cytotoksyczność. Zazwyczaj preferujemy jednak inkubację przez 24 h, aby uzyskać silniejsze sygnały i lepszy stosunek sygnału do szumu.
4. Analiza luminescencyjna
- Po zakończeniu czasu inkubacji homogenizować próbki, pipetując je w górę i w dół, aby zapewnić dokładne wymieszanie krwi z podłożem.
- Przygotować mieszaninę buforu lizującego i substratu lucyferazy bezpośrednio przed użyciem w stosunku 1:50 (v:v, substrat:bufor lizujący).
- Zmieszać mieszaninę substratu z próbkami w stosunku 1:1 (v:v), mieszając delikatnie, aby uniknąć powstania pęcherzyków powietrza. Inkubować w temperaturze 37 °C przez 3-5 min.
UWAGA: W tym przykładzie do każdej studzienki dodano 84 µL mieszaniny substrat:bufor lizujący. - Przenieść próbki do białej płytki 96-dołkowej z płaskim dnem. Zmierzyć luminescencję za pomocą czytnika płytek. Użyć następującej konfiguracji parametrów: filtr emisji: soczewka; czas interwału pomiaru: 1 s na studzienkę.
5. Analiza danych – skrining
- Po przeprowadzeniu pomiaru luminescencji zanotuj uzyskane surowe dane (Rysunek 2).
UWAGA: Uzyskane względne jednostki światła (RLU) zależą od użytego luminometru. W naszym przypadku wartości RLU dla kontroli pozytywnej w teście z 24 h inkubacją mieściły się w zakresie od 10,000 do 500,000. Krótszy czas inkubacji (6 h) spowoduje uzyskanie niższych wartości RLU.
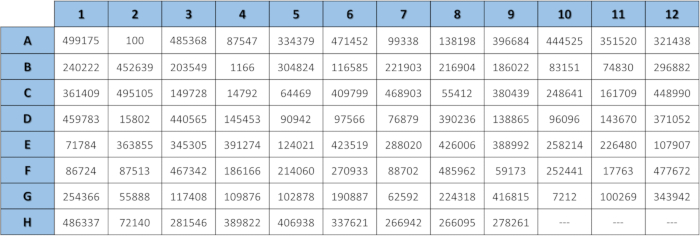
Rysunek 2: Wyniki uzyskane z symulowanego odczytu testu konwersji w badaniu przesiewowym związków. Na obrazie przedstawiono symulowane odczyty luminescencji z testu przeprowadzonego po konwersji ookinetów w obecności panelu 90 związków. Niższe wartości Relatywnych Jednostek Światła (RLU) wskazują na zmniejszone tworzenie się ookinetów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Za pomocą arkusza kalkulacyjnego oblicz średnią z każdego pomiaru, korzystając z poniższej formuły. Zastąp XX adresem pierwszej komórki z pomiarem, a YY adresem drugiej komórki z pomiarem. Powtórz formułę dla wszystkich próbek.
=(AVERAGE(XX:YY) - Przelicz dane na % inhibicji, aby dokładniej przeanalizować wyniki. W arkuszu kalkulacyjnym zastosuj poniższą formułę. Zastąp A wartością RLU dla próbki, a B wartością RLU dla kontroli. Powtórz formułę dla wszystkich badanych związków:
= 1 - (A/B) x 100
UWAGA: Dane będą prezentowane tak, jak pokazano na Rysunku 3.
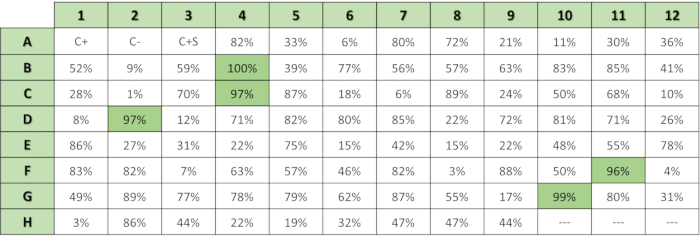
Rycina 3: Wyniki uzyskane z symulowanego odczytu testu konwersji dla screeningu związków, przedstawione jako % inhibicji dla każdego związku. Procent inhibicji konwersji dla każdego badanego związku, obliczony zgodnie z powyższym opisem. Podświetlone pola wskazują związki, które wykazują inhibicję konwersji powyżej 95%. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Zidentyfikuj związki wykazujące inhibicję powyżej 95%.
UWAGA: Związki te wykazują wysoką aktywność przeciwko stadium płciowemu w stężeniu 10 µM. W naszym przykładzie zidentyfikowano pięć związków o wysokiej aktywności przeciwko stadium płciowemu. - W przypadku zidentyfikowanych związków przeprowadź oznaczenie IC50 zgodnie z poniższym opisem.
6. Test konwersji - wyznaczanie IC 50
- Zainfekuj myszy Ookluc i pobierz krew z pasożytami zgodnie z opisem w sekcji 2.
- Przygotuj próbki, używając pożywki do ookinet jako rozcieńczalnika. Użyj stężenia początkowego, przy którym obserwuje się 100% hamowania konwersji przez związek.
UWAGA: Ponieważ związki aktywne zostały zidentyfikowane w badaniu przesiewowym przy stężeniu 10 µM, jako stężenie początkowe dla pierwszej krzywej zależności dawka-odpowiedź stosujemy 20 µM. Aby uzyskać dokładną krzywą zależności dawka-odpowiedź, ważne jest, aby test obejmował stężenia początkowe skutkujące 100% hamowaniem konwersji oraz stężenia końcowe prowadzące do 0% hamowania. Takie podejście zapewnia precyzyjne obliczenie IC50. Pierwsza krzywa zależności dawka-odpowiedź pozwoli określić najniższe stężenia związku dające ~100% hamowania. W niniejszym protokole jako przykład wykorzystamy PyAz90, niedawno zidentyfikowany przy użyciu Ookluc13. - Do płytki 96-dołkowej dodaj w trzech powtórzeniach (patrz Rysunek 4): kontrolę pozytywną (C+): 80 µL pożywki do ookinet; kontrolę negatywną (C-): 80 µL pożywki do ookinet; pierwsze rozcieńczenie próbki (Cpd D1): 160 µL związku w pożywce do ookinet o stężeniu początkowym skutkującym 100% hamowaniem konwersji; dołków od D2 do D12: 80 µL pożywki do ookinet.
- Wykonaj dwukrotne rozcieńczenia seryjne, przenosząc pipetą 80 µL z dołka D1 do D2, homogenizując, a następnie przenosząc 80 µL z dołka D2 do D3 i tak dalej. Upewnij się, że wszystkie dołki mają całkowitą objętość 80 µL, odrzucając ostatnie 80 µL pobrane z dołka D12.
UWAGA: Przeprowadź eksperyment w co najmniej trzech powtórzeniach dla wszystkich próbek, jak wskazano na Rysunku 4. Aby zapewnić wiarygodność i powtarzalność wyników, cały eksperyment należy powtórzyć w trzy oddzielne dni, za każdym razem używając nowo zainfekowanych zwierząt.
UWAGA: Jeśli w pierwszym badaniu przesiewowym wyniki wykażą brak wpływu rozpuszczalnika na konwersję, nie trzeba włączać tych kontroli do rozcieńczeń seryjnych. W przeciwnym razie należy uwzględnić również rozcieńczenia seryjne rozpuszczalnika.
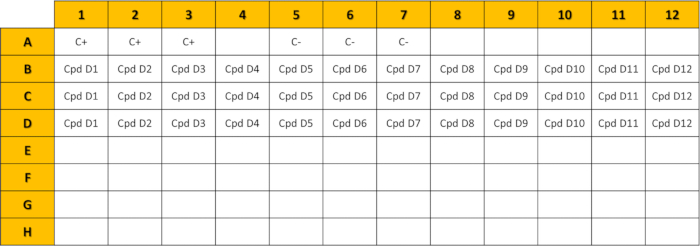
Rysunek 4: Układ płytki 96-dołkowej zaprojektowany do wyznaczania wartości IC50 związku. Układ płytki obejmuje kontrolę dodatnią (C+), kontrolę ujemną (C-) oraz rozcieńczenia związku (Cpd) (od D1 do D12). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Dodaj krew mysia z pasożytami do płytki 96-dołkowej w stosunku 1:20 v:v. Delikatnie ujednolic próbkę poprzez pipetowanie.
UWAGA: Do każdego dołka zostanie dodane łącznie 4 µL krwi z pasożytami, z wyjątkiem kontroli negatywnej (C-). Uwzględniając straty, obliczamy zapotrzebowanie na ~200 µL krwi z pasożytami dla każdego testowanego związku. - Do dołków kontroli negatywnej dodaj niezinfekowaną krew mysią w stosunku 1:20 (v:v, krew:próbka). Delikatnie ujednolic.
- Inkubuj w temperaturze 21 °C przez 6 h lub 24 h.
- Wykonaj test luminescencyjny zgodnie z opisem w sekcji 4.
7. Analiza danych – wyznaczanie IC 50
UWAGA: IC50 definiuje się jako stężenie związku wymaganą do zahamowania 50% aktywności biologicznej/inhibicji. W tym teście inhibicja odnosi się do zmniejszenia konwersji ookinetów. Dane przedstawiono w formie sigmoidalnej krzywej dawka-odpowiedź, gdzie oś X reprezentuje stężenie związku (po transformacji logarytmicznej), a oś Y reprezentuje % inhibicji.
- Obliczyć % inhibicji zgodnie z opisem w sekcji 5, krok 5.3.
- Otworzyć oprogramowanie i utworzyć tabelę XY.
- W opcjach osi Y ustawić wartość Enter 3 replicate values in side-by-side subcolumns.
- Wkleić dane, gdzie X reprezentuje stężenie związku, a Y reprezentuje % inhibicji (Rycina 5A).
- W pasku menu kliknąć Analyze, wybrać Nonlinear regression (curve fit), następnie Dose-response curves - Inhibition oraz [inhibitor] vs. normalized response -- variable slope; i kliknąć OK.
- W lewym panelu zapoznać się z krzywą zależności odpowiedzi od dawki dla danych. Wprowadzić żądane zmiany personalizacji, takie jak zmiana kolorów i formatów punktów.
- Zlokalizować tabelę Nonlin fit, aby odnaleźć obliczoną wartość IC50 oraz 95% przedział ufności (95% CI) (Rycina 5B).
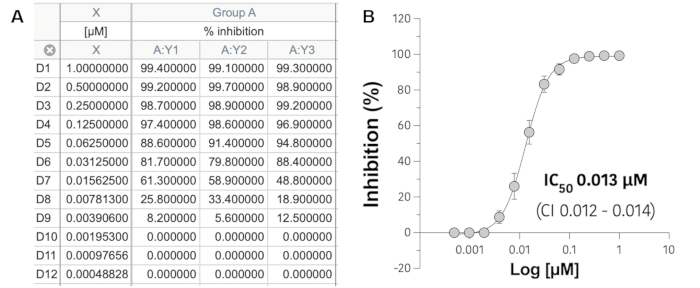
Rycina 5: Krzywa odpowiedź-dawka dla PyAz90. Procent inhibicji (%) zmierzono w funkcji stężenia PyAz90 (µM) w skali logarytmicznej. Krzywa sigmoidalna przedstawia dopasowane dane wykorzystane do wyznaczenia IC50, która wyniosła 0,013 µM (95% przedział ufności: 0,012-0,014 µM). Punkty danych reprezentują średnią ± błąd standardowy średniej z powtórzeń doświadczalnych. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Wytwarzanie pasożytów Ookluc umożliwia ocenę nowych kandydatów na leki przeciwgruźlicze z perspektywy nieoferowanej przez istniejące testy, w szczególności w ocenie wpływu związków na aktywację gamet, zapłodnienie i tworzenie zygoty8. Rycina 2 i Rycina 3 ilustrują zdolność metody do badania przesiewowego panelu związków pod kątem stadiów płciowych pasożyta w sposób wysokoprzepustowy, ułatwiając id...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Większość metod HTS stosowanych do opracowywania nowych związków gruźlicy koncentruje się na hamowaniu gametocytogenezy lub aktywności gametocytobójczej. Do tej pory opracowano tylko dwa modele P. berghei, które pozwalają na ocenę funkcji gametocytów, gametogenezy, tworzenia zygoty i morfogenezy ookinety5.
Jeden z tych modeli jest podobny do Ookluc, ponieważ wykorzystuje reporter fluorescencyjny połączony z promotorem ctrp 17...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Projekt ten został wsparty dotacjami z Fundação de Amparo à Pesquisa do Estado de São Paulo (FAPESP 2021/06769-0) oraz Instituto Serrapilheira (grant G-1709-16618).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Dimetylosulfotlenek (DMSO) | Sigma-Aldrich | Zobacz materiał D8418 | |
| GraphPad Prism w wersji 10.0.0 dla Windows | GraphPad Software, Boston, Massachusetts, Stany Zjednoczone | ||
| Sól sodowa heparyny z błony śluzowej jelit świń | Sigma-Aldrich | Zobacz materiał H3393 | |
| HEPESY (1 m) | Thermo Scientific | 15630106 | |
| Hipoksantyna | Sigma-Aldrich | Zobacz materiał H9636 | |
| Myszy | --- | --- | Samice myszy BALB/c w wieku od 3 do 5 tygodni |
| System oznaczania lucyferazy Nano-Glo | Preparat Promega | Zobacz materiał N1110 | |
| Penicylina − Streptomycyna − Stabilizowany roztwór neomycyny | Sigma-Aldrich | Zobacz materiał P4083 | |
| Czytnik mikropłytek POLARStar Omega | BMG Labtech | ---- | |
| RPMI 1640 Medium, suplement GlutaMAX | Thermo Scientific | 61870036 | |
| Kwas ksanturenowy | Sigma-Aldrich | D120804 |
Bibliografia
- World malaria report 2024: addressing inequity in the global malaria response. , World Health Organization. https://www.who.int/teams/global-malaria-programme/reports/world-malaria-report-2024 (2025).
- Miller, L. H., Ackerman, H. C., Su, X., Wellems, T. E. Malaria biology and disease pathogenesis: insights for new treatments. Nature Med. 19 (2), 156-167 (2013).
- Tsoumani, M. E., Voyiatzaki, C., Efstathiou, A. Malaria Vaccines: From the Past towards the mRNA Vaccine Era. Vaccines. 11 (9), 1452(2023).
- Ménard, R., et al. Looking under the skin: the first steps in malarial infection and immunity. Nature Rev. Microbiol. 11 (10), 701-712 (2013).
- Appetecchia, F., et al. Transmission-blocking strategies for malaria eradication: Recent advances in small-molecule drug development. Pharmaceuticals. 17 (7), 962(2024).
- Baniecki, M. L., Wirth, D. F., Clardy, J. High-throughput Plasmodium falciparum growth assay for malaria drug discovery. Antimicrob Agents Chemother. 51 (2), 716-723 (2007).
- Delves, M., et al. The activities of current antimalarial drugs on the life cycle stages of Plasmodium: A comparative study with human and rodent parasites. PLoS Med. 9 (2), e1001169(2012).
- Calit, J., et al. Screening the pathogen box for molecules active against Plasmodium sexual stages using a new nanoluciferase-based transgenic line of P. berghei identifies transmission-blocking compounds. Antimicrob Agents Chemother. 62 (11), e01053-e01118 (2018).
- Calit, J., et al. Novel transmission-blocking antimalarials identified by high-throughput screening of Plasmodium berghei Ookluc. Antimicrob Agents Chemother. 67 (4), e0146522(2023).
- Lima, M. N. N., et al. Integrative multi-kinase approach for the identification of potent antiplasmodial hits. Front Chem. 7, 773(2019).
- Ferreira, L. T., et al. Computational chemogenomics drug repositioning strategy enables the discovery of epirubicin as a new repurposed hit for Plasmodium falciparum and P. vivax. Antimicrob Agents Chemother. 64 (9), aac.02041-aac.02119 (2020).
- Krishnan, K., et al. Torin 2 derivative, NCATS-SM3710, has potent multistage antimalarial activity through inhibition of P. falciparum phosphatidylinositol 4-kinase (Pf ACS Pharmacol). Transl Sci. 3 (5), 948-964 (2020).
- Calit, J., et al. Pyrimidine azepine targets the Plasmodium bc1 complex and displays multistage antimalarial activity. JACS Au. 4 (10), 3942-3952 (2024).
- Lima, M. N., et al. Chalcones as a basis for computer-aided drug design: Innovative approaches to tackle malaria. Future Med Chem. 11 (20), 2635-2646 (2019).
- Ferreira, L. T., et al. A novel 4-aminoquinoline chemotype with multistage antimalarial activity and lack of cross-resistance with PfCRT and PfMDR1 mutants. PLoS Pathog. 20 (10), e1012627(2024).
- Blagborough, A. M., et al. Assessing transmission blockade in Plasmodium spp. Methods Mol Biol. 923, 577-600 (2013).
- Azevedo, R., et al. Bioluminescence method for in vitro screening of Plasmodium transmission-blocking compounds. Antimicrob Agents Chemother. 61 (6), aac.02699-aac.02616 (2017).
- Gaitán, X. A., et al. Characterisation of the merozoite thrombospondin related anonymous protein (MTRAP) of Plasmodium berghei as a transmission-blocking antigen. Mem Inst Oswaldo Cruz. , 119(2024).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
