Protokół ten integruje niestandardowy system bioreaktora z hiperspolaryzowaną spektroskopią NMR ¹³C w celu pomiaru metabolizmu pirogronianu w czasie rzeczywistym w żywych komórkach, poprawiając odtwarzalność i dokładność kinetyczną w badaniach metabolicznych i badaniach przesiewowych leków.
Artykuł metodologiczny
Detekcja metaboliczna w czasie rzeczywistym w żywych komórkach przy użyciu hiperpolaryzowanego 13C NMR
W tym artykule
Podsumowanie
Streszczenie
W protokole przedstawiono metodę integracji zbudowanego we własnym zakresie systemu bioreaktora ze spektroskopią hiperspolaryzowanego 13-stopniowegomagnetycznego rezonansu jądrowego (NMR) w celu pomiaru metabolizmu pirogronianu w żywych komórkach w czasie rzeczywistym. Protokół nakreśla budowę systemu bioreaktora, który umożliwia precyzyjne określenie czasu wstrzykiwania hiperspolaryzowanego substratu i akwizycji sygnału NMR przy jednoczesnym utrzymaniu stabilnego środowiska hodowli komórkowej. Metoda ta niezawodnie wykrywa metaboliczną przemianę pirogronianu w mleczan w ciągu 60 sekund pomiaru, zachowując przy tym wystarczający stosunek sygnału do szumu w całym procesie. Możliwość mieszania in situ systemu przyspiesza wykrywanie sygnału NMR i zmniejsza straty relaksacyjne T1. Protokół zawiera również szczegółowe instrukcje dotyczące przygotowania żeli alginianowych do kapsułkowania komórek i umieszczania ich w bioreaktorze. Proponowana metoda wykazuje lepszą odtwarzalność i dokładność kinetyczną w porównaniu z metodami konwencjonalnymi, co wskazuje na potencjalne zastosowania w badaniach nad metabolizmem nowotworów i badaniach przesiewowych leków. Dalsze udoskonalenia systemu, takie jak przyjęcie alternatywnych matryc żelowych, mogą zwiększyć jego wszechstronność w różnych badaniach biologicznych.
Wprowadzenie
Hiperpolaryzowany NMR, szczególnie poprzez dynamiczną polaryzację jądrową (DNP), znacznie zwiększa intensywność sygnału NMR1 i umożliwia śledzenie zmian metabolicznych w czasie rzeczywistym ze znacznie lepszą czułością 2,3. Technika ta została z powodzeniem zastosowana w różnych systemach biologicznych, w tym drożdżach 4,5, modelach komórek rakowych 6,7,8 i mikroorganizmach 9,10. Jest również używany do monitorowania kluczowych szlaków metabolicznych, takich jak glikoliza11,12, homeostaza redoks13,14 i regulacja pH15,16. Poza badaniami podstawowymi, hiperpolaryzowany NMR jest obecnie wykorzystywany w obrazowaniu klinicznym za pomocą MRI, umożliwiając ocenę metaboliczną od skali komórkowej do skali całego ciała17. Osiągnięcia te podkreślają rosnące zapotrzebowanie na dostępne protokoły, które ułatwiają szersze zastosowanie hiperspolaryzowanego NMR w różnych kontekstach biologicznych.
Pomimo swojej wszechstronności, implementacja pomiarów metabolicznych w czasie rzeczywistym w żywych komórkach za pomocą hiperspolaryzowanego NMR pozostaje wyzwaniem technicznym. Konwencjonalne systemy często opierają się na złożonych, specyficznych dla laboratorium konfiguracjach, które nie są odtwarzalne i są trudne do obsługi bez rozległej wiedzy specjalistycznej 8,18,19,20. Stanowi to poważną barierę dla naukowców dążących do zastosowania tej technologii w badaniach biologicznych lub translacyjnych. W porównaniu z alternatywnymi metodami, takimi jak obrazowanie optyczne lub spektrometria mas, hiperpolaryzowany 13C NMR umożliwia nieinwazyjne, czasowo-rozdzielcze monitorowanie określonych reakcji metabolicznych bez destrukcyjnego pobierania próbek. Dostarcza bezpośrednich informacji biochemicznych z czasową precyzją, dzięki czemu doskonale nadaje się do dynamicznych badań metabolizmu komórkowego.
Aby rozwiązać te problemy, w badaniu przedstawiono praktyczny i powtarzalny protokół specjalnie zaprojektowany, aby umożliwić naukowcom wykonywanie hiperpolaryzowanych pomiarów NMR metabolizmu żywych komórek przy minimalnych przeszkodach technicznych. Opisano kompleksową metodę podstawowego pomiaru metabolizmu pirogronianu w żywych komórkach. Chociaż protokół ten można zastosować do innych 13sond znakowanych C, pirogronian jest szczególnie odpowiedni ze względu na szybki wychwyt komórkowy, dobrze scharakteryzowane szlaki metaboliczne i centralną rolę w metabolizmie komórkowym. Procedura składa się z: (i) przygotowania próbek komórek, (ii) enkapsulacji w żelach alginianowych, (iii) hiperpolaryzacji przy użyciu polaryzatora DNP oraz (iv) pomiaru 13C NMR w czasie rzeczywistym w spektrometrze 400 MHz (rysunek 1). Ponadto podano kluczowe parametry do budowy systemu bioreaktora, aby zapewnić odtwarzalność i kompatybilność ze standardowym sprzętem NMR. Protokół jest zoptymalizowany pod kątem łatwości wdrożenia przy użyciu dostępnych na rynku komponentów i ma na celu pomóc badaczom, zwłaszcza tym początkującym w tej technice, określić jej przydatność dla ich potrzeb eksperymentalnych.
Protokół
1. Konfiguracja bioreaktora (rysunek 2A-B)
- Montaż rurki NMR
- Do wprowadzenia rurki NMR należy użyć zakręcanej rurki NMR (średnica 10 mm, długość 178 mm) z otwartą nasadką.
- Przygotować przegrodę w fiolce z silikonem/PTFE (o średnicy 9 mm) i włożyć przez nią rurkę PEEK w celu szczelnego uszczelnienia (rysunek uzupełniający 1).
- Włóż przegrodę z chemoodporną rurką PEEK (średnica wewnętrzna 1,0 mm, średnica zewnętrzna 1,6 mm, grubość ścianki 0,3 mm, długość 1 m) do otworu zmodyfikowanej nasadki.
- Umieść przegrodę między rurką NMR a jej otwartą nasadką i zabezpiecz ją, mocno zamykając nasadkę. Ta konfiguracja utrzymuje przegrodę na miejscu i zapewnia wystarczające uszczelnienie, aby zapobiec wyciekowi podczas perfuzji lub wstrzyknięcia.
- Ustawianie rurki doprowadzającej medium (Rysunek 2C)
- Podłącz rurkę PEEK do portów wlotowych i wylotowych rurki NMR, aby umożliwić ciągłą perfuzję. Zabezpiecz połączenia za pomocą zestawu złączek bezkołnierzowych, aby zapobiec wyciekom.
- Instalowanie elementów ocieplających medium
- Podłącz rurkę PEEK do pompy perystaltycznej regulowanej do stabilnego natężenia przepływu około 0,2 ml/min, zapewniając ciągłą cyrkulację medium za pośrednictwem zewnętrznego zestawu cyrkulacyjnego. Umieścić zbiornik pożywki w łaźni wodnej ustawionej na 37 °C, aby utrzymać temperaturę.
- Dodawanie składnika zapobiegającego wyciekom żelu
- Wytnij gęstą gąbkę, aby pasowała do średnicy rurki NMR. Włóż gąbkę do dna tuby, aby zapobiec wyciekowi żelu alginianowego, umożliwiając jednocześnie przepływ medium.
- Produkcja i włożenie wydrukowanego w 3D elementu mocującego gąbkę (Rysunek 2D-F)
- Drukuj 3D cylindryczny uchwyt (średnica zewnętrzna 9,1 mm, długość 20 mm, z centralnym otworem o średnicy 1,5 mm) przy użyciu żywicy fotopolimerowej kompatybilnej ze stereolitograficznym drukiem 3D. Specyfikacje projektowe znajdują się w załączonym pliku uzupełniającym 1.
- Włóż kapilarę ze szkła borokrzemianowego (średnica zewnętrzna 1.5 mm, średnica wewnętrzna około 0.9 mm, długość 90 mm) przez wstępnie uformowany otwór uchwytu wydrukowanego w 3D.
- Przymocuj gąbkę do platformy na uchwycie za pomocą żywicy utwardzanej promieniami UV o właściwościach wodoodpornych. Utwardzaj przez 30 s w świetle UV, aby zapewnić zestalenie.
- Włóż zmontowany uchwyt z gąbką do probówki NMR.
2. Przygotowanie komórek (rozpocznij 2 tygodnie przed pomiarem)
- Szybko rozmrozić zamrożone zasoby komórkowe (SCCVII lub HeLa) w łaźni wodnej o temperaturze 37 °C. Przenieś około 1 × 10⁶ komórek do 10 ml pożywki RPMI-1640 uzupełnionej 10% (v/v) płodowej surowicy bydlęcej i 1% (v/v) penicyliny-streptomycyny.
- Hoduj komórki w temperaturze 37 °C z 5% CO2 i pasuj je co 2-3 dni po osiągnięciu 70%-80% konfluencji. Kontynuuj hodowlę przez około 2 tygodnie, aby uzyskać ~4 x 10⁷ komórek, oszacowanych z pięciu 10 cm szalek wyhodowanych do około 90% zbiegu (każda daje ~8 x 10⁶ komórek).
3. Przygotowanie żelu alginianowego
- Przygotowanie roztworu alginianu
- Rozpuść proszek alginianu sodu klasy biologicznej w wodzie dejonizowanej, aby przygotować 2% (w/v) roztwór. Roztwór inkubować przez noc w temperaturze 25 °C lub wyższej, delikatnie mieszając od końca do końca. Użyj rotatora rurkowego ustawionego na około 10-20 obr./min, aby zapobiec powstawaniu pęcherzyków i zapewnić równomierne rozpuszczenie.
- Enkapsulacja komórek w żelu alginianowym
- Dodaj 2 ml 0,25% (v/v) trypsyny-EDTA do 10 cm naczynia. Przechyl naczynie, aby pokryć całą powierzchnię i odessać nadmiar trypsyny-EDTA.
- Inkubować naczynie w temperaturze 37 °C przez 2 minuty.
- Dodaj 10 ml pożywki hodowlanej do naczynia. Delikatnie pipetuj w górę i w dół, aby odłączyć komórki. Zebrać całą zawiesinę komórek do stożkowej probówki o pojemności 15 ml.
- Pobrać około 10 μl zawiesiny i policzyć liczbę komórek za pomocą licznika komórek. Zazwyczaj do kolejnych zabiegów potrzeba około 1 ×10 7 komórek, ale rzeczywista liczba powinna zostać potwierdzona pomiarem.
- Odwirować pozostałą zawiesinę komórkową o stężeniu 120 × g przez 5 minut. Usunąć supernatant i ponownie zawiesić osad komórkowy w 4 ml 2% (m/v) roztworu alginianu. Pipetować powoli, aby zminimalizować powstawanie pęcherzyków.
- Tworzenie żelu przez sieciowanie wapniem (ryc. 3)
- Dodać 10 ml 50 mM roztworu CaCl2 do probówki wirówkowej o pojemności 50 ml (ryc. 3A).
- Pobrać 300 μl mieszaniny komórek i alginianów do strzykawki o pojemności 0,5 ml wyposażonej w igłę 30 g o długości 10 mm i przymocować ją do nasadki probówki wirówkowej (ryc. 3B).
- Zamknąć szczelnie nakrętkę probówki wirówkowej przymocowaną do niej strzykawką i delikatnie odwirować cały zestaw pod ciśnieniem 200 × g przez 5 minut. Po odwirowaniu usunąć roztwór supernatantu i ponownie zawiesić żel obciążony komórkami w pożywce (Rysunek 3C-D).
- Ładowanie żelu do probówki NMR
- Przenieś żel otoczony komórkami do probówki NMR za pomocą pipety Pasteura. Włóż uchwyt gąbki i upewnij się, że jest szczelnie zamknięty.
- Zbiornik pożywki (zawierający 5% (v/v) D2O) przygotowany w kroku 1.3.2 w łaźni wodnej należy wstępnie ogrzać do temperatury 37 °C i wprowadzić go w cyrkulację z szybkością około 500 μl/h w celu ustabilizowania warunków.
- Upewnij się, że nie ma wycieków przed włożeniem rurki NMR do magnesu. Trzymając rurkę PEEK prosto, włóż rurkę NMR do magnesu. Dostosuj rozmiar żelu, liczbę kulek i prędkość pipetowania w zależności od typu komórki i wymagań eksperymentalnych.
4. Przygotowanie sondy hiperpolaryzacyjnej za pomocą polaryzatora DNP (rysunek 4)
- Przygotowanie fiolki z próbką
- Dodać 18 μl [1-13C] kwasu pirogronowego (14,2 M) domieszkowanego 25 mM OX063 do fiolki z próbką. Podłączyć fiolkę do ścieżki płynu systemu polaryzacyjnego DNP.
- Polaryzacja próbki
- Umieścić fiolkę w zespole otworu polaryzatora DNP (6.7 T, 1.25 K, 1.2 mbar). Stosować promieniowanie mikrofalowe o częstotliwości około 188 GHz (22 mW) przez 60-80 minut.
- Monitorowanie sygnału podczas polaryzacji
- Użyj półprzewodnikowego spektrometru NMR wbudowanego w system DNP, aby monitorować natężenie sygnału 13C. Nagrywaj dane sygnału co 5 minut za pomocą oprogramowania NMR (SPINit).
- Rozpuść i przygotuj hiperspolaryzowany roztwór
- Szybko rozpuścić spolaryzowaną próbkę w 3,2 ml podgrzanego buforu do rozpuszczania (40 mM Tris, 50 mM NaCl, 80 mM NaOH, 100 mg/L EDTA). Upewnij się, że roztwór osiąga temperaturę biologiczną (308-313 K, pH ~ 7) przed przekazaniem do pomiaru NMR.
UWAGA: Zachowaj ostrożność podczas obchodzenia się z komponentami wysokociśnieniowymi. Podgrzej wstępnie bufor do rozpuszczania do temperatury ~461 K, aby zapewnić wydajny transfer i integralność próbki.
- Szybko rozpuścić spolaryzowaną próbkę w 3,2 ml podgrzanego buforu do rozpuszczania (40 mM Tris, 50 mM NaCl, 80 mM NaOH, 100 mg/L EDTA). Upewnij się, że roztwór osiąga temperaturę biologiczną (308-313 K, pH ~ 7) przed przekazaniem do pomiaru NMR.
5. Konfiguracja NMR
- Przygotowanie spektrometru NMR
- Załaduj próbkę do probówki NMR i włóż ją do spektrometru.
- Wykonuj blokowanie, dostrajanie, dopasowywanie i podkładkowanie na konsoli NMR przy użyciu zautomatyzowanej procedury z wstawioną próbką, aby zoptymalizować rozdzielczość spektralną i stabilność sygnału.
- Ustawianie parametrów akwizycji
- Załaduj sekwencję impulsów 13C (np. zg2d) z włączonym odsprzęganiem protonów (np. 13-CPD).
- Ustaw kąt odwrócenia na 90° za pomocą impulsu 1 μs (P1). Ustaw czas akwizycji na 1,376 s, szerokość widmową na 23 663 Hz, a liczbę punktów akwizycji (TD) na 65 536. Ustaw opóźnienie relaksacji (D1) na 0 s.
- Ustaw liczbę przyrostów czasu (TD1) na 150, aby uzyskać 150 widm sekwencyjnych w trybie pseudo-2D. Dostosuj wzmocnienie odbiornika do niskiej wartości (np. ~1), aby uniknąć nasycenia sygnału z hiperspolaryzowanych próbek.
UWAGA: Ze względu na wysokie natężenie sygnału hiperpolaryzowanego NMR, ustaw wzmocnienie odbiornika na niską wartość (np. ~1), co zwykle odpowiada mniej niż 1% maksymalnego dostępnego wzmocnienia. Wzmocnienie odbiornika jest wewnętrznym, niejednostkowym parametrem, który steruje wzmocnieniem sygnału. Zbyt wysokie wartości mogą spowodować nasycenie sygnału.
6. Pomiar NMR
- Przygotowanie do pomiaru
- Napełnij całą ścieżkę rurki wlotowej od rurki wlotowej do rurki NMR buforem do rozpuszczania, aby uniknąć uwięzienia powietrza (Rysunek 2B). Rurka wlotowa służy zarówno do wstrzykiwania sondy o średniej perfuzji, jak i hiperpolaryzacji.
- Dokładnie sprawdź, czy w rurce wlotowej lub wewnątrz rurki NMR nie ma pęcherzyków powietrza, ponieważ pęcherzyki w tym obszarze mogą zakłócać akwizycję sygnału podczas pomiarów NMR.
- Preparat do wstrzykiwania roztworu hiperpolaryzacyjnego
- Zatrzymać pompę perystaltyczną, aby tymczasowo zatrzymać krążenie medium przed wstrzyknięciem hiperspolaryzowanego roztworu przez rurkę wlotową.
- Rozpocznij akwizycję widmową około 10 s przed rozpuszczeniem hiperspolaryzowanego substratu, aby upewnić się, że sygnał zostanie przechwycony natychmiast po przybyciu do miejsca detekcji NMR po wstrzyknięciu.
- Pobrać 1 ml roztworu za pomocą strzykawki, gdy wychodzi z polaryzatora DNP.
- Wstrzyknięcie roztworu hiperpolaryzacyjnego i potwierdzenie sygnału
- Przełącz zawór trójdrogowy na wlocie bioreaktora do pozycji B, aby wstrzyknąć hiperspolaryzowany roztwór do probówki NMR.
- Po wstrzyknięciu przestawić zawór z powrotem do pozycji A, aby wznowić cyrkulację medium i zapobiec przepływowi wstecznemu.
- Potwierdź pomyślne wstrzyknięcie i przybycie substratu, obserwując wzrost sygnału zaniku swobodnej indukcji (FID) w oprogramowaniu do akwizycji.
7. Przetwarzanie i analiza danych
- Przetwarzanie danych spektralnych
- Załaduj czasowo rozdzielcze widmo NMR do oprogramowania do przetwarzania danych. Jeśli dane są przechowywane w formacie pliku ser, zlokalizuj i załaduj odpowiedni plik.
- Analiza widm
- Wykonaj transformację Fouriera (FT), aby przekonwertować surowy FID na dziedzinę częstotliwości. Zastosuj korekcję fazy ręcznie lub automatycznie. Przeprowadzić korekcję linii bazowej, aby usunąć zniekształcenia.
- Wizualizacja przemiany metabolitów
- Wykreśl sygnały przebiegu w czasie dla pirogronianu C1 (~171 ppm) i mleczanu C1 (~183 ppm).
- Kwantyfikacja przemian metabolicznych
- Obliczyć pole pod krzywą (AUC) dla pików pirogronianu i mleczanu.
- Określić stosunek [mleczanu]/[pirogronianu], dzieląc AUC mleczanu przez AUC pirogronianu.
UWAGA: AUC jest używany zamiast wysokości piku, aby zminimalizować wpływ artefaktów dzwonienia spowodowanych dużym hiperspolaryzowanym sygnałem pirogronianowym [1-¹³C]. Wartości AUC uzyskuje się przez proste zsumowanie natężeń sygnału w zdefiniowanym zakresie całkowania dla każdego piku.
Wyniki
W niniejszym badaniu opracowany system połączono ze spektroskopią NMR z hiperpolaryzacją 13C w celu pomiaru metabolizmu pirogronianu w żywych komórkach w czasie rzeczywistym. Główne sygnały wykryte w jednowymiarowym widmie NMR 13C odpowiadały pirogronianowi (około 171 ppm) i mleczanowi (około 183 ppm)21, co pozwoliło na ocenę metabolicznej konwersji pirogronianu do mleczanu w warunkach fizjologicznych (Rysunek 4).
Jakość spektralna i dynamika sygnału
Reprezentatywne wyniki powtórzonych pomiarów tej samej próbki z wykorzystaniem komórek SCCVII — mysiej linii raka płaskonabłonkowego, często stosowanej w badaniach hiperpolaryzowanego MRI — przedstawiono na Rysunku 5. Pierwszy pomiar wykazał wyraźny wzrost sygnału mleczanu, co wskazuje na aktywną konwersję metaboliczną. Jednakże kolejne pomiary, wykonane w odstępach 1,5 h, wykazały progresywny spadek aktywności metabolicznej. Ta zależna od czasu redukcja prawdopodobnie odzwierciedla stres biologiczny lub adaptację wywołaną początkową iniekcją pirogronianu. Co istotne, podobna przejściowa modulacja metaboliczna została zgłoszona in vivo w badaniach z użyciem hiperpolaryzowanego MRI i EPRI, gdzie natlenienie guza przejściowo zmalało po podaniu pirogronianu22. Wyniki te demonstrują, że powtarzalność tych pomiarów umożliwia nieniszczące śledzenie dynamicznych zmian metabolicznych — co stanowi zaletę trudną do osiągnięcia w przypadku metod niszczących23.
Aby ocenić możliwość zastosowania tego protokołu w odniesieniu do innych typów komórek, przeprowadzono dodatkowe pomiary z wykorzystaniem komórek HeLa, powszechnie stosowanej ludzkiej linii komórkowej raka. Jak pokazano na Rysunku 6, w komórkach HeLa również zaobserwowano wyraźną konwersję pirogronianu do mleczanu. Choć intensywność sygnału stopniowo malała z powodu relaksacji T1, stosunek sygnału do szumu pozostał wystarczający przez cały 60 s okres akwizycji. Wyniki te sugerują, że niniejszy protokół ma szerokie zastosowanie i może służyć jako wszechstronne narzędzie do metabolicznego profilowania w czasie rzeczywistym w różnych typach komórek.
Choć szybki zanik sygnału jest nieodłącznym ograniczeniem NMR opartego na DNP, nasz system mieszania in situ minimalizuje opóźnienie między rozpuszczaniem a pomiarem, zwiększając tym samym czułość detekcji. Dalsze udoskonalenia, takie jak optymalizacja składu matrycy żelowej, mogą rozszerzyć możliwość zastosowania tej metody w szerszym zakresie systemów biologicznych.

Rycina 1: Schematyczny przebieg całego procesu od hodowli komórkowej do pomiaru hiperpolaryzowanego NMR. Proces rozpoczyna się od hodowli komórek (~2 tygodnie), po czym następuje przygotowanie żelu alginianowego (~60 min) w celu enkapsulacji komórek dla zapewnienia stabilności pomiaru. Następnie przeprowadzana jest hiperpolaryzacja przy użyciu systemu polaryzatora DNP (~60 min), a pomiar NMR jest wykonywany za pomocą spektrometru NMR 400 MHz (~5 min). Zdjęcia po prawej stronie przedstawiają instrumenty wykorzystane w tym procesie. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Układ bioreaktora do pomiarów hiperpolaryzowanego NMR. (A) Schemat blokowy układu bioreaktora. Pożywka hodowlana jest wprowadzana do probówki NMR przez wlot A, a następnie kierowana do odpadów. Kuleczki alginianowe zawierające żywe komórki znajdują się wewnątrz probówki NMR. Podczas pomiarów hiperpolaryzowanego NMR, sonda hiperpolaryzowana jest wstrzykiwana przez wlot B, oznaczony jako wlot sondy hiperpolaryzowanej. (B) Fotografia całego układu bioreaktora z wyraźnie oznaczonymi przewodami wlotowymi i wylotowymi. (C) Zbliżenie przełącznika przewodów wlotowych, pokazujące wlot A (perfuzja pożywki) i wlot B (iniekcja sondy hiperpolaryzowanej). (D) Projekt CAD oraz (E) reprezentatywna fotografia wydrukowanego w technologii 3D elementu do mocowania gąbki umieszczonego wewnątrz probówki NMR. Element ten zawiera otwór do prowadzenia szklanej kapilary dostarczającej roztwór substratu hiperpolaryzowanego oraz platformę do utrzymania gąbki. Sam element nie przylega ściśle do wewnętrznej ścianki probówki NMR; (F) zamiast tego, wokół niego wkłada się gąbkę, aby wypełnić lukę. Taka struktura stabilizuje element i pozwala na przepływ zużytej pożywki w górę przez gąbkę, co eliminuje potrzebę wykonania dodatkowego otworu wylotowego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
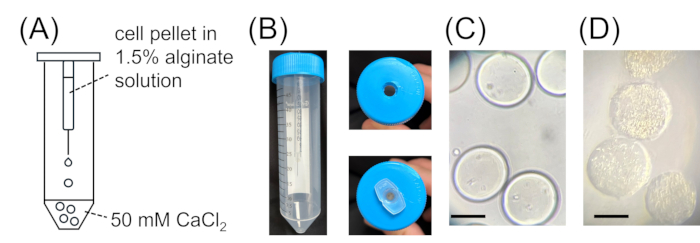
Rycina 3: Przygotowanie żelu alginianowego. (A) Schematyczny rysunek i (B) zdjęcie aparatury do tworzenia kuleczek żelu alginianowego. Obraz po lewej przedstawia cały układ, w tym probówkę do wirowania ze strzykawką przymocowaną do zmodyfikowanej pokrywki. Obraz w prawym górnym rogu pokazuje pokrywkę z małym otworem na końcówkę strzykawki, natomiast obraz w prawym dolnym rogu pokazuje pokrywkę z kwadratowym otworem zapewniającym stabilne ustawienie strzykawki. Probówka do wirowania jest uprzednio wypełniona 10 mL roztworu chlorku wapnia, co pozwala roztworowi alginianu wypływającemu z końcówki strzykawki ulec żelowaniu i utworzyć kuleczki żelu alginianowego. (C) Reprezentatywny obraz mikroskopowy pokazujący morfologię kuleczek żelu alginianowego. (D) Reprezentatywny obraz mikroskopowy pokazujący morfologię kuleczek żelu alginianowego zawierających komórki HeLa. Pasek skali = 200 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
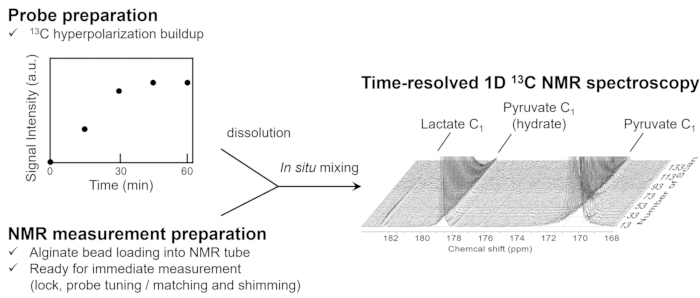
Rycina 4: Schematyczne przedstawienie etapów przygotowania do pomiaru NMR i hiperpolaryzacji. Podczas trwającego ok. 60 min procesu budowania polaryzacji DNP, konfiguracja NMR jest przeprowadzana równolegle w celu zminimalizowania opóźnień. Przygotowanie obejmuje załadowanie kulek alginianowych do probówki NMR, a następnie regulację blokady 1H, shimowanie i strojenie sondy, aby zapewnić gotowość systemu do natychmiastowego pomiaru. Po rozpuszczeniu i mieszaniu in situ, spektroskopia NMR 13C z rozdzielczością czasową wykazuje wyraźne piki pirogronianu i mleczanu. Piki obserwowane przy ok. 171 ppm, 179 ppm i 183 ppm odpowiadają odpowiednio pirogronianowi, uwodnionemu pirogronianowi oraz mleczanowi. Do pomiaru NMR wykorzystano ok. 4 × 10⁷ komórek HeLa zamkniętych w żelu alginianowym. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
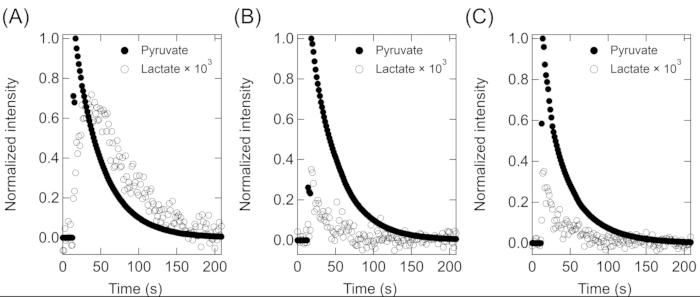
Rycina 5: Detekcja sygnałów pirogronianu i mleczanu rozdzielcza w czasie w pomiarach powtarzalnych. Widma hiperpolaryzowanego 13C NMR tej samej próbki z zamkniętymi wewnątrz komórkami SCCVII zarejestrowano w odstępach 1,5 h w celu oceny wykonalności powtarzalnych pomiarów nieniszczących. Intensywności piku pirogronianu (otwarte kółka) i mleczanu (pełne kółka, przeskalowane 1000×) przedstawiono w funkcji czasu dla każdego pomiaru. (A) Pierwszy pomiar. (B) Drugi pomiar, po 1,5 h, wykazuje wyraźny spadek produkcji mleczanu. (C) Trzeci pomiar, po kolejnych 1,5 h, potwierdził utrzymującą się niską aktywność metaboliczną. Analiza ilościowa oparta na polu pod krzywą (AUC) wykazała, że stosunek [Lactate]/[Pyruvate] spadł z 0,00134 (pierwszy pomiar) do 0,00019 (drugi) i 0,00027 (trzeci). Końcowe stężenie komórek w żelu alginianowym wynosiło około 1,0 × 10⁷ cells/mL (4 × 10⁷ komórek w 4 mL). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
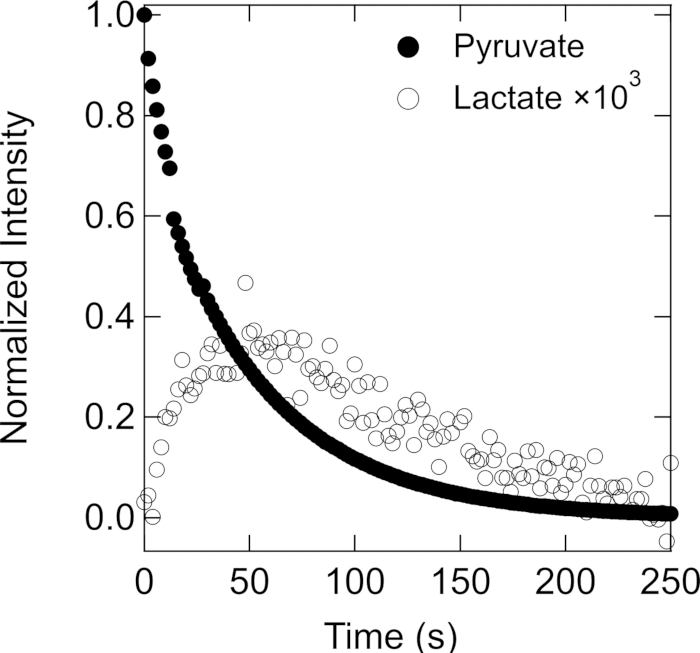
Rycina 6: Konwersja pirogronianu do mleczanu w komórkach HeLa. W żywych komórkach HeLa zmierzono rozdzielone w czasie sygnały hiperpolaryzowanego 13C NMR pirogronianu i mleczanu. Intensywność sygnału pirogronianu została znormalizowana do jego wartości maksymalnej w czasie zero. Intensywność sygnału mleczanu została przeskalowana o czynnik 103 w celu zwiększenia widoczności. Analiza ilościowa oparta na polu pod krzywą (AUC) wykazała stosunek [Lactate]/[Pyruvate] wynoszący 0,00121. Końcowe stężenie komórek w żelu alginianowym wynosiło około 7,5 × 10⁶ komórek/mL (3 × 10⁷ komórek w 4 mL). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rysunek uzupełniający 1. Reprezentatywne zdjęcia przegrody fiolki stosowanej w systemie bioreaktora. (A) Przegroda silikonowa/PTFE (średnica 9 mm) przed użyciem. (B) Ta sama przegroda w trakcie użytkowania, z rurkami PEEK włożonymi przez wykonane otwory. Elastyczność materiału przegrody pozwala na ponowne uszczelnienie wokół rurek, co zapewnia warunki beztlenowe podczas wstrzykiwania hiperpolaryzowanego substratu. Kliknij tutaj, aby pobrać ten rysunek
Rycina uzupełniająca 2: Spektrum NMR hiperpolaryzowanego 13C rozdzielone w czasie, uzyskane po mieszaniu zewnętrznym. Reprezentatywne spektrum rozdzielone w czasie dla metabolizmu [1-13C] pirogronianu, zmierzone przy użyciu laboratoryjnego systemu NMR po zewnętrznym zmieszaniu hiperpolaryzowanego pirogronianu z komórkami poza probówką NMR. Kliknij tutaj, aby pobrać tę rycinię
Plik uzupełniający 1: Projekt CAD uchwytu cylindrycznego. Kliknij tutaj, aby pobrać ten plik
Dyskusja
Krytyczne etapy protokołu
Sukces tego protokołu zależy od kilku krytycznych kroków. Po pierwsze, ważne jest, aby zapewnić prawidłowe rozpuszczenie i przeniesienie hiperspolaryzowanego pirogronianu 13C, aby utrzymać wysoki stosunek sygnału do szumu. Aby uchwycić wczesną metaboliczną konwersję pirogronianu do mleczanu, czas wstrzyknięcia sondy hiperpolaryzacyjnej i akwizycji NMR muszą być zsynchronizowane. Ponadto ważne jest, aby utrzymać żywotność komórek przez cały czas trwania eksperymentu. Odchylenia od tych parametrów mogą skutkować zmniejszoną aktywnością metaboliczną i utratą sygnału.
Modyfikacje i rozwiązywanie problemów z metodą
Chociaż protokół ten zapewnia solidne podejście do monitorowania metabolizmu w czasie rzeczywistym, pewne modyfikacje mogą poprawić jego zastosowanie. Na przykład dostosowanie kąta odwrócenia akwizycji NMR może zrównoważyć intensywność sygnału i zanik polaryzacji w celu optymalizacji gromadzenia danych. Ponadto, chociaż wprowadzono metodę stabilnego przygotowywania żeli alginianowych o określonej wielkości, rozmiar żeli, które mają zostać utworzone, można łatwo dostosować, wybierając strzykawkę lub igłę. Może to przyczynić się do odtworzenia środowiska hipoksyjnego24 , a także zapobiec ucieczce komórek z rurki NMR. Ponadto żel alginianowy staje się gęsty i lepki wewnątrz probówki NMR, szczególnie w obszarze pomiaru NMR. Jeśli powietrze dostanie się do środka podczas wstrzykiwania pożywki hodowlanej lub sondy hiperpolaryzacyjnej z rurki PEEK, prawdopodobnie pozostanie w miejscu pomiaru NMR, co doprowadzi do obniżenia jakości widma.
Ograniczenia metody
Chociaż pomiary hiperpolaryzacyjne mają tę zaletę, że charakteryzują się wysoką czułością sygnałów NMR, mają one nieodłączne ograniczenia. Ze względu na relaksację T1 hiperspolaryzowanego pirogronianu 13C, czas trwania pomiarów metabolicznych jest ograniczony do około 1 minuty, co ogranicza obserwację długotrwałych zmian metabolicznych. Ponadto trudno jest zmierzyć próbkę komórki kilka godzin po jej jednokrotnym pomiarze, co może być związane z kapaniem dużej ilości pirogronianu podczas jednego pomiaru. Jest to równoznaczne z faktem, że pokrewne grupy zmierzyły widma dzień później,18, a interwał pomiaru musi być tak długi.
Znaczenie metody w porównaniu z istniejącymi technikami
W porównaniu z konwencjonalnymi testami metabolicznymi, nasza metoda ma przewagę nad pomiarami punktów końcowych, takimi jak spektrometria mas i testy biochemiczne, ponieważ zapewnia wgląd w metabolizm komórkowy w czasie rzeczywistym. Chociaż podobne hiperspolaryzowane widma NMR można uzyskać bez użycia bioreaktora, możliwość natychmiastowego rozpoczęcia pomiarów z mieszaniem in situ jest korzystna, biorąc pod uwagę szybkość relaksacji. Ponadto komórki można wstępnie ustawić w stabilnym środowisku przed wstrzyknięciem, co poprawia odtwarzalność i dokładność kinetyczną analizy metabolicznej. Ta zaleta jest wspierana przez dodatkowy eksperyment (rysunek uzupełniający 2), w którym widma czasowo-rozdzielcze uzyskano przy użyciu laboratoryjnego systemu NMR po zewnętrznym mieszaniu. W tej konfiguracji opóźnienie wynoszące około 30 s między mieszaniem a akwizycją sygnału prowadziło do znacznej utraty polaryzacji, szczególnie wpływając na wykrywanie mleczanu. Potwierdza to, że mieszanie in situ poprawia wierność pomiarów kinetycznych w warunkach szybkiego rozpaduT1 . Warto jednak zauważyć, że intensywność sygnału w tej konfiguracji in situ była niższa, prawdopodobnie z powodu rozcieńczenia spowodowanego przez średnią perfuzję - problem, który pozostaje do optymalizacji.
Znaczenie i potencjalne zastosowania
Metoda ta może utorować drogę do zastosowań w zrozumieniu właściwości metabolicznych różnych form życia. Pomiar strumieni metabolicznych w czasie rzeczywistym umożliwia naukowcom dynamiczną ocenę skutków działania inhibitorów metabolicznych. Zintegrowanie tego podejścia z innymi technikami pomiarowymi może jeszcze bardziej zwiększyć dokładność analizy metabolizmu wewnątrzkomórkowego.
Przewidujemy praktyczny eksperymentalny przepływ pracy, w którym destrukcyjna, wysokoprzepustowa metabolomika jest wykorzystywana do identyfikacji potencjalnych szlaków, a następnie walidacja w czasie rzeczywistym przy użyciu hiperspolaryzowanego 13C NMR w celu oceny funkcji enzymu i dynamiki strumienia w żywych komórkach. Takie podejście umożliwia bezpośrednie wykrywanie przejściowych odpowiedzi metabolicznych w warunkach fizjologicznych - co jest trudne do osiągnięcia przy użyciu testów immunologicznych lub czujników fluorescencyjnych, które zwykle mierzą statyczne poziomy metabolitów lub wymagają sond egzogennych. Podczas gdy obrazowanie fluorescencyjne i testy immunologiczne są niezbędne odpowiednio do lokalizacji przestrzennej i wysokoprzepustowych badań przesiewowych, hiperpolaryzowany NMR zapewnia uzupełniający odczyt funkcjonalny, który wychwytuje kinetykę reakcji w sposób nieniszczący. Strategia ta nie tylko ułatwia wgląd mechanistyczny na poziomie komórkowym, ale także służy jako pomost do zastosowań diagnostycznych w skali tkanki lub organizmu. W szczególności zdolność do rejestrowania funkcjonalnych zmian metabolicznych w czasie rzeczywistym może pomóc we wczesnym wykrywaniu zaburzeń metabolicznych i reakcji terapeutycznych w złożonych systemach biologicznych.
Poczyniono również postępy w opracowywaniu sond metabolicznych ukierunkowanych na różne szlaki metaboliczne i syntetyczne substraty przeznaczone dla określonych enzymów, rozszerzając możliwości badań metabolicznych25,26. Co więcej, postępy w technikach hiperpolaryzacji, takie jak dostarczanie hiperspolaryzowanych substratów bezpośrednio z polaryzatora do NMR przez tunel magnetyczny27- mogą poprawić retencję sygnału i rozszerzyć potencjalne zastosowania tej metody w badaniach biomedycznych.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Prace te były wspierane przez JSPS KAKENHI Grant Number 23KJ2179 i 24K17833 (dla T.U.), 23K27561 (dla Y.T.); MEXT Q-LEAP [JPMXS0120330644 (do Y.T.)]; oraz MEXT Promocja Rozwoju Wspólnego Projektu Systemu Użytkowania/Badań: Koalicja Uniwersytetów na rzecz Programu Doskonałości Badawczej (CURE) Grant nr JPMXP1323015488 (program Spin-L nr spin24XQ007).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| [1-13C] kwas pirogronowy | Cambridge Isot ope Laboratories, Inc. | Zobacz materiał CLM-8077 | |
| Drukarka 3D | Elegoo | Saturn 2 | |
| Chlorek wapnia | Nacalai Tesque, Inc. | 06729-55 | |
| D2O | Sigma-Aldrich | 151882 | |
| Zestaw cyrkulacji zewnętrznej do pompy | JAKO JEDNOŚĆ | 1-4141-02 | |
| Surowica bydlęca płodu | Gibco (firma Gibco) | 10270106 | |
| Zestaw montażowy bez kołnierza | GL Sciences Inc. | 6010-46390 | |
| Szklana kapilara z rdzeniem | Narishige powiedział: | GDC-1.5 | Średnica wewnętrzna ~0,9 mm, długość 90 mm |
| Magnetyczna pompa obiegowa | JAKO JEDNOŚĆ | 1-4141-01 | |
| MestReNova | Badania Mestrelab | Oprogramowanie do przetwarzania i analizy spektralnej NMR | |
| Moja strzykawka do strzałów | Korporacja Nipro | 8277 | 0,5 mL/100U, 30G x 10 mm, 140 szt. |
| OX063 powiedział: | Oxford Instruments Co. Ltd. oraz Polarize IVS Co. Ltd. | - | |
| Rurka PEEK | JAKO JEDNOŚĆ | 3-780-05 | |
| penicylina-streptomycyna | Nacalai Tesque, Inc. | 26252-94 | |
| Pompa Peristaltic Bio Mini | Lotnisko ATTO | 1221200 | Wysoka precyzja, szerokie natężenie przepływu zapewnia stabilny przepływ medium |
| Żywica | Technologia Siraya | Przydymiona czerń | |
| RPMI-1640 Średni | Nacalai Tesque, Inc. | 30264-85 | |
| Przegroda w fiolce silikon/PTFE | GL Sciences Inc. | 1030-50009 | |
| Alginian sodu 80-120 | FUJIFILM Wako Pure Chemical Corporation | 194-13321 | |
| Oprogramowanie SPINit | RS2D | Oprogramowanie NMR w polaryzatorze DNP | |
| Gąbka | - | - | Dostępna w handlu gąbka przycięta na wymiar do stabilizacji żelu |
| Zawór odcinający trójdrogowy | JAKO JEDNOŚĆ | 3-6247-04 | |
| Topspin | Bruker | Oprogramowanie do akwizycji i przetwarzania danych NMR | |
| Trypsyna-EDTA (0,25%) | Thermo Fisher Naukowy | 07086-74 | |
| Żywica utwardzana promieniami UV | BONDIC | BD-SKCJ | |
| Kąpiel wodna | JAKO JEDNOŚĆ | 1-5832-41 | Robot termiczny TR serii TR-1α do utrzymania 37 ° Temperatura C |
| Wilmad Zakręcana rurka NMR | Sigma | Z271977 | Częstotliwość 400 MHz, średnica 10 mm, L 178 mm. |
Bibliografia
- Ardenkjaer-Larsen, J. H., et al. Increase in signal-to-noise ratio of >10,000 times in liquid-state NMR. Proc Natl Acad Sci USA. 100 (18), 10158-10163 (2003).
- Comment, A., Merritt, M. E. Hyperpolarized magnetic resonance as a sensitive detector of metabolic function. Biochemistry. 53 (47), 7333-7357 (2014).
- Balzan, R., et al. Dissolution Dynamic Nuclear Polarization Instrumentation for Real-time Enzymatic Reaction Rate Measurements by NMR. J Vis Exp. (108), e53548(2016).
- Liu, M., Hilty, C. Metabolic measurements of nonpermeating compounds in live cells using hyperpolarized NMR. Anal Chem. 90 (2), 1217-1222 (2018).
- Sannelli, F., Jensen, P. R., Meier, S. In-cell NMR approach for real-time exploration of pathway versatility: substrate mixtures in nonengineered yeast. Anal Chem. 95 (18), 7262-7270 (2023).
- Harris, T., Eliyahu, G., Frydman, L., Degani, H. Kinetics of hyperpolarized 13C1-pyruvate transport and metabolism in living human breast cancer cells. Proc Natl Acad Sci USA. 106 (43), 18131-18136 (2009).
- Rao, Y., et al. Hyperpolarized [1-13C]pyruvate-to-[1-13C]lactate conversion is rate-limited by monocarboxylate transporter-1 in the plasma membrane. Proc Natl Acad Sci USA. 117 (36), 22378-22389 (2020).
- Mathiassen, T. B. W., et al. Hyperpolarized 13C NMR for longitudinal in-cell metabolism using a mobile 3D cell culture system. J Magn Reson Open. 16 - 17 (100131), 100131(2023).
- Meier, S., et al. Hyperpolarized 13C NMR reveals pathway regulation in Lactococcus lactis and metabolic similarities and differences across the tree of life. Molecules. 29 (17), 4133(2024).
- Sriram, R., et al. Detection of bacteria-specific metabolism using hyperpolarized [2-13C]pyruvate. ACS Infect Dis. 4 (5), 797-805 (2018).
- Park, J. M., et al. Hyperpolarized sodium [1-13C]-glycerate as a probe for assessing glycolysis in vivo. J Am Chem Soc. 139 (19), 6629-6634 (2017).
- Singh, J., et al. Probing carbohydrate metabolism using hyperpolarized 13C-labeled molecules. NMR Biomed. 32 (10), e4018(2019).
- Bohndiek, S. E., et al. Hyperpolarized [1-13C]-ascorbic and dehydroascorbic acid: vitamin C as a probe for imaging redox status in vivo. J Am Chem Soc. 133 (30), 11795-11801 (2011).
- Yamamoto, K., et al. Real-time insight into in vivo redox status utilizing hyperpolarized [1-13C] N-acetyl cysteine. Sci Rep. 11 (1), 12155(2021).
- Düwel, S., et al. Imaging of pH in vivo using hyperpolarized 13C-labelled zymonic acid. Nat Commun. 8 (1), 15126(2017).
- Chen, J., Hackett, E. P., Singh, J., Kovács, Z., Park, J. M. Simultaneous assessment of intracellular and extracellular pH using hyperpolarized [1-13C]alanine ethyl ester. Anal Chem. 92 (17), 11681-11686 (2020).
- Eills, J., et al. Spin hyperpolarization in modern magnetic resonance. Chem Rev. 123 (4), 1417-1551 (2023).
- Keshari, K. R., et al. Hyperpolarized 13C spectroscopy and an NMR-compatible bioreactor system for the investigation of real-time cellular metabolism. Magn Reson Med. 63 (2), 322-329 (2010).
- Sriram, R., et al. Real-time measurement of hyperpolarized lactate production and efflux as a biomarker of tumor aggressiveness in an MR compatible 3D cell culture bioreactor. NMR Biomed. 28 (9), 1141-1149 (2015).
- Mangas-Florencio, L., et al. A DIY bioreactor for in situ metabolic tracking in 3D cell models via hyperpolarized 13C NMR spectroscopy. Anal Chem. 97 (3), 1594-1602 (2025).
- Hill, D. K., et al. Model free approach to kinetic analysis of real-time hyperpolarized 13C magnetic resonance spectroscopy data. PLoS One. 8 (9), e71996(2013).
- Saito, K., et al. 13C-MR spectroscopic imaging with hyperpolarized [1-13C]pyruvate detects early response to radiotherapy in SCC tumors and HT-29 tumors. Clin Cancer Res. 21 (22), 5073-5081 (2015).
- Sengupta, D., Pratx, G. Imaging metabolic heterogeneity in cancer: from PET to hyperpolarized MRI. Mol Cancer. 15, 43(2016).
- Read, G. H., et al. Three-dimensional alginate hydrogels for radiobiological and metabolic studies of cancer cells. Colloids Surf B Biointerfaces. 171, 197-204 (2018).
- Meier, S., Jensen, P. R., Karlsson, M., Lerche, M. H. Hyperpolarized NMR probes for biological assays. Sensors. 14 (1), 1576-1597 (2014).
- Kondo, Y., Nonaka, H., Takakusagi, Y., Sando, S. Design of nuclear magnetic resonance molecular probes for hyperpolarized bioimaging. Angew Chem Int. Ed. 60 (27), 14779-14799 (2021).
- Milani, J., et al. A magnetic tunnel to shelter hyperpolarized fluids. Rev Sci Instrum. 86 (2), 024101(2015).
Przedruki i uprawnienia
