W artykule przedstawiono model kohodowli komórek osłonki bydlęcej i komórek ziarnistych. Metoda ta może potencjalnie służyć jako wiarygodna podstawa do analiz skoncentrowanych na badaniu komunikacji parakrynnej i transportu substratu między komórkami somatycznymi w obrębie pęcherzyka.
Artykuł metodologiczny
Zmodyfikowany system kohodowli w celu zrozumienia interakcji komórek ziarnisto-osłonkowych w jajniku bydła
W tym artykule
Podsumowanie
Streszczenie
Niezawodna kohodowla komórek ziarnistych (GC) i komórek osłonki (TC) może ułatwić bardziej kompleksowe zrozumienie interakcji, szlaków sygnałowych i wymiany substratu między oboma przedziałami komórkowymi w pęcherzyku jajnikowym bydła. Wykorzystując dostępne na rynku wstawki do hodowli komórkowych, stworzono powtarzalny model współhodowli GC i TC bydła. Zaobserwowano, że pierwotne komórki osłonki i ziarnistości potrzebują znacznie więcej czasu na przyczepienie się do błony wstawienia w porównaniu z liniami komórkowymi. Początkowo TC wysiewano na odwróconą membranę wkładu, z obciętą rurką służącą jako pojemnik do zaszczepiania, aby zapobiec wyciekowi pożywki. Po 72-godzinnym okresie inkubacji wkładkę odwrócono, co pozwoliło na hodowlę GC po przeciwnej stronie membrany. Tę kokulturę poddano następnie dodatkowym 6 dniom inkubacji w temperaturze 37 °C i 5% CO2 , z wymianą pożywek co drugi dzień. Ekspresja genów markerowych wskazywała na wzorce specyficzne dla typu komórki, przy czym CYP17A1 były bardzo obfite w TC i nie wykazywały ekspresji w GCs. I odwrotnie, wykazywały CYP19A1 wysokie poziomy w GC i tylko niskie poziomy w TCs. Analiza hormonalna potwierdziła obecność fizjologicznego systemu kohodowli, o czym świadczy synteza estradiolu. Ten zmodyfikowany model kohodowli wspiera powtarzalne badania sygnalizacji parakrynnej i transportu substratu między komórkami somatycznymi pęcherzyka.
Wprowadzenie
Podczas folikulogenezy wzrost hormonu luteinizującego (LH) wyzwala kaskadę zmian fizjologicznych w jajniku, co ostatecznie prowadzi do uwolnienia dojrzałego oocytu podczas owulacji 1,2. Proces ten jest ściśle regulowany przez pęcherzykowe komórki somatyczne, które stanowią niezbędne wsparcie dla dojrzewania oocytów i zapewniają prawidłowe funkcjonowanie owulacji3. Pęcherzyk składa się z dwóch typów steroidogennych komórek somatycznych, wewnętrznej warstwy komórek ziarnistych (GC) i zewnętrznej warstwy komórek osłonki (TC). Spośród nich GK ulegają najbardziej wyraźnym zmianom morfologicznym i funkcjonalnym po wyrzucie LH, co podkreśla ich kluczową rolę w koordynowaniu końcowych etapów rozwoju pęcherzykówwłosowych 4. W związku z tym GK są bardzo interesujące w analizie czynników, które mogą wpływać na folikulogenezę, owulację i luteinizację.
Wcześniej ustalono model hodowli komórkowej GK bydła naśladujący status aktywny estradiolu 5,6,7,8,9,10,11. Ten model hodowli bez surowicy pozwala na wiarygodną analizę fizjologii GC i możliwe analizy efektorowe w szlakach sygnałowych, regulacji genów i syntezie hormonów 12,13,14. Jednak struktura pęcherzyków jest znacznie bardziej złożona, na co zwraca uwagę hipoteza 2-komórkowej 2-gonadotropiny15. Podkreśla to zależność i wzajemne powiązanie typów komórek w kontekście syntezy steroidów, które są podzielone między dwie warstwy.
W wielu badaniach opisano modele hodowli TC, które są podobne do wcześniej ustalonych systemów monokultur GC 16,17,18. Opisano jednak system kohodowli komórek osłonki świń i komórek ziarnistych, w którym obie populacje komórek są hodowane w jednym naczyniu w stosunku 4:1 GC do TC 19,20,21. W tym modelu można wykazać, że istnieje funkcjonalny system i interakcja między komórkami ziarnistości i osłonki, ujawniająca większą ilość estradiolu w systemie kokultury niż w monokulturze. Należy jednak zauważyć, że model ten nie jest w stanie odpowiednio przeanalizować interakcji i wymiany substratu między komórkami ziarnistymi i osłonkami, ponieważ oba typy komórek mogą być w różny sposób dotknięte. W związku z tym analiza poziomów molekularnych GC i TC niezależnie od siebie jest prawie niemożliwa bez skomplikowanej procedury sortowania, która sama w sobie może wpływać na fizjologię komórki. Ponadto ważne jest, aby wziąć pod uwagę, że model ten może nie odwzorowywać dokładnie sytuacji sprzed wyrzutu LH, kiedy GC i TC są oddzielone membraną podstawną3. U bydła zaproponowano system hodowli komórkowej oparty na błonie, w którym oba typy komórek są hodowane po obu stronach błony kolagenowej, odzwierciedlając w ten sposób dokładniej sytuację in vivo 22,23,24,25,26.
Adaptując wstępną koncepcję systemu opartego na błonie, metoda ta miała na celu stworzenie modelu wspólnej hodowli bydła GC i TC z wkładkami do hodowli komórkowych, aby umożliwić przyszłe badania sygnalizacji parakrynnej między obydwoma przedziałami komórkowymi. Przedstawiona metoda wykorzystuje dostępne na rynku wiszące wkładki do hodowli komórkowych zamiast niestandardowego systemu membranowego, oferując takie korzyści, jak wyższa odtwarzalność, ustandaryzowana jakość i lepsza stabilność produktu. Takie podejście zapewnia spójność między eksperymentami, co czyni je cennym narzędziem dla naukowców badających interakcje komórek pęcherzykowych. Procedura hodowli obejmuje wstępny wysiew 1,7-1,8 x 10⁵ komórek osłonki na spodniej stronie wkładki, a następnie około 1,0 x 10⁵ komórek ziarnistych na górnej powierzchni po inwersji i 72-godzinnej inkubacji wstępnej. Kultury utrzymuje się w określonym pożywce w warunkach standardowych (37 °C, 5% CO2 ) z pożywką wymienianą co drugi dzień. Aby umożliwić wymianę parakrynną między przedziałami, zastosowano wkładki do hodowli komórkowych 0,4 μm wykonane z poliestru, takie jak politereftalan etylenu (PET) (dostępne na rynku). Błony o tej wielkości porów umożliwiają dyfuzję rozpuszczalnych makrocząsteczek, takich jak hormony, czynniki wzrostu i białka, jednocześnie zapobiegając migracji komórek27,28.
Umożliwiając separację przestrzenną przy jednoczesnym zachowaniu komunikacji parakrynnej, ten system kohodowli zapewnia fizjologicznie istotne środowisko do badania interakcji komórek ziarnisto-osłonowych, szlaków sygnałowych i wymiany substratu. Model ten jest szczególnie przydatny w badaniach wymagających kontrolowanych warunków, takich jak regulacja hormonalna, analiza ekspresji genów lub testowanie leków. Badacze zainteresowani dynamiką pęcherzyków włosowych, fizjologią rozrodu lub zaburzeniami jajników mogą uznać tę metodę za mającą zastosowanie w swoich badaniach. Dodatkowo, zastosowanie standaryzowanych wkładek pozwala na łatwą adaptację do różnych potrzeb eksperymentalnych, w tym modyfikacji czasu trwania hodowli, typów komórek lub warunków obróbki.
Protokół
Jajniki bydlęce pozyskano z lokalnej rzeźni komercyjnej. W tym układzie eksperymentalnym przygotowanie jajników odbywa się w ciągu 2 godzin po otrzymaniu. Zbieranie produktów ubocznych z rzeźni nie wymaga zgody etycznej zgodnie z niemieckim prawem.
UWAGA: Izolacja i kriokonserwacja GK bydła została już opisana i przedstawiona w poprzednim raporcie z metody6 i może być odpowiednio przeprowadzona.
1. Przygotowanie odczynników i ustawienie do rozwarstwienia pęcherzyków jajnikowych
- Przygotuj 1x PBS (pH 7,4) uzupełniony 100 j.m. penicyliny, 0,1 mg/ml streptomycyny i 0,5 μg/ml amfoterycyny do transportu jajników. Roztwór można przechowywać w temperaturze 4 °C do 4 tygodni.
- Przygotuj roztwór wytrawiający zawierający 10x bufor soli Hanksa uzupełniony 25 mM HEPES, 100 j.m. penicyliny, 0,1 mg/ml streptomycyny i 0,5 μg/ml amfoterycyny. Roztwór do wytrawiania można przechowywać w temperaturze 4 °C przez 2-3 tygodnie.
- Wypełnić 1 ml roztworu wytrawiającego w probówkach o pojemności 1,5 ml dla każdego planowanego wypreparowanego pęcherzyka i wstępnie ogrzać roztwór do temperatury 37 °C.
- Dodać 10 μl kolagenazy NB8, aby uzyskać stężenie 0,1% roztworu trawiącego na krótko przed przygotowaniem.
- Przygotuj następujące naczynia do procedur przygotowania, izolacji i mycia.
- Szklane naczynia o minimalnej średnicy 3 cm do umieszczenia jajników do wycięcia.
- Płytka 6-dołkowa z 1 ml 1x PBS (uzupełniony antybiotykami) do mycia.
- Naczynie 12-dołkowe z około 10 μl roztworu trawiącego.
- W celu kriokonserwacji przygotuj roztwór do zamrażania składający się z 80% płodowej surowicy cielęcej (FCS) i 20% DMSO.
UWAGA: Końcowe stężenie DMSO do kriokonserwacji wyniesie 10%.
2. Rozwarstwienie pęcherzyków z późniejszym trawieniem komórek osłonki bydlęcej
- Wykonaj procedury trawienia komórek, a także prace związane z hodowlą komórkową pod stołem z przepływem laminarnym.
- Umyj jajniki 2-3 razy w 1x PBS (uzupełnione antybiotykami, patrz krok 1.1), aby usunąć krew i inne pozostałości z powierzchni. Umieść jajniki w kubku, napełnij go 1x PBS, tak aby jajniki były przykryte, a następnie wylej roztwór. Powtórz ten krok 3-4 razy, aż jajniki będą czyste.
- Umieść jeden jajnik w szklanym naczyniu i wybierz pęcherzyki o wielkości 5-11 mm, mierzone linijką, do rozwarstwienia.
- Odessać płyn pęcherzykowy za pomocą strzykawki o pojemności 3 ml i igły 18 G, nakłuwając jeden wybrany pęcherzyk. Wyrzuć płyn pęcherzykowy.
- Rozciąć mieszek włosowy nożyczkami, zaczynając od miejsca, w którym igła została wkłuta podczas aspiracji. Użyj lornetki do precyzyjnego cięcia.
- Użyj pęsety na krawędzi tnącej mieszka włosowego, aby chwycić najbardziej wewnętrzną warstwę, osłonkę wewnętrzną.
- Spróbuj odkleić osłonkę wewnętrzną od wewnętrznej strony otwartej ściany mieszków włosowych.
UWAGA: W zależności od wieku lub stadium pęcherzyka, warstwę komórek osłonki można łatwiej złuszczyć, co skutkuje nienaruszoną warstwą osłonki.
- Umieść warstwę komórek osłonki w naczyniu wypełnionym 1x PBS (uzupełnionym antybiotykami, patrz krok 1.1.), aby usunąć pozostałe komórki ziarniste.
- Delikatnie zeskrob komórki ziarniste z wewnętrznej strony błony za pomocą skalpela. Komórki powinny łatwo odłączać się w dużych skupiskach.
- Umieść warstwę komórek theca w nowym naczyniu wypełnionym 1x PBS, aby ją umyć.
- Ostrożnie opłucz membranę, mieszając ją ze świeżym 1x PBS, aby usunąć wszelkie luźne komórki.
UWAGA: Począwszy od następnego kroku, pracuj pod skrzynką z przepływem laminarnym.
- Przenieść theca interna do przygotowanego roztworu wytrawiającego na płytce 12-dołkowej (patrz kroki 1.2 i 1.3.3) i pokroić ją na małe kawałki, przypuszczalnie 1-3 mm, za pomocą skalpela.
UWAGA: Zaleca się niezależne trawienie komórek osłonki z różnych mieszków włosowych, aby zapobiec zatykaniu się tkanek różnego pochodzenia. - Przenieść fragmenty theca do przygotowanej probówki reakcyjnej o pojemności 1,5 ml (patrz kroki 1.2.1 i 1.2.2). Inkubować osłonkę w inkubatorze z wytrząsaniem termosem z prędkością 800 obr./min w temperaturze 37 °C przez 45-50 min.
- Po wytrząsaniu przez 30 minut rozpocznij wirowanie probówek reakcyjnych przez 3-5 s i umieść je z powrotem w inkubatorze do wytrząsania.
- Powtórz ten krok 3-4 razy w pozostałym czasie inkubacji.
- Po inkubacji ponownie zawiesić strawione komórki za pomocą pipety.
- Wyeliminuj niestrawioną tkankę przez filtrację za pomocą sitka o wielkości 100 μm umieszczonego na probówce o pojemności 50 ml i natychmiast przystąp do liczenia i kriokonserwacji komórek w celu usunięcia pożywki wytrawiającej.
3. Liczenie i kriokonserwacja TC
- Aby policzyć liczbę żywotnych komórek, przygotuj probówkę z 1,5 μl 0,25% roztworu błękitu trypanowego. Żywe komórki pozostaną niezabarwione, podczas gdy martwe komórki wydają się niebieskie z powodu dostępu błękitu trypanowego przez przerwane bariery komórkowe.
- Dodać 15 μl strawionej zawiesiny komórkowej do roztworu błękitu trypanowego i delikatnie wymieszać.
- Umieścić 10 μl mieszaniny w obu komorach hemocytometru. Policz liczbę żywych (= bezbarwnych) komórek w jednym dużym kwadracie na komorę.
- Określ liczbę żywych komórek za pomocą średniej z obu kwadratów komory, postępując zgodnie ze standardowymi wytycznymi. Należy pamiętać, że proporcje żywych komórek mogą się różnić między jajnikami.
- Zamrozić niestrawione części zawiesiny komórek osłonki (patrz krok 2.9) w celu zamierzonego porównania jako kontroli bez hodowli i przeprowadzenia oceny potencjalnego zanieczyszczenia krzyżowego GC (jak pokazano na rysunku 2).
- Przenieść niestrawioną tkankę każdej wypreparowanej theca interna, która pozostaje w sitku do komórek o wielkości 100 μm (patrz krok 2.10) do oznakowanej probówki.
- Szokowe zamrożenie probówki w ciekłym azocie przed przechowywaniem w temperaturze -80 °C.
- Przeprowadzić kriową konserwację wyizolowanych komórek osłonki w celu ułatwienia lepszego planowania hodowli komórkowych, ze szczególnym uwzględnieniem wymaganej liczby komórek.
- Odwirować rozpawioną zawiesinę komórkową o sile 500 x g przez 5 minut w temperaturze pokojowej (średnio 20 °C). Odrzucić supernatant.
- Ostrożnie rozpuść osad komórkowy w 1 ml 100% FCS. Dodać 1 ml pożywki do zamrażania (patrz krok 1.4) do roztworu komórkowego. Końcowe stężenie DMSO do kriokonserwacji wynosi 10%. Przenieść mieszaninę do określonych fiolek kriogenicznych o pojemności 2 ml.
- Umieścić fiolki w chłodniejszym urządzeniu w celu kontrolowanego spadku temperatury. W tej konfiguracji użyto specjalnego pojemnika do zamrażania, który gwarantuje szybkość zamrażania -1 °C/min po umieszczeniu na co najmniej 4 godziny w temperaturze -80 °C. Następnie fiolki mogą być przechowywane w systemach przechowywania ciekłego azotu.
4. Przygotowania do pracy z hodowlą komórkową
- Odetnij pokrywkę od probówki reakcyjnej o pojemności 1,5 ml. Następnie należy odciąć rurkę reakcyjną około 1 cm od otworu za pomocą skalpela (najlepiej podgrzanego) lub odpowiedniego obcinaka do węży. Następnie przeprowadź autoklaw pocięte rurki i pokrywki. Pokrywki mogą być wymagane do kolejnych procedur hodowli komórkowej (patrz krok 5.5).
UWAGA: Upewnij się, że probówki o pojemności 1.5 ml ściśle przylegają do wybranej wkładki. - Upewnij się, że wkładki są pokryte 0,02% kolagenem R do mocowania GC i TC w kulturze.
UWAGA: Procedurę powlekania należy wykonać pod sterylnym okapem z przepływem laminarnym.- Użyj oczyszczonej wody (odpowiedniej do hodowli komórkowych), aby przygotować 0,02% roztwór R kolagenu. Przygotować 80 μl tego roztworu na każdą wymaganą wkładkę do hodowli komórkowej.
- Umieść wkładkę do góry nogami w pokrywce płytki 24-dołkowej. Delikatnie dodaj 40 μl roztworu kolagenu R do membrany wkładu, upewniając się, że pozostaje na swoim miejscu. Pozostaw roztwór kolagenu R do wyschnięcia na 4-5 godzin pod okapem z przepływem laminarnym.
- Obróć wkładkę i zawieś ją w dołkach 24-dołkowej płytki, aby ponownie pokryć drugą stronę 40 μl roztworu kolagenu R. Pozostaw roztwór do wyschnięcia na 4-5 godzin.
- Naświetlać wkładki światłem UV przez 10-15 minut, aby zmniejszyć zanieczyszczenie.
- Wkładki należy przechowywać w płytce 24-dołkowej (najlepiej w sterylnej torbie do podawczej) oraz w lodówce w temperaturze 4°C i można je stosować do 4 tygodni.
- Przygotować pożywkę 8,10 w następujący sposób:
UWAGA: Procedurę przygotowania pożywki należy wykonać pod sterylnym kapturem z przepływem laminarnym.- Uzupełnij α-Minimial Essential Medium (α-MEM) w 2 mM L-glutaminy, 0,084% wodorowęglanu sodu, 0,1% BSA, 20 mM HEPES, 4 ng/ml seleninu sodu, 5 μg/ml transferyny, 10 ng/ml insuliny i 1 mM aminokwasów endogennych.
UWAGA: Aby zapewnić spójność, zaleca się wcześniejsze przygotowanie wystarczającej ilości podłoża na cały eksperyment. Tak przygotowane podłoże można przechowywać w temperaturze 4 °C. W opisanej konfiguracji użyj 750 μl na studzienkę hodowli komórkowej. - Ponadto do przygotowanej pożywki dodać 100 j.m. penicyliny, 0,1 mg/ml streptomycyny i 0,5 μg/ml amfoterycyny.
- Podgrzej podłoże w temperaturze 37 °C w łaźni wodnej.
UWAGA: Po wstępnym podgrzaniu pożywki antybiotyki są stabilne przez około 48 godzin. Dlatego podajcie tylko żądaną ilość pożywki do ocieplenia. - Dodatkowo uzupełnij α-MEM o 20 ng/ml hormonu folikulotropowego (FSH), 50 ng/ml R3 IGF-1 i 2 μM androstendionu dla fizjologicznego środowiska komórkowego 7,8,10,11.
UWAGA: Dodać te składniki na krótko przed rozpoczęciem hodowli lub wymiany pożywki. Aby zapobiec pogorszeniu aktywności, konieczne jest unikanie powtarzających się cykli zamrażania i rozmrażania roztworów podstawowych FSH i IGF-1.
- Uzupełnij α-Minimial Essential Medium (α-MEM) w 2 mM L-glutaminy, 0,084% wodorowęglanu sodu, 0,1% BSA, 20 mM HEPES, 4 ng/ml seleninu sodu, 5 μg/ml transferyny, 10 ng/ml insuliny i 1 mM aminokwasów endogennych.
5. Współkultura TC i GC
- Przygotować komorę inokulacyjną do hodowli komórek osłonki (ryc. 1A).
- Umieść powlekaną wkładkę do góry nogami na większej płytce (np. płytce 12-dołkowej).
- Umieść wyciętą i autoklawowaną rurkę na odwróconej wkładce (patrz krok 4.1). Upewnij się, że rurka jest mocno osadzona na wkładce, aby zapobiec wyciekowi mediów.
- Kriokonserwowane komórki osłonki należy szybko rozmrozić w łaźni wodnej o temperaturze 37 °C przez 3-5 minut i natychmiast po rozmrożeniu przenieść zawiesinę komórek do wstępnie podgrzanego podłoża.
- Odwirować zawiesinę komórek osłonki o sile 500 x g przez 3 minuty w temperaturze pokojowej (średnio 20 °C) i odrzucić supernatant. Dodaj uzupełniony α-MEM i ostrożnie ponownie zawieś komórki.
- Wysiew 1,7-1,8 x 10⁵ komórek na wkładkę w komorze inokulacyjnej w końcowej objętości 200 μL pożywki. Należy uwzględnić co najmniej trzy powtórzenia techniczne dla każdego warunku.
- Aby zamknąć naczynie do hodowli komórkowych pokrywką, może być konieczne zwiększenie odległości między naczyniem a pokrywką podczas korzystania z komory do zaszczepiania.
- Użyć wyciętych i autoklawowanych nasadek z probówek reakcyjnych o pojemności 1,5 ml (patrz krok 4.1) i umieścić je w każdym rogu płytek do hodowli komórkowych. Nasadki będą działać jako podpory, aby lekko podnieść pokrywę płytki, zapewniając wystarczająco dużo miejsca na komorę zaszczepiania, jednocześnie odpowiednio przykrywając naczynie hodowlane.
- Ostrożnie zamknij płytkę studzienki, upewniając się, że pozostaje stabilna i nie dotyka membrany ani komory.
- Delikatnie przenieś płytkę do nawilżonego inkubatora do hodowli komórkowych.
- Inkubować komórki osłonki przez 3 dni w temperaturze 37 °C z 5% CO2 , aby umożliwić przyczepienie komórek do błony.
- Obróć wkładkę po 3 dniach hodowli, aby przygotować się do wysiewu za pomocą GC (Rysunek 1B).
- Przygotuj 24-dołkową płytkę i napełnij 500 μl pożywki w każdym z pożądanych dołków.
- Za pomocą pipety usuń wszystkie podłoża z komory zaszczepiającej. Ostrożnie wyjmij komorę inokulacyjną z wkładki za pomocą pęsety.
- Umieść wkładkę z dołączonymi komórkami osłonki w przygotowanej 24-dołkowej płytce, upewniając się, że TC są skierowane w dół (więcej szczegółów patrz rysunek 1B ).
- Aby wysiać komórki ziarniste z kriokonserwacji, wykonaj kroki 5.2 i 5.3.
- Wysiewać około 1,0 x 10⁵ komórek na wkładkę w końcowej objętości 250 μl pożywki, która jest umieszczona wewnątrz wkładki.
- Następnie inkubować kokulturę w temperaturze 37 °C z 5% CO2 przez kolejne sześć dni.
- Wymianę pożywki należy przeprowadzać co 48 godzin po wysiewie GC, gdy wymieniane są tylko dwie trzecie pożywek hodowlanych. Powinno to zmniejszyć stres związany z procedurą i pomóc w dostosowaniu się do nowo dodanych pożywek.
6. Dalsza analiza hodowanych komórek osłonki i ziarnistości
- Przeprowadzić ocenę morfologiczną komórek osłonki i ziarnistości w całej hodowli komórkowej za pomocą mikroskopu z kontrastem fazowym, aby monitorować przyczepianie i rozprzestrzenianie się obu typów komórek (patrz ryc. 3).
- Do analizy hormonów steroidowych należy zebrać pożywkę i zamrozić w temperaturze -20 °C. Należy użyć odpowiedniej metody do analizy stężeń pożądanych hormonów steroidowych (np. w tym procesie pracy estradiol analizowano za pomocą RIA 5,29).
UWAGA: Analiza hormonów steroidowych pomaga ocenić stan fizjologiczny kultury7. - Aby przeanalizować ekspresję genu, należy najpierw wyizolować RNA za pomocą odpowiedniej techniki (np. procedur zestawowych).
UWAGA: Należy pamiętać, że podczas procedury izolacji oba typy komórek są przygotowywane niezależnie od siebie.- Odciąć komórki z obu stron błony za pomocą odpowiedniego odczynnika (np. trypsyny lub akutazy). Umieścić pożywkę dysocjacyjną zarówno we wkładzie (np. 200 μl akutazy), jak i w studzienkach płytki (np. 500 μl akutazy) tak, aby membrana była całkowicie otoczona przez ośrodek dysocjacyjny.
- Zebrać komórki ziarniste z wkładki, podczas gdy oderwane komórki osłonki można pobrać ze studzienki. Przenieś każdy typ komórek do probówki o pojemności 1,5 ml.
- Odwirować komórki przy 500 x g przez 3 minuty i odrzucić supernatant.
- Poddać komórki lizie, przeprowadzić izolację RNA, a następnie zmierzyć stężenie RNA.
UWAGA: W przypadku większości procedur izolacji protokół można zatrzymać po lizie komórek, tak aby próbki mogły być przechowywane w temperaturze -20 °C przez krótki czas. W celu dłuższego przechowywania, zlizowane komórki można przechowywać w temperaturze -80 °C. - Następnie zsyntetyzuj cDNA, aby zmierzyć obfitość interesujących nas transkryptów za pomocą qPCR. Synteza cDNA wykorzystuje 100 ng RNA z losowymi starterami heksameru i oligo-dT. W przypadku qPCR zastosowano startery specyficzne dla genu, jak opisano wcześniej 5,30. W skrócie warunki cyklu były następujące: wstępna inkubacja w temperaturze 95 °C przez 5 minut, 40 cykli denaturacji w temperaturze 95 °C przez 20 s, wyżarzanie w temperaturze 60 °C przez 15 s, przedłużenie w temperaturze 72 °C przez 15 s i jednopunktowa akwizycja fluorescencyjna przez 10 s. Współamplifikowano zewnętrzny wzorzec pięciu różnych stężeń (5x10-12-5x10-16 g DNA/reakcji). W celu normalizacji obfitości transkryptów obliczono średnią geometryczną RPLP0 i TBP.
- Aby wyeliminować potencjalne zanieczyszczenie krzyżowe, należy ocenić czystość preparatów komórek osłonki i ziarnistości, analizując ekspresję genów markerów specyficznych dla komórki CYP17A1 i CYP19A1 ze świeżo wyizolowanych preparatów komórkowych TC i GC (Figura 2).
UWAGA: Ocena statystyczna powinna obejmować co najmniej trzy powtórzenia różnych kultur komórkowych. W tej konfiguracji eksperymentalnej test t lub jednoczynnikowa ANOVA przeprowadzono po sprawdzeniu normalności i wariancji.
Wyniki
Chociaż TC i GC zostały wyizolowane przy użyciu dobrze znanych technik separacji mechanicznej opartych na kompartmentalizacji pęcherzyków, ekspresję genów specyficznych dla typu komórki CYP17A1 i CYP19A1 oceniono w celu wyeliminowania ryzyka zanieczyszczenia krzyżowego. CYP17A1 ulegała ekspresji wyłącznie w świeżo wyizolowanych TC, podczas gdy CYP19A1 głównie w świeżo wyizolowanych GC (ryc. 2).
System kohodowli umożliwia podział komórek bydlęcych osłonki i ziarnistości po przeciwnych stronach wkładki błonowej, naśladując w ten sposób organizację przestrzenną in vivo. Po trzech dniach w hodowli TC wykazywały spłaszczoną i wydłużoną morfologię, gdy rozprzestrzeniały się po powierzchni błony wstawienniczej pokrytej kolagenem, co wskazuje na pomyślne przyczepienie (Figura 3A). Podczas hodowli w monoterapii przez cały 9-dniowy okres, TC nadal się namnażały i osiągnęły konfluencję w 9 dniu (Figura 3B). W przeciwieństwie do tego, GC hodowane samodzielnie przez 6 dni na membranie wstawienki pokrytej kolagenem rozwinęły fenotyp podobny do fibroblastów, który jest charakterystyczny dla GC in vitro (Figura 3C). Dodatkowo, jak opisano wcześniej, GC mają tendencję do tworzenia klastrów, co jest typową cechą tych komórek w hodowli 5,7,31,32. W systemie kohodowli nie zaobserwowano żadnych widocznych różnic morfologicznych ani w TC, ani GC w porównaniu z ich odpowiednimi dopasowanymi w czasie monokulturami (Figura 3D), co wskazuje, że środowisko oparte na insercji utrzymuje normalne zachowanie komórkowe. Jednak ze względu na ograniczenia techniczne, mikroskopowa ocena kokultury pozostaje wyzwaniem, szczególnie w zakresie rozróżniania i oceny morfologii TC niezależnie od innych komórek. Aby przezwyciężyć te ograniczenia, obecnie trwają prace nad zoptymalizowanym protokołem utrwalania komórek, zgodnie z badaniem alternatywnych strategii identyfikacji komórek w przypadku braku specyficznych dla komórek przeciwciał do barwienia immunologicznego.
Funkcjonalność systemu kohodowli oceniono, analizując produkcję hormonów i ekspresję kluczowych genów markerowych dla TC i GCs33,34, potwierdzając specyficzne dla typu komórki role steroidogenne. Porównanie monokultury GC i modelu kohodowli wykazało podobne poziomy estradiolu (E2) wytwarzane in vitro. Jednak, zgodnie z oczekiwaniami, monokultura TC wytworzyła tylko znikome ilości E2, co jest zgodne z hipotezą 2-komórkowej 2-gonadotropiny (Figura 4A)15, która stwierdza, że komórki osłonki nie mają zdolności do samodzielnej syntezy E2.
Aby dokładniej ocenić fizjologiczne znaczenie warunków hodowli, zbadano ekspresję kluczowych genów markerowych33 . Zgodnie z hipotezą 2-komórkowej 2-gonadotropiny, CYP19A1 ulegała ekspresji głównie w GCs, podczas gdy CYP17A1 głównie wykrywano w TCs, wzorzec obserwowany zarówno w warunkach mono-, jak i kohodowli (Figura 4B, C). Warto zauważyć, że obfitość transkryptów CYP19A1 była wyższa w GK w systemie kokultury w porównaniu z monokulturą GC, pomimo braku zaobserwowanych różnic w stężeniach estradiolu.
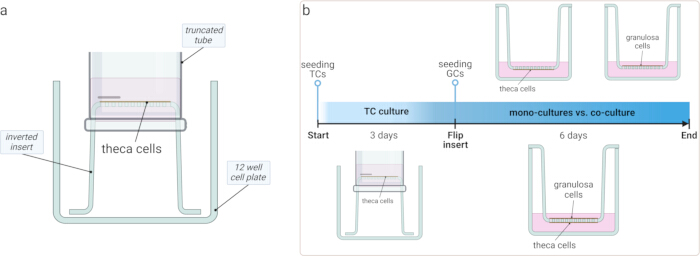
Rysunek 1: Schematyczne przedstawienie konfiguracji hodowli komórkowej. (A) Schemat ilustrujący specjalnie zbudowaną komorę do zaszczepiania, która wykorzystuje ściętą rurkę na odwróconej wkładce, aby zapobiec wyciekowi pożywki przez cały początkowy okres hodowli. (B) Harmonogram procedury eksperymentalnej: TC hodowano na odwróconej wkładce przez trzy dni, aby umożliwić przyczepienie. Wkładka została odwrócona, a GC zostały wysiane po przeciwnej stronie, a następnie dodatkowe sześć dni hodowli. W badaniu porównano TC i GC hodowane oddzielnie z systemem kohodowli TC-GC. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
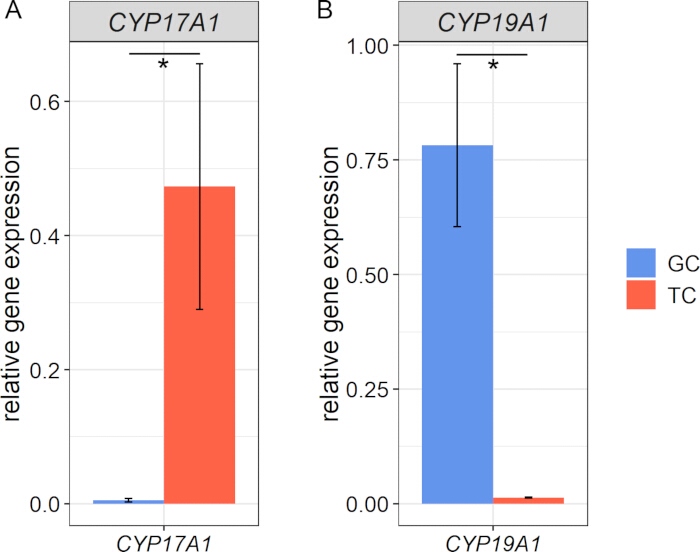
Rycina 2: Ekspresja genów markerów specyficznych dla typu komórki w świeżo wyizolowanych komórkach ziarnistych i osłonkowych. (A) CYP17A1 ulegała ekspresji wyłącznie w TC, podczas gdy (B) CYP19A1 wykrywano głównie w GCs, potwierdzając specyficzność i początkową czystość izolowanych populacji komórek przed hodowlą. Dane przedstawiono jako wyrażenie względne znormalizowane do średniej geometrycznej genów referencyjnych RPLP0 i TBP. Przedstawiono średnie i błąd standardowy średnich, dane badano pod kątem normalności i wariancji, gwiazdki wskazują istotne różnice (n=3, test t). Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
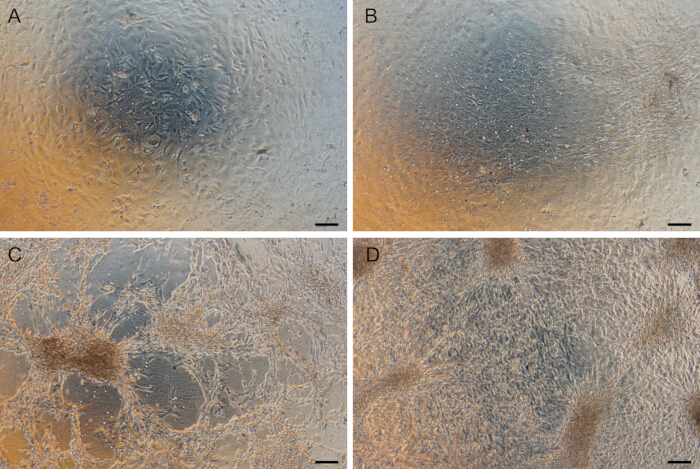
Rycina 3: Morfologia komórek osłonki i ziarnistości w hodowli. (A) TC hodowane przez 3 dni przyłączono do membrany insertowej pokrytej kolagenem. (B) TC zrosły się do konfluencji po całym 9-dniowym okresie w monokulturze. (C) GK wykazują typowy fenotyp podobny do fibroblastów po 6 dniach w hodowli. (D) Kokultura TC i GC nie wykazuje widocznej różnicy morfologicznej w porównaniu z odpowiednimi monokulturami dopasowanymi w czasie. To zdjęcie zostało wykonane po 6 dniach hodowli GC i 9 dniach hodowli TC (w punkcie końcowym eksperymentu z kokulturą). Podziałka 100 μm. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
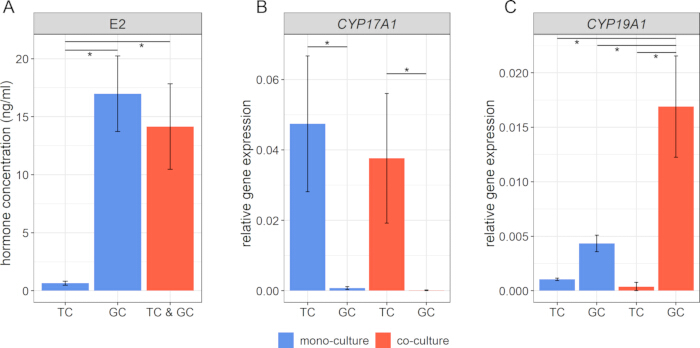
Rycina 4: Analiza markerów funkcjonalnych w systemie kohodowli. (A) Stężenia hormonów estradiolu (E2) potwierdzają fizjologiczną funkcjonalność systemu hodowli komórkowej. (B, C) Analiza ekspresji genów markera TC CYP17A1 i markera GC CYP19A1 wykazuje tożsamość i stan funkcjonalny obu populacji komórek. Do obliczenia względnej ekspresji wykorzystano średnią geometryczną genów odniesienia RPLP0 i TBP . Pokazano średnie i błąd standardowy średnich, dane przetestowano pod kątem normalności i wariancji, gwiazdki wskazują istotne różnice (n=3, jednokierunkowa ANOVA). Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
Dyskusja
Warunkiem wstępnym do przeprowadzenia tego modelu kohodowli jest dobrze przeprowadzona izolacja obu typów komórek, aby zapobiec jakiemukolwiek zanieczyszczeniu krzyżowemu. Czystość obu preparatów komórkowych oceniano na podstawie ekspresji genów CYP17A1 markera specyficznego dla TC i CYP19A1 markera specyficznego dla GC . Jak wykazano wcześniej, technika izolacji GC i TC nie wykazała istotnego zanieczyszczenia krzyżowego30.
Ten model kohodowli pozwala na jednoczesną hodowlę komórek osłonki i ziarnistości po przeciwnych stronach błony, naśladując ich organizację przestrzenną w pęcherzyku i wspierając stan fizjologiczny obu populacji komórek3. Wiarygodność modelu jest wzmocniona przez jego profil produkcji hormonów i wzorce ekspresji genów, które są zgodne z hipotezą 2-komórkowej 2-gonadotropiny15. Zgodnie z oczekiwaniami, niskie poziomy estradiolu w monokulturze TC potwierdzają, że same komórki osłonki nie są w stanie syntetyzować estradiolu, co potwierdza ustaloną wiedzę na temat steroidogenezy pęcherzyków35. Pomimo wyższej ekspresji CYP19A1 w współhodowanych GC, poziomy estradiolu pozostały porównywalne z monokulturą GC, co sugeruje wpływ mechanizmów regulacyjnych, takich jak dostępność substratu, hamowanie sprzężenia zwrotnego lub różnice w aktywności enzymów. Dalsze badania nad szlakami sygnałowymi i mechanizmami leżącymi u ich podstaw są uzasadnione, jako temat przyszłych badań. Niemniej jednak konieczne jest ustanowienie funkcjonalnego systemu kohodowli TC i GC bydła, jak przedstawiono w niniejszym badaniu. Niniejsze badanie koncentrowało się na produkcji estradiolu i poziomach ekspresji mRNA CYP17A1 i CYP19A1 jako kluczowych wskaźnikach funkcjonalności modelu kohodowli. Oba reprezentują wrażliwe markery funkcji komórek ziarnistych i osłonki 4,8,36 i są bezpośrednio zgodne z hipotezą 2-komórkowej 2-gonadotropiny15. Uznając znaczenie ekspresji białka, brak wiarygodnych przeciwciał uniemożliwił jej dokładną ocenę; W związku z tym kompleksowa analiza poziomów białka wykraczała poza zakres tego wstępnego badania.
Ogólnie rzecz biorąc, model ten jest dalszym rozwinięciem tradycyjnego modelu hodowli 2D, który częściowo naśladuje strukturę pęcherzyka jajnikowego3. Wyniki potwierdzają stan fizjologiczny obu przedziałów komórkowych ujawniony przez ekspresję czułych markerów fizjologii GC i TC.
Przewagą nad tradycyjnymi modelami hodowli 2D jest ułatwienie interakcji parakrynnych między komórkami osłonki i ziarnistości przy jednoczesnym zachowaniu ich separacji przestrzennej, lepiej naśladując strukturę pęcherzyków in vivo. W przeciwieństwie do tego, systemy kohodowli na talerzu, w których TC i GC są mieszane w jednym dołku, nie mają tej organizacji strukturalnej. W badaniach z wykorzystaniem takich systemów powszechnie stosowano stosunek GC:TC 4:1 19,20,21, ale podejście to nie odzwierciedla podziału na przedziały stwierdzonego in vivo i dlatego może nie być wykonalne do analizy wymiany substratu. Co więcej, zmiany stwierdzone na poziomie komórek nie mogą być łatwo wykryte, gdy mieszanina GC-TC musi być sortowana w złożony sposób.
Trójwymiarowe modele kohodowli komórek ziarnistych i osłonki pozostają nieliczne, ale wczesne próby przyniosły obiecujące wyniki. Grupa Kotsuji 22,23,24,37 wcześniej opisała interakcję komórek ziarnistych i osłonki w hodowli przy użyciu błony kolagenowej jako fizycznego separatora. Jednak system ten opierał się na specjalnie zbudowanej membranie kolagenowej, co utrudniało powtarzalność i standaryzację. W przeciwieństwie do tego, prezentowany model kokultury korzysta z dostępnych na rynku wiszących wkładek hodowlanych, które zwiększają odtwarzalność, standaryzację i jakość produktu, zapewniając szersze zastosowanie w laboratoriach. Chociaż przedstawiony model skutkował wyższą produkcją estradiolu niż poprzednie modele, porównanie tych modeli jest trudne, ponieważ brakuje w nim jedności suplementów do hodowli komórkowych, zwłaszcza zastosowanych stężeń26 lub dodatkowego zastosowania IGF-1 22,23,24,37.
Jednym z najważniejszych etapów procedury jest hodowla TC w komorze inokulacyjnej. Upewnienie się, że komora jest bezpiecznie umieszczona na odwróconej wkładce, jest niezbędne, aby zapobiec wyciekom mediów, które w przeciwnym razie mogłyby zagrozić mocowaniu TC i przetrwaniu. Dlatego zaleca się mocne dociśnięcie komory inokulacyjnej do odwróconej wkładki za pomocą pęsety i wzrokowe sprawdzenie umieszczenia komory inokulacyjnej. Dodatkowo wyjęcie komory inokulacyjnej i odwrócenie wkładki po trzech dniach wymaga technicznej precyzji. Konieczne może być pewne szkolenie umiejętności, aby wykonać ten krok bez zakłócania i/lub uszkadzania przyczepionych komórek. Inną ważną kwestią jest gęstość wysiewu GCs. Wyższa gęstość komórek przekraczająca optymalny poziom 1,0 x 10⁵ komórek na wkładkę może prowadzić do różnicowania GCs, potencjalnie wpływając na produkcję steroidogenną. Co więcej, przedstawiona metoda kriokonserwacji pozwoliła na uzyskanie żywotności po rozmrożeniu na poziomie 80-90% dla obu typów komórek.
Chociaż opisany model oferuje fizjologiczny i powtarzalny system do badania interakcji komórek ziarnistości i osłonki, należy wziąć pod uwagę pewne ograniczenia. Metodę można dostosować również do innych gatunków; Jednak różnice specyficzne dla gatunku mogą wymagać optymalizacji parametrów hodowli komórkowych, takich jak gęstość komórek, czas lub skład pożywki. Skalowalność tego modelu jest ograniczona do dostępności wkładek do hodowli komórkowych, ale może być wystarczająca dla większości badań efektorowych. Wreszcie, ten model kohodowli jest kolejnym krokiem w kierunku naśladowania sytuacji pęcherzyka in vivo , ale nadal brakuje mu pełnej złożoności pęcherzyka jajnikowego.
Podsumowując, prezentowany model można łatwo modyfikować w celu dostosowania do różnych potrzeb eksperymentalnych, takich jak wydłużenie okresu hodowli, dostosowanie liczby komórek lub proporcji lub włączenie dodatkowych czynników. Dzięki dalszemu rozwojowi system ten stanowi cenne narzędzie do badania funkcji pęcherzyków, steroidogenezy i sygnalizacji komórkowej między oboma przedziałami komórkowymi. Ponadto ma potencjał do zastosowań w toksykologii reprodukcyjnej, zapewniając kontrolowaną platformę do oceny wpływu różnych związków na komórki pęcherzykowe.
Oświadczenia
Wszyscy autorzy oświadczają, że nie pozostają w konflikcie interesów.
Podziękowania
Chcielibyśmy wyrazić nasze uznanie dla Veroniki Schreiter, Maren Anders i Oliviera Seidela za ich doskonałą pomoc techniczną. Ponadto pragniemy podziękować rzeźni komercyjnej "DANISH CROWN Teterower Fleisch GmbH" (Niemcy), od której pozyskaliśmy jajniki do tego badania.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10x Zbilansowany roztwór soli Hanka HBSS (w Mg/Ca, czerwień fenolowa) | Bio& Sprzedawać | B. L201-10 | rozpuścić w ultraczystej wodzie; dostosować pH roztworu wytrawiającego (HBSS i HEPES) do 7,4 i przeprowadzić sterylną filtrację przed użyciem |
| Igła 18 G, 40 mm, średnica 1,2 mm | Roth | Zobacz materiał 281T.1 | igła jednorazowa, krótka |
| Strzykawka 3 ml (Omnifix Luer) | Roth | LY22.1 | |
| Dokładność | Merck | Nr kat. A6964 | oddział firmy: Sigma-Aldrich |
| amfoterycyna B (250 &mikro; g/ml) | Bio& Sprzedawać | B. Zobacz materiał AB17.01050 | |
| androstendion | Merck | 46033 | używamy roztworu podstawowego o stężeniu 10 mM, rozcieńczonego w 100 % etanolu; oddział firmy: Supelco |
| lornetka Carl Zeiss Technival2 | Carl Zeiss Jena | Nie dotyczy | stosowany razem ze światłem padającym Schott KL 1600 LED |
| BSA (5 %) | Merck | Samolot A3311 | oddział firmy: Sigma-Aldrich |
| sitko komórkowe (100 &mikro; m wielkość porów) | Sarstedt powiedział: | 83.3945.100 | Pasuje do probówek wirówkowych o pojemności 50 ml |
| kolagen R (0,2 %) | Serva | 47254 | |
| Kolagenaza NB8 (% 10) | Znak Nordmark | S1745601 | |
| Pojemnik do zamrażania komórek CoolCell LX | Merck | CLS432002 | produkt firmy Corning |
| fiolki do kriogenizacji (2 ml) | TPP Faust | TPP89020 | |
| Naczynie hodowlane, 12-dołkowe, z płaskim dnem | TPP Faust | TPP92112 | |
| Naczynie hodowlane, 24-dołkowe, z płaskim dnem | TPP Faust | TPP92424 | |
| Naczynie hodowlane, 6-dołkowe, z płaskim dnem | TPP Faust | TPP92006 | |
| DMSO | Roth | 4720.1 | |
| DPBS bez Ca2+, Mg2+ | Bio& Sprzedawać | B. L182-10 | Przed użyciem rozpuścić w ultraczystej wodzie i autoklawie |
| estradiol, 17b-[2,4,6,7-3H] | Hartmann Analytik | ART1555 | |
| płodowa surowica cielęca (FBS Superior stabil) | Bio& Sprzedawać | FBS. S0615 powiedział: | |
| FSH (~7,000 IU/mg; z ludzkiego przysadki mózgowej) | Merck | Zobacz materiał F4021 | Preferujemy stosowanie roztworu podstawowego 2 i mikro; g/ml, rozcieńczony w 0,9 % NaCl; oddział firmy: Sigma-Aldrich |
| wiszące wkładki do hodowli komórkowych (0,4 &mikro; m wielkość porów) | cellQART | 9320412 | podczas składania zamówienia należy pamiętać o różnych właściwościach wkładek; preferujemy przezroczystą membranę PET do mikroskopii z kontrastem fazowym |
| HEPESY (1 m) | Roth | 9105.2 | dostosować pH roztworu wytrawiającego (HBSS i HEPES) do 7,4 i przeprowadzić sterylną filtrację przed użyciem |
| holotransferyna (bydło) | Merck | Zobacz materiał T1283 | rozpuścić w sterylnej wodzie; oddział firmy: Sigma-Aldrich |
| innuPREP RNA Mini Kit 2.0 | IST innuscreen | 845-KS-2040250 | |
| insulina (10 mg/ml; z trzustki bydlęcej) | Merck | I0516 powiedział: | rozpuścić w 1x PBS; oddział firmy: Sigma-Aldrich |
| L-glutamina (200 mM) | Bio& Sprzedawać | B. Zobacz materiał K0283 | |
| LR3-IGF-1 | Merck | I1146 powiedział: | Używamy roztworu podstawowego 200 &mikro; g/ml, rozpuszczony w 10 mM HCl i 1x PBS w 1 mg/ml BSA; oddział firmy: Sigma-Aldrich |
| Spektrofotometr NanoDrop 1000 | ThermoScientific (Nauka) | Nie dotyczy | Pomiar stężenia RNA |
| NEA (100x) | Bio& Sprzedawać | B. Zobacz materiał K0293 | |
| penicylina/streptomycyna (10 000 j.m./10 mg/ml) | Bio& Sprzedawać | B. Nr kat. A2213 | |
| woda oczyszczona, odpowiednia do hodowli komórkowych | Merck | Zobacz materiał W3500 | oddział firmy: Sigma-Aldrich |
| Zestaw do syntezy cDNA SensiFAST | Bioline (Bioline) | BIO-65054 powiedział: | dostarczane za pośrednictwem partnera dystrybucyjnego BioCat |
| wodorowęglan sodu (7,5%) | Bio& Sprzedawać | B. L1713 | |
| selenin sodu | Merck | Zobacz materiał S9133 | rozpuścić w sterylnej wodzie; oddział firmy: Sigma-Aldrich |
| termowytrząsarka TS-100C | Fischer Naukowy | 12357627 | używany razem z blokiem HC18 (nr kat. 12337627) |
| &alfa;-MEM | Bio& Sprzedawać | B. F0915 powiedział: |
Bibliografia
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Przedruki i uprawnienia
