Prezentowany protokół dostarcza wszechstronnego zestawu metod optymalizacji solubilizacji rekombinowanych białek jedwabiu do przędzenia; testowania przędzalni za pomocą ręcznego rysowania; wytwarzania długich, ciągłych włókien za pomocą automatycznego przędzenia na mokro; i porównawczej oceny morfologii, dopasowania molekularnego, zachowania mechanicznego i zawartości strukturalnej wtórnych białek we włóknach lub w ich obrębie.
Artykuł metodologiczny
Optymalizacja i ocena ręcznego rysowania i przędzenia na mokro w produkcji rekombinowanych włókien jedwabiu pajęczego
* These authors contributed equally
W tym artykule
Informacja o sprostowaniu
Important: There has been an erratum issued for this article. View Erratum Notice
Podsumowanie
Streszczenie
Nici pajęcze są znane ze swoich właściwości mechanicznych, z charakterystyczną dla nich wysoką wytrzymałością, wysoką rozciągliwością, lub kombinacją tych cech prowadzących do wysokiej wytrzymałości. Typowa samica pająka tkającego kule wytwarza siedem różnych rodzajów jedwabiu, z których każdy jest zazwyczaj przędzony z białka (białek) specyficznych dla danego typu i mechanicznie dostosowany do odrębnej funkcji przetrwania. Rekombinowana produkcja jedwabiu pajęczego stanowi obiecującą drogę do uzyskania tych materiałów, omijając wyzwania związane z pozyskiwaniem dużych ilości naturalnego jedwabiu i zapewniając korzyści w zakresie umożliwiania dostosowywania białek, na przykład poprzez mutagenezę ukierunkowaną na miejsce lub budowę białek fuzyjnych.
W przedstawionym protokole przedstawiamy metodologię oceny przydatności białka do przędzenia, zarówno metodą ręcznego, jak i mokrego. Począwszy od odpowiednio oczyszczonego liofilizowanego białka w proszku, szczegółowo opisano metody optymalizacji początkowego stanu rozpuszczonego białka w celu zapewnienia stanu "wirującego dopingu" o wysokim stężeniu. Następnie porównano metody ręcznego rysowania i przędzenia na mokro, w tym omówiono metody modulowania zachowania włókien za pomocą losowania po wirowaniu jako części procesu przędzenia. Następnie szczegółowo opisano typowy proces pracy mający na celu scharakteryzowanie powstałych włókien jedwabiu i podjęcie decyzji, które warunki przędzenia najprawdopodobniej będą owocne, w tym mikroskopia optyczna w celu oceny średnicy włókna i jego jednorodności; mikroskopia światła spolaryzowanego w celu oszacowania stopnia (supra)molekularnego wyrównania osiąganego we włóknie; próby rozciągania w celu oceny wytrzymałości, rozciągliwości, modułu Younga i wytrzymałości; i spektromikroskopia w podczerwieni z transformacją Fouriera (FTIR) w celu oceny wtórnej struktury białek we włóknie.
Ten protokół okazał się odpowiedni dla kilku różnych rekombinowanych białek pajęczej nici opartych na powtarzających się i niepowtarzalnych domenach jedwabiu grzyskowatego (owijającego); jedwabiu gruszkowatego; oraz białek fuzyjnych zawierających jedwab groniasty, gruszkowaty i/lub ampułkowy (ciągnący). Szersze zastosowanie jest zapewnione poprzez kilka wyróżnionych etapów, w których warunki i parametry mogą być zmieniane w celu dopasowania do zachowania pojedynczego białka i osiągnięcia różnic w wynikach funkcjonalnych.
Wprowadzenie
Pająki produkują jedwabie do różnych specjalistycznych zadań, w tym do budowy sieci, chwytania zdobyczy i ochrony jaj1. Nici pajęcze wykazują wyjątkowe właściwości mechaniczne, które przewyższają większość znanych materiałów naturalnych i syntetycznych2, co skłania do znacznych wysiłków w kierunku produkcji zmodyfikowanych i ulepszonych materiałów z jedwabiu pajęczego do różnych zastosowań przemysłowych i biomedycznych. Spidroina, białko tworzące pajęczą nić, składa się ze stosunkowo dużej, powtarzalnej domeny ograniczonej niepowtarzalnymi domenami N-końcowymi i C-końcowymi3, przy czym unikalne właściwości mechaniczne niektórych rodzajów jedwabiu zostały powiązane z powtarzaniem krótkich motywów w powtarzalnej domenie4,5,6. W przeciwieństwie do komercyjnie uprawianego jedwabnika morwowego (Bombyx mori), który wytwarza duże ilości jedwabiu w spójnym formacie kokonu nadającym się do zbioru, pająki są z natury kanibalicznymi i terytorialnymi organizmami, które produkują jedwab w ograniczonych ilościach, co stanowi wyzwanie dla produkcji rolnej i zbierania7. Biorąc pod uwagę te ograniczenia, rekombinowana produkcja nici pajęczej została opracowana jako bardziej wykonalna i zrównoważona alternatywa dla kontrolowanego uzyskania wystarczających ilości nici pajęczej do aplikacji.
Produkcja rekombinowanej nici pajęczej wymaga wyboru odpowiedniego gospodarza do ekspresji białka. Jedwab pajęczy ulega ekspresji w różnych systemach gospodarzy, w tym w bakteriach8,9, drożdże10,11, komórki owadów12, plants13,14 i komórki ssaków15,16, z Escherichia coli jest najczęściej używanym systemem hosta. Wysoka masa cząsteczkowa spidroin, która może osiągać nawet 700 kDa7, stanowi poważne wyzwanie dla ekspresji konstruktów o pełnej długości. Aby wyprodukować rekombinowaną nić pajęczą o porównywalnych lub ulepszonych właściwościach w stosunku do naturalnych pajęczych nici, podstawową strategią stosowaną jest ekspresja skróconych wariantów, takich jak konstrukty z ograniczoną liczbą powtarzających się jednostek (z niepowtarzalnymi domenami lub bez), chimery składające się z kombinacji różnych rodzajów jedwabiu oraz jedwabie hybrydowe połączone z białkami niezwiązanymi z jedwabiem. Na przykład rekombinowana duża ampullatowa spidroina (284,9 kDa) została z powodzeniem wyrażona w metabolicznie zmodyfikowanej E. coli, a uzyskany jedwab wykazywał właściwości mechaniczne porównywalne z naturalnymi głównymi ampullatami jedwabiu9. Ponadto zmodyfikowane włókno jedwabiu składające się z dwóch powtarzających się jednostek spidroiny gruszkowatej i dwóch powtarzających się jednostek spidroiny gwarkowatej wykazało lepszą rozciągliwość w stosunku do któregokolwiek ze składników jedwabiu gruszkowatego lub aciniformae, porównywalną z jedwabiem naturalnym w kształcie wiciowców17.
Produkcja białek rekombinowanych umożliwia również prostą inkorporację funkcjonalnych segmentów peptydów lub białek do białek jedwabiu, umożliwiając wytwarzanie biomateriałów o właściwościach dostosowanych do konkretnych zastosowań. Na przykład, genetyczna i chemiczna fuzja motywów wiążących komórki RGD z genetycznie modyfikowanym jedwabiem pochodzącym z głównych spidroin ampulalowych zaowocowała powstaniem filmów, które znacznie zwiększyły adhezję i proliferację fibroblastów18. W innym badaniu wykazano, że hybrydowy konstrukt jedwabiu składający się z motywu wiążącego czynnik wzrostu nerwów β (NGF) połączonego z chimerycznym białkiem składającym się z dwóch powtarzających się jednostek spidroiny owadolistnej i domeny C-końcowej głównej spidroiny ampullatowej wykazano, że wspiera wzrost i różnicowanie komórek podobnych do neuronów19.
Po pomyślnym wyrażeniu i oczyszczeniu rekombinowanego białka jedwabiu, może ono następnie zostać przetworzone na różne formy, takie jak hydrożele, folie, włókna, nanocząsteczki, pianki i gąbki, w zależności od zamierzonego zastosowania20,21. Aby umożliwić produkcję włókien sztucznego jedwabiu, opracowano metody przędzenia, które imitują pewne aspekty wysoce złożonego i ściśle regulowanego procesu przędzenia włókien naturalnych pająków. W naturalnym dużym jedwabiu ampulatowym spidroiny są wytwarzane przez komórki nabłonkowe w głównym gruczole ampułkowym i przechowywane w stanie rozpuszczalnym w świetle w wysokich stężeniach (do 50% (w/v))22, tworząc wodny domieszkę wirującą. Gdy przędzący domieszka przemieszcza się przez kanał przędzalniczy, doświadcza zmian pH, stężenia jonów, zawartości wody i sił ścinających spowodowanych zarówno zwężeniem kanału, jak i procesem pultruzji włókien, co indukuje przemianę płynnych białek jedwabiu we włókna stałe23,24. Identyfikacja odpowiedniego rozpuszczalnika, który może rozpuszczać lub zawieszać rekombinowane białka jedwabiu w wysokim stężeniu w celu utworzenia domieszki przędzącej, jest zatem kluczowym pierwszym krokiem w procesie przędzenia włókien sztucznych.
Szeroka gama rozpuszczalników została wykorzystana do formułowania dopingu z białka jedwabiu, a wybór rozpuszczalnika okazał się mieć wpływ na tworzenie włókien i właściwości mechaniczne25,26. W związku z tym staranne rozważenie wyboru rozpuszczalnika domieszkującego jest niezbędne do optymalizacji uzyskanych właściwości włókien. Domieszka przędzalnicze mogą być formułowane przy użyciu rozpuszczalników organicznych lub wodnych, takich jak 1,1,1,3,3,3-heksafluoroizopropanol (HFIP)27, heksafluoroaceton (HFA)28, mieszaniny kwasu trifluorooctowego (TFA) i 2,2,2-trifluoroetanolu (TFE)26, kwas mrówkowy29 i fosforan sodu/Tris buffer30. Ponieważ na rozpuszczalność białek zwykle wpływają takie czynniki, jak pH, siła jonowa i stężenie, identyfikacja odpowiedniego rozpuszczalnika domieszkującego zazwyczaj obejmuje systematyczną ocenę różnych rozpuszczalników, optymalizację pH i stężeń białek, a w niektórych przypadkach stosowanie mieszanin rozpuszczalnika i wody w celu określenia optymalnych warunków domieszkowania przędzenia. Co więcej, lepkość domieszki przędzącej jest ważnym parametrem, który należy ocenić przed procesem przędzenia, ponieważ roztwór domieszkowki o wysokiej lepkości może utrudniać przepływ płynu podczas przędzenia, podczas gdy domieszka o niskiej lepkości zazwyczaj nie będzie odpowiednia do tworzenia włókien31,32. Należy zauważyć, że stosowanie surowych warunków domieszkowania spinowego może zmienić strukturę białka przy długotrwałym narażeniu; W związku z tym rozwój przyjaznych dla środowiska rozpuszczalników dopingowych pozostaje aktywnym obszarem badań.
Ręczne rysowanie i przędzenie na mokro to dwie popularne metody przędzenia rekombinowanych włókien jedwabiu. Właściwości mechaniczne włókien wytwarzanych każdą metodą są w dużym stopniu zależne zarówno od samych warunków przędzenia, jak i od obróbki po przędzeniu. Rysowanie ręczne, zwane również przędzeniem ciągniętym, to prosta metoda produkcji włókien, w której włókna są pobierane z roztworów oczyszczonych białek, zwykle za pomocą końcówki pipety, kleszczyków lub pęsety, a następnie suszone na powietrzu i charakteryzowane33,34,35,36,37. Podczas gdy ręczne rysowanie stanowi doskonałe podejście do szybkiego przesiewania różnych warunków tworzenia się włókien jedwabiu i ogólnego klasyfikowania wynikowego zachowania mechanicznego włókien, technika ta nie jest łatwo skalowalna do długich (tj. wielometrowych) ciągłych włókien. Jako alternatywę stosujemy przędzenie na mokro, które polega na ciągłym wytłaczaniu przędzącego domieszki ze stałą prędkością do kąpieli koagulacyjnej, zazwyczaj wodnego lub organicznego rozpuszczalnika składającego się z mieszaniny wody i etanolu lub metanolu9,15,31,38,39,40. Zanurzenie wirującego domieszku w kąpieli krzepiącej powoduje szybką desolwatację białek, co skutkuje powstawaniem włókien ciągłych24. Następnie włókna są pobierane z kąpieli koagulacyjnej ze stałą prędkością, albo dopasowaną do szybkości wytłaczania, aby uzyskać włókna w stanie przędzenia (AS), albo poddawane ciągnięciu po przędzeniu w celu uzyskania włókien po przędzeniu (PS), które zazwyczaj mają lepsze właściwości mechaniczne. Rysowanie po wirowaniu zazwyczaj polega na rozciąganiu włókien do proporcji 2-8x ich pierwotnej długości w powietrzu, w rozpuszczalniku lub po zanurzeniu w rozpuszczalniku, przy czym każdy parametr przyczynia się do określonych właściwości mechanicznych15,17,31,38.
Chociaż ten protokół skupia się na metodach ręcznego rysowania i przędzenia na mokro, ważne jest, aby umieścić te metody w kontekście. Metody elektroprzędzenia zostały opisane dla rekombinowanych nici pajęczych zarówno z warunków wodnych, jak i organicznych, umożliwiając produkcję mat włóknistych, wyrównanych włókien i przędz, przy czym włókna zwykle mają średnicę w skali nanometrów41. Zapewnia to potencjalną przewagę włókien w skali nano i odpowiednie wyzwanie, jeśli pożądane są włókna w skali mikronowej, zwykle z wymogiem przeprowadzenia obróbki po wirowaniu w celu wywołania transformacji do struktury arkusza β celu poprawy mechaniki i kompatybilności z wodą. Wielometrowe rekombinowane wstęgi z pajęczego jedwabiu o szerokości i grubości w skali mikronowej uzyskano przez przędzenie na sucho z rozpuszczalnika organicznego42, z niedawnym wykazaniem, że włączenie jonów metali na etapie domieszkowania przędzy poprawia mechanikę43. Przędzenie oparte na mikrofluidyce44, w tym niedawne połączenie technologii druku 3D z mikroigłowymi dyszami przędzalniczymi zaprojektowanymi tak, aby naśladować naturalną dyszę przędzalniczą45, nadaje się do wysoce kontrolowanego przędzenia rekombinowanych włókien jedwabiu. Niezależnie od szerokiej gamy metod, które uznano za odpowiednie do produkcji włókien jedwabnych (lub jedwabnopodobnych), niniejszy protokół szczegółowo opisuje produkcję rekombinowanych włókien jedwabiu poprzez ręczne ciągnienie i przędzenie na mokro, ponieważ metody te okazały się możliwe do przełożenia na kilka różnych wariantów rekombinowanego jedwabiu w naszych rękach i stanowią wykonalny punkt wyjścia do rozwoju biomateriałów i oceny porównawczej.
Po przędzeniu i zbieraniu światłowodów, kombinacja technik optycznych, mechanicznych i spektroskopowych jest rutynowo stosowana do charakteryzowania właściwości po przędzeniu. Każda metoda dostarcza kluczowych informacji na temat procesu powstawania włókien i jego korelacji z wydajnością materiału. W tym miejscu skupiamy się na podzbiorze tych metod, zauważając, że istnieje wiele innych metodologii, które dostarczają kluczowych informacji na temat właściwości i wydajności włókien jedwabiu. Mikroskopia optyczna służy do oceny morfologii światłowodów, umożliwiając porównanie średnic włókien przędzonych zarówno w identycznych, jak i różnych warunkach17,31,38,46. Technika ta jest również ważna dla identyfikacji i eliminacji segmentów włókien z defektami lub anomaliami przed późniejszą charakterystyką. Dodatkowo, mikroskopia światła spolaryzowanego może być stosowana do oceny stopnia wyrównania molekularnego w obrębie włókna, ponieważ wyższe poziomy wyrównania są zwykle związane z lepszymi właściwościami mechanicznymi17,26,47. Charakterystykę mechaniczną przeprowadza się za pomocą prób rozciągania, w których mierzy się krzywe naprężenie-odkształcenie i wykorzystuje się je do ilościowego określenia parametrów, takich jak wytrzymałość na rozciąganie, rozciągliwość, moduł Younga i wytrzymałość, dostarczając niezbędnych informacji do oceny przydatności włókien w zastosowaniach strukturalnych lub biomedycznych17,33,48. Ostatnia technika opisana tutaj, spektromikroskopia w podczerwieni z transformacją Fouriera (FTIR), jest stosowana do badania struktury drugorzędowej białka, w szczególności stopnia tworzenia β-arkusza, ponieważ odgrywa to kluczową rolę w stabilności włókien i wytrzymałości mechanicznej17,46,49. Łącznie techniki te zapewniają kompleksowe zrozumienie morfologii, struktury i zachowania mechanicznego rekombinowanych włókien jedwabiu.
Protokół
W niniejszym protokole przyjmujemy, że punktem wyjścia jest liofilizowany proszek białka jedwabiu. W naszych badaniach jest to najczęściej rekombinowane białko pajęczego jedwabiu. Przegląd protokołu przedstawiono na Rysunku 1, a każdy z pięciu poniższych kroków został szczegółowo opisany: (1) przygotowanie i optymalizacja roztworu przędzalnego; (2) ręczne wyciąganie włókien jedwabnych lub przędzenie na mokro; (3) ocena średnicy i morfologii włókien za pomocą mikroskopii optycznej; (4) ocena mechaniczna poprzez badanie wytrzymałości na rozciąganie oraz (5) ocena struktury drugorzędowej za pomocą spektromikroskopii FTIR.
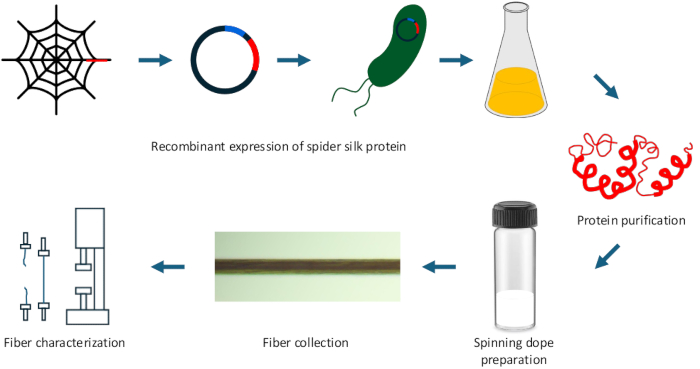
Rysunek 1: Schematyczny przegląd kluczowych etapów protokołu produkcji, zbierania i charakterystyki włókien rekombinowanego białka pajęczej sieci. Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.
1. Przygotowanie i optymalizacja roztworu przędzalniczego
UWAGA: W celu optymalizacji roztworu do przędzenia włókien należy podjąć próbę rozpuszczenia różnych stężeń rekombinowanego białka jedwabiu pająka w różnych rozpuszczalnikach w celu przygotowania roztworów przędzalniczych (Tabela 1). Do prób przędzenia włókien należy wykorzystywać wyłącznie te rozpuszczalniki, które rozpuszczają białko, tworząc klarowny roztwór przędzalniczy bez osadu.
- Przygotowanie rozpuszczalników
- Aby przygotować mieszaninę TFA/TFE/H2O w proporcji 8:1:1, odmierzyć 800 µL TFA, 100 µL TFE oraz 100 µL ultraczystej wody typu 1 do probówki szklanej wewnątrz dygestorium. Wszystkie składniki dokładnie wymieszać. Zamknąć probówkę i zabezpieczyć ją parafilmem, aby zapobiec odparowaniu lotnych składników.
UWAGA: Do przędzenia włókien zawsze należy przygotowywać świeży roztwór.
OSTRZEŻENIE: Z TFA i TFE należy obchodzić się ostrożnie; TFA jest silnie żrący i lotny, natomiast TFE jest łatwopalny i toksyczny. Należy stosować odpowiednie środki ochrony osobistej, w tym rękawice, fartuchy laboratoryjne i okulary ochronne, aby zapobiec kontaktowi ze skórą oraz ryzyku wdychania oparów. - Aby przygotować mieszaninę TFA/TFE/H2O w proporcji 3:1:1, wewnątrz dygestorium przenieść 300 µL TFA, 100 µL TFE oraz 100 µL ultraczystej wody typu 1 do probówki szklanej i wymieszać składniki. Zamknąć probówkę i zabezpieczyć ją parafilmem, aby zminimalizować odparowanie lotnych składników.
UWAGA: Do przędzenia włókien zawsze należy przygotowywać świeży roztwór. - Aby przygotować mieszaninę HFIP/H2O w proporcji 7:3, wymieszać 700 µL 1,1,1,3,3,3-heksafluoro-2-propanolu (HFIP) z 300 µL ultraczystej wody typu 1, otrzymując 1 mL roztworu. Roztwór należy przygotować bezpośrednio przed użyciem.
OSTRZEŻENIE: HFIP należy obsługiwać wewnątrz dygestorium, unikając wdychania oparów oraz kontaktu ze skórą. - Aby przygotować 50 mM bufor fosforanowy potasu (pH 7,5), odmierzyć 800 mL wody dejonizowanej do zlewki i rozpuścić w niej 1,199 g wodoru fosforanu potasu (KH2PO4- MW. 136,09 g/mol) oraz 7,173 g fosforanu potasu dwuzasadowego (K2HPO4- MW. 174,18 g/mol). Wszystkie składniki dokładnie wymieszać, a następnie skorygować pH roztworu za pomocą NaOH lub HCl. Dopełnić objętość do 1 L wodą dejonizowaną i przechowywać w temperaturze pokojowej.
- Aby przygotować 10 mM bufor Tris-Cl (pH 8,0), rozpuścić 1,21 g hydrochlorku Trisu (MW. 157,60 g/mol) w 800 mL wody dejonizowanej. Skorygować pH za pomocą NaOH i dopełnić objętość końcową do 1 L wodą dejonizowaną. Roztwór przechowywać w temperaturze pokojowej.
- Aby przygotować 20 mM bufor octanowy sodu (pH 5,0), w 450 mL wody dejonizowanej rozpuścić 0,55 g octanu sodu (MW. 82,03 g/mol) i dodać 0,02 M (6 mL) kwasu octowego. Dopełnić objętość do 500 mL wodą dejonizowaną i przechowywać w temperaturze pokojowej.
- Aby przygotować 1 M bufor cytrynianowo-fosforanowy (pH 7,0), rozpuścić 11,69 g wodorofosforanu sodu (Na2HPO4- MW. 141,96 g/mol) i 1,85 g kwasu cytrynowego (MW. 192,12 g/mol) w 400 mL wody dejonizowanej. Skorygować pH roztworu za pomocą HCl lub NaOH, a następnie dopełnić objętość końcową do 500 mL wodą dejonizowaną.
- Aby przygotować roztwór 98% kwasu mrówkowego i CaCl2, rozcieńczyć kwas mrówkowy do stężenia 98%, mieszając 98 mL kwasu mrówkowego z 2 mL wody dejonizowanej, otrzymując łącznie 100 mL roztworu. Następnie dodać 4 g CaCl2 do 100 mL 98% roztworu kwasu mrówkowego, aby przygotować 4% w/v roztwór kwasu mrówkowego i CaCl2. Roztwór przechowywać w temperaturze pokojowej.
UWAGA: Patrz Tabela 1. Do prób przędzenia włókien należy stosować wyłącznie te rozpuszczalniki, które rozpuszczają białko, tworząc klarowny roztwór przędziwny bez osadu.
- Aby przygotować mieszaninę TFA/TFE/H2O w proporcji 8:1:1, odmierzyć 800 µL TFA, 100 µL TFE oraz 100 µL ultraczystej wody typu 1 do probówki szklanej wewnątrz dygestorium. Wszystkie składniki dokładnie wymieszać. Zamknąć probówkę i zabezpieczyć ją parafilmem, aby zapobiec odparowaniu lotnych składników.
- Przygotowanie roztworu przędziwnego
- Odważyć liofilizowane białko jedwabiu pająka zgodnie z pożądanym stężeniem (np. 10 mg dla roztworu 10% (w/v) w 100 µL rozpuszczalnika) i zmieszać z odpowiednią objętością rozpuszczalnika (np. 100 µL dla stężenia 10% (w/v)).
- Mieszać na wortexie aż do całkowitego rozpuszczenia proszku białkowego w rozpuszczalniku.
- Ponieważ rozpuszczalność białka jedwabiu pająka różni się w zależności od rozpuszczalnika i rodzaju białka, należy zacząć od niskiego stężenia białka (10% w/v) i stopniowo zwiększać stężenie (25-30% w/v) w razie potrzeby.
- Po całkowitym rozpuszczeniu białka jakościowo ocenić lepkość roztworu przędziwnego. Jeśli roztwór wydaje się niewystarczająco lepki, stopniowo zwiększać stężenie białka, aż do uzyskania klarownego, lepki roztworu. Jako standard referencyjny stosować wodę.
| Rozpuszczalnik | Stężenie białka (% - w/v) | Referencja |
| 8:1:1 TFA/TFE/H2O | 10 – 25 | 19 |
| 3:1:1 TFA/TFE/H2O | 10 – 30 | 26 |
| 7:3 HFIP/H2O | 15 – 30 | 31 |
| 50 mM bufor fosforan potasu (pH 7.5) | 10 – 25 | 50 |
| 10 mM bufor Tris-Cl (pH 8.0) | 10 – 20 | 34 |
| 20 mM bufor Na-octanu (pH 5.0) | 10 – 25 | 49 |
| 1 M bufor cytrynianowo-fosforanowy (pH 7.0) | 10 – 25 | 51 |
| 98% kwas mrówkowy – CaCl2 | 20 – 25 | 52 |
Tabela 1: Zalecane rozpuszczalniki i stężenia białek do przygotowania roztworów do przędzenia włókien.
2. Przędzenie i zbieranie włókien
UWAGA: Schematyczne przedstawienie procesu wyciągania ręcznego znajduje się na Rysunku 2, natomiast różne konfiguracje urządzeń do przędzenia na mokro opisane poniżej przedstawiono na Rysunku 3.
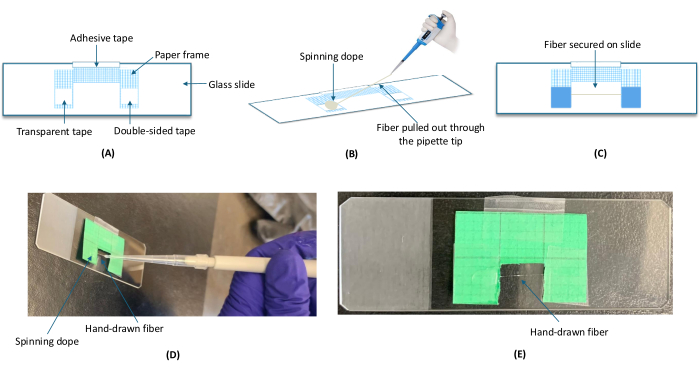
Rysunek 2: Ręczne wyciąganie włókien jedwabiu pajęczego. (A) Przygotowano papierową ramkę w kształcie litery C i przymocowano ją do szkiełka przedmiotowego za pomocą przezroczystej taśmy po lewej stronie oraz taśmy dwustronnej po prawej stronie, aby umożliwić wyciąganie włókien z lewej na prawą stronę. (B) Kroplę roztworu przędzalnego naniesiono na przezroczystą taśmę, a następnie za pomocą plastikowego końcówki pipety ręcznie wyciągnięto pojedyncze włókno w stronę taśmy dwustronnej przez otwór w ramce w kształcie litery C. (C) Włókno zostało przymocowane do papierowej ramki na szkiełku przedmiotowym za pomocą taśmy po lewej i prawej stronie. (D,E) Prezentacja reprezentatywnego (D) procesu ręcznego wyciągania rekombinowanego jedwabiu pajęczego efektywnie rozpuszczonego w roztworze przędzalnym oraz (E) otrzymanego włókna przed jego przymocowaniem taśmą. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
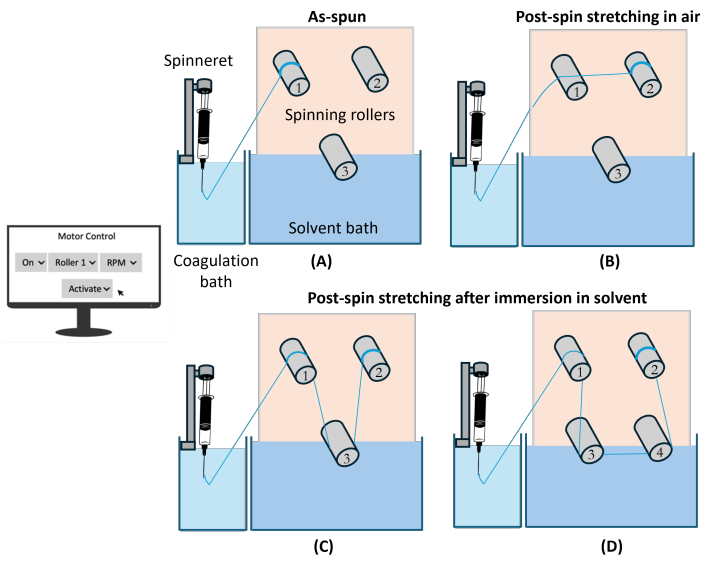
Rysunek 3: Przędzenie na mokro włókien jedwabiu pająka. W każdym przypadku masa przędzalna jest umieszczana w szklanej szczelnej strzykawce i wytłaczana ze stałą prędkością za pomocą pompy strzykawkowej przez metalową igłę z tępym końcem (tj. dyszę przędzalniczą) do kąpieli koagulacyjnej (np. 95% etanolu). (A) Włókna bezpośrednio po przędzeniu są zbierane na rolce 1, która obraca się pod kontrolą komputerową z prędkością odpowiadającą szybkości wytłaczania. (B) Rozciąganie po przędzeniu w powietrzu odbywa się poprzez prowadzenie włókien przez rolkę 1 i zbieranie ich na rolce 2, która obraca się z prędkością będącą wielokrotnością prędkości rolki 1 (np. dwukrotność prędkości dla stopnia wyciągania 2x). Podobnie włókna mogą być wytwarzane (C) po zanurzeniu w rozpuszczalniku (np. 40% etanolu, wodzie itp., w zależności od rodzaju jedwabiu) poprzez prowadzenie włókien z rolki 1 na rolkę 3 (zanurzoną w kąpieli z rozpuszczalnikiem i obracającą się z tą samą prędkością co rolka 1), a następnie na rolkę 2 (obracającą się z prędkością będącą wielokrotnością prędkości rolek 1 i 3); lub (D) w rozpuszczalniku poprzez prowadzenie włókien z rolki 1 na rolkę 3 (zanurzoną w kąpieli z rozpuszczalnikiem i obracającą się z tą samą prędkością co rolka 1), a następnie na rolkę 4 (również zanurzoną w rozpuszczalniku i obracającą się z prędkością będącą wielokrotnością prędkości rolek 1 i 3), przed zebraniem na rolce 2 (prędkość dostosowana do prędkości rolki 4). Modułowa konfiguracja pozwala na łatwe testowanie różnych kombinacji warunków przędzenia włókien, nie ograniczając się jedynie do czterech przedstawionych tutaj schematycznie wersji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Wyciąganie ręczne
- Przygotować papierową ramkę w kształcie litery C z okienkiem o wymiarach 1 cm x 0,5 cm (dł. x szer.) i umieścić ją na szkiełku przedmiotowym (Rysunek 2). Górną część ramki papierowej przymocować do szkiełka za pomocą taśmy klejącej. Do jednego ramienia ramki papierowej przykleić przezroczystą taśmę, aby stworzyć hydrofobową powierzchnię do nakładania roztworu przędzalnego, a do przeciwległego ramienia przykleić taśmę dwustronną w celu zamocowania włókna.
- Nanieść 10-20 µL roztworu przędzalnego na przezroczystą taśmę w temperaturze pokojowej (22 ± 2 °C).
- Zanurzyć plastikową końcówkę pipety o pojemności 200 µL w kropli roztworu przędzalnego i pionowo wyciągnąć ją z roztworu ze stałą prędkością (~6 mm/s), umożliwiając wyciągnięcie włókien z roztworu.
- Poprowadzić ręcznie wyciągnięte włókno przez okno ramki i przymocować je do taśmy dwustronnej. Włókno wysuszyć na powietrzu w temperaturze pokojowej, a następnie zabezpieczyć oba końce włókien dodatkową taśmą.
- Skupić się na fragmencie włókna rozpiętym na papierowej ramce w celu późniejszej charakterystyki.
- Przędzenie na mokro
- Zbudować urządzenie do przędzenia na mokro; opisany tutaj aparat posiada ulepszone możliwości sterowania silnikami w stosunku do wcześniejszych wersji31,38.
- Wyprodukować sztywną metalową płytę montażową, która jest utrzymywana pionowo i obrobiona w odpowiednej konfiguracji do przytwierdzenia zestawu silników krokowych (patrz. Rysunek 3). Montaż każdego silnika wymaga wywiercenia otworów umożliwiających bezpieczne przykręcenie silników krokowych z tyłu płyty montażowej (tj. czterech odpowiednio rozmieszczonych i dobranych pod względem rozmiaru otworów) oraz piątego otworu, przez który przechodzi wał silnika.
- Wybrać bipolarne silniki krokowe o kroku 1,8°, momencie trzymającym 45 N∙cm, długości 24 mm i wale o średnicy 5 mm z wycięciem w kształcie litery „D” o długości 15 mm, korpusie 39 mm, prądzie znamionowym 1,50 A oraz oporności fazy 2,3.
- Opracować system sterowania prędkością i kierunkiem obrotów dla każdego silnika, taki jak ten użyty wcześniej dla różnych typów włókien jedwabnych17,53,54, który wykorzystuje graficzny interfejs użytkownika (GUI) napisany w języku Python dla Raspberry Pi połączonego z kilkoma sterownikami silników krokowych, zgodnie ze szczegółami dostępnymi pod adresem https://github.com/raineylab/MotorController.git.
- Do przędzenia każdy silnik używany w danej konfiguracji prządzenia przymocować do obrobionego metalowego cylindra (średnica 6 cm, długość 8 cm dla pozycji 1 i 2 na Rysunku 3; rolki z rowkami o średnicy 9 cm na obu końcach, zwężające się do średnicy 6 cm w centrum rolki, o długości 7 cm w pozycjach 3 i 4 na Rysunku 3; patrz na przykład Rysunek 4 w celu zapoznania się z przykładową konfiguracją).
- W przypadku dyszy przędzalniczej (Rysunek 3) użyć szklanej strzykawki 0,25 mL z na stałe przymocowaną metalową igłą o tępym końcu (średnica wewnętrzna 0,127 mm), zamontowanej w pompie strzykawkowej, która wytłacza roztwór przędzalny z kontrolowaną prędkością do kąpieli koagulacyjnej.
- Odwirować roztwór przędzalny przy 20 000-21 000 × g przez 30 min w temperaturze pokojowej i zebrać supernatant do przędzenia włókien.
UWAGA: Usunąć pozostałe cząsteczki, aby zapobiec zapchaniu igły wytłaczającej podczas przędzenia na mokro. - Wprowadzić 50-80 µL roztworu przędzalnego do strzykawki służącej jako dysza przędzalnicza.
- Zabezpieczyć strzykawkę w pompie strzykawkowej i ustawić prędkość wytłaczania na 600 μL/h.
UWAGA: Dostosować i zoptymalizować prędkość wytłaczania, aby umożliwić formowanie włókien dla danej kondycji roztworu białkowego. - Przygotować kąpiel koagulacyjną (95% etanolu/5% wody dejonizowanej, v/v).
- Ustawić pompę strzykawkową tak, aby igła strzykawki zawierającej roztwór przędzalny była zanurzona w kąpieli koagulacyjnej.
- Zamocować rolkę(rolki) do aparatury przędzalniczej, dostosować prędkość rolki za pomocą oprogramowania sterującego silnikami i włączyć silnik(i) wymagane dla danej konfiguracji przędzenia.
UWAGA: Dopasować prędkość obrotową rolki 1 do prędkości wytłaczania. Prędkości wytłaczania 400 μL/h lub 600 μL/h odpowiadają odpowiednio 6 rpm lub 9 rpm dla rolki 1. Jeśli stosowane jest wyciąganie po przędzeniu, jedna lub więcej rolek 2-4 musi być ustawiona na odpowiednio szybszy obrót. - Uruchomić pompę strzykawkę i za pomocą pęsety prowadzić włókno formujące się w kąpieli koagulacyjnej w jeden z następujących sposobów:
- W celu zebrania włókien AS prowadzić włókno uformowane w kąpieli koagulacyjnej na pierwszą rolkę (prędkość równa prędkości wytłaczania) w celu zbioru.
- W celu wykonania rozciągania po przędzeniu w powietrzu ustawić prędkość obrotową rolki 2 jako wielokrotność prędkości rolki 1. Prowadzić włókno z kąpieli koagulacyjnej przez rolkę 1, nie zapętlając go wokół niej, i zbierać na rolce 2.
UWAGA: Współczynnik wyciągania po przędzeniu 2x wymaga, aby prędkość obrotowa rolki 2 była dwukrotnością prędkości rolki 1; dla 3x – trzykrotnością i tak dalej. - W celu wykonania rozciągania po przędzeniu po zanurzeniu w rozpuszczalniku napełnić kąpiel z rozpuszczalnikiem pożądanym rozpuszczalnikiem (np. wodą dejonizowaną; 2:3 v/v etanol/H2O itd.) i prowadzić włókno z kąpieli koagulacyjnej wokół rolki 1 (prędkość obrotowa dopasowana do prędkości wytłaczania), wokół rolki 3 (prędkość obrotowa równa prędkości rolki 1) w kąpieli z rozpuszczalnikiem i zbierać włókno na rolce 2 w powietrzu (obracającej się z większą prędkością niż rolki 1 i 3).
UWAGA: Prędkość obrotowa rolki 2 w stosunku do rolek 1 i 3 określi współczynnik wyciągania po przędzeniu, analogicznie do kroku 2.2.8.2. - W celu wykonania rozciągania po przędzeniu w rozpuszczalniku napełnić kąpiel z rozpuszczalnikiem pożądanym rozpuszczalnikiem (np. wodą dejonizowaną; 2:3 v/v etanol/H2O itd.) i prowadzić włókno z kąpieli koagulacyjnej wokół rolki 1 (prędkość obrotowa dopasowana do prędkości wytłaczania), wokół rolki 3 (prędkość obrotowa równa prędkości rolki 1) w kąpieli z rozpuszczalnikiem, wokół rolki 4 w kąpieli z rozpuszczalnikiem (prędkość obrotowa będąca wielokrotnością prędkości rolek 1 i 3) i zbierać włókno na rolce 2 w powietrzu (prędkość obrotowa dopasowana do rolki 2).
UWAGA: Prędkość obrotowa rolek 2 i 4 w stosunku do rolek 1 i 3 określi współczynnik wyciągania po przędzeniu, analogicznie do kroku 2.2.8.2.
Zbierać włókna w kontrolowanych warunkach środowiskowych, aby uniknąć wpływu wilgotności i temperatury na właściwości włókien. Celujemy w wilgotność względną ~ 28,2 ± 2,4% i temperaturę ~ 28,0 ± 2,2 °C.
- Zbudować urządzenie do przędzenia na mokro; opisany tutaj aparat posiada ulepszone możliwości sterowania silnikami w stosunku do wcześniejszych wersji31,38.
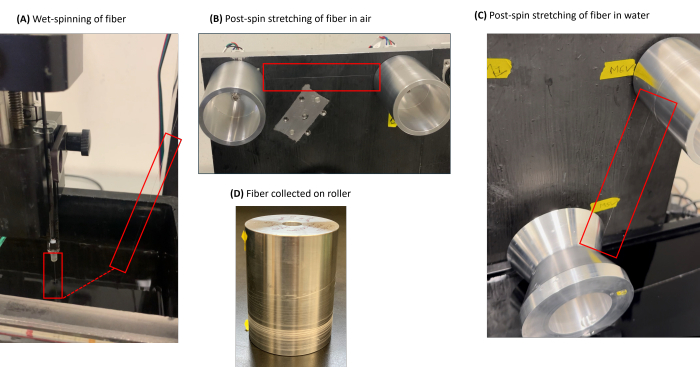
Rysunek 4: Kluczowe etapy przędzenia na mokro włókien jedwabiu pajęczego. (A) Wytłaczanie roztworu przędzalnego do kąpieli koagulacyjnej, a następnie zbieranie włókna (czerwony prostokąt po lewej zaznacza igłę używaną do wytłaczania; czerwony prostokąt po prawej to ścieżka włókna jedwabnego przędzionego na mokro). (B) Ilustracja poddawania włókna rozciąganiu po przędzeniu w powietrzu (czerwony prostokąt służący jako pomoc wizualna). (C) Ilustracja rozciągania włókna po przędzeniu po zanurzeniu w wodzie (czerwony prostokąt służący jako pomoc wizualna). (D) Ciągłe rekombinowane włókno jedwabne zbierane na rolce (np. nawijane włókno przy czerwonej strzałce). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
3. Ocena włókien za pomocą mikroskopii optycznej
- Montaż włókien
- Wykonaj papierowy uchwyt w kształcie litery C, wycinając kwadrat 1 x 1 cm z prostokątnego kawałka papieru o wymiarach 3 x 2 cm (Rycina 5).
- Przymocuj uchwyt w kształcie litery C do szkiełka przedmiotowego za pomocą taśmy.
- Naklej dwa kawałki dwustronnej taśki po obu stronach 1 cm szczeliny w papierowym uchwycie w kształcie litery C.
- Zdejmij włókno z rolki, na której zostało zebrane, i odetnij fragment o długości około 2 cm.
UWAGA: Unikaj stosowania nadmiernej siły podczas manipulowania włóknami, aby zapobiec deformacji materiału lub innym zmianom jego właściwości. - Umieść fragment włókna na górnej części dwustronnej taśki, upewniając się, że oś podłużna włókna jest wyrównana równolegle do dolnej krawędzi uchwytu (Rycina 5) .
- Zabezpiecz włókno taśmą maskującą na wierzchu dwustronnej taśki po obu stronach.
- Przymocuj dodatkowy kawałek taśmy maskującej, aby mocno przytwierdzić dół papierowego uchwytu do szkiełka przedmiotowego, co zapobiegnie przesunięciu się włókna przed użyciem.
- Przechowuj zamontowane włókna w pudełku do szkiełek do czasu ich wykorzystania w obrazowaniu i badaniach rozciągania.
- Wyznaczanie średnicy i ocena defektów
- Zbadaj zamontowane włókna za pomocą mikroskopii optycznej. Najpierw sprawdź całą długość włókna pod kątem widocznych niedoskonałości, takich jak zwężenia, skręcenia, wybrzuszenia lub podwojenia włókien. Jeśli zostaną zauważone jakiekolwiek defekty, wyklucz te włókna z testów mechanicznych.
- W przypadku włókien, które wydają się wolne od defektów, wykonaj trzy mikrografie przy powiększeniu 10x wzdłuż osi podłużnej włókna: jedną w środku oraz po jednej w pobliżu każdego z końców włókna.
- Zmierz średnicę włókna za pomocą oprogramowania ImageJ55:
- W programie ImageJ przejdź do menu Analyze i wybierz Set scale (Plik uzupełniający 1 - Rycina uzupełniająca S1). Dostosuj skalę zgodnie z ustawieniami kalibracji mikroskopu i ustaw jednostkę pomiarową na mikrometry (μm) (Plik uzupełniający 1 - Rycina uzupełniająca S2).
- Używając narzędzia linii (line tool), narysuj linię prostą prostopadłą do osi podłużnej włókna, rozciągającą się od jednej krawędzi włókna do drugiej.
- Dla każdego mikrografu zmierz średnicę włókna w sześciu różnych obszarach wzdłuż włókna.
- Po narysowaniu każdej linii kliknij Measure w menu Analyze, aby wyświetlić średnicę włókna (Plik uzupełniający 1 - Rycina uzupełniająca S3).
- Jakościowa ocena orientacji cząsteczek za pomocą mikroskopii w świetle spolaryzowanym
- Użyj mikroskopii w świetle spolaryzowanym, aby ocenić orientację cząsteczek wewnątrz włókna po przeprowadzeniu oceny średnicy i defektów za pomocą mikroskopii optycznej.
- Zbadaj włókno za pomocą odwróconego mikroskopu optycznego wyposażonego w obrotowy stolik, stały suwak analizatora oraz polaryzator obrotowy o kącie 90°.
- Umieść włókno pod kątem około 45° względem padającego światła spolaryzowanego liniowo, aby zmaksymalizować jasność wynikającą z dwójłomności, co zwiększy widoczność struktury molekularnej.
- Wykonaj zdjęcie włókna w tych warunkach, aby ocenić jego dwójłomność.
UWAGA: Wysoka dwójłomność wskazuje na dobrze uporządkowaną strukturę molekularną, natomiast niska lub brak dwójłomności sugeruje strukturę bardziej amorficzną lub o losowej orientacji.
- Użyj mikroskopii w świetle spolaryzowanym, aby ocenić orientację cząsteczek wewnątrz włókna po przeprowadzeniu oceny średnicy i defektów za pomocą mikroskopii optycznej.
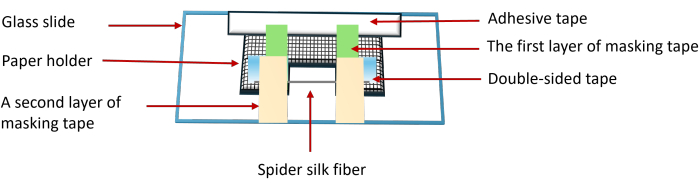
Rycina 5: Montaż włókna jedwabiu pająka na szkiełku przedmiotowym umożliwiający dalszą analizę przy użyciu papierowego uchwytu w kształcie litery C oraz serii warstw taśmy. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
4. Próba rozciągania
UWAGA: Urządzenie do badań rozciągania odpowiednie do dokładnej oceny włókien jedwabiu można łatwo wykonać przy stosunkowo niskim koszcie25,56. W skrócie, należy wykonać parę zacisków ze stali nierdzewnej, które umożliwią mocne uchwycenie każdego końca badanej włóknistej ramy w kształcie litery C (np. Rysunek 6). Jeden z tych zacisków należy przymocować do obciążnika umieszczonego na wadze analitycznej, a drugi do pompy strzykawkowej. Pompa strzykawkowa musi być skonfigurowana tak, aby umożliwić stałe rozciąganie z zadaną prędkością odkształcenia. Waga analityczna musi być połączona z komputerem w celu rejestrowania danych o wadze/masie w funkcji czasu.
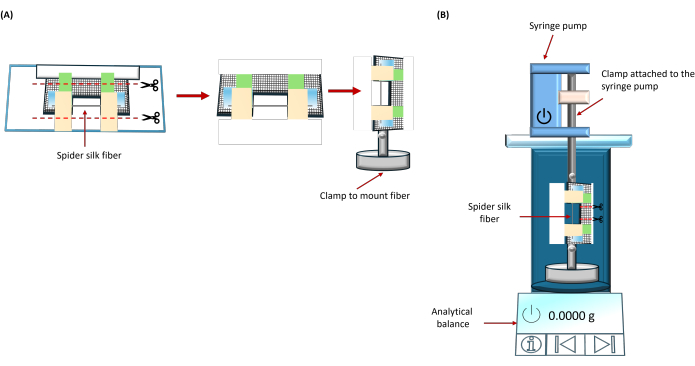
Rysunek 6: Schemat przedstawiający etapy przygotowawcze do testu rozciągania. (A) Uchwyt papierowy z włóknem (konfigurację zaprezentowano na Rysunku 5) zostaje oddzielony od szkiełka przedmiotowego i zamocowany pionowo za pomocą klipsa przytwierdzonego do obciążnika. (B) Ten zacisk z obciążnikiem jest umieszczany na wadze analitycznej, a górna część uchwytu papierowego zostaje przymocowana do zacisku przytwierdzonego do pręta, który jest stabilnie osadzony w pompie strzykawkowej. Przed rozpoczęciem testu rozciągania uchwyt papierowy zostaje przecięty poziomo w połowie. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Pozyskiwanie danych krzywej naprężenie-odkształcenie
- Po zmierzeniu średnicy włókna przeprowadź badanie rozciągania tego samego włókna przy użyciu urządzenia zbudowanego we własnym zakresie (Rycina 6).
- Odczep C-kształtną papierową ramkę trzymającą włókno od szkiełka przedmiotowego i przymocuj ją do zacisku połączonego z obciążnikiem (Rycina 6A).
- Podłącz wagę analityczną do oprogramowania do rejestracji i sterowania danymi, a następnie przejdź do sekcji Workbench (Plik uzupełniający 1 - Rycina uzupełniająca S4).
- Skonfiguruj eksperyment w oprogramowaniu sterującym wagą, klikając przycisk Start . Gdy pojawi się prośba, wprowadź nazwę eksperymentu (Plik uzupełniający 1 - Rycina uzupełniająca S5).
- Upewnij się, że waga analityczna jest pusta, a następnie umieść na niej obciążony zacisk z włóknem.
- Przymocuj górną część papierowej ramki do zacisku połączonego z pompą strzykawkową i odetnij jedną stronę uchwytu papierowego, aby umożliwić swobodny ruch włókna (Rycina 6B).
UWAGA: Upewnij się, że oba zaciski są do siebie równoległe, a włókno znajduje się w centrum zacisku przy długości pomiarowej 10 mm. - Wytaruj wagę, aby wyzerować masę obciążnika i zacisku, naciśnij przycisk Run na pompie strzykawkowej i kliknij OK w oprogramowaniu sterującym wagą (Plik uzupełniający 1 - Rycina uzupełniająca S6).
- W momencie zerwania włókna naciśnij Stop na pompie strzykawkowej oraz przycisk Yes w oprogramowaniu sterującym wagą (Plik uzupełniający 1 - Rycina uzupełniająca S7), aby zarejestrować zmierzoną masę jako funkcję czasu.
- Przenieś dane do arkusza kalkulacyjnego lub innego odpowiedniego pakietu oprogramowania do przetwarzania danych. Skopiuj log danych masy w funkcji czasu do schowka i wklej go do dostarczonego arkusza badań mechanicznych (Plik uzupełniający 2) lub wyeksportuj dane jako plik tekstowy i zaimportuj je przy użyciu odpowiedniego parsowania.
- Po zmierzeniu średnicy włókna przeprowadź badanie rozciągania tego samego włókna przy użyciu urządzenia zbudowanego we własnym zakresie (Rycina 6).
- Przetwarzanie danych krzywej naprężenie-odkształcenie
UWAGA: Poniższy protokół opiera się na arkuszu badań mechanicznych sformatowanym do użytku w programie Microsoft Excel (Plik uzupełniający 2).- Upewnij się, że parametry eksperymentalne są poprawne (Kolumna C).
- Dodaj zapisy masy jako funkcję czasu do arkusza kalkulacyjnego (pozycja „Net mass” w Kolumnie F). Jeśli zarejestrowano wartości masy przed rozpoczęciem rozciągania, usuń te wartości, kasując odpowiednie komórki i przesuwając dane w górę. Jeśli zarejestrowano wartości masy po zerwaniu włókna, usuń te komórki danych.
- Wypełnij automatycznie wartości indeksów w Kolumnie E, dodając przyrosty o 1, tak aby całkowita liczba indeksów odpowiadała całkowitej liczbie zmierzonych wartości masy w Kolumnie F.
- Przeskaluj masę netto tak, aby zaczynała się od 0 g i rosła podczas eksperymentu rozciągania, odejmując początkową masę netto od każdej wartości masy netto i mnożąc tę różnicę przez -1 (Kolumna G).
- Oblicz zmianę długości włókna dla każdego pomiaru, mnożąc indeks pomiaru przez prędkość rozciągania pompy strzykawkowej oraz opóźnienie czasowe między zarejestrowanymi pomiarami masy (Kolumna H).
- Oblicz odkształcenie inżynierskie, dzieląc zmianę długości włókna przez długość początkową (Kolumna I).
UWAGA: Obliczenie to daje odkształcenie inżynierskie w mm/mm. Aby przekonwertować wartości odkształcenia inżynierskiego na %, pomnóż wartości w Kolumnie I przez 100%. - Zapisz rozciągliwość jako maksymalną wartość odkształcenia inżynierskiego (Komórka T3).
- Oblicz siłę (w N) wymaganą do osiągnięcia każdej zarejestrowanej zmiany długości, konwertując masę z g na kg i mnożąc przez standardowe przyspieszenie ziemskie (9.81 m/s2; Kolumna J).
- Oblicz naprężenie inżynierskie (w Pa), dzieląc siłę wyznaczoną dla danego stopnia rozciągnięcia przez pole przekroju poprzecznego włókna, a następnie pomnóż przez 10-6, aby przeliczyć wynik na MPa (Kolumna K).
- Zapisz maksymalne zaobserwowane naprężenie jako naprężenie wytrzymałościowe (Komórka U3), a naprężenie w momencie zerwania jako ostatnią wartość naprężenia zarejestrowaną przed przerwaniem włókna (Komórka V3).
- Oblicz pole pod krzywą naprężenie-odkształcenie, aby wyznaczyć odporność na pękanie, stosując metodę trapezową do obliczenia pola pod krzywą po każdym pomiarze (Kolumna L). Zsumuj te pola, aby obliczyć odporność na pękanie (Komórka W3).
- Oblicz moduł Younga (w MPa), wyznaczając nachylenie początkowego liniowego obszaru krzywej naprężenie-odkształcenie za pomocą funkcji LINEST. Przelicz na GPa, mnożąc przez 103 (Komórka X3).
5. Spektromikroskopia w podczerwieni z transformacją Fouriera (FTIR)
- Przygotuj próbkę do analizy FTIR, przytwierdzając drugą szkiełko za pomocą taśmy do spodu szkiełka przygotowanego do mikroskopii optycznej.
- Pozyskiwanie obrazu optycznego i widm FTIR
- Napełnij naczynie próżniowe detektora ciekłym azotem, aby schłodzić detektor.
- Uruchom oprogramowanie sterujące instrumentem FTIR.
- W oknie View and Collect (Supplemental File 1 - Supplemental Figure S8) otwórz kartę Collection, ustaw Collection Mode na ATR oraz Detector na Cooled (Supplemental File 1 - Supplemental Figure S9).
- Umieść szkiełko w uchwycie, a następnie umieść uchwyt na stole mikroskopu.
- Ustaw oświetlenie górne na 100, a przysłonę i oświetlenie dolne na 0.
- Ustaw ostrość środka pola widzenia dla obrazu optycznego próbki na włóknie, korzystając z fizycznego lub cyfrowego dżojstika w oprogramowaniu, aby kontrolować pozycję środka pola widzenia oraz płaszczyznę ogniskową.
- Ustaw Collection Mode na Map (Supplemental File 1 - Supplemental Figure S8).
- Wybierz obszar do obrazowania i pomiaru za pomocą narzędzia Map View - Area Tool. Kliknij i przeciągnij kursor, aby określić region, dla którego mają zostać pozyskane widma w podglądzie mikrografii (Supplemental File 1 - Supplemental Figure S8). Każde koło na obrazie reprezentuje jedno pozyskane widmo w danej pozycji. W razie potrzeby zmień krawędzie tego pola, najeżdżając kursorem nad krawędź pola, a następnie klikając i przeciągając ją w żądane miejsce. Przesuń całe pole, klikając i przeciągając wewnątrz prostokąta. Zmodyfikuj obszar pola oraz liczbę punktów danych w sekcji Stage, Aperture, and Display (Supplemental File 1 - Supplemental Figure S10).
- Kliknij prawym przyciskiem myszy na podglądzie mikrografii i wybierz Capture Mosaic, aby zapisać obraz (Supplemental File 1 - Supplemental Figure S8).
- Ustaw ciśnienie ATR, klikając rozwijane menu Current pressure profile. Dla włókien białkowych użyj ciśnienia 2% (tj. najniższego możliwego ciśnienia ATR), aby zminimalizować uszkodzenia włókna (Supplemental File 1 - Supplemental Figure S8).
- Wprowadź końcówkę ATR FTIR.
- Kliknij przycisk Collect (Supplemental File 1 - Supplemental Figure S8), aby pozyskać widmo tła, a następnie widma w każdym z wybranych punktów. Po zakończeniu pomiaru dane zostaną wyświetlone w nowym oknie.
- Przygotowanie danych do dalszej analizy
- Kliknij lewym przyciskiem myszy na mapie ciepła lub mikrografii, aby wyświetlić widmo pozyskane w odpowiadającej pozycji (Supplemental File 1 - Supplemental Figure S11).
- Kliknij prawym przyciskiem myszy na widmo do analizy i wybierz Copy (Supplemental File 1 - Supplemental Figure S11).
- Kliknij prawym przyciskiem myszy na pasku Windows u góry ekranu i wybierz New Window (Supplemental File 1 - Supplemental Figure S11).
- Po otwarciu nowego okna kliknij przycisk Paste u góry ekranu (Supplemental File 1 - Supplemental Figure S11).
- Zastosuj tę samą metodę, aby skopiować i wkleić do tego okna wszystkie inne widma przeznaczone do analizy.
- Zaznacz widmo lub widma, naciskając Ctrl i klikając w każde z wybranych widm lub zaznaczając żądane widma w menu rozwijanym.
- Kliknij Save As… i zapisz pliki jako pliki .spa, aby analizować dane w oprogramowaniu sterującym spektrometrem, lub jako .csv, aby analizować dane w innym pakiecie oprogramowania (Supplemental File 1 - Supplemental Figure S12).
- Analiza drugiej pochodnej przy użyciu dedykowanego oprogramowania instrumentu
- Otwórz widma do analizy w dedykowanym pakiecie oprogramowania do przetwarzania i analizy widm.
- Aby przełączać się między trybami % Transmittance i Absorbance, użyj Ctrl+A (% Transmittance na Absorbance) lub Ctrl+T (Absorbance na % Transmittance).
- Wybierz obszar zainteresowania, klikając View | Display Limits (lub Ctrl+D) (Supplemental File 1 - Supplemental Figure S13A). Aby wyświetlić konkretnie pasma Amidi I (1 700-1 600 cm-1) i amidi II (1 600-1 500 cm-1), ustaw Start i End X-axis Limits na odpowiednie liczby falowe. W przypadku analizy więcej niż jednego widma wybierz Apply to all spectra. Kliknij OK (Supplemental File 1 - Supplemental Figure S13B).
- Aby wykreślić drugą pochodną, kliknij Process | Derivative… i wybierz Second z menu rozwijanego (Supplemental File 1 - Supplemental Figure S14A). Wybierz pochodną Norrisa z długością segmentu wynoszącą 5 i przerwą między segmentami wynoszącą 5 (Supplemental File 1 - Supplemental Figure S14B). Minima widma drugiej pochodnej pokrywają się z pikami składowymi w oryginalnym widmie absorbancji.
- Jeśli widmo jest zbyt zaszumione, aby ocenić minima, wygładź widmo, klikając Process>Automatic Smooth (Supplemental File 1 - Supplemental Figure S15). Następnie oblicz drugą pochodną i znajdź minima.
- Powiąż liczby falowe w minimach drugiej pochodnej z charakterystycznymi pozycjami pasm struktur drugorzędowych, korzystając z tabeli referencyjnej (np. Tabela 2), aby uzyskać informacje o strukturze drugorzędowej białka.
- Dekonwolucja piku przy użyciu dedykowanego oprogramowania analitycznego
- Ustaw obszar wyświetlania na obszar do dekonwolucji zgodnie z krokiem 5.4.3. Tylko ten region zostanie poddany dekonwolucji.
- Wykonaj korekcję linii bazowej wybranego regionu widma za pomocą jednej z poniższych metod:
- Kliknij Process | Automatic Baseline Correct (Supplemental File 1 - Supplemental Figure S16); lub
- Kliknij Process | Baseline Correct (Supplemental File 1 - Supplemental Figure S17A), a następnie wybierz Linear z menu rozwijanego i określ region widma do korekcji linii bazowej w widmie Position, klikając i przeciągając dwa punkty określające dolną i górną granice regionu korygowanego na potrzeby dekonwolucji. Następnie wybierz Add to Window w drugim menu rozwijanym i kliknij przycisk Add (Supplemental File 1 - Supplemental Figure S17B).
- Mając wybrane widmo z poprawioną linią bazową, kliknij Analyze | Peak Resolve…, aby otworzyć okno Peak Resolve (Supplemental File 1 - Supplemental Figure S18).
- Wybierz widma i krzywe do analizy za pomocą paska wyboru po lewej stronie ekranu.
- W karcie Find Peaks wybierz Gaussian/Lorentzian z ustawieniem Sensitivity na Low i FWHH na 2, a następnie kliknij przycisk Find Peaks (Supplemental File 1 - Supplemental Figure S19).
- Kliknij przycisk Peaks, aby otworzyć tabelę opisującą piki.
- Jeśli wybranych zostało więcej pików, niż jest to fizycznie uzasadnione, klikaj Delete Peak, aż do uzyskania prawidłowej liczby pików do analizy (Supplemental File 1 - Supplemental Figure S20). Na przykład dla regionu amidi I w literaturze zazwyczaj zgłasza się od 5 do 11 pików (Tabela 2).
- Aby upewnić się, że wszystkie piki są dodatnie po dopasowaniu, kliknij Edit Peak i ustaw minimalną wysokość na 0. Następnie kliknij Next i powtórz czynność dla każdego piku, a na koniec kliknij OK, aby zamknąć okno edycji (Supplemental File 1 - Supplemental Figure S21).
- Jeśli istnieją konkretne liczby falowe, które muszą znaleźć się w końcowej dekonwolucji, kliknij Edit Peak i ustal środek piku na liczbę falową podaną w polu Value box, wybierając Fixed lub podając zakres w polach Low limit i High limit. Kliknij OK, aby zastosować te ustawienia do danego piku.
UWAGA: Na tym etapie optymalne jest użycie pozycji pików znalezionych podczas analizy drugiej pochodnej lub pików z tabeli referencyjnej struktur drugorzędowych FTIR, najlepiej opisanych dla podobnego typu próbki jedwabiu (np. Tabela 2).
- Kliknij przycisk Fit Peaks (Supplemental File 1 - Supplemental Figure S22).
- Jeśli algorytm dopasowania pików nie zbiega pomyślnie, kliknij ponownie Fit Peaks, aby iteracyjnie kontynuować dopasowanie pików.
- Kliknij przycisk Peaks…, aby uzyskać informacje o pozycji, wysokości, FWHH i powierzchni wszystkich dopasowanych pików.
- Piki te można skopiować do schowka, klikając Clipboard, aby umożliwić ich wklejenie do innego okna lub pliku (Supplemental File 1 - Supplemental Figure S23).
- Skopiuj piki i widma do innego okna, wybierając miejsce docelowe w rozwijanym menu wyboru okna obok przycisku Add (Supplemental File 1 - Supplemental Figure S24).
- Kliknij przycisk Select All i użyj File | Save As, aby zapisać piki i widma jako pliki .spa i/lub .csv (Supplemental File 1 - Supplemental Figure S25).
- Powiąż każdy pik składowy ze strukturą drugorzędową za pomocą tabeli referencyjnej. Względna powierzchnia piku(pików) odpowiadających danej strukturze drugorzędowej w stosunku do całkowitej powierzchni wszystkich przypisanych pików określa proporcję białka posiadającego tę strukturę drugorzędową.
- Przygotowanie danych do dalszej analizy przy użyciu oprogramowania zewnętrznego
- Otwórz arkusz i załaduj dane widmowe do zewnętrznego oprogramowania do przetwarzania i analizy widm, wybierając pozycję menu Data | Connect to File | Text/CSV (Supplemental File 1 - Supplemental Figure S26). Wybierz żądany plik w File Explorer i kliknij Open.
- Wykreśl widmo, zaznaczając kolumny do wykreślenia i wybierając pozycję menu Plot | Basic 2D | Line (Supplemental File 1 - Supplemental Figure S27).
- Kliknij dwukrotnie oś x i użyj karty Scale, aby dostosować zakres do piku Amidi I (Supplemental File 1 - Supplemental Figure S28).
- Jeśli dane są bardzo zaszumione, wygładź krzywą, wybierając pozycję menu Analysis | Signal Processing>Smooth>Open Dialog… (Supplemental File 1 - Supplemental Figure S29A).
- Ustaw opcję Recalculate na Auto, Method na Savitzky-Golay, Points of Window na 5, Boundary Condition na None oraz Polynomial Order na 2 (Supplemental File 1 - Supplemental Figure S29B).
- Kliknij OK, aby przetworzyć.
- Analiza drugiej pochodnej przy użyciu oprogramowania zewnętrznego
- Wybierz pozycję menu Analysis | Mathematics | Differentiate | Open Dialog… (Supplemental File 1 - Supplemental Figure S30).
- Ustaw opcję Recalculate na Auto, Derivative Order na 2, zaznacz opcję Plot Derivative Curve i kliknij OK (Supplemental File 1 - Supplemental Figure S31).
- Jeśli wynikowa krzywa drugiej pochodnej jest bardzo zaszumiona, wykonaj kroki 5.7.1 i 5.7.2, wybierając Savitzky-Golay Smooth w karcie Smooth okna dialogowego Differentiate.
- Podobnie jak w punkcie 5.4.5, powiąż liczby falowe w minimach drugiej pochodnej ze strukturami drugorzędowymi.
- Dekonwolucja piku przy użyciu oprogramowania zewnętrznego
- Po kliknięciu na wykres widma absorbancji amidi I wybierz pozycję menu Analysis | Peaks and Baseline | Peak Analyzer | Open Dialog… (Supplemental File 1 - Supplemental Figure S32).
- W oknie dialogowym Goal - Fit Peaks (Pro) ustaw opcję Recalculate na Auto, wybierz Fit Peaks i kliknij Next (Supplemental File 1 - Supplemental Figure S33A).
- W oknie dialogowym Baseline Mode ustaw parametr Baseline Mode na Straight Line i kliknij Next (Supplemental File 1 - Supplemental Figure S33B).
- W oknie dialogowym Baseline Treatment wybierz Auto Subtract Baseline, kliknij przycisk Subtract Now i kliknij Next (Supplemental File 1 - Supplemental Figure S33C).
- W oknie dialogowym Find Peaks wyłącz opcję Enable Auto Find i kliknij Add.
- Kliknij dwukrotnie w oknie zawierającym wykres widma z pikami do dopasowania.
- Wybierz piki na podstawie minimów zaobserwowanych w drugiej pochodnej (krok 5.7.4) lub tabel referencyjnych (np. Tabela 2).
- Kliknij Done, a następnie kliknij Next (Supplemental File 1 - Supplemental Figure S33D).
- W oknie dialogowym Fit Peaks (Pro) zaznacz Generate Report from Current Fitting Result i kliknij Fit, a następnie Finish (Supplemental File 1 - Supplemental Figure S33E).
- Sprawdź kartę PeakProperties1 w arkuszu, aby zobaczyć środek, powierzchnię całkowaną i FWHM każdego piku (Supplemental File 1 - Supplemental Figure S34). Podobnie jak w kroku 5.5.9, powiąż każdy pik składowy z typem struktury drugorzędowej i oceń procentowy udział tej struktury drugorzędowej w strukturze białka.
| Zakres liczb falowych (cm⁻¹)-1) | Zadanie |
| 1605−1615 | Łańcuchy boczne Tyr/Zaggregowane pasma β |
| 1616−1621 | Zaggregowane pasma β/Wewnątrzmolekularne harmonijki β [słabe] |
| 1622−1627 | Międzycząsteczkowe harmonijki β [silne] |
| 1628−1637 | Wewnątrzcząsteczkowe harmonijki β [silne] |
| 1638−1646 | Kłębek statystyczny/łańcuchy rozciągnięte |
| 1647−1655 | Losowy kłębek |
| 1656−1662 | α-helisy |
| 1663−1696 | Obroty |
| 1697-1703 | Międzycząsteczkowe harmonijki β [słabe] |
Tabela 2: Przypisanie pasm wibracyjnych w regionie amidu I dla jedwabiu Bombyx mori na podstawie ewaluacji porównawczej kilku badań przeprowadzonych przez Hu i wsp.57.
Wyniki
Idealny roztwór prziądzalny to klarowny, lepki roztwór pozbawiony osadów, co wskazuje na całkowite rozpuszczenie białka (Rysunek 7A). Przeciwnie, niepełne rozpuszczenie prowadzi do powstania mętnej zawiesiny lub widocznych osadów (Rysunek 7B,C). Czas wymagany do pełnego rozpuszczenia białka zmienia się w zależności od rozpuszczalnika; niektóre rozpuszczalniki, takie jak mieszaniny TFA/TFE/H2O, zazwyczaj całkowicie rozpuszczają białko w ciągu 30 min, podczas gdy inne, np. HFIP, mogą wymagać mieszania przez noc wraz z okresowym wstrząsaniem w wortexie.
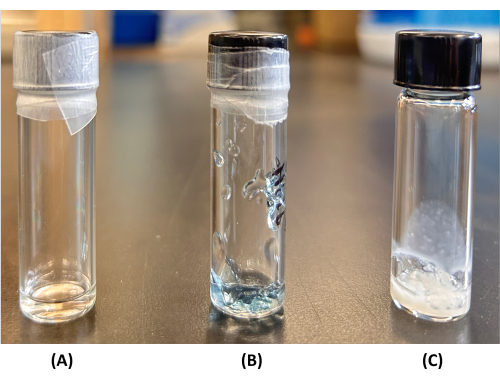
Rycina 7: Optymalizacja roztworu przędzalnego. (A) Rozpuszczalnik zdolny do całkowitego rozpuszczenia białka daje przejrzysty i lepki, nadający się do przędzenia roztwór. Częściowe rozpuszczenie lub zawieszenie białka w wyniku wyboru nieoptymalnego rozpuszczalnika może prowadzić do (B) stanu nadmiernej lepkości, zazwyczaj z widocznym osadem lub (C) zawiesiny o mlecznym wyglądzie. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rysunek 2E przedstawia reprezentatywne włókno wyciągane ręcznie, natomiast Rysunek 4D pokazuje nawinięte włókno otrzymane metodą przędzenia na mokro. Przed jakąkolwiek dalszą analizą niezbędne jest zastosowanie mikroskopii optycznej w celu oceny jakości włókna. Na Rynku 8 przedstawiono reprezentatywne mikrofotografie optyczne rekombinowanych włókien jedwabnych przędzionych na mokro w dwóch różnych warunkach (konfiguracje przędzenia na mokro próbek przedstawiono na Rysunku 3), które nadają się do dalszych analiz. Mikroskopia optyczna (Rysunek 8A) wyraźnie pokazuje, że włókna te mają jednorodną średnicę, przy czym zauważalny jest spadek średnicy po zastosowaniu wyciągania po przędzeniu (tj. włókna nieprzetworzone (AS) w porównaniu do włókien rozciągniętych po przędzeniu w stosunku 4x w 40% etanolu (4x-EtOH)). Wyższy stopień dwójłomności, skutkujący większym kontrastem w mikroskopii w świetle spolaryzowanym (Rysunek 8B), jest zgodny z poprawą uporządkowania molekularnego w włóknie w wyniku procesu wyciągania po przędzeniu. Na koniec należy zaznaczyć, że w pewnej frakcji analizowanych włókien najprawdopodobniej zaobserwuje się defekty, co sprawi, że dany segment włókna nie będzie nadawał się do dalszych analiz. Dwa takie przykłady przedstawiono na Rysunku 9.
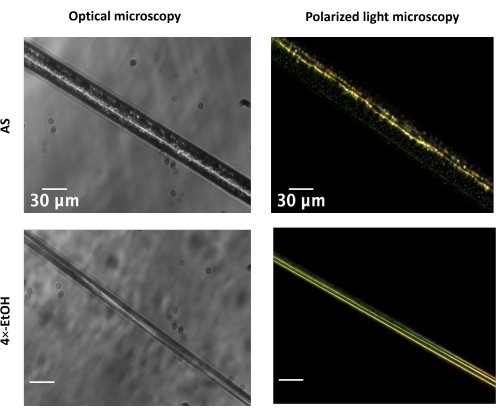
Rysunek 8: Reprezentatywne mikrofotografie optyczne rekombinowanych włókien pajęczego jedwabiu otrzymanych metodą mokrego przędzenia. Przedstawiono włókna w stanie AS oraz po 4-krotnym rozciąganiu po przędzeniu w etanolu (EtOH) dla chimerycznego konstruktu jedwabiu pyriform-aciniform (Py2W2) obserwowanego za pomocą mikroskopii optycznej (lewa kolumna) i mikroskopii w świetle spolaryzowanym (prawa kolumna). Zdjęcia zostały powielone za zgodą Ghimire et al.17. Paski skali = 30 µm. Skróty: AS = as-spun (w stanie po przędzeniu); EtOH = etanol. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
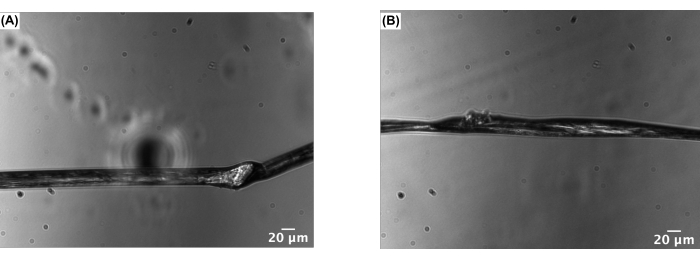
Rysunek 9: Przykład potencjalnych defektów włókien obserwowalnych przy użyciu mikroskopii optycznej. (A) Przykład defektu „wybrzuszenia”. (B) Przykład defektu „przewężenia”. Paski skali = 20 µm Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Po upewnieniu się, że w danym segmencie włókna nie występują defekty, oraz po wyznaczeniu średnicy (sekcja protokołu 3.2), można przeprowadzić próbę rozciągania (np. Rysunek 6). Reprezentatywne krzywe naprężenie-odkształcenie uzyskane dla chimerycznego rekombinowanego jedwabiu pajęczego przędzonego w różnych warunkach przedstawiono na Rysunku 10. W zależności od warunków przędzenia otrzymane włókna różnią się od kruchych (stan AS), przez wysoce rozciągliwe o wytrzymałości zbliżonej do stanu AS (stan 2x-air), aż po włókna znacznie wytrzymalsze i mniej rozciągliwe (stan 4x-EtOH). Należy zauważyć, że w celu jednoznacznej i rygorystycznej oceny właściwości mechanicznych konieczna jest analiza wielu segmentów włókien oraz partii przędzonych włókien.
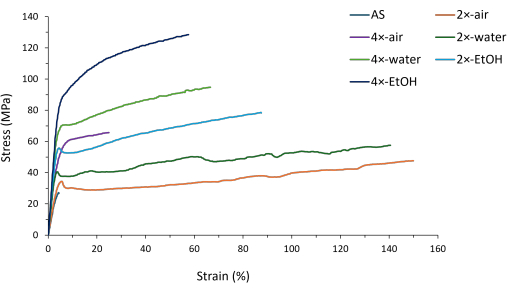
Rysunek 10: Reprezentatywna krzywa naprężenie-odkształcenie włókien przędzionych w różnych warunkach. Włókna analizowano w stanie bezpośrednio po przędzeniu (AS) lub po obróbce z wykorzystaniem zautomatyzowanego rozciągania po przędzeniu (podano stopień rozciągnięcia i warunki rozciągania (powietrze vs rozpuszczalnik)). Rysunek zaadaptowany za zgodą Ghimire et al.(2024)17. Skrót: AS = as-spun (bezpośrednio po przędzeniu). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Wreszcie, drugą strukturę w stanie włókna można ocenić za pomocą spektromikroskopii ATR-FTIR. Typowe widma włókien jedwabiu uzyskane tą metodologią (Rycina 11A,B) wykazują charakterystyczne pasma białek, w tym szeroki piki amidowy a (centrowany wokół ~3,300 cm-1), piki amidowy I (~1,600-1,700 cm-1) oraz piki amidowy II (~1,500-1,600 cm-1). Tutaj skupiamy się na ocenie obszaru amidowego I (np. Rycina 11C,D). Analiza drugiej pochodnej jest użyteczna jako sposób identyfikacji kluczowych komponentów piku amidowego I (Rycina 11E,F), co uwiarygadnia ilościową dekonwolucję piku (Rycina 11G-J), pozwalającą na ocenę i porównanie proporcji typów struktur drugorzędowych zaobserwowanych we włóknie jedwabnym przędzonym w określonych warunkach.
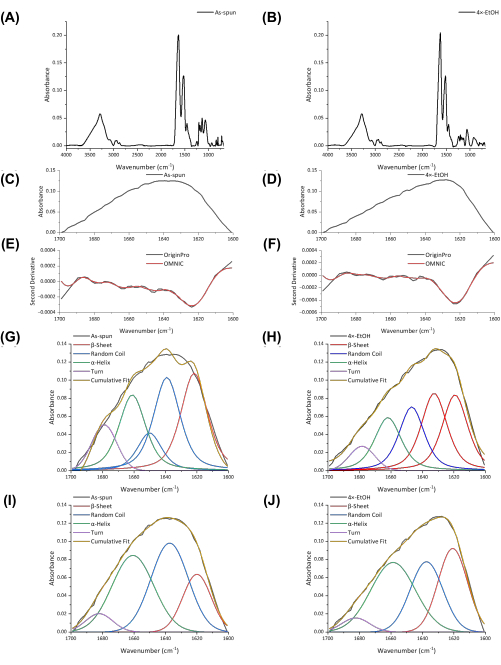
Rysunek 11: Widma FTIR i analiza struktury drugorzędowej. (A,B) Widma FTIR włókien Py2W2 otrzymanych metodą przędzenia na mokro w stanie (A) bezpośrednio po przędzeniu (AS) oraz (B) po zastosowaniu czterokrotnego rozciągania w etanolu po przędzeniu. (C,D) Obszary pasma amidowego I widm FTIR przedstawionych odpowiednio w punktach A i B. (E-F) Druga pochodna obszarów pasma amidowego I przedstawionych odpowiednio w punktach C i D, obliczona przy użyciu wskazanego pakietu oprogramowania. (G-J) Dekonwolucja piku amidowego I wykonana przy użyciu pakietów oprogramowania (G i I) OMNIC lub (H i J) OriginPro, gdzie panele G i I przedstawiają dekonwolucję odpowiadającą punktowi C, a panele H i J odpowiadają punktowi D. Skróty: FTIR = transformacja Fouriera w podczerwieni; AS = as-spun (bezpośrednio po przędzeniu). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Poza poszczególne techniki, korelacja danych dotyczących struktury drugorzędowej, właściwości mechanicznych oraz orientacji (supra)molekularnej jest zazwyczaj niezbędna zarówno dla zrozumienia wpływu różnych parametrów przędzenia na otrzymany materiał, jak i dla racjonalnej optymalizacji procesu przędzenia. W dekonwolucjach FTIR przedstawionych na Rysunku 11, na przykład przy porównaniu warunków AS i 4×-EtOH dla chimerycznego jedwabiu, wyraźne wkłady struktur typu β-sheet w pasmo amidu I są widoczne dla obu warunków, jednak stanowią one większą część całkowitej struktury drugorzędowej dla stanu rozciągniętego po przędzeniu w porównaniu ze stanem AS, niezależnie od zastosowanej metody dekonwolucji (np. Rysunek 11G,H w porównaniu z Rysunkiem 11I,J). Jest to spójne zarówno ze znacznie wyższą wytrzymałością zaobserwowaną dla warunków 4×-EtOH niż dla stanu AS (Rysunek 10), jak i z poprawą uporządkowania molekularnego w warunkach 4×-EtOH w stosunku do stanu AS (Rysunek 9). Szczegółowa charakterystyka i analiza, obejmująca zakres warunków pokazanych na Rysunku 10, zostały opisane wcześniej17. W związku z tym nie powielamy tutaj całej analizy, lecz wykorzystujemy to porównanie parzyste jako demonstrację sposobu, w jaki te trzy klasy danych uzupełniają się nawzajem i umożliwiają wypracowanie znacznie bardziej kompleksowego rozumienia zachowania włókien niż jakakolwiek pojedyncza technika stosowana w izolacji.
Plik uzupełniający 1: Plik zawierający rysunki uzupełniające S1-S34 przedstawiające pomiar średnicy włókien, przetwarzanie danych mechanicznych oraz akwizycję i przetwarzanie danych FTIR. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Arkusz kalkulacyjny umożliwiający określenie kluczowych właściwości mechanicznych (tj. naprężenia, odkształcenia, modułu Younga i odporności na pękanie) na podstawie danych masy w funkcji czasu. Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Produkcja białek rekombinowanych umożliwia ekscytujący potencjał wytwarzania materiałów w szerokiej gamie formatów, przy czym ostatnie postępy sugerują, że te materiały na bazie białek zbliżają się do bardziej powszechnego zastosowania przemysłowego58. Tutaj skupiliśmy się na produkcji włókien z jedwabiu rekombinowanego, ponieważ jest to format jedwabiu rekombinowanego bezpośrednio spokrewniony z rodzimymi włóknistymi niciami pajęczymi. Włókna jedwabiu są reklamowane jako mające wiele potencjalnych zastosowań ze względu na renomowane właściwości mechaniczne naturalnych nici pajęczych oraz ze względu na potencjał do produkcji wysokowydajnych włókien w sposób zrównoważony32. Proponowane zastosowania obejmują zarówno wysokowydajne tekstylia, materiały pochłaniające energię, produkty higieny osobistej, jak i opiekę zdrowotną58,59. Urządzenia i materiały na bazie pajęczego jedwabiu w formatach ubieralnych lub w innych kontekstach, w których zwiększa się przewodność elektryczna, są również aktywnie badane zarówno pod kątem biomedycznym, jak i szerszego zastosowania60. W związku z tym istnieje duże zainteresowanie opracowywaniem, optymalizacją i dostosowywaniem materiałów na bazie pajęczego jedwabiu. W tym protokole przedstawiamy szereg procedur mających na celu szybką produkcję włókien po przygotowaniu nowego rekombinowanego białka jedwabiu lub modulację właściwości materiału rekombinowanego jedwabiu, co do którego już ustalono, że nadaje się do przędzenia.
Niezależnie od zastosowanej metody przędzenia, kluczowe znaczenie ma określenie warunków, które umożliwiają produkcję domieszki wirowej poprzez badanie przesiewowe warunków rozpuszczalnika/bufora i stężenia białka, jak opisano w niniejszym dokumencie. Ostatecznym celem jest rozpuszczanie białka w wystarczająco wysokim stężeniu, aby umożliwić szybką konwersję do włókna bez samoorganizacji poza szlakiem w agregaty lub inne nierozpuszczalne gatunki, które uniemożliwią "produktywne" przędzenie. Jest to zazwyczaj przezroczysty, stosunkowo lepki roztwór, najprawdopodobniej zawierający samoorganizujące się gatunki, takie jak micele/nanocząstki26,61 i/lub separacja faz ciecz-ciecz62. Protokół ten nie wyszczególnia metod kompleksowej oceny stanu domieszkowania spinowego, ponieważ udane przędzenie włókien można osiągnąć poprzez iteracyjną ocenę różnych domieszek spinowych i konfiguracji przędzenia. Szczegółowy molekularny i supramolekularny wgląd w stan domieszkowania spinowego można uzyskać za pomocą technik takich jak wiskozymetria, rozpraszanie światła, spektroskopia dichroizmu kołowego dalekiego UV, spektroskopia magnetycznego rezonansu jądrowego i/lub mikroskopia elektronowa26. Należy również zauważyć, że samo rekombinowane białko może być modyfikowane w celu poprawy jego zachowania podczas wirowania, z włączeniem globularnych, niepowtarzalnych domen N- i C-końcowych będących jednym z przykładów metody zwiększania rozpuszczalności spidroiny32. Krótko mówiąc, bez odpowiedniej identyfikacji domieszek spinowych nie jest możliwe przystąpienie do testów porównawczych warunków przędzenia.
Po zidentyfikowaniu jednego lub więcej warunków domieszkowania przędzowego, ręczne rysowanie zapewnia szybką drogę do oceny właściwości włókien jedwabiu. Ponieważ do wydajnego ręcznego rysowania wymagane są znacznie mniejsze ilości domieszkowania, wymagane są znacznie mniejsze masy czystego białka, co czyni go doskonałym prekursorem zautomatyzowanych metod przędzenia na mokro. Zapewnia to również bardzo łatwą i prostą metodę bezpośredniego porównywania właściwości błonnika różnych spidroin33, ponownie z korzyścią, że produkcja błonnika jest stosunkowo prosta przy niewielkich ilościach białka. Oznaczałoby to, że optymalizacja protokołów ekspresji i oczyszczania białek w celu uzyskania wyższych plonów potrzebnych do przędzenia na mokro może być skoncentrowana na najbardziej obiecujących spidroinach. Minusem jest oczywiście to, że ręczne ciągnienie nie nadaje się do produkcji ani długich, ciągłych włókien, ani znacznych ilości włókien w opływowy sposób.
Przy wystarczającej ilości białka przędzenie na mokro zapewnia korzyści dla usprawnionej produkcji długich, ciągłych włókien32. Nie tylko to, ale właściwości włókien można łatwo modulować w procesie przędzenia. Na przykład wybór warunków przędzenia zapewnia jedną z wyraźnych dróg do poprawy mechaniki włókien. Na przykład, w przypadku rekombinowanego białka jedwabiu o masie ~60 kDa, zmiana z jednego domieszkowania wirowania na drugi, przy zachowaniu wszystkich innych parametrów przędzenia, doprowadziła do dramatycznych zmian w rozciągliwości włókien26. To z kolei odnosiło się do sposobu, w jaki spidroina groniasta gromadziła się w domieszku spinowym przed przędzeniem, z poprawioną jednorodnością samoorganizujących się nanocząstek w domieszku spinowym, co było skorelowane z ulepszoną mechaniką włókien. Włączenie losowania po wirowaniu, zauważając, że współczynnik naciągu musi być zoptymalizowany dla danego rodzaju włókna, zazwyczaj poprawia również mechanikę włókien jedwabiu poprzez pewne połączenie ulepszonego wyrównania molekularnego i zwiększonej konwersji na, na przykład, krystality z β arkuszy, które wzmacniają włókna32. Wreszcie, zastosowanie różnych warunków na etapie losowania po wirowaniu zapewnia środki do modulowania właściwości włókien. Narażenie na działanie rozpuszczalnika bezpośrednio przed lub w trakcie pobierania może znacząco zmienić właściwości mechaniczne i strukturalne włókien 17,38, przy czym należy zauważyć, że różne spidroiny będą miały różne preferencje i tolerancje rozpuszczalników (np. przy czym rekombinowane włókna groniaste są wysoce kompatybilne z wodą26,31 w porównaniu z rekombinowanymi włóknami gruszkowatymi ulegającymi skurczowi w wodzie38 w porównaniu z włóknami chimerycznej spidroiny gruszkowatej wykazującej kompatybilność wodną spidroiny groniastej z tworzywa groniastego, mimo że stanowi ona mniej niż połowę białka w masie17).
Opisany protokół zapewnia wysoce konfigurowalne i wszechstronne podejście do oceny i optymalizacji przędzalni i właściwości włókien rekombinowanych pajęczych nici. We wszystkich przypadkach uzyskane właściwości włókien muszą być konsekwentnie i solidnie analizowane i porównywane. W tym celu proponujemy zastosowanie mikroskopii optycznej, w tym mikroskopii w świetle spolaryzowanym, prób rozciągania i spektromikroskopii FTIR jako "standardowego zestawu narzędzi" technik do tego celu. Dodatkowe techniki charakterystyki biofizycznej i materiałowej mogą być stosowane w celu poszerzenia wiedzy na temat powstałych włókien, ale ten zestaw technik zapewnia wyjątkowe pokrycie kluczowych właściwości morfologii, wyrównania/anizotropii wewnątrzfibrylarnej, wydajności mechanicznej i wtórnej struktury białek. W szczególności, chociaż spektromikroskopia FTIR zapewnia stosunkowo prosty sposób oceny wtórnej struktury włókien jedwabiu, a mikroskopia światła spolaryzowanego pozwala wnioskować o stopniu osiągniętego zwiększonego dopasowania molekularnego, inne metodologie, takie jak spektroskopia NMR w stanie stałym63,64, dyfrakcja rentgenowska64, spolaryzowana spektromikroskopia Ramana65 i/lub nieliniowa mikroskopia optyczna54 powinny być brane pod uwagę w celu bardziej kompleksowej oceny krystaliczności, wyrównania i strukturyzacji we włóknach jedwabiu w celu pełnego wyjaśnienia zależności struktura-mechanika. Biorąc pod uwagę przydatność przędzenia na mokro dla innych rodzajów białek66, przewidujemy, że protokół ten będzie ogólnie stosowany poza rekombinowanymi jedwabiami.
Oświadczenia
Jan K. Rainey informuje o powiązaniach z 3DBioFibR Inc., które obejmują udziały w kapitale własnym i dotacje finansowe. Pozostali autorzy nie mają do zadeklarowania konfliktu interesów.
Podziękowania
Finansowanie tej pracy zostało zapewnione przez Natural Sciences and Engineering Research Council of Canada (NSERC) Discovery Grants (RGPIN-2020-06083 do X-QL i RGPIN-2023-05912 do JKR), suplement Departamentu Obrony Narodowej/NSERC (DGDND-2023-05912 do JKR), grant NSERC Alliance (ALLRP-578541-22 do JKR) we współpracy z 3DBioFibR Inc oraz granty NSERC Research Tools and Instruments. AG jest laureatem stypendium doktoranckiego dla absolwentów Nowej Szkocji (NSGS-D) oraz stypendium podyplomowego Wydziału Medycyny Dalhousie 2024 finansowanego ze wsparcia darczyńców Molly Appeal; HB jest laureatem stypendium Vanier Canada Graduate Scholarship ufundowanego przez NSERC, stypendium przeddoktoranckiego Killam (poziom 2) oraz NSGS-D; SE jest laureatem stypendium podyplomowego NSERC Doctoral Postgraduate Scholarship (PGS-D), nagrody NSERC/Department of National Defence Supplemental Funding Award oraz stypendium Walter C. Sumner Memorial Fellowship. Autorzy są wdzięczni za wsparcie techniczne ze strony Sophie Haverstock i Emily Smith.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1,1,1,3,3,3-heksafluroropropanol (HFIP) | Thermo Fisher Scientific | 445820500 | Służy do przygotowania dopingu |
| Strzykawka 1725LTSN z igłą cementowaną z końcówką Luer | Hamilton | 81100 | Używany do przędzenia na mokro |
| 2,2,2-trifluoroetanol (TFE) | Sigma-Aldrich | T63002-500G | Używany do przygotowania domieszek |
| Absolutny etanol | Fisher Scientific | BP28184 | Używany do kąpieli krzepnięcia |
| Kwas octowy | Fisher Scientific | A38-212 | Używany do przygotowania domieszek |
| Waga analityczna | Mettler Toledo | XS105 | Dwuzakresowe urządzenie do prób rozciągania |
| Chlorek wapnia (CaCl2) | Sigma-Aldrich | C-3881 | Używany do przygotowania środków dopingujących |
| Kwas cytrynowy | Millipore Sigma | 77-92-9 | Służy do przygotowania środków dopingujących |
| Komputer | Raspberry Pi | Raspberry Pi 4 Model B | Urządzenie do wirowania na mokro - zapewnia możliwość wykorzystania graficznego interfejsu użytkownika do sterowania silnikami krokowymi |
| Wodorofosforan disodowy (Na2HPO4) | Millipore Sigma | 7558-79-4 | Używany do przygotowania domieszek |
| Kwas mrówkowy | Fisher Scientific | A118-500 | Służy do przygotowania środków dopingujących |
| Szkiełka szklane | Millipore Sigma | S8902-1PAK | Służy do montażu światłowodu |
| Kwas solny (HCl) | EM Science | HX0603-53 | Służy do przygotowania domieszek |
| MCT-A Chłodzony detektor | Thermo Fisher Scientific | 840-199300 | Ocena FTIR struktury wtórnej włókien |
| Płyta | montażowa Produkowane we własnym zakresie | urządzenie do przędzenia na mokro | |
| NEMA 17 Biopolarny silnik krokowy | STEPPERONLINE | 17HS15-1504S-X1 | Urządzenie do przędzenia na mokro - uwaga: do wykonania rozciągania po wirowaniu wymaganych jest wiele silników |
| Spektromikroskop Nicolet iN10 FTIR | Thermo Fisher Scientific | 912A0604 | FTIR ocena struktury wtórnej włókien |
| Nicolet iN10 Etap mapowania | Thermo Fisher Scientific | 840-198800 | FTIR ocena struktury wtórnej włókna |
| Nicolet iN10 Zmotoryzowany joystick sceniczny | Thermo Fisher Scientific | 840-199800 | FTIR ocena struktury drugorzędowej włókien |
| Nicolet Slide-On Ge Micro Tip ATR 350 | Thermo Fisher Scientific | 840-194800 | Ocena FTIR struktury drugorzędowej włókien |
| OMNIC Picta ver. 1.7.224 | Thermo Fisher Scientific | INQSOF018 | Oprogramowanie sterujące przyrządem FTIR |
| OMNIC wersja 9.11.745 | Thermo Fisher Scientific | INQSOF018 | Oprogramowanie do przetwarzania i analizy danych FTIR specyficzne dla przyrządu |
| optyczne/spolaryzowane | mikroskop Zeiss Canada | Axio Observer A1 | Odwrócony mikroskop optyczny |
| OriginPro 2025 10.2 SR1 | OriginLab Corporation | OriginPro 10.200196 | Oprogramowanie do przetwarzania i analizy danych FTIR innych firm |
| Diwodorofosforan potasu (KH2PO4) | Fisher Scientific | P285-10 | Używany do przygotowania dopingu |
| Fosforan potasu dwuzasadowy (K2HPO4) | Fisher Scientific | BP363-500 | Używany do przygotowania dopingu |
| Zasilacz | ALITOVE | ALT-1205 | Urządzenie do przędzenia na mokro - 12V 5A Zasilacz Adapter Przetwornica AC 100-240V Wejście z gniazdem wyjściowym DC 5,5x2,5mm - UWAGA: dla optymalnej wydajności może wymagać oddzielnego zasilacza dla każdego silnika |
| Octan sodu | Sigma-Aldrich | S2889-1KG | Używany do przygotowania domieszek |
| Wodorotlenek sodu (NaOH) | Milipore Sigma | 1310-73-2 | Używany do przygotowania domieszek |
| Rolki przędzalnicze | Produkowane we własnym zakresie | Używane do przędzenia na mokro | |
| silnika krokowego | B0BD5FV3R2 | Urządzenie do wirowania na mokro - zapewnia połączenie od sterowników silników krokowych do silników krokowych | |
| Sterownik silnika krokowego (Pi HAT) | Adafruit | DC & Czapka silnika krokowego do Raspberry Pi | Sterownik silnika urządzenia do wirowania na mokro Permutacja 1 - uwaga ograniczona prędkość obrotowa silnika ~46 obr./min |
| Sterownik silnika krokowego (USB) | Polulu | Tic T249 | Sterownik silnika do wirowania na mokro permutacja 2 - używaj, gdy może być potrzebny obrót szybszy niż 46 obr./min |
| Pompa strzykawkowa | KD | Scientific Model 100 | Przyrząd do prób rozciągania i urządzenie do przędzenia na mokro |
| Kwas trifluorooctowy (TFA) | Millipore Sigma | TX1276-7 | Służy do przygotowania domieszek |
| Chlorowodorek tris | EMD Millipore | 9310-500GM | Służy do przygotowania środków dopingujących |
| Hub USB | Acasis | B07Q3TYF15 | Urządzenie do wirowania na mokro - Hub USB zasilany 48W - ACASIS 10 portów Koncentrator danych USB 3.0 - z indywidualnymi przełącznikami włączania/wyłączania i zasilaczem 12V/4A Rozdzielacz USB - interfejs pomiędzy sterownikami silników krokowych Raspberry Pi i Tic T249 |
Bibliografia
- Gosline, J. M., Demont, M. E., Denny, M. W. The structure and properties of spider silk. Endeavour. 10 (1), 37-43 (1986).
- Gosline, J. M., Guerette, P. A., Ortlepp, C. S., Savage, K. N. The mechanical design of spider silks: from fibroin sequence to mechanical function. J Exp Biol. 202 (23), 3295-3303 (1999).
- Lewis, R. V. Spider silk: Ancient ideas for new biomaterials. Chem Rev. 106 (9), 3762-3774 (2006).
- Omenetto, F. G., Kaplan, D. L. New opportunities for an ancient material. Science. 329 (5991), 528-531 (2010).
- Hayashi, C. Y., Shipley, N. H., Lewis, R. V. Hypotheses that correlate the sequence, structure, and mechanical properties of spider silk proteins. Int J Biol Macromol. 24 (2-3), 271-275 (1999).
- Römer, L., Scheibel, T. The elaborate structure of spider silk: structure and function of a natural high performance fiber. Prion. 2 (4), 154-161 (2008).
- Altman, G. H., et al. Silk-based biomaterials. Biomaterials. 24 (3), 401-416 (2003).
- Fahnestock, S. R., Irwin, S. L. Synthetic spider dragline silk proteins and their production in Escherichia coli. Appl Microbiol Biotechnol. 47, 23-32 (1997).
- Xia, X. -X., et al. Native-sized recombinant spider silk protein produced in metabolically engineered Escherichia coli results in a strong fiber. Proc Natl Acad Sci USA. 107 (32), 14059-14063 (2010).
- Fahnestock, S. R., Bedzyk, L. A. Production of synthetic spider dragline silk protein in Pichia pastoris. Appl Microbiol Biotechnol. 47, 33-39 (1997).
- Bogush, V. G., et al. Recombinant analogue of spidroin 2 for biomedical materials. Dokl Biochem Biophys. 441, 276-279 (2011).
- Huemmerich, D., et al. Novel assembly properties of recombinant spider dragline silk proteins. Curr Biol. 14 (22), 2070-2074 (2004).
- Menassa, R., et al. Spider dragline silk proteins in transgenic tobacco leaves: Accumulation and field production. Plant Biotechnol J. 2 (5), 431-438 (2004).
- Hauptmann, V., et al. Native-sized spider silk proteins synthesized in planta via intein-based multimerization. Transgenic Res. 22, 369-377 (2013).
- Lazaris, A., et al. Spider silk fibers spun from soluble recombinant silk produced in mammalian cells. Science. 295 (5554), 472-476 (2002).
- Xu, H. T., et al. Construct synthetic gene encoding artificial spider dragline silk protein and its expression in milk of transgenic mice. Anim Biotechnol. 18, 1-12 (2007).
- Ghimire, A., Xu, L., Liu, X. Q., Rainey, J. K. A recombinant chimeric spider pyriform-aciniform silk with highly tunable mechanical performance. Mater Today Bio. 26, 101073(2024).
- Wohlrab, S., et al. Cell adhesion and proliferation on RGD-modified recombinant spider silk proteins. Biomaterials. 33 (28), 6650-6659 (2012).
- Baker, L. A., et al. Nerve growth factor-binding engineered silk films promote neuronal attachment and neurite outgrowth. Adv Funct Mater. 32 (45), 2205178(2022).
- Kluge, J. A., Rabotyagova, O., Leisk, G. G., Kaplan, D. L. Spider silks and their applications. Trends Biotechnol. 26 (5), 244-251 (2008).
- Bakhshandeh, B., Nateghi, S. S., Gazani, M. M., Dehghani, Z., Mohammadzadeh, F. A review on advances in the applications of spider silk in biomedical issues. Int J Biol Macromol. 192, 258-271 (2021).
- Hijirida, D. H., et al. 13C NMR of Nephila clavipes major ampullate silk gland. Biophys J. 71 (6), 3442-3447 (1996).
- Vollrath, F., Knight, D. P. Liquid Crystalline Spinning of Spider Silk. Nature. 410 (6828), 541-548 (2001).
- Doblhofer, E., Heidebrecht, A., Scheibel, T. To spin or not to spin: spider silk fibers and more. Appl Microbiol Biotechnol. 99, 9361-9380 (2015).
- Koeppel, A., Holland, C. Progress and trends in artificial silk spinning: A systematic review. ACS Biomater Sci Eng. 3 (3), 226-237 (2017).
- Xu, L., Weatherbee-Martin, N., Liu, X. Q., Rainey, J. K. Recombinant silk fiber properties correlate to prefibrillar self-assembly. Small. 15 (12), 1805294(2019).
- Teulé, F., et al. A protocol for the production of recombinant spider silk-like proteins for artificial fiber spinning. Nat Protoc. 4 (3), 341-355 (2009).
- Yang, M., Kawamura, J., Zhu, Z., Yamauchi, K., Asakura, T. Development of silk-like materials based on Bombyx mori and Nephila clavipes dragline silk fibroins. Polymer. 50 (1), 117-124 (2009).
- Lewis, R. V., Hinman, M., Kothakota, S., Fournier, M. J. Expression and purification of a spider silk protein: a new strategy for producing repetitive proteins. Protein Express Purif. 7 (4), 400-406 (1996).
- Arcidiacono, S., et al. Aqueous processing and fiber spinning of recombinant spider silks. Macromolecules. 35 (4), 1262-1266 (2002).
- Weatherbee-Martin, N., et al. Identification of wet-spinning and post-spin stretching methods amenable to recombinant spider aciniform silk. Biomacromolecules. 17 (8), 2737-2746 (2016).
- Schmuck, B., et al. Strategies for making high-performance artificial spider silk fibers. Adv Funct Mater. 34 (35), 2305040(2024).
- Xu, L., et al. Structural and mechanical roles for the C-terminal nonrepetitive domain become apparent in recombinant spider aciniform silk. Biomacromolecules. 18, 3678-3686 (2017).
- Xu, L., Rainey, J. K., Meng, Q., Liu, X. Q. Recombinant minimalist spider wrapping silk proteins capable of native-like fiber formation. PLoS One. 7 (11), e50227(2012).
- Exler, J. H., Hümmerich, D., Scheibel, T. The amphiphilic properties of spider silks are important for spinning. Angew. Chem, Int Ed. 46 (19), 3559-3562 (2007).
- Teulé, F., Furin, W. A., Cooper, A. R., Duncan, J. R., Lewis, R. V. Modifications of spider silk sequences in an attempt to control the mechanical properties of the synthetic fibers. J Mater Sci. 42, 8974-8985 (2007).
- Khan, A. Q., et al. Innovations in spider silk-inspired artificial gel fibers: methods, properties, strengthening, functionality, and challenges. SusMat. 4 (3), e205(2024).
- Simmons, J. R., Xu, L., Rainey, J. K. Recombinant pyriform silk fiber mechanics are modulated by wet-spinning conditions. ACS Biomater Sci Eng. 5 (10), 4985-4993 (2019).
- Seidel, A., Liivak, O., Jelinski, L. W. Artificial spinning of spider silk. Macromolecules. 31 (19), 6733-6736 (1998).
- Venkatesan, H., et al. Artificial spider silk is smart like natural one: Having humidity-sensitive shape memory with superior recovery stress. Mater Chem Front. 3 (11), 2472-2482 (2019).
- Sommer, C., Scheibel, T. Suitable electrospinning approaches for recombinant spider silk proteins. Open Ceramics. 15, 100420(2023).
- Wang, M. Y., et al. Dry-spinning of artificial spider silk ribbons from regenerated natural spidroin in an organic medium. Macromol Rapid Commun. 44 (12), 2300024(2023).
- Chang, M., Zhang, X., Yang, Z. Artificial metal-ion doped spider silk fibers with excellent mechanical property and humidity-driven actuator property. Macromol Chem Phys. 226 (10), 2400502(2025).
- Kang, E., et al. Digitally tunable physicochemical coding of material composition and topography in continuous microfibres. Nat Mater. 10 (11), 877-883 (2011).
- Lin, B., et al. Overexpressed artificial spidroin based microneedle spinneret for 3D air spinning of hybrid spider silk. ACS Nano. 18 (37), 25778-25794 (2024).
- Gonska, N., et al. Structure-function relationship of artificial spider silk fibers produced by straining flow spinning. Biomacromolecules. 21 (6), 2116-2124 (2020).
- Blackledge, T. A., Cardullo, R. A., Hayashi, C. Y. Polarized light microscopy, variability in spider silk diameters, and the mechanical characterization of spider silk. Invert Biol. 124 (2), 165-173 (2005).
- Greco, G., et al. Properties of biomimetic artificial spider silk fibers tuned by postspin bath incubation. Molecules. 25 (14), 3244(2020).
- Andersson, M., et al. Biomimetic spinning of artificial spider silk from a chimeric minispidroin. Nat Chem Biol. 13 (3), 262-264 (2017).
- Tremblay, M. L., et al. Spider wrapping silk fibre architecture arising from its modular soluble protein precursor. Sci Rep. 5 (1), 11502(2015).
- Schmuck, B., et al. Impact of physio-chemical spinning conditions on the mechanical properties of biomimetic spider silk fibers. Commun Mater. 3 (1), 83(2022).
- Yue, X., et al. A novel route to prepare dry-spun silk fibers from CaCl2-formic acid solution. Mater Lett. 128, 175-178 (2014).
- Sulekha, A., et al. An engineered recombinant spider silk protein providing disulfide-locked control over self-assembly and fiber formation. Adv Funct Mater. 35 (15), 2420254(2025).
- Harvey, M., Ghimire, A., Cisek, R., Kreplak, L., Rainey, J. K., Tokarz, D. Polarization-resolved second harmonic generation microscopy of silk fibers is sensitive to β-sheet orientation and molecular structure. ACS Appl Bio Mater. 8 (6), 5229-5238 (2025).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Huan, Y., et al. Experimental study of the mechanical properties of a novel supramolecular polymer filament using a microtensile tester based on electronic balance. Exp Tech. 40, 737-742 (2014).
- Hu, X., Kaplan, D., Cebe, P. Determining beta-sheet crystallinity in fibrous proteins by thermal analysis and infrared spectroscopy. Macromolecules. 39 (18), 6161-6170 (2006).
- Breslauer, D. N. Current progress on scale-up and commercialization of microbially-produced silk. Adv Funct Mater. 35 (15), 2408386(2025).
- Branković, M., et al. Review of spider silk applications in biomedical and tissue engineering. Biomimetics. 9 (3), 169(2024).
- Pan, L., et al. A supertough electro-tendon based on spider silk composites. Nat Commun. 11 (1), 1332(2020).
- Jin, H. J., Kaplan, D. L. Mechanism of silk processing in insects and spiders. Nature. 424 (6952), 1057-1061 (2003).
- Malay, A. D., et al. Spider silk self-assembly via modular liquid-liquid phase separation and nanofibrillation. Sci Adv. 6 (45), eabb6030(2020).
- Asakura, T., Naito, A. Structure of spider silk studied with solid-state NMR. Adv Funct Mater. 35 (15), 2407544(2024).
- Yarger, J. L., Cherry, B. R., Van Der Vaart, A. Uncovering the structure-function relationship in spider silk. Nat Rev Mater. 3 (3), 1-11 (2018).
- Lefèvre, T., Paquet-Mercier, F., Rioux-Dubé, J. F., Pézolet, M. Structure of silk by Raman spectromicroscopy: from the spinning glands to the fibers. Biopolymers. 97 (6), 322-336 (2012).
- Schiller, T., Scheibel, T. Bioinspired and biomimetic protein-based fibers and their applications. Commun Mater. 5 (1), 56(2024).
Przedruki i uprawnienia
Sprostowanie
Formal Correction: Erratum: Optimizing and Evaluating Hand-drawing and Wet-spinning for Recombinant Spider Silk Fiber Production
Posted by JoVE Editors on 9/08/2025. Citeable Link.
This corrects the article 10.3791/68714
Ten artykuł został opublikowany
Film wkrótce dostępny