Tutaj opisujemy prostą i szybką procedurę wykrywania DNA z patogenów pszczół, takich jak Lotmaria passim i Nosema ceranae, przy użyciu lizy komórek gotowej do amplifikacji, amplifikacji polimerazy rekombinazy i testów CRISPR/Cas12a.
Artykuł metodologiczny
Wykrywanie DNA pasożytów trypanosomatydów i Nosema ceranae na miejscu poprzez alkaliczną lizę sprzężoną z systemem RPA/CRISPR/Cas12a
W tym artykule
Informacja o sprostowaniu
Important: There has been an erratum issued for this article. View Erratum Notice
Podsumowanie
Streszczenie
Wczesne wykrywanie mikroskopijnych patogenów na miejscu ma zasadnicze znaczenie dla skutecznego zarządzania koloniami pszczół miodnych i ich zdrowia. Obecnie złotym standardem w molekularnym wykrywaniu patogenów pszczół jest qPCR lub RT-qPCR. W tym miejscu przedstawiamy szybką, czułą i opłacalną alternatywę do wykrywania patogenów DNA do zastosowania w terenie. Metoda ta łączy bezpośrednią, gotową do amplifikacji lizę komórek odwłoka pszczoły robotnicy z amplifikacją polimerazy rekombinazy (RPA), trans-rozszczepieniem sond reporterowych za pośrednictwem CRISPR/Cas12a oraz wykrywaniem za pomocą testów przepływu bocznego. Z powodzeniem przeprowadziliśmy walidację tego protokołu u pszczół miodnych zakażonych Nosema ceranae i Lotmaria passim. Opisany protokół może być wykonywany przy użyciu prostego bloku grzewczego lub w temperaturze pokojowej i może mieć zastosowanie do dowolnego patogenu opartego na DNA lub mikrobioty jelitowej pszczoły miodnej. Cały proces trwa około 180 minut i osiąga czułość porównywalną z qPCR, wykrywając już 96 kopii pasożyta/μL. Podsumowując, podejście to stanowi obiecujące narzędzie do niezawodnej i szybkiej diagnostyki terenowej zakażeń pszczołami miodnymi bez konieczności stosowania skomplikowanego sprzętu laboratoryjnego, dzięki czemu idealnie nadaje się do nadzoru kolonii na miejscu.
Wprowadzenie
Pszczoły są kluczowymi gatunkami biorącymi udział w zapylaniu roślin i są niezbędne dla rozmnażania roślin, różnorodności biologicznej i bezpieczeństwa żywnościowego1. Ich usługi zapylania przynoszą korzyści szerokiej gamie upraw o wysokiej wartości ekonomicznej, przynosząc szacunkowo 235–577 miliardów dolarów rocznie światowemu rolnictwu. Jednak ogólnoświatowy spadek populacji pszczół wzbudził poważne obawy ze względu na jego potencjalne konsekwencje dla stabilności ekologicznej i wydajności upraw, które doprowadziły do szacowanych strat w wysokości 4,8–16,3 miliarda dolarów w mocno zadłużonychkrajach biednych. Masowe zanikanie pszczół wiąże się z wieloma interakcjami między kilkoma czynnikami: stosowaniem pestycydów, utratą siedlisk, zmianami klimatycznymi i infekcjami patogenami, w tym wirusami, bakteriami, grzybami i protistami.
Wśród tych mikroorganizmów Nosema spp., grzyb mikrosporydyczny, który zaburza funkcjonowanie jelit, oraz pasożyty trypanosomatydowe – zwłaszcza Lotmaria passim – są szeroko rozpowszechnione w koloniach pszczół miodnych na całym świecie 3,4. Ostatnie odkrycia pokazują, że infekcje L. passim, nawet jeśli przebiegają bezobjawowo, mogą obniżać poziom genów związanych z odpornością i zmieniać metabolizm energetyczny pszczół miodnych, potencjalnie zagrażając ich odporności na dodatkowy stres5. Podobnie infekcje Nosema spp. skracają długowieczność pszczół, hamują funkcje odpornościowe i zakłócają dynamikę żerowania kolonii, prowadząc do zmniejszenia produkcji miodu i zwiększonej śmiertelności kolonii. Co więcej, koinfekcje obejmujące zarówno Nosema spp., jak i trypanosomatydy mogą mieć działanie synergistyczne, nasilając stres fizjologiczny i osłabiając mechanizmy obronne gospodarza. Odkrycia te podkreślają znaczenie jednoczesnego monitorowania wielu patogenów.
Przeciwdziałanie tym zagrożeniom wymaga opracowania szybkich i dokładnych narzędzi diagnostycznych, które z kolei zależą od głębszego zrozumienia biologii, transmisji i strategii przetrwania tych patogenów6. Wykrywanie tych patogenów za pomocą tradycyjnych metod, w tym mikroskopii świetlnej i amplifikacji molekularnej, pozostaje niezawodne, ale napotyka pewne ograniczenia. Przykłady metod qPCR, RTqPCR (wymaga cyklicznych zmian w różnych temperaturach) i izotermicznych, takich jak amplifikacja za pośrednictwem pętli (LAMP, działa w stałej temperaturze), zostały opracowane dla pasożytów grzybowych, wirusowych, bakteryjnych lub pierwotniaków 6,7,8,9,10 . Wdrożenie tych metod wymaga jednak specjalistycznego sprzętu, wraz z przeszkolonym personelem i dobrze wyposażonym zapleczem laboratoryjnym, co ogranicza ich praktyczność w zastosowaniach terenowych i monitorowaniu na dużą skalę. Aby rozwiązać te problemy, opracowano nowe techniki molekularne — amplifikację celów DNA za pomocą amplifikacji polimerazy rekombinazy (RPA) wraz z detekcją opartą na CRISPR/Cas12a — szybkie, specyficzne i czułe podejście. Metoda działa izotermicznie i daje wyniki wizualne, które sprawiają, że nadaje się do diagnostyki na miejscu lub w miejscu opieki nad pacjentem, zgodnie z Shao i wsp.11 oraz Xiao i wsp.12.
RPA to prosta i szybka metoda amplifikacji DNA, która działa w stałej temperaturze, zwykle w zakresie od 37 °C do 42 °C. Opiera się na enzymach rekombinazy, jednoniciowych białkach wiążących DNA i polimerazie wypierającej nić w celu amplifikacji DNA bez konieczności cykli termicznych. RPA nadaje się szczególnie do testów na miejscu i diagnostyki terenowej ze względu na swoją szybkość, minimalne wymagania sprzętowe i kompatybilność z surowymi próbkami 11,12,13. Aby zwiększyć specyficzność, produkt RPA można wykryć za pomocą endonukleazy Cas12a, która również działa w tym samym zakresie temperatur. Cas12a wiąże się z przewodnikiem RNA CRISPR (gRNA), krótkim RNA, który prowadzi Cas12a w kierunku amplifikowanej sekwencji docelowej i wiąże się z komplementarną sekwencją w DNA. Po związaniu Cas12a zostaje aktywowany i wykazuje aktywność rozszczepienia pobocznego (trans), w szczególności wobec jednoniciowego DNA (ssDNA). Umożliwia to wykorzystanie cząsteczek reporterowych ssDNA znakowanych fluoroforami lub biotyną, które mogą generować sygnały fluorescencyjne lub wizualne, w tym odczyty pasków przepływu bocznego. Razem RPA i CRISPR/Cas12a tworzą potężną platformę diagnostyki molekularnej, która jest szybka, czuła i nadaje się do stosowania w terenie lub w warunkach ograniczonych zasobów12.
Aby jeszcze bardziej zwiększyć praktyczność tego podejścia do diagnostyki molekularnej, wdrożyliśmy również uproszczoną metodę lizy komórek gotowych do amplifikacji (ARCL) opartą na lizie wodorotlenku sodu (NaOH) z odwłoków pszczół11,14, eliminując potrzebę intensywnego przygotowywania próbek i odczynników laboratoryjnych. Ta technika szybkiej ekstrakcji kwasów nukleinowych, w połączeniu ze wzmocnieniem izotermicznym i systemem detekcji CRISPR/Cas12a, umożliwia naprawdę możliwy do wdrożenia przepływ pracy w terenie, który znacznie skraca czas i koszty. Co ważne, test zachowuje jakość, wysoką czułość i swoistość porównywalną z qPCR, obecnym złotym standardem wykrywania patogenów u pszczół.
W tym przypadku z powodzeniem zastosowaliśmy tę metodologię do wykrywania Nosema ceranae i L. passim u pszczół miodnych (ryc. 1). Porównaliśmy tę metodę ze standardowymi testami qPCR i zwalidowaliśmy jej skuteczność przy użyciu naturalnie zakażonych próbek. Nasze odkrycia pokazują, że podejście to jest praktyczną i wiarygodną alternatywą dla terenowego monitorowania zdrowia pszczół miodnych, z dużym potencjałem w zakresie nadzoru na dużą skalę i działań wczesnej interwencji w pszczelarstwie.
Protokół
Wszystkie procedury zostały przeprowadzone zgodnie z instytucjonalnymi i krajowymi wytycznymi dotyczącymi pracy z bezkręgowcami i przy użyciu najmniejszej liczby pszczół potrzebnych do weryfikacji koncepcji. Pszczoły miodne transportowano w specjalistycznych skrzynkach ulowych z wentylacją i odpowiednią temperaturą i przechowywano w laboratorium w temperaturze -20 °C do czasu analizy.
1. Liza komórek alkalicznych HotSHOT
- Przygotowanie roztworu
- HotSHOT Lysis - preparat buforowy 100 ml
- Odważyć 99,993 mg NaOH i 8,32 mg EDTA, dodać 90 ml wody destylowanej i wymieszać. Dostosuj pH do 12, a objętość do 100 ml; autoklaw.
- 40 mM Tris-HCl, pH 5
- Do 484,544 mg Tris dodać 90 ml wody dejonizowanej, dostosować pH do 5 za pomocą HCl i doprowadzić objętość do 100 ml.
- HotSHOT Lysis - preparat buforowy 100 ml
- Protokół lizy
- Wypreparuj brzuch pszczoły za pomocą sterylnego skalpela i przenieś wypreparowaną tkankę do probówki mikrowirówkowej o pojemności 1,5 ml.
UWAGA: Do wykrywania patogenów użyto tylko brzuchów, a pozostałe części ciała wyrzucono. - Dodaj 400 μl buforu HotSHOT, zmaceruj tkankę za pomocą jednorazowego tłuczka i dalej homogenizuj ją przez wirowanie.
UWAGA: Tłuczek może być ponownie użyty, jeśli zostanie odkażony, poprzez inkubację materiału przez noc w 0,1 N roztworze NaOH, a następnie przepłukanie podwójnie dejonizowaną wodą, po którym następuje jeden cykl autoklawu, a następnie suszenie w inkubatorze. - Inkubować homogenat w temperaturze 95 °C przez 10 minut w celu lizy komórek. Po inkubacji natychmiast umieść probówkę na lodzie do ostygnięcia.
- Aby zneutralizować reakcję, dodać równą objętość (400 μL) 40 mM Tris-HCl, co daje końcowe stężenie 20 mM Tris-HCl w roztworze.
UWAGA: Ta procedura lizy jest zilustrowana na rysunku 2.
- Wypreparuj brzuch pszczoły za pomocą sterylnego skalpela i przenieś wypreparowaną tkankę do probówki mikrowirówkowej o pojemności 1,5 ml.
2. Wzmocnienie izotermiczne przez RPA
UWAGA: Projekt podkładów został wykonany za pomocą narzędzia programowego eprimer3 (https://www.bioinformatics.nl/cgi-bin/emboss/eprimer3), chociaż można było użyć innych narzędzi do projektowania podkładów.
- Przygotowanie roztworów roboczych
- Rozwiązania podkładowe RPA
- Przygotować roztwory podstawowe o stężeniu 100 μM zgodnie z instrukcjami producenta. Na przykład, rozpuścić 10,0 nmol liofilizowanego startera w 100 μl wody uzdatnionej pirowęglanem dietylu (DEPC) i przechowywać w temperaturze -20 °C. Przygotować roztwory robocze o stężeniu 10 μM, rozcieńczając podstawowy stosunek 1:10; Zmieszać 90 μl wody uzdatnionej DEPC z 10 μl 100 μM roztworu podstawowego w probówce o pojemności 0,2 ml. Roztwory te należy przechowywać w temperaturze -20 °C.
- Rozwiązania podkładowe RPA
- Protokół RPA
- Przygotuj mieszankę wzorcową zgodnie z liczbą reakcji, które mają być przeprowadzone. Należy uwzględnić zarówno kontrolę ujemną (zastąpienie ARCL wodą uzdatnioną metodą DEPC), jak i kontrolę pozytywną z wykorzystaniem DNA patogenu (w tym przykładzie DNA z hodowli komórkowej L. passim promastigotes i pszczół z dodatnim wynikiem na obecność Nosema spp. (zarodniki wykryte pod mikroskopem)) (Tabela 1).
UWAGA: Zawsze przygotowuj główną mieszankę RPA na lodzie i używaj końcówek filtrujących, aby uniknąć zanieczyszczenia. - Przenieść podwielokrotność 46,5 μl mieszanki wzorcowej do każdej probówki o pojemności 0,2 ml.
- Dodać octan magnezu (MgOAc) i matrycę DNA do nasadek probówek, postępując zgodnie z objętościami określonymi w tabeli 2. Krótko odwirować probówki, aby wymieszać zawartość i zainicjować reakcję RPA.
UWAGA: Aby uzyskać lepszą odtwarzalność, przed użyciem krótko zwiruj i odwiruj wszystkie składniki. W celu zatwierdzenia reakcji każda partia musi zawierać kontrole dodatnie i ujemne. - Inkubować próbki w temperaturze 39 °C przez 40 minut w celu przeprowadzenia reakcji amplifikacji RPA.
UWAGA: Po inkubacji reakcje RPA mogą być bezpośrednio wykorzystane do dalszego wykrywania (np. testy oparte na CRISPR/Cas12a), opisane w sekcji 3.
- Przygotuj mieszankę wzorcową zgodnie z liczbą reakcji, które mają być przeprowadzone. Należy uwzględnić zarówno kontrolę ujemną (zastąpienie ARCL wodą uzdatnioną metodą DEPC), jak i kontrolę pozytywną z wykorzystaniem DNA patogenu (w tym przykładzie DNA z hodowli komórkowej L. passim promastigotes i pszczół z dodatnim wynikiem na obecność Nosema spp. (zarodniki wykryte pod mikroskopem)) (Tabela 1).
3. Wykrywanie DNA patogenów za pomocą CRISPR/Cas12a
UWAGA: Wykrywanie po RPA może być wykonywane na różne sposoby. W tym protokole szczegółowo omówimy detekcję za pomocą fluorescencji (FAM-TTTTTTTT-MGB) i pasków immunochromatograficznych (Biotin-TTTTTTTT-FITC).
Wykonuj wszystkie procedury w czystym, wolnym od DNA obszarze (np. w dedykowanej przestrzeni do PCR). Wyczyść powierzchnie robocze i pipety 0,5% wybielaczem, a następnie 70% etanolem. Zawsze używaj końcówek filtra i noś rękawice. Z DNA lub amplifikowanym materiałem należy obchodzić się w miejscu oddzielonym od strefy przygotowania odczynnika. Rozmrozić wszystkie odczynniki na lodzie i utrzymywać zimne warunki przez cały czas przygotowania.
- Przygotowanie roztworów roboczych
- Wirus crRNA
UWAGA: Projektowanie crRNA Nosema ceranae i Lotmaria passim przeprowadzono przy użyciu narzędzia do projektowania RNA/DNA (EuPaGDT) przewodnika Eukaryotic Pathogen CRISPR (EuPaGDT) http://grna.ctegd.uga.edu/. Do niestandardowego projektowania crRNA można użyć innego oprogramowania, takiego jak GPP sgRNA Designer (https://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design) lub CHOPCHOP (https://chopchop.cbu.uib.no/).- Aby przygotować roztwór podstawowy 100 μM crRNA, rozpuść 10 nmol każdego liofilizowanego crRNA w 100 μl wody uzdatnionej DEPC i przechowuj w temperaturze -20 °C. Aby przygotować roztwór roboczy 1 μM, należy przeprowadzić rozcieńczenie w stosunku 1:100, mieszając 1 μl roztworu podstawowego o stężeniu 100 μM z 99 μl wody uzdatnionej metodą DEPC w probówce o pojemności 0,2 ml (ryc. 3).
UWAGA: Oba roztwory należy przechowywać w temperaturze -20 °C.
- Aby przygotować roztwór podstawowy 100 μM crRNA, rozpuść 10 nmol każdego liofilizowanego crRNA w 100 μl wody uzdatnionej DEPC i przechowuj w temperaturze -20 °C. Aby przygotować roztwór roboczy 1 μM, należy przeprowadzić rozcieńczenie w stosunku 1:100, mieszając 1 μl roztworu podstawowego o stężeniu 100 μM z 99 μl wody uzdatnionej metodą DEPC w probówce o pojemności 0,2 ml (ryc. 3).
- Przygotowanie Cas12a
UWAGA: Cas12a może być dostarczany w stężeniach 1 μM lub 100 μM.- W przypadku stosowania w temperaturze 100 μM, przed użyciem rozcieńczyć go do roztworu roboczego 1 μM, mieszając 1 μl enzymu Cas12a o stężeniu 100 μM z 99 μl rozcieńczalnika znajdującego się w zestawie (rozcieńczenie 1:100, rysunek 3).
UWAGA: Stężenie enzymu Cas12a można regulować w zależności od typu próbki. Ponieważ enzym jest przechowywany w rozcieńczalniku na bazie glicerolu, ważne jest, aby upewnić się, że objętość dodanego enzymu nie przekracza 20% całkowitej objętości reakcji, aby uniknąć potencjalnych skutków hamujących.
- W przypadku stosowania w temperaturze 100 μM, przed użyciem rozcieńczyć go do roztworu roboczego 1 μM, mieszając 1 μl enzymu Cas12a o stężeniu 100 μM z 99 μl rozcieńczalnika znajdującego się w zestawie (rozcieńczenie 1:100, rysunek 3).
- Przygotowanie roztworów sond FAM i Biotyny
UWAGA: Sonda FAM jest dostarczana w postaci liofilizowanej.- Aby przygotować roztwór podstawowy 100 μM, należy ponownie zawiesić sondę, dodając 1 μl wody uzdatnionej DEPC na 1 nmol sondy (np. dla 102 nmol dodaj 102 μl wody uzdatnionej DEPC). Przechowywać roztwór podstawowy w temperaturze -20 °C. W celu użycia w mastermixie detekcji należy rozcieńczyć materiał podstawowy w stosunku 1:10 (90 μl wody uzdatnionej DEPC z 10 μl 100 μM FAM), aby uzyskać roztwór roboczy o stężeniu 10 μM (rysunek 3).
- Wirus crRNA
- Protokół detekcji CRISPR/Cas12a
- Detekcja oparta na fluorescencji (sonda FAM)
- W probówce do mikrowirówek o pojemności 1,5 ml przygotować mieszaninę reakcyjną zgodnie z opisem w tabeli 3, z wyłączeniem amplikonów.
- Dokładnie wymieszaj za pomocą wiru i rozprowadź mieszaninę w probówkach PCR.
- Następnie dodaj 4 μl amplikonu RPA (opisanego w kroku 2.2) do każdej probówki.
- Inkubować reakcje w temperaturze 37 °C przez 120 minut w termocyklerze z możliwością odczytu fluorescencji, rejestrując fluorescencję co minutę.
- Opcjonalnie: Pod koniec inkubacji przenieść reakcje do probówek o pojemności 0,2 ml i przeprowadzić wizualizację za pomocą systemu dokumentacji żelu do obrazowania.
- Wykrywanie za pomocą sondy biotyny w teście przepływu bocznego
- W probówce do mikrowirówki o pojemności 1,5 ml dodać składniki przedstawione w tabeli 4.
- Przygotować mieszaninę zgodnie z opisem w sekcji 3.2.1, wymieszać i rozprowadzić na płytce PCR. Na koniec dodaj 4 μl amplikonu do odpowiednich studzienek.
- Inkubować przez 120 minut w termocyklerze (bez odczytu fluorescencji) lub bloku termicznym w temperaturze 37 °C.
- Przenieś próbki do probówek o pojemności 0,2 ml i wykonaj detekcję za pomocą pasków immunologicznych. W tym celu należy dodać 50 μl bieżącego buforu i 10 μl mieszaniny reakcyjnej do każdej probówki i włożyć pasek bezpośrednio do probówki. Inkubować przez 15 minut w temperaturze pokojowej i odczytać wyniki po 10 minutach zanurzenia, jak pokazano na rysunku 3.
- Detekcja oparta na fluorescencji (sonda FAM)
Wyniki
W tym miejscu opisaliśmy szybką metodę na miejscu wykorzystującą alkaliczną lizę odwłoków pszczół robotnic w połączeniu z amplifikacją RPA i detekcją opartą na CRISPR/Cas12a za pomocą fluorescencji i/lub przepływu bocznego. Schemat pełnego przepływu pracy przedstawiono na rysunku 3, a schemat alkalicznej lizy odwłoka pszczół robotnic za pomocą HotSHOT przedstawiono na rysunku 4. Reprezentatywne wyniki testu RPA/CRISPR/Cas12a przedstawiono na rysunku 5. Aby wykryć L. passim i N. ceranae, użyto termocyklera do ilościowego określenia względnych jednostek fluorescencji (RFU) za pomocą sondy znakowanej FAM (Figura 4A). Reakcje RPA przeprowadzono przy użyciu 10 ng DNA, a dane fluorescencji przedstawiono na wykresie (ryc. 4B). W końcowym etapie testu próbki w stożkowych probówkach sfotografowano za pomocą żelowego systemu obrazowania (ryc. 4C). W celu wykrycia za pomocą sondy znakowanej biotyną, próbki inkubowano w termobloku (ryc. 4A); roztwór detekcyjne został przygotowany zgodnie z instrukcjami producenta i nałożony na boczną paskę przepływową (rysunek 4B, C). Metoda ta doprowadziła do skutecznego wykrycia obu patogenów pszczół miodnych.
Aby określić skuteczność reakcji RPA, porównaliśmy tę metodę ze standardowym qPCR przy użyciu DNA oczyszczonego z pszczół miodnych przy użyciu przywołanego zestawu (patrz Tabela Materiałów). W sumie 32 próbki pszczół przetestowano za pomocą starterów ukierunkowanych na gen β-tubuliny L. passim dla obu metod, a następnie wykryto za pomocą trans-rozszczepienia CRISPR/Cas12a sond fluorescencyjnych. Warto zauważyć, że w rezultacie 12 próbek okazało się dodatnich za pomocą qPCR, podczas gdy RPA/CRISPR/Cas12a wykryło L. passim w 16 próbkach (Figura 5A). Wskazuje to, że wydajność reakcji RPA jest bardziej czuła niż PCR, jako złoty standard metody amplifikacji DNA.
Podobnie określiliśmy granicę wykrywalności (LOD) dla qPCR i RPA sprzężonych z detekcją CRISPR/Cas12a dla DNA L. passim jako modelu patogenu przy użyciu seryjnych rozcieńczeń DNA L. passim w zakresie od 66 ng do 6 fg. qPCR wykrył zaledwie 6 pg, co odpowiada około 96 pasożytom (Figura 5B). Dla porównania, LOD dla RPA odpowiadał 96 pasożytom (Rysunek 5C, D).
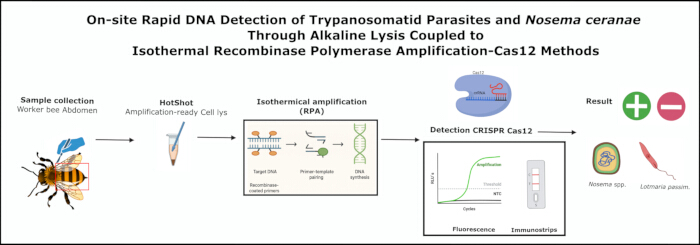
Rysunek 1: Ogólny przebieg procesu lizy alkalicznej HotSHOT w połączeniu z amplifikacją RPA i metodami wykrywania Cas12 u pszczół miodnych. Skróty: RPA = amplifikacja polimerazy rekombinazy; CRISPR = Clustered Regularly Interspaced Short Palindromic Repeats; Cas = białko związane z CRISPR. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
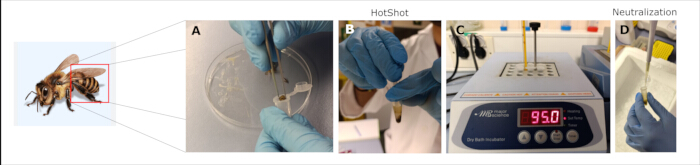
Rysunek 2: Przetwarzanie lizy komórek gotowych do amplifikacji za pomocą bufora HotSHOT. (A) Odciąć odwłok pszczoły miodnej skalpelem i umieścić go w probówce wirówkowej; (B) za pomocą tłuczka wykonać macerację z użyciem 400 μl HotShot; C) inkubować na termobloku w temperaturze 95 °C przez 10 minut; i (D) zneutralizować 400 μl 40 mM Tris-HCl. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
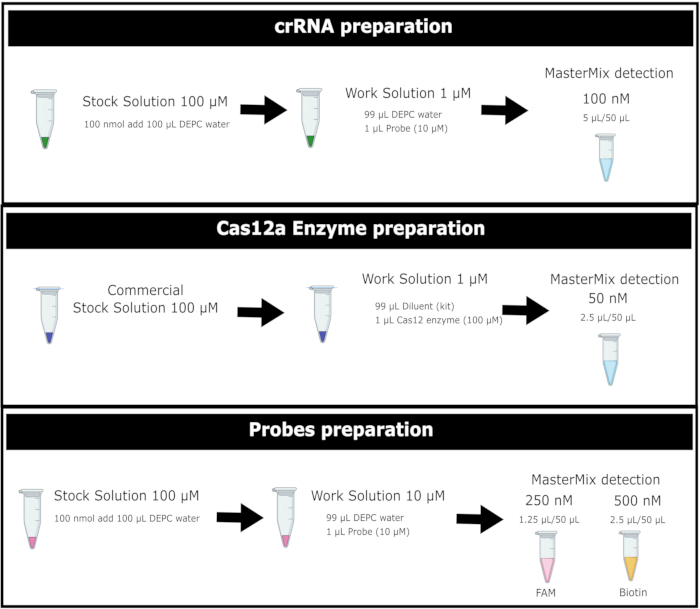
Rysunek 3: Ogólny przebieg pracy przy przygotowywaniu enzymu Cas12a oraz roztworów sond reporterowych znakowanych FAM i biotyną. Skróty: DEPC-water = woda uzdatniona pirowęglanem dietylu; crRNA = RNA CRISPR; Cas12 = rodzaj białka związanego z CRISPR. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
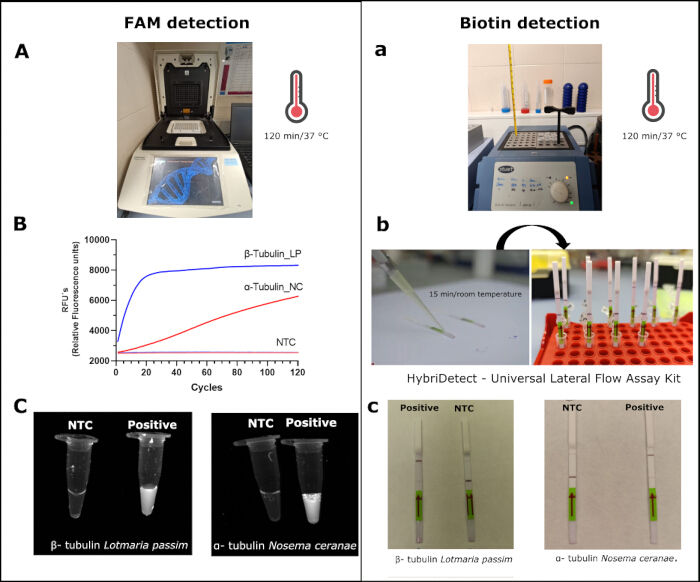
Rycina 4: Wykrywanie Lotmaria passim i Nosema ceranae metodą CRISPR/Cas12a za pomocą sond FAM i biotyny. W celu wykrycia FAM, (A) próbki są inkubowane w termocyklerze; (B) względne jednostki fluorescencji (RFU) L. passim i N. ceranae; (C) wizualizacja tych samych próbek w systemie dokumentacji fotograficznej. W testach biotyny: a) próbkę inkubowaną w bloku termicznym; b) próbki zostały dodane do paska immunologicznego z zestawu (zob . tabela materiałów); c) wyniki po inkubacji. Skróty: LP = Lotmaria passim; NC = Nosema ceranae; NTC = brak kontroli szablonu; RFU: względne jednostki fluorescencji Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
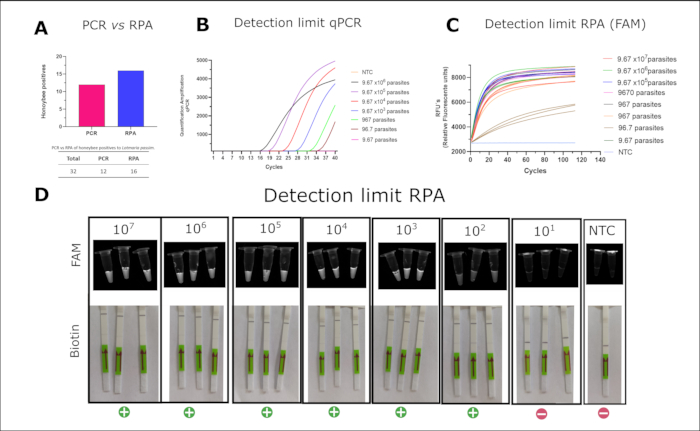
Rycina 5: Porównanie qPCR i RPA oraz granica wykrywalności Lotmaria passim. (A) Wykrywanie L. passim w próbkach pszczół miodnych przy użyciu konwencjonalnych qPCR i RPA. (B) granica wykrywalności qPCR L. passim przy użyciu SsoFast EvaGreen. (C) Granica wykrywalności L. passim przy użyciu CRISPR/Cas12a z sondą znakowaną FAM; (D) wizualizacja tej samej detekcji CRISPR/Cas12a (z C) w systemie obrazowania żelowego (górny rząd) i odpowiadające im wyniki przepływu bocznego przy użyciu CRISPR/Cas12a z sondą znakowaną biotyną (dolny rząd). Skróty: RPA = amplifikacja polimerazy rekombinazy; qPCR = ilościowa reakcja łańcuchowa polimerazy. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
| Odczynnik | Stężenie końcowe | 10 μL | 50 μL |
| 2x Bufor reakcyjny | 1x | 5 μL | 25 μL |
| dNTP (10 mM) | 1,8 mln | 1,8 μl | 9 μl |
| 10x Podstawowy E-Mix | 1x | 1 μL | 5 μL |
| Podkład do przodu (10 μM) | 480 nM | 0,5 μL | 2,4 μl |
| Podkład odwrotny (10 μM) | 480 nM | 0,5 μL | 2,4 μl |
| 20x Rdzeń Mieszanka Reakcyjna | 1x | 0,5 μL | 2,5 μl |
| DEPC Woda | -- | 0,7 μl | 3,7 μl |
Tabela 1: Składniki Mastermix dla RPA o końcowych objętościach 10 μl i 50 μl oraz odpowiadających im stężeniach roboczych:
| Odczynnik | Końcowe stężenie | 10 μl reakcji | 50 μl reakcji |
| 280 mM MgOAc | 1,8 mln | 0,5 μL | 2,5 μl |
| DNA | 10-0,1 ng | 1 μL | 2 μl |
Tabela 2: Objętość odczynników, które należy dodać na próbkę w reakcji RPA
| Odczynnik | [Zapasy] | [Finał] | 1x (μL) |
| Enzym Cas12a | 1 μM | 50 nM | 2.5 |
| cRNA (wirus cRNA) | 1 μM | 100 nM | 5 |
| Sonda FAM | 10 μM | 250 nM | 1.25 |
| Bufor nowego europejskiego Bauzu 10x | 10x | 1x | 5 |
| Wzmacniacz RPA | - | - | 4 |
| Woda | - | - | 32.25 |
| Łączny | 50 |
Tabela 3: Stężenia odczynników do mieszanego wykrywania FAM metodą CRISPR/Cas 12a.
| Odczynnik | [Zapasy] | [Finał] | 1x (μL) |
| Enzym Cas12a | 1 μM | 50 nM | 2.5 |
| cRNA (wirus cRNA) | 1 μM | 100 nM | 5 |
| Sonda biotyny | 10 μM | 500 nM | 2.5 |
| Bufor nowego europejskiego Bauzu 10x | 10-krotny wzrost | 1X | 5 |
| Wzmacniacz RPA | - | - | 4 |
| Woda | - | - | 31 |
| Łączny | 50 |
Tabela 4: Stężenia odczynników do uzyskania mieszaniny detekcji biotyny metodą CRISPR/Cas 12a.
Dyskusja
W ramach tego badania opracowaliśmy i zwalidowaliśmy praktyczny protokół diagnostyki molekularnej do wykrywania patogenów pszczół miodnych. Przepływ pracy integruje lizę komórek gotową do amplifikacji, amplifikację izotermiczną za pomocą RPA oraz wysoce specyficzną detekcję za pomocą CRISPR/Cas12a. Wśród ocenianych metod ekstrakcji chemicznej DNA, protokół lizy alkalicznej HotSHOT oferuje znaczące korzyści pod względem kosztów, szybkości i prostoty. Wydajnie wytwarza lizaty gotowe do amplifikacji bez konieczności stosowania komercyjnych zestawów. Metoda ta okazała się niezawodna w różnych zastosowaniach, w tym w wykrywaniu patogenów u pszczół miodnych 14,15,16,17,18. Warunki alkaliczne o wysokiej temperaturze przerywają błony komórkowe i wiązania wodorowe między niciami DNA, uwalniając jednoniciowe DNA nadające się do dalszej amplifikacji. Chociaż potencjalne ograniczenia obejmują obecność inhibitorów PCR lub nieoptymalną neutralizację, wykazano, że liza alkaliczna działa skutecznie w różnych organizmach, takich jak archeony19, bakterie20 i grzyby14, i jest kompatybilna z metodami PCR, qPCR i izotermicznymi, takimi jak LAMP21 i RPA12.
W naszych rękach system RPA/CRISPR/Cas12a wykazał się dużą swoistością i zadowalającą czułością. Zastosowanie crRNA ukierunkowanych na konserwatywne regiony w każdym patogenie pozwoliło na dokładną identyfikację bez reaktywności krzyżowej z DNA gospodarza lub niepowiązanymi mikroorganizmami. Poprzednie zastosowania tego systemu u pszczół miodnych osiągnęły granice wykrywalności wynoszące około 6,5 × 10² i 6,2 × 101 kopii/μl dla wirusa zdeformowanych skrzydeł typu A i B 8,12. Jednak testy te nie zostały zoptymalizowane pod kątem warunków terenowych z szybką ekstrakcją RNA i/lub DNA. W tej pracy dostosowaliśmy metodę specjalnie do patogenów DNA - N. ceranae i L. passim - umożliwiając wykrywanie zgodne z polem.
Nasze wyniki pokazują, że RPA/CRISPR/Cas12a przewyższyło konwencjonalny PCR w identyfikacji próbek dodatnich (16 vs. 12), prawdopodobnie ze względu na lepszy sygnał wykorzystujący aktywność cięcia pobocznego CRISPR/Cas12a, która pozostaje skuteczna nawet w surowych lizatach. Poprawę czułości w porównaniu z metodami opartymi na PCR odnotowano wcześniej w różnych modelach patogenów, takich jak Yersinia enterocolitica22, Diaporthe aspalathi23 lub Vibrio vulnificus24. Ponadto analiza ilościowa wykazała równoważną granicę wykrywalności RPA/CRISPR/Cas12a i qPCR w warunkach laboratoryjnych (~96 kopii pasożytów/μL). Oznacza to dobrą wydajność metody o swoistości porównywalnej do TaqMan qPCR, ze względu na dodatkowe rozpoznawanie sekwencji zapewniane przez crRNA. Co więcej, test wymaga jedynie minimalnego sprzętu, nie jest zależny od termocyklera ani czytnika fluorescencji i może być wizualizowany za pomocą bocznych pasków przepływowych, jak wcześniej opracowano dla innych patogenów25,26. Upraszcza to interpretację i sprawia, że test jest bardzo przystępny dla techników terenowych i pszczelarzy.
Obecny protokół daje solidne wyniki, ale możliwe są dalsze ulepszenia. Dostosowanie testu do innych patogenów pszczół opartych na DNA wymagałoby jedynie przeprojektowania starterów RPA i crRNA. W przypadku wirusów RNA protokół można rozszerzyć o etap odwrotnej transkrypcji (RT-RPA), jak wykazano wcześniej dla kilku wirusowych chorób zakaźnych 26,27,28, w tym DWV-A i DWV-B u pszczół miodnych 15. Dodatkowo, całkowity czas testu - obecnie około 180 minut - może zostać prawdopodobnie skrócony dzięki optymalizacji protokołu w celu skrócenia czasu każdego kroku. Inną alternatywą byłby jednogarnkowy RPA/CRISPR/Cas12a, który łączy wszystkie odczynniki RPA/CRISPR/Cas12a w jednej reakcji. Ta metodologia typu "wszystko w jednym" została z powodzeniem zastosowana do wykrywania szerokiej gamy patogenów wirusowych i bakteryjnych 25,26,29. Poza tym i pomimo tego, że sondy ssDNA zostały rozszerzone i spopularyzowane do wykrywania Cas12a, niektóre badania wykazały zdolność Cas12a sond dwuniciowego DNA (dsDNA) z trans-rozszczepieniem, które mogą być przydatne do testowania ze względu na stabilność dsDNA30. Doprowadziłoby to do uzyskania wyniku poniżej 30 minut, co jeszcze bardziej zwiększyłoby możliwości zastosowania w terenie. Liofilizacja odczynników RPA i CRISPR poprawiłaby również stabilność odczynników i wyeliminowałaby potrzebę stosowania łańcucha chłodniczego, zwiększając przydatność w środowiskach odległych lub o niskich zasobach. Pomyślne działanie RPA/CRISPR/Cas12a przy użyciu liofilizowanych odczynników zostało pomyślnie określone w wykrywaniu Actinobacillus pleuropneumonia31 i wirusów zakaźnych układu oddechowego28,32, w tym SARS-Cov226.
Podsumowując, badanie to przedstawia w pełni terenową, opłacalną i przenośną platformę diagnostyki molekularnej do wykrywania patogenów pszczół miodnych. Ta metodologia, w obecnej formie, trwałaby około 180 minut, ale jej całkowity czas mógłby być jeszcze poddany dalszym ulepszeniom. Chociaż skupiliśmy się na L. passim i Nosema spp. jako celach potwierdzających słuszność koncepcji, system jest modułowy i można go dostosować do szerokiego zakresu patogenów pszczół opartych na DNA (tj. larw Paenibacillus lub Melisococcus plutonious), a także do monitorowania interesujących symbiontów komensalnych. Podejście to rozszerza dostęp do diagnostyki molekularnej poza tradycyjne warunki laboratoryjne i wspiera strategie wczesnej interwencji w pszczelarstwie. W szerszym ujęciu, nasze wyniki pokazują wykonalność technologii opartych na CRISPR w zastosowaniach diagnostycznych gotowych do użycia w terenie.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Prace te zostały wsparte grantem "Nowe narzędzia molekularne do szybkiego monitorowania chorób pszczół miodnych w pasiekach w prowincji Grenada" (GOPG-GR-23-0002) w ramach zaproszenia Pomoc dla grup operacyjnych Europejskiego Stowarzyszenia Innowacji (AEI) w zakresie wydajności i zrównoważonego rolnictwa rządu Andaluzji. Wyrażamy również uznanie dla wsparcia ze strony Hiszpańskiego Programu na rzecz Tworzenia Wiedzy oraz Naukowego i Technologicznego Wzmocnienia Systemu B+R+I, grantu PID2021-126938OB-I00 finansowanego przez MCIN/AEI/10.13039/501100011033 oraz przez "EFRR/UE". Bardzo doceniamy pomoc i zasoby udzielone przez pszczelarzy z Asociación de Pequeños Apicultores de Granada (APAG) i Cooperativas Agroalimentarias de Granada (FAECA). Badanie jest częścią pracy doktorskiej D. Pedro García Olmedo. Studia doktoranckie w zakresie biologii podstawowej i systemowej (Uniwersytet w Granadzie, UGR).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,2 ml probówek Eppendorfa bez DNA i RNAzy | Axygen (Axigen) | MTC-02-C | |
| 1,5 ml probówek Eppendorfa bez DNA i RNAzy | Axygen (Axigen) | MTC-150-C | |
| 10 μ L końcówki z filtrem o niskiej retencji | Kliniki laboratoryjne | 5-063-P5-0 | |
| 100 μ L końcówki z filtrem o niskiej retencji | Kliniki laboratoryjne | 5-120-P5-0 | |
| 1000 μ L końcówki z filtrem o niskiej retencji | Kliniki laboratoryjne | 5-203-P4-0 | |
| Suchy blok grzewczy Stuart serii BH-200 | Cole'a-Parmera | EW-36610-00 | |
| Woda uzdatniona metodą DEPC | Ambicon (Ambicon) | Zobacz materiał AM9906 | |
| EDTA | Sigma-Aldrich | 798681 | |
| EnGen Lba Cas12A (CPF1) | Laboratoria biologiczne w Nowej Anglii | Zobacz materiał M0653T | |
| Sigma-Aldrich | Sigma-Aldrich | 64-17-5 | |
| Hcl | Sigma-Aldrich | 7647-01-0 | |
| Tłuczki do mikroprobówek | Marka rybacka | 12141364 | |
| Milenia GenLine HybriDetect | Milenia | MGHD 1 | |
| NaOH powiedział: | Sigma-Aldrich | 221465 | |
| Zestaw RPA TwistAmp Liquid Basic | Wzmacniacz TwistAmp | TALQBAS01 | |
| Ostrza skalpela | Swann-Morton | 201 | |
| Pojedyncza pipeta kanałowa PIPETMAN P1000L Mikropipeta z metalowym wyrzutem | Gilson | F144059M | |
| Pojedyncza pipeta kanałowa PIPETMAN P100L Mikropipeta z metalowym wyrzutem | Gilson | F144057M | |
| Pojedyncza pipeta Chanel PIPETMAN P10L Mikropipeta Metalowy wyrzutnik | Gilson | F144055M | |
| Podchloryn sodu | |||
| Dotykowy system wykrywania PCR w czasie rzeczywistym | Przedsiębiorstwo BioRad | Silnik CFX96 | |
| Tris-HCl | Sigma-Aldrich | Zobacz materiał T1503 | |
| TwistAmp Liquid Podstawowy | Kręcić | TALQBAS01 |
Bibliografia
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), 1255957(2015).
- Murphy, J. T., Breeze, T. D., Willcox, B., Kavanagh, S., Stout, J. C. Globalisation and pollinators: pollinator declines are an economic threat to global food systems. People and Nature. 4 (3), 773-785 (2022).
- Zattara, E. E., Aizen, M. A. Worldwide occurrence records suggest a global decline in bee species richness. One Earth. 4 (1), 114-123 (2021).
- Carreira de Paula, J., et al. Promastigote EPS secretion and haptomonad biofilm formation as evolutionary adaptations of trypanosomatid parasites for colonizing honeybee hosts. NPJ Biofilms Microbiomes. 10 (1), 27(2024).
- Requier, F., et al. First large-scale study reveals important losses of managed honeybee and stingless bee colonies inLatin America. Sci Rep. 14 (1), 10079(2024).
- Babin, A., Schurr, F., Rivière, M. P., Chauzat, M. P., Dubois, E. Specific detection and quantification of three microsporidia infecting bees, Nosema apis, Nosema ceranae, and Nosema bombi, using probe-based real-time PCR. Eur J Protistol. 86, 125935(2022).
- Cameron, T. C., Wiles, D., Beddoe, T. Current status of loop-mediated isothermal amplification technologies for the detection of honeybee pathogens. Front Vet Sci. 8, 659683(2021).
- Schurr, F., et al. Validation of quantitative real-time RT-PCR assays for the detection of six honeybee viruses. J Virol Methods. 270, 70-78 (2019).
- Xu, G., et al. Triplex real-time PCR for detection of Crithidia mellificae and Lotmaria passim in honeybees. Parasitol Res. 117 (2), 623-628 (2018).
- D'Alvise, P., Seeburger, V., Gihring, K., Kieboom, M., Hasselmann, M. Seasonal dynamics and co-occurrence patterns of honeybee pathogens revealed by high-throughput RT-qPCR analysis. Ecol Evol. 9 (18), 10241-10252 (2019).
- Shao, G., Zhu, X., Hua, R., Chen, Y., Yang, G. Development of a copro-RPA-CRISPR/Cas12a assay to detect Echinococcus granulosus nucleic acids isolated from canine feces using NaOH-based DNA extraction method. PLoS Negl Trop Dis. 18 (12), e0012753(2024).
- Xiao, Y., Fei, D., Li, M., Ma, Y., Ma, M. Establishment and application of CRISPR-Cas12a-based recombinase polymerase amplification and a lateral flow dipstick and fluorescence for the detection and distinction of deformed wing virus types A and B. Viruses. 15 (10), 2041(2023).
- Li, Z., et al. Cas-OPRAD: a one-pot RPA/PCR CRISPR/Cas12 assay for on-site Phytophthora root rot detection. Front Microbiol. 15, 1390422(2024).
- Osmundson, T. W., Eyre, C. A., Hayden, K. M., Dhillon, J., Garbelotto, M. M. Back to basics: an evaluation of NaOH and alternative rapid DNA extraction protocols for DNA barcoding, genotyping, and disease diagnostics from fungal and oomycete samples. Mol Ecol Resour. 13 (1), 66-74 (2013).
- Truett, G. E., et al. Preparation of PCR-quality mouse genomic DNA with hot sodium hydroxide and Tris (HotSHOT). BioTechniques. 29 (1), 52-54 (2000).
- Klintschar, M., Neuhuber, F. Evaluation of an alkaline lysis method for the extraction of DNA from whole blood and forensic stains for STR analysis. J Forensic Sci. 45 (3), 669-673 (2000).
- Galanis, A., et al. Bee foraging preferences, microbiota and pathogens revealed by direct shotgun metagenomics of honey. Mol Ecol Resour. 22 (7), 2506-2523 (2022).
- Xiang, Z., et al. A simple alkali lysis method for Plasmodium falciparum DNA extraction from filter paper blood samples. Mol Biochem Parasitol. , 254(2023).
- Shwani, A., Zuo, B., Alrubaye, A., Zhao, J., Rhoads, D. D. A simple, inexpensive alkaline method for bacterial DNA extraction from environmental samples for PCR surveillance and microbiome analyses. Appl Sci. 14 (1), 141(2024).
- Fowler, E. V., et al. Development of a cost-effective, morphology-preserving method for DNA isolation from bulk invertebrate trap catches: tephritid fruit flies as an exemplar. PLoS One. 18 (2), e0281759(2023).
- Yuan, J., et al. CRISPR-Cas12a-mediated hue-recognition lateral flow assay for point-of-need detection of Salmonella. Anal Chem. 96 (1), 220-228 (2024).
- Xiao, Y., et al. Ultra-sensitive and rapid detection of pathogenic Yersinia enterocolitica based on the CRISPR/Cas12a nucleic acid identification platform. Foods. 11 (14), 2160(2022).
- Dong, J., et al. Comparative evaluation of PCR-based, LAMP and RPA-CRISPR/Cas12a assays for the rapid detection of Diaporthe aspalathi. Int J Mol Sci. 25 (11), 5773(2024).
- Zhang, X., et al. CRISPR/Cas12a combined with recombinase polymerase amplification for rapid and sensitive detection of Vibrio vulnificus in one tube. Acta Biochim Biophys Sin. 55 (2), 322-326 (2023).
- Li, P. R., et al. An RPA-assisted CRISPR/Cas12a assay combining fluorescence and lateral flow strips for the rapid detection of enterotoxigenic Bacillus cereus. J Agric Food Chem. 72 (24), 14000-14010 (2024).
- Sun, Y., et al. One-tube SARS-CoV-2 detection platform based on RT-RPA and CRISPR/Cas12a. J Transl Med. 19 (1), 74(2021).
- Aman, R., et al. iSCAN-V2: a one-pot RT-RPA-CRISPR/Cas12b assay for point-of-care SARS-CoV-2 detection. Front Bioeng Biotechnol. 9, 800104(2022).
- Peng, R., Lu, Z., Liu, M., Hu, F. RT-RPA-assisted CRISPR/Cas12a for rapid and multiplex detection of respiratory infectious viruses based on centrifugal microfluidics. Sens Actuators B Chem. 399, 134838(2024).
- Liu, Y., et al. One-tube RPA-CRISPR Cas12a/Cas13a rapid detection of methicillin-resistant Staphylococcus aureus. Anal Chim Acta. 1278, 341757(2023).
- Nguyen, L. T., Smith, B. M., Jain, P. K. Enhancement of trans-cleavage activity of Cas12a with engineered crRNA enables amplified nucleic acid detection. Biochemistry. 59 (17), 1474-1481 (2020).
- Hao, J., et al. Application of a lyophilized CRISPR/Cas12a and RPA assay for rapid detection of Actinobacillus pleuropneumoniae. Microchem J. 206, 111443(2024).
- Lin, C., et al. A universal all-in-one RPA-Cas12a strategy with de novo autodesigner and its application in on-site ultrasensitive detection of DNA and RNA viruses. Biosens Bioelectron. 239, 115609(2023).
Przedruki i uprawnienia
Sprostowanie
Formal Correction: Erratum: On-site DNA Detection of Trypanosomatid Parasites and Nosema ceranae Through Alkaline Lysis Coupled to RPA/CRISPR/Cas12a System
Posted by JoVE Editors on 8/14/2025. Citeable Link.
This corrects the article 10.3791/68874
