Niniejsza praca optymalizuje metodę ekstrakcji RNA opartą na gorącym fenolu dla Mycobacterium, pozwalającą na uzyskanie wysokiej jakości RNA odpowiedniego do analiz transkryptomicznych. W porównaniu z TRIzol i RNeasy w identycznych warunkach, metoda ta zapewniła wyższą wydajność, porównywalną integralność oraz lepszą efektywność kosztową, stanowiąc praktyczną alternatywę dla wielkoskalowych badań ekspresji genów.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Zoptymalizowana ekstrakcja RNA z prątków z wykorzystaniem gorącego fenolu: solidne podejście zapewniające wiarygodną analizę ekspresji genów
W tym artykule
Podsumowanie
Streszczenie
Mycobacterium tuberculosis (Mtb) pozostaje poważnym zagrożeniem dla zdrowia publicznego na świecie, co podkreśla potrzebę prowadzenia wiarygodnych badań transkrypcyjnych w celu zrozumienia jego biologii oraz mechanizmów oporności na leki. Analizy te zależą od uzyskania wysokiej jakości RNA o wysokiej wydajności. Chociaż dostępnych jest kilka metod ekstrakcji RNA, wiele z nich wymaga drogich odczynników, dużych objętości hodowli lub specjalistycznego sprzętu, co ogranicza ich przydatność w badaniach na szeroką skalę, szczególnie w warunkach ograniczonych zasobów. W niniejszej pracy przedstawiono zoptymalizowaną metodę ekstrakcji RNA opartą na gorącym fenolu, dostosowaną specjalnie do prątków. Metoda ta wykorzystuje minimalną objętość hodowli i powszechnie dostępne odczynniki, aby konsekwentnie uzyskiwać wysokiej jakości RNA nadającego się do wysokoprzepustowych zastosowań transkrypcyjnych. Ilość i integralność RNA oceniono za pomocą elektroforezy żelowej oraz analizy integralności RNA (RIN), a przydatność do dalszych zastosowań potwierdzono za pomocą qPCR i Qubit 4. Aby ocenić skuteczność zoptymalizowanej metody, przeprowadzono równoległą ekstrakcję RNA przy użyciu TRIzol i RNeasy w identycznych warunkach eksperymentalnych, obejmujących ten sam gatunek Mycobacterium, objętość hodowli, fazę wzrostu (logarytmiczną i stacjonarną) oraz warunki lizy. Pozwoliło to na bezpośrednie porównanie wydajności, jakości, wykonalności i kosztów. Zoptymalizowana metoda z użyciem gorącego fenolu wykazała porównywalną lub lepszą wydajność i jakość RNA, znacząco redukując koszty odczynników i zależność od specjalistycznego sprzętu. Ze względu na swoją efektywność, powtarzalność i przystępność, protokół ten stanowi praktyczną alternatywę dla szeroko zakrojonych badań ekspresji genów i transkrypcyjnych u Mtb oraz innych gatunków prątków.
Wprowadzenie
M. tuberculosis (Mtb), czynnik etiologiczny gruźlicy (TB), pozostaje główną przyczyną zgonów wywołanych przez pojedynczy patogen zakaźny, przewyższając HIV/AIDS. W 2024 roku gruźlica odpowiadała za około 1,3 miliona zgonów na całym świecie1. Obciążenie to jest potęgowane przez rosnącą rozpowszechnioną szczepów wielolekoopornych (MDR) i ekstensywnie lekoopornych (XDR). W związku z tym istnieje pilna potrzeba zrozumienia molekularnych podstaw patogenezy gruźlicy oraz zidentyfikowania nowych celów terapeutycznych2.
Profilowanie transkrypcyjne Mtb stało się ważnym narzędziem w wyjaśnianiu elementów funkcjonalnych zaangażowanych w interakcje gospodarz-patogen3, adaptację do stresu środowiskowego4 oraz mechanizmy leżące u podstaw oporności na leki5. Zaawansowane metodologie, takie jak PCR w czasie rzeczywistym, mikromacierze oraz sekwencjonowanie RNA (RNA-seq), znacznie zwiększyły możliwość analizy transkryptomu prątków6. Jednak sukces tych metod w dużej mierze zależy od dostępności wysokiej jakości RNA, co z kolei zależy od efektywnej lizy komórek podczas ekstrakcji. Złożona ściana komórkowa Mtb, składająca się z mykolylo-arabinogalaktanu i peptydoglikanu, sprawia, że ekstrakcja RNA jest szczególnie trudna7. Istniejące techniki lizy, w tym hydroliza enzymatyczna8, sonikacja9 oraz rozbijanie kuleczkami (bead-beating)10, często wymagają kosztownego sprzętu i dużych objętości hodowli, co ogranicza ich praktyczność w wielu laboratoriach BSL-3. Ponadto powolny wzrost Mtb wymusza wydłużenie czasu hodowli w celu uzyskania wystarczającej biomasy11.
Aby przezwyciężyć te ograniczenia, opracowano zoptymalizowaną, szybką i ekonomiczną metodę ekstrakcji RNA opartą na gorącym fenolu. Przy użyciu zaledwie 3 mL hodowli w średniej fazie logarytmicznej, metoda ta pozwala uzyskać 45–60 µg wysokiej jakości RNA, nadającego się do późniejszych analiz transkryptomicznych. Lizę komórek przeprowadza się za pomocą kompaktowego ręcznego homogenizatora do tkanek oraz łatwo dostępnych odczynników, co eliminuje potrzebę stosowania kosztownych urządzeń. Chociaż metoda gorącego fenolu była opisywana wcześniej11,12, zoptymalizowana wersja poprawia wygodę użytkowania, efektywność kosztową oraz wydajność RNA. Optymalizacja została przeprowadzona z wykorzystaniem M. smegmatis mc2155 (Msmeg) i pomyślnie zwalidowana przy użyciu Mtb H37Rv.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Odczynniki i sprzęt wykorzystane w procedurze zostały wymienione w Tabeli materiałów.
1. Hodowla Mycobacterium
- Zaszczepić 1 mL z zapasu glicerolowego Msmeg lub Mtb do 10 mL pożywki Middlebrook 7H9 uzupełnionej o 0,2% glicerolu, 0,05% Tween 80 i 10% ADC, inkubując w 37 °C przy wytrząsaniu 150 rpm do momentu osiągnięcia OD 1–1,5.
- Wyhodować kulturę wtórną, dodając 1% kultury pierwotnej do 10 mL pożywki 7H9, aż do osiągnięcia środkowej fazy logarytmicznej, OD600nm = 0,6–0,7.
- Rozdzielić kulturę na aliquoty po 3 mL i odwirować w 2000 x g przez 5 min w temperaturze pokojowej (23–25 °C).
- Przechowywać osady w temperaturze -80 °C do czasu ekstrakcji RNA.
UWAGA: W przypadku kultur Mtb należy przestrzegać wytycznych BSL3 i inaktywować termicznie osad w 95 ˚C przez 20–25 min.
UWAGA: Rycina 1 przedstawia schemat blokowy podstawowych etapów ekstrakcji RNA metodą gorącego fenolu.
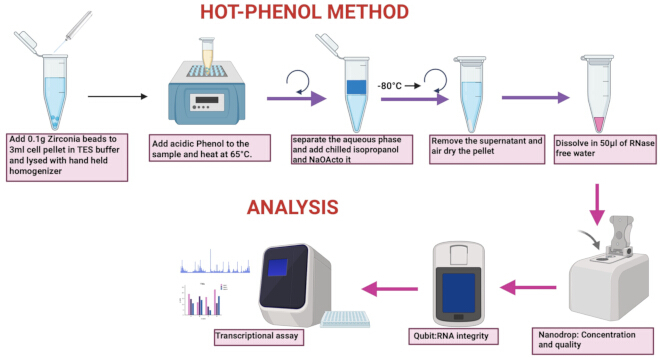
Rysunek 1: Schematyczne przedstawienie metody gorącego fenolu oraz analizy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Izolacja RNA
- Metoda z gorącym fenolem (metoda HP)
- Do osadu komórkowego dodać 200 µL buforu TES (100 mM Tris-HCl, pH 8,0; 5 mM EDTA, pH 8,0; 0,1 M NaCl; % SDS; 1% β-merkaptoetanolu) i resuspender osad za pomocą vortexu.
- Do próbki dodać około 0,1 g kulek krzemionkowych o średnicy 0,1 mm. Użyć ręcznego homogenizatora tkankowego przez 10–15 s, aż osad zostanie całkowicie rozmrożony na lodzie. Powtórzyć ten krok w dwóch kolejnych cyklach, a po każdym powtórzeniu przeprowadzić szybkie zamrażanie w ciekłym azocie.
- LUB użyć szybkoobrotowego laboratoryjnego homogenizatora kulkowego przez 1 min z ustawieniem prędkości na 5 (5,0 m/s) w temperaturze pokojowej. Powtórzyć ten krok przez 3 cykle i inkubować próbkę na lodzie po każdym cyklu, aby zapobiec nagrzewaniu.
UWAGA: Lizę komórek Mtb powtórzyć przez 6–8 cykli (każdy cykl przez 1 min) przy użyciu ręcznego homogenizatora tkankowego lub homogenizatora kulkowego, okresowo chłodząc na lodzie po każdym cyklu. Do przygotowania wszystkich buforów i odczynników potrzebnych do ekstrakcji RNA należy użyć wody traktowanej DEPC (dietylopirokarbonianem). - Do każdej próbki dodać dodatkowe 200 µL buforu TES (wstępnie podgrzanego do 65 °C), aby uzupełnić objętość do 400 µL. Do każdej próbki dodać 200 µL fenolu kwaśnego (fenol równoważony buforem cytrynianowym 100 mM, pH 4,5) oraz 200 µL chloroformu (wymieszać fenol kwaśny i chloroform w równym stosunku przed dodaniem do próbki).
- Inkubować próbkę w temperaturze 65 °C w bloku grzejnym z wytrząsaniem przy 900 rpm przez 30 min, a następnie wirować przy 12000 x g przez 15 min w temperaturze pokojowej. Upewnić się, że po wirowaniu nastąpiło prawidłowe rozdzielenie faz (powinna być widoczna klarowna górna faza wodna zawierająca RNA, wyraźna interfaza z DNA oraz dolna faza organiczna zawierająca białka i lipidy).
- Zdjąć górną warstwę fazy wodnej i przenieść ją do nowej probówki mikrocentryfugowej 1,5 mL. Ponownie dodać taką samą objętość fenolu kwaśnego i chloroformu. Wirować przy 12 000 x g przez 15 min w temperaturze pokojowej. Upewnić się, że nastąpiło prawidłowe rozdzielenie faz.
- Przenieść górną warstwę wodną do nowej probówki mikrocentryfugowej 1,5 mL, następnie dodać 30 µL buforu octanu sodu 3 M, pH 5,3 oraz 240 µL schłodzonego izopropanolu. Inkubować w temperaturze −80 °C od 30 min do 1 h.
UWAGA: Na tym etapie probówkę mikrocentryfugową można przechowywać przez noc w temperaturze -80 °C. Uszczelnić probówkę mikrocentryfugową wieloma warstwami parafilmu, aby zapobiec jej otwarciu w temperaturze 65 °C podczas inkubacji.
OSTROŻNIE: Fenol i chloroform są substancjami niebezpiecznymi; dlatego należy stosować odpowiednie środki ochrony indywidualnej (PPE), zabezpieczenia techniczne, takie jak dygestoria, oraz przestrzegać procedur utylizacji odpadów. - Wirować przy 12 000 x g przez 1 h w temperaturze pokojowej. Upewnić się, że powstał osad i ostrożnie usunąć nadsącz, nie naruszając osadu.
- Resuspender osad w 1 mL 75% etanolu i wirować przy 12 000 x g przez 1 min w temperaturze pokojowej. Wykonać ten krok dwukrotnie, a następnie wysuszyć osad na powietrzu.
- Resuspender osad w 50 µL wody wolnej od nukleaz.
UWAGA: Aby rozpuścić RNA, inkubować je w wodzie wolnej od RNaz przez 10–30 min w temperaturze pokojowej.
- Metoda z użyciem TRIzol
- Do osadu komórkowego dodać 200 µL odczynnika TRIzol.
OSTROŻNIE: TRIzol jest substancją niebezpieczną; dlatego należy stosować odpowiednie środki ochrony indywidualnej (PPE), zabezpieczenia techniczne, takie jak dygestoria, oraz przestrzegać procedur utylizacji odpadów. - Postępować zgodnie z metodą lizy komórek opisaną w krokach 2.1.2 - 2.1.3.
- Dodać dodatkowe 200 µL odczynnika TRIzol, następnie 200 µL chloroformu i mieszać na vortexie przez 1 min. Wirować przy 13 400 x g przez 15 min w temperaturze 4 °C. Upewnić się, że po wirowaniu nastąpiło prawidłowe rozdzielenie faz.
- Ostrożnie przenieść fazę wodną do nowej probówki mikrocentryfugowej 1,5 mL.
- Wytrącić RNA poprzez dodanie 500 µL izopropanolu do fazy wodnej i inkubowanie w temperaturze −80 °C od 30 min do 1 h.
- Osadzić RNA poprzez wirowanie przy 15 000 x g przez 20 min w temperaturze 4 °C. Uważnie obserwować osad i usunąć nadsącz, nie naruszając osadu.
- Resuspender osad w 1 mL 75% etanolu i wirować przy 13 400 x g przez 1 min w temperaturze 4 °C. Powtórzyć ten krok dwukrotnie, wysuszyć osad na powietrzu przez 30 min w temperaturze pokojowej i resuspender w 50 µL wody wolnej od nukleaz.
- Do osadu komórkowego dodać 200 µL odczynnika TRIzol.
- Metoda z użyciem komercyjnego zestawu do ekstrakcji RNA
- Resuspender osad komórkowy w 200 µL buforu do resuspensji (dołączonego do zestawu).
- Postępować zgodnie z metodą lizy komórek opisaną w krokach 2.1.2 - 2.1.3.
- Przeprowadzić dalsze etapy eksperymentu zgodnie z instrukcjami producenta.
3. Traktowanie DNazą, kwantyfikacja i wizualizacja
- Aby usunąć zanieczyszczenia DNA genomowym, do każdej próbki RNA dodać 1 µL DNase I (10units) oraz 5 µL buforu RDD (1x) i inkubować w temperaturze pokojowej przez 30 min.
- Ilość RNA w próbce oznaczyć spektrofotometrycznie przy użyciu Nanodrop, a integralność RNA za pomocą Qubit4. Akceptowalna wartość RIN mieści się w przedziale 7,5–10. Akceptowalne wartości A260/A280 oraz A260/A230 wynoszą odpowiednio od 1,8 do 2,0 oraz od 2,0 do 2,2.
- RNA zwizualizować na 1% żelu agarozowym, stosując 1X RNA loading dye.
4. Synteza cDNA i ilościowa PCR w czasie rzeczywistym
- Przygotować 20 µL reakcji do syntezy cDNA z wykorzystaniem zestawu cDNA Reverse Transcription oraz 1 µg RNA, postępując zgodnie z instrukcjami producenta w termocyklerze.
- Przygotować 10 µL reakcji real-time PCR, wykorzystując 50 ng cDNA, 0,4 µM każdego startera oraz SYBR, zgodnie z instrukcjami producenta. Próbkę poddać analizie w termocyklerze Real-Time PCR.
UWAGA: Do analizy qPCR wykorzystano następujące startery:
Mtb sigA Fw 5' cctcaaacagatcggcaagg 3', Mtb sigA Rv 5' cagatccacatcatgtcgcg 3'
Mtb hsp70 Fw 5’ gctggtggacaagttcaagg 3', Mtb hsp70 Rv 5' ggtcagctgctcgtctaaga 3'
Mtb16srRNA Fw 5' gcgatacgggcagactagag 3', Mtb16srRNA Rv 5' aaggaaggaaacccacacct 3'
Ms. sigA Fw 5' gaagacaccgacctggaact 3', Ms.sigA ms Rv. 5' gactcttcctcgtcccacac 3'
Ms. sigH Fw 5' gaagggttcccgtacaagg 3', Ms sigH Rv. 5' tcatgacgtcacctcctcg 3'
Ms. sigE Fw 5' caccaccaaccttttcctcg 3', Ms. sigE Rv. 5' accctcgatgtcacacagg 3'
5. Analiza statystyczna
- Przeprowadź test t Studenta test t-Studenta z wykorzystaniem wszystkich powtórzeń biologicznych w programie GraphPad Prism, P Wartość p ≤ 0,05 uznano za statystycznie istotną. Słupki błędów reprezentują błąd standardowy z co najmniej trzech powtórzeń biologicznych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Jakość i wydajność RNA
Jakość i ilość RNA oceniono za pomocą elektroforezy w żelu agarozowym (Rycina 2). We wszystkich metodach ekstrakcji zaobserwowano wyraźne, ostre prążki odpowiadające 23S i 16S rRNA, co potwierdziło pomyślną izolację całkowitego RNA. Metody Hot Phenol i TRIzol wykazały trzy wyraźne prążki reprezentujące 23S (~2900 bp), 16S (~1500 bp) i 5S rRNA (~120 bp), co wskazuje na nieuszkodzone RNA wysokiej jakości. W pr...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W celu opracowania prostej i niezawodnej metody ekstrakcji RNA z Mycobacterium zoptymalizowano metodę gorącego fenolu (Hot Phenol). Następnie wyekstrahowane RNA porównano z dwiema powszechnie stosowanymi podejściami: TRIzol oraz metodą z wykorzystaniem zestawu kolumienkowego12,13. Techniki te porównano pod kątem wydajności RNA, czystości, integralności, kosztów i czasu przetwarzania, aby ocenić ich praktyczność w dalszych zastosowaniach molekularnych. Za...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie stwierdzili żadnych konfliktów interesów. Wszyscy autorzy zatwierdzili przesłanie pracy.
Podziękowania
Pragnę podziękować za wsparcie Departamentu Biotechnologii (DBT), Indyjskiej Rady Badań Medycznych (ICMR) oraz Rady Badań Naukowych i Inżynieryjnych (SERB).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| kuleczki krzemionkowe 0,1 mm | MP Biomedicals | Przeprowadzenie analizy korelacji Pearsona i korelacji Spearmana w programie SPSS W statystyce korelacja służy do mierzenia siły i kierunku liniowego związku między dwiema zmiennymi. Dwie najczęściej stosowane metody obliczania korelacji to współczynnik korelacji Pearsona oraz współczynnik korelacji Spearmana. Współczynnik korelacji Pearsona, znany również jako korelacja produktowo-momentowa, mierzy siłę i kierunek liniowej zależności między dwiema zmiennymi ilościowymi. Wymaga on, aby obie zmienne miały rozkład normalny i żeby zależność między nimi była liniowa. Współczynnik korelacji Spearmana jest nieparametryczną miarą siły i kierunku związku monotonicznego między dwiema zmiennymi. Jest on stosowany, gdy dane nie mają rozkładu normalnego, gdy zmienne są mierzone na skali porządkowej lub gdy zależność między zmiennymi nie jest liniowa. W tym filmie dowiesz się, jak przeprowadzać oba te testy korelacji przy użyciu oprogramowania SPSS. Słowa kluczowe: korelacja, korelacja Pearsona, korelacja Spearmana, SPSS, analiza statystyczna, współczynnik korelacji, analiza danych | |
| 2-propanol | Sigma | 278475 | |
| Bead Ruptor 4 | revvity | ||
| Chloroform | Sigma | 288306 | |
| Wirówka chłodząca | ThermoScientific | 42541217 | |
| DNaza I | Qiagen | 79254 | |
| EDTA | sigma | E02SS | |
| HCl | SRL | 62889 | |
| Blok grzewczy | MIULAB | MU-E02-1049 | |
| Zestaw do odwrotnej transkrypcji cDNA o wysokiej wydajności | Thermo Fisher Scientific | 4368814 | |
| Zmotoryzowany homogenizator do tkanek G10 | Korona | G22616008 | |
| NaCl | sigma | S5886 | |
| Nanofotometr N50 | IMPLEMENTACJA | T51601 | |
| fenol nasycony buforem cytrytowym 0,1 M o pH 4,5 | Sigma | P4682 | |
| PowerUP SYBR | Applied Biosystems | A25742 | |
| fluorometr Qubit 4 | Invitrogen | 2,32262E+12 | |
| Termocykler do PCR w czasie rzeczywistym | Analytik Jena AG | 844-00503-2 | |
| Zestaw RNeasy | Qiagen | 74104 | |
| SDS | Sigma | S9888 | |
| Octan sodu | Sigma | S2889 | |
| termocykler | Bio-Rad | 621BR29739 | |
| TRI Reagent | Sigma | T9424 | |
| Tris (zasada) | Himedia | MB029 | |
| β-merkaptoetanol | Sigma | 516732 |
Bibliografia
- Global tuberculosis report, 2024. , Available from: https://www.who.int/publications/b/74877 (2024).
- Lange, C., et al. Drug-resistant tuberculosis: An update on disease burden, diagnosis and treatment. Respirology. 23 (7), 656-673 (2018).
- Tailleux, L., et al. Probing host-pathogen cross-talk by transcriptional profiling of both Mycobacterium tuberculosis and infected human dendritic cells and macrophages. PLoS One. 3 (1), e1403(2008).
- Voskuil, M. I., et al. Inhibition of respiration by nitric oxide induces a Mycobacterium tuberculosis dormancy program. J Exp Med. 198 (5), 705-713 (2003).
- Zhang, Y., Yew, W. W. Mechanisms of drug resistance in Mycobacterium tuberculosis. Int J Tuberc Lung Dis. 13 (11), 1320-1330 (2009).
- Arnvig, K. B., Young, D. B. Identification of small RNAs in Mycobacterium tuberculosis. Mol Microbiol. 73 (3), 397-408 (2009).
- Brennan, P. J., Nikaido, H. The envelope of mycobacteria. Annu Rev Biochem. 64, 29-63 (1995).
- Belisle, J. T., Sonnenberg, M. G. Isolation of genomic DNA from mycobacteria. Methods Mol Biol. 101, 31-44 (1998).
- Manganelli, R., et al. Role of the extracytoplasmic-function sigma factor σH in Mycobacterium tuberculosis global gene expression. Mol Microbiol. 45 (2), 365-374 (2002).
- Rustad, T. R., et al. Global analysis of mRNA stability in Mycobacterium tuberculosis. Nucleic Acids Res. 41 (1), 509-517 (2013).
- Mangan, J. A., Sole, K. M., Mitchson, D. A., Butcher, P. D. An effective method of RNA extraction from bacteria refractory to disruption, including mycobacteria. Nucleic Acids Res. 25 (3), 675-676 (1997).
- Venkataraman, B., Gupta, N., Gupta, A. A robust and efficient method for the isolation of DNA-free, pure and intact RNA from Mycobacterium tuberculosis. J Microbiol Meth. 93 (3), 198-202 (2013).
- Hiebert, R. M., et al. RNA extraction and RNA-sequencing method for transcriptomic analysis of Mycobacterium tuberculosis. Biotechniques. 77 (1), 23-34 (2025).
- Kumar, K., Tharad, M., Ganapathy, S., et al. Phenylalanine-rich peptides potently bind ESAT6, a virulence determinant of Mycobacterium tuberculosis, and concurrently affect the pathogen's growth. PLoS One. 4, e7615(2009).
- Alli, A. O., et al. Optimization of RNA extraction in Mycobacterium tuberculosis for studying intracellular gene expression. Afr J Clin Exp Microbiol. 10 (2), 64-79 (2009).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
