Protokół ten opisuje ilościowy test defekacji u młodych mutantów RAC1/CED-10 Caenorhabditis elegans, oferując prosty model do badania stadij choroby Parkinsona prodromalnej. Przezwycięża ograniczenia innych modeli zwierzęcych i ułatwia testowanie strategii terapeutycznych skierowanych do wczesnej patologii Parkinsona.
Artykuł metodologiczny
Ocena ruchliwości przewodu pokarmowego u mutantów Caenorhabditis elegans RAC1/CED-10 jako narzędzie do badania wczesnej choroby Parkinsona
W tym artykule
Podsumowanie
Streszczenie
Choroba Parkinsona (PD) należy do najczęstszych schorzeń neurodegeneracyjnych i diagnozowana jest na podstawie objawów ruchowych, które pojawiają się po znacznej utracie neuronów dopaminergicznych. Objawy niemotoryczne, takie jak zaparcia, są najczęstsze i często pojawiają się wcześniej, co wskazuje na początek choroby. Wiele modeli zwierzęcych służy do badania chorób neurodegeneracyjnych, jednak większość skupia się na późniejszych stadiach. Ponieważ trudno jest dokładnie określić początek neurodegeneracji, żaden pojedynczy model w pełni nie oddaje całego przebiegu choroby. Modele ssaków są szczególnie czasochłonne i kosztowne ze względu na długi cykl życia. Dla porównania, Caenorhabditis elegans (C. elegans), przezroczysty nicienie o średnicy 1 mm o krótkim życiu i cyklu rozrodczym (~3 tygodnie i 3 dni), umożliwia szybsze i opłacalne eksperymenty dzięki szybkiemu odmianie pokoleniowym. Program motoryczny wypróżniania u C. elegans składa się z rytmicznych cykli regulowanych przez złożoną sieć genetyczną, w której uczestniczą GTPazy Rho/rac, a RAC1 (CED-10 w C. elegans) jest jednym z nich. Wykazano, że mutanci RAC1/CED-10 wykazują zaburzoną morfologię i funkcję GABAergiczną, co prowadzi do zaburzeń cykli defekacji. Przedstawiamy tutaj eksperymentalny protokół pomiaru zaparć u RAC1/CED-10 C. elegans na wczesnych etapach. Oprócz służenia jako narzędzie predykcyjne do badania wczesnych objawów Parkinsonu przed neurodegeneracją, protokół ten może być również stosowany jako wczesny punkt końcowy oceny skuteczności interwencji farmakologicznej. Ponieważ zmiany te nie są specyficzne dla konkretnej choroby, uważamy, że model ten stanowi cenne narzędzie do badania zmian, które pojawiają się wcześnie u innych chorób.
Wprowadzenie
Choroba Parkinsona (PD) jest drugą najczęściej spotykaną chorobą neurodegeneracyjną i główną przyczyną niepełnosprawności neurologicznych 1,2. Jego patologiczne cechy to cieleczki Lewy'ego i neurity Lewy'ego, głównie składające się z α-synukleiny, wraz z utratą neuronów w substantia nigra i innych obszarach mózgu3.
Klinicznie PD klasyfikuje się jako zaburzenie ruchowe, ale charakteryzuje się także szerokim spektrum objawów nieruchowych. Zaburzenia ruchowe wynikają z degeneracji neuronów dopaminergicznych w substantia nigra oraz z wyczerpaniem dopaminy w prążkowiu. Jednak objawy nieruchowe – takie jak zaparcia, lęk i zaburzenia zachowań REM4 – często pojawiają się lata wcześniej, w fazie prodromalnej, gdy neurodegeneracja wpływa na struktury zewnętrzne (np. pień mózgu, układ węchowy i szlaki autonomiczne)5.
Głównym wyzwaniem w badaniach nad Parkinsonyem jest opóźniony początek kliniczny: objawy ruchowe pojawiają się zazwyczaj dopieropo utracie 60%-80% neuronów dopaminergicznych, 3 razy, kiedy interwencja terapeutyczna staje się mniej skuteczna. Wczesne objawy niemotoryczne (np. dysfunkcja autonomiczna) mogą stanowić biomarkery prodromalnego PD6, ale ich niespecyficzność komplikuje ostateczną diagnozę. Biorąc pod uwagę te ograniczenia, modele zwierzęce są niezbędne do badania wczesnych stadiów Parkinsona, standaryzacji charakteryzacji objawów oraz opracowania terapii neuroprotekcyjnych – obecnie nieobecnych – które mogłyby spowolnić lub zapobiegać neurodegeneracji.
RAC1/CED-10 Mutanci C. elegans powtarzają klucz do wczesnych i późnych etapów PDcech 6. Wcześniej wykazaliśmy, że aktywność RAC1 jest kluczowa dla przeżycia i funkcjonowania neuronów dopaminergicznych, chroniąc przed toksycznością indukowaną przez α-synukleinę7. Ponadto mutanci RAC1/CED-10 wykazują zmiany fenotypowe przypominające wczesną fazę Parkinsona, w tym zaburzenia metabolizmu lipidów oraz dysfunkcję GABAergiczną, co odzwierciedla się w zaburzonych cyklach defekacji6. Wyniki te ustanawiają mutantów RAC1/CED-10 jako model do badania patofizjologii PD przed zwyrodnieniem.
Tutaj opisujemy zoptymalizowany test wypróżniania dla mutantów RAC1/CED-10, który ilościowo rejestruje dysmotylność jelit, umożliwiając systematyczne badanie cech układu pokarmowego podczas fazy prodromalnej PD.
Protokół
UWAGA: Typ dziki: Użyto N2 Bristol. Model wczesnego PD RAC1/CED-10: Szczep BR3579 jest genotypizowany jako ced-10(n3246) i tutaj nazywany RAC1/CED-10. Był to hojny dar od dr. Ralfa Baumeistera (Uniwersytet Albert-Ludwig, Freiburg/Breisgau, Niemcy). Ten wariant ced-10(n3246) jest silnym allelem. Mutacja ced-10(n3246) to przejście z G-do-A, które skutkuje zmianą glicyny 60 CED-10 na argininę (G60R), co skutkuje niezerową zmianą funkcji 8,9. Nasilenie tego allelu jest silniejsze w porównaniu do innych alleli ced-10 10. Przez cały czas badania wykorzystywano hermafrodyty.
1. Pielęgnacja robaków
- Wlej 25 mL podłoża wzrostu nicieni (NGM) do szalek Petriego o średnicy 150 mm i pozwól agarowi zastygnąć. Każdą płytkę zasiewaj 500 μL kultury Escherichia coli OP50, równomiernie rozprowadzając zawiesinę na powierzchni agaru. Inkubuj płytki w temperaturze 30 °C przez noc, aby umożliwić rozwój bakterii. Przygotuj talerze 24 godziny przed użyciem.
2. Uzyskanie robaków zsynchronizowanych na 4 . etapie rozwoju larw (L4)
- Wykonaj pomiary ruchliwości jelit z robakami zsynchronizowanymi na etapie rozwoju larwy L4. Aby uzyskać robaki na tym etapie rozwoju, należy stosować opisany poniżej protokół wybielania (zaadaptowany z 11) z niewielkimi modyfikacjami dotyczącymi fenotypu RAC1/CED-1011.
- Dodaj 10 grawidnych dorosłych osobników do płytek NGM z Escherichia coli OP50, przygotowanymi jak w kroku 1, aby złożyć jaja i pozwolić robakom rosnąć przez 3 dni. Alternatywnie, można przenieść kawałek agaru z płyty NGM zawierającej mieszaną populację na nową płytę NGM. W tym przypadku kontrola cyklu życia nie jest tak precyzyjna jak przy użyciu 10 trudnych dorosłych. Po 80 godzinach zaobserwowano mieszaną populację hermafrodytów C elegans z dorosłymi osobnikami grawidalnymi w przypadku dzikich typów. Mutanci RAC1/CED-10 wykazywali 6godzin opóźnienia rozwoju, więc dorosłe osoby grawidacyjne pojawiły się po 86 godzinach.
UWAGA: Dorosłe osobniki gravidne są identyfikowane, ponieważ mają w sobie jaja jajowe. - Płucz płytki 10 mL M9, aby odzyskać dorosłe osobniki grawidacyjne w probówkach po 15 mL (oznaczonych odpowiednim genotypem).
- Rozpyl robaki przez wirowanie przez 2 minuty w stężeniu 2000 x g (~1500 rpm w standardowej wirówce stołowej) w temperaturze pokojowej, wyrzuć supernatant i dodaj 10 ml świeżego buforu M9.
UWAGA: Chociaż działa w temperaturze pokojowej, lepsze wyniki zaobserwowaliśmy podczas wirowania w 10 °C. - Wykonaj krok 2.4 3 razy lub aż bufor będzie wolny od bakterii (przezroczysty supernatant). Obecność bakterii można wywnioskować z faktu, że nadmiar wydaje się lekko żółtawy i mętny.
- Dodaj bufor M9 do całkowitej objętości 3,5 mL.
UWAGA: Z naszego doświadczenia wynika, że na tym etapie można użyć sterylnej wody destylowanej – a nawet wody z kranu – bez wprowadzania zanieczyszczeń, ponieważ proces wybielania eliminuje wszelkie drobnoustroje. Jednak zalecamy stosowanie wody buforowej M9 lub sterylnej, aby zapewnić powtarzalność w różnych laboratoriach. - Wymieszaj 0,5 mL 5M NaOH z 1 mL wybielacza, aby przygotować roztwór wybielający. Przygotuj ten roztwór świeży tuż przed użyciem. Dodaj 1,5 ml mieszanki do rurki wirówki zawierającej robaki.
- Intensywnie mieszaj rurki podczas wybielania, monitorując niszczenie tkanek dorosłych pod mikroskopem rozcinającym. Zatrzymaj reakcję, gdy tylko ślady dorosłych są widoczne.
UWAGA: Zabieg wybielający rozlewa dorosłe robaki i larwy, podczas gdy zarodki pozostają żywotne, ponieważ skorupka jajka chroni je przed wybielaczem. Ten krok jest kluczowy, aby zdobyć ocalałych. Nadmiar czasu może zabić wszystkie robaki. Zaleca się stosowanie wiru, ale potem co 3 minuty sprawdzaj zniszczenie skórki. Mutanty RAC1/CED-10 są bardziej wrażliwe na wybielacz. Monitoruj rozpad tkanki dorosłej co 2 minuty i nigdy nie przekraczaj 8 minut. - Zatrzymaj reakcję, dodając bufor M9, aby napełnić probówkę (~15 mL). Szybko wiruj (ponieważ leczenie może być nadal aktywne) przez 1 minutę przy 2000 x g i odrzuć supernatant.
- Przemyj pellet 3 razy, napełniając probówkę buforem M9 i wirując zgodnie z opisaniem powyżej. Po końcowym myciu ostrożnie usuń supernatant, aż pozostanie około 0,1 mL.
- Wlej te jajka do nowej probówki 15 mL i dodaj M9 do 5 mL. Inkubuj w temperaturze pokojowej z delikatnym obracaniem. Należy zapewnić odpowiednie napowietrzanie.
UWAGA: Uzyskaliśmy dobre wyniki synchronizacji, używając wody z kranu zamiast M9 we wszystkich etapach z wyjątkiem etapu 2.9. - Po 24 godzinach zatrzymaj obrót i rozpuszczaj robaki, wirując w 2000 x g przez 1 minutę w 10 °C.
- Płytka 30-50 μL z osadzonymi robakami odpowiadających genotypów na płytkach NGM o średnicy 150 cm, zasianych OP50 i oznaczonych odpowiednim genotypem. Kilka robaków RAC1/CED-10 wydawało się martwych, co stanowiło wewnętrzną cechę genotypu RAC1/CED-10 (osobista obserwacja). W związku z tym podwaj objętość tych mutantów i obserwuj ich następnego dnia.
UWAGA: Objętość powlekanych robaków zależy od wydajności protokołu wybielania. Nigdy nie przekraczaj liczby 250 robaków na talerzu, ponieważ jedzenie szybciej się skończy, a robaki mogą wejść w głód. Różnica w czasie wywoływania mogła być mądrze wykorzystana, aby mieć czas na zarejestrowanie pierwszych cykli wypróżniania u dzikich robaków, a następnie RAC1/CED-10 (patrz następna sekcja). - Sprawdź obecność dzikich robaków na etapie L4 rozwoju larwalnego po 34 godzinach inkubacji. Ten sam etap rozwoju dla robaków RAC1/CED-10 zostanie osiągnięty w ciągu 40 godzini 6. Odróżnić robaki L4 od L3 i młodych dorosłych, mierząc ich rozmiar (~650 μm) i sprawdzając księżycowatą strukturę sromu12.
3. Rejestrowanie ruchliwości jelit
- Przemyj płytki 3 mL M9, aby odzyskać robaki L4 do dwóch rurek wirówek po 1,5 mL.
- Wiruj w 2000 x g przez 1 minutę (rysunek 1A), wyrzuć supernatant i dodaj 1 ml świeżego buforu M9. Powtórz krok 3 razy.
- Oplatuj te wymyte robaki na płytce NGM bez OP50 (Rysunek 1B). Dzięki tym krokom mycia i końcowego nakładania pozbądź się nadmiaru bakterii.
- Przenieś robaki pojedynczo na płytki z 12 dołkami z zasianymi 5 μL bakterii OP50 (Rysunek 1C). Pozwól robakom przystosować się przez godzinę w temperaturze 20 °C.
UWAGA: Te talerze zostały wysiane i pozostawione do wyschnięcia przed dodaniem robaków. Lepiej nie przygotowywać tych płyt wcześniej, ponieważ nadmierny rozwój bakterii może utrudniać wizualizację cyklu defekacji. - Umieść płytki z 12 dołkami i robakami pod mikroskopem, zlokalizuj jednego i rozpocznij rejestrację. Rejestruj cykle defekacji przez 15 minut (15 cykli; Rysunek 1D). Używaj obiektywu 5x do fotografowania z aparatem oferującym rozdzielczość 12-bitową i 60 klatek na sekundę (fps). Wykonaj akwizycję wideo za pomocą narzędzia Snipping Tool w Windows. Rozpocznij nagrywanie, gdy wykryjesz pierwszy cykl defekacji.
UWAGA: Jeśli mikroskop jest podłączony do komputera, możesz nagrywać ekran bezpośrednio za pomocą narzędzia Snipping Tool. Zdecydowanie zalecamy posiadanie chronometru komputerowego do monitorowania cyklu defekacji. Klikaj przycisk Laps za każdym razem na końcu cyklu wypróżniania.
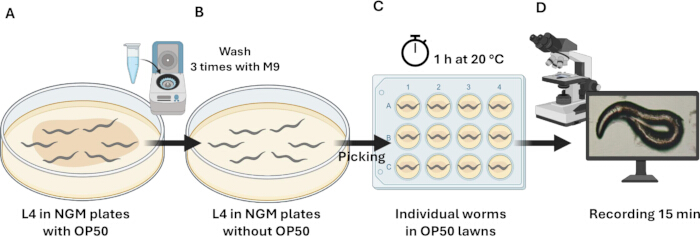
Rysunek 1: Schematyczny schemat protokołu eksperymentalnego do pomiaru ruchliwości jelit. (A) Zsynchronizowane robaki na etapie rozwoju L4. Te robaki zostały zebrane i umyte 3 razy M9. (B) Robaki wyprane były pokryte płytami NGM bez OP50. (C) Robaki zbierano poszczególnie w 12-dołowej płycie z OP50 i pozwalano im pełzać przez godzinę w temperaturze 20 °C. W tym czasie robaki adaptują się do nowego medium i odprężają się od stresu związanego z przenoszeniem. (D) Pojedyncze robaki były rejestrowane przez 15 minut w celu analizy ruchliwości jelit. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
4. Analiza cyklu defekacji
UWAGA: W C. elegans program motoryczny defekacji obejmuje rytmiczne cykle zorganizowane przez złożoną sieć genetyczną. Program składa się z trzech kolejnych, odrębnych skurczów mięśni, z których każdy łatwo wykrywalny jest pod mikroskopem sekcyjnym. Pierwszy krok polega na skurczu tylnych mięśni ściany ciała (pBoc), po czym następuje skurcz przednich mięśni ściany ciała (aBoc), a na końcu skurcze mięśni jelitowych (EMC), które skutkują wydaleniem zawartości jelitowej (Exp)13 (Rysunek 2).
- Przeprowadzaj eksperymenty w temperaturze 20 °C. Gdy wszystkie filmy zostaną nagrane, rozpocznij analizę danych.
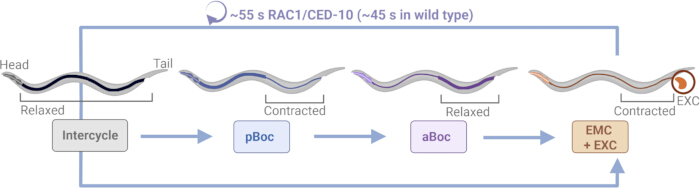
Rysunek 2: Cykl defekacji u mutantów C. elegans RAC1/CED-10. Diagramowa reprezentacja cyklu wypróżniania C. elegans u zmutowanych nicieni RAC1/CED-10. pBoc oznacza skurcz mięśni tylnej ściany ciała; aBoc oznacza skurcz mięśni przedniej ściany ciała, a EMC + EXC odpowiada wyrzutowi zawartości jelitowej. U dzikich zwierząt niezakłóconych do żerowania, program motoryczny rozpoczyna się co 45 sekund z bardzo wysoką regularnością18. Robaki są ustawione tak, że głowa jest skierowana w lewo, a ogon w prawo. Wydalanie (EXC) jest podświetlone na pomarańczowo. Ta liczba została zmodyfikowana z6. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
5. Analiza wideo
- Otwórz jeden film za pomocą odtwarzacza wideo.
UWAGA: Używaliśmy Windows Media Player Legacy v12. Można używać innych programów odtwarzaczy wideo. - Przygotuj plik arkusza kalkulacyjnego. Otwórz udostępniony plik szablonu (Tabela Uzupełniająca 1). Wpisz nazwę pliku wideo oraz rozmiar robaka (opcjonalnie) w wyznaczonych polach, a następnie rozpocznij odtwarzanie wideo.
- Zdefiniuj i zapisz pierwsze wydalanie. Czas zero definiujemy jako moment rozpoczynania rejestracji, gdy robaki są umieszczane pod mikroskopem. Obserwuj okolice odbytu robaka i zidentyfikuj pierwsze zdarzenie wydalania. Zapisz czas (w s) tego zdarzenia w komórce oznaczonej Pierwszym Wydaleniem arkusza.
UWAGA: Czas pierwszego wydalania różni się między robakami (np. Robak 1 = 5 s, Robak 2 = 26 s, Robak 3 = 34 s), ponieważ czas ostatniego wydalania przed rejestracją jest nieznany. - Rejestruj kolejne zdarzenia wydalania: Kontynuuj odtwarzanie i dokumentuj kolejne kolejne wydalenia (wydalanie 2, wydalanie 3 itd.), aż zostanie wprowadzonych łącznie 16 wydalań.
- Obliczanie interwałów cyklicznych: Szablon automatycznie określa odstępy między kolejnymi wydaleniami (np. Wydalanie 2 - Wydalanie 1; Wydalanie 3 - Wydalanie 2; ...). Użyj tych interwałów jako długości cyklu.
- Określ całkowity czas cyklu: Po zarejestrowaniu 16 zdarzeń szablon oblicza czas potrzebny na ukończenie 15 cykli przez robaka. Ta wartość jest wyświetlana w komórce oznaczonej Total Time arkusza kalkulacyjnego. Powtarzaj ten proces dla każdego robaka.
UWAGA: Obecnie żadne zautomatyzowane oprogramowanie nie wykrywa niezawodnie cykli defekacji u C. elegans. Chociaż platformy takie jak WMicrotracker są skuteczne do ilościowego określania parametrów ruchu (prędkość, przebyty dystans, liczba robaków lub rozmiar ciała14,15), nie zapewniają one rozdzielczości potrzebnej do monitorowania obszaru odbytu oraz identyfikacji skurczów lub wydalania. Dlatego ręczne ocenianie nadal pozostaje konieczne, podobnie jak ograniczenia obserwowane w testach pompowania gardła16.
6. Pomiary długości cyklu
- Długość cyklu punktowego jako czas między dwoma kolejnymi wydaleniami. Oblicz przez odejmowanie czasu zakończenia jednego cyklu od czasu zakończenia następnego cyklu, jak wyjaśniono w Tabeli 1 i równaniu 1.
Długość cyklu (n) (w sekundach) = Wydalanie w czasie (n+1) - Wydalanie w czasie (n) Równanie 1
Długość cyklu (1 oczko) = 66 s ((czas wydalania 2 = 71 s) - (czas wydalania 1 = 5 s)) - Dla każdego zestawu danych oblicz średni okres cyklu defekacji, odchylenie standardowe (SD) oraz błąd standardowy średniej (SEM) za pomocą oprogramowania do analizy statystycznej.
7. Rytmiczność lub regularność cyklu defekacji
- Współczynnik zmienności (CV) służy do opisu względnej zmienności i wyjaśnia, jak dane są rozłożone względem średniej. Był wcześniej używany jako wskaźnik regularności cyklu defekacji u C. elegans6. Oblicz CV dla każdego robaka, stosując równanie 2.
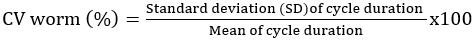 Równanie 2
- Dla każdego odkształcenia C. elegans oblicz średnią CV, odchylenie standardowe (SD) oraz błąd standardowy średniej (SEM) za pomocą oprogramowania do analizy statystycznej.
8. Analiza statystyczna
- Przeprowadzić eksperymenty w trzech niezależnych replikacjach, z pięcioma robakami analizowanymi na każdy stan. Oceń normalność danych za pomocą testu Shapiro-Wilka (α=0,05), który jest zalecany dla n < 50.
- Ponieważ pomiary długości cyklu nie przebiegały zgodnie z rozkładem normalnym, analizę przeprowadzono za pomocą nieparametrycznego testu Manna-Whitneya, który jest dobrze przystosowany do wykrywania różnic w medianach przy małych rozmiarach próbek. Natomiast dane CV (%) są zwykle rozproszone; analizować je za pomocą niesparowanego testu t z korekcją Welcha, aby uwzględnić nierówne wariancje.
- Wszystkie analizy statystyczne wykonuj za pomocą oprogramowania do analizy statystycznej. W eksperymentach obejmujących więcej niż dwa szczepy zastosuj alternatywny test, taki jak jednokierunkowa ANOVA, z ciągłą weryfikacją rozkładu próbek.
Wyniki
Opisany test wideo został wdrożony w modelu C. elegans RAC1/CED-10 wczesnej choroby Parkins, aby ilościowo ocenić ruchliwość jelit. Ze względu na opóźnienie rozwojowe mutantów RAC1/CED-10, populacje zsynchronizowane zostały dostosowane, aby zapewnić porównania dopasowane do etapu z kontrolami typu dzikiego. Pojedyncze robaki zarejestrowano na etapie L4, a następnie przeanalizowano 15 kolejnych cykli wypróżniania w celu określenia długości i regularności cyklu. Takie podejście umożliwia dokładne, wysokorozdzielcze pomiary funkcji motorycznych jelitowych oraz wykrywanie subtelnych zmian niemotorycznych związanych z wczesnymi fenotypami Parkinsons u C. elegans.
Opóźnienie rozwojowe u zwierząt RAC1/CED-10 w eksperymentach zsynchronizowanych
Biorąc pod uwagę opóźnienie rozwojowe obserwowane u mutanta C . elegans RAC1/CED-106, eksperymenty synchronizacyjne przeprowadzane równolegle ze zwierzętami typu dzikiego wymagają korekty czasowej. Aby zwalczyć to opóźnienie i zapewnić porównania etapów podczas nagrywania wideo, zwierzęta RAC1/CED-10 zostały nałożone 6 godzin wcześniej niż dzikie grupy kontrolne tego samego dnia.
Robaki RAC1/CED-10 do badania zmian w wypróżnianiu związanych z chorobą Parkinsona
Zaparcia można wykryć już dwie dekady przed rozpoznaniem motorycznego Parkinsonu, co czyni je jednym z pierwszych rozpoznawalnych objawów wskazujących na rozpoczęcie choroby17. Wcześniej wykazaliśmy, że model RAC1/CED-10 wykazuje zmiany nieruchowe na etapie rozwoju L4, przed wystąpieniem neurodegeneracji6, a zmiana motoryki jelit jest jedną z nich. Jak opisano w protokole, pojedyncze robaki były rejestrowane na etapie L4. Rysunek 3 przedstawia reprezentatywnego robaka RAC1/CED-10.
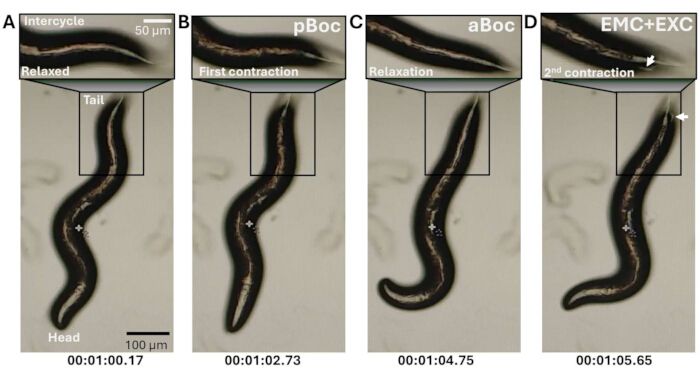
Rysunek 3: Cykl wypróżniania C. elegans na zdjęciach u zwierząt mutantów RAC1/CED-10. Cykl defekacji w mutantach RAC1/CED-10 na zdjęciach. Robaki są skierowane głową w dół. Obszary ogonowe, podkreślone poziomymi ramkami, pokazują sekwencję kroków motorycznych wypróżniania opisaną w6 i schematyczną na Rysunku 2: (A) rozluźniony przedni trakt, (B) skurcz tylnego ciała (pBoc), (C) skurcz przedniego ciała (aBoc) oraz (D) skurcz mięśnia jelitowego z wydaleniem (EMC+EXC). Czas trwania cyklu jest podany poniżej. Strzały oznaczają wyrzucony materiał. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
Dwa parametry używane do analizy motoryki jelitowej to długość cyklu oraz regularność cyklu13. Najpierw zmierzyliśmy 15 cykli każdego robaka, przedstawionych na Rysunku 4.
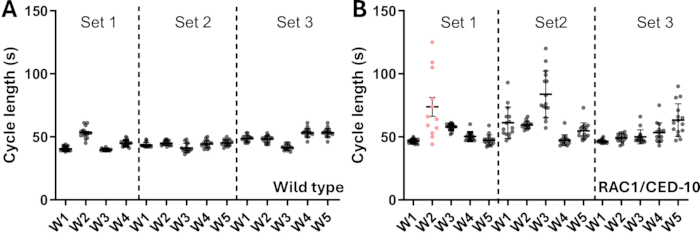
Rysunek 4: Czas trwania cyklu dzikich typów (A) oraz osobników RAC1/CED-10 (B). Zestaw 1, 2 i 3 oznacza niezależne replikacje. Każda kropka reprezentuje jeden cykl wypróżniania, a na jednego robaka jest 15 cykli. Różowy W2 w B został odrzucony do dalszej analizy, ponieważ nie ukończył 15 cykli. W = robak. Na tej podstawie nie przeprowadzono analizy statystycznej. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
Poszczególne robaki oznaczano znakiem W (W1, W2 itd.) w różnych eksperymentalnych replikatach (Set = 1, 2, 3). Dla każdego robaka (W) wykonano 15 pomiarów w ciągu 15 minut. W pierwszym zestawie eksperymentów na zwierzętach typu dzikiego (Rysunek 4A, Zestaw 1) jeden robak został wykluczony, ponieważ był to młody dorosły człowiek, a nie L4. W przypadku RAC1/CED-10 jeden robak został odrzucony, ponieważ po przetworzeniu danych nie ukończył 15 cykli w ciągu 15 minut. Z tego powodu zalecamy korzystanie z aplikacji zegara, aby sprawdzić, ile cykli zostało wykonanych, ponieważ robaki RAC1/CED-10 były dość nieregularne.
Na podstawie tych indywidualnych wartości obliczono średnią i odchylenie standardowe długości cyklu dla dzikich robaków oraz mutantów RAC1/CED-10 (Tabela 1 i Rysunek 5). Jak wcześniejopublikowano, 6 robaków RAC1/CED-10 wykazuje dłuższe i mniej regularne cykle niż robaki typu dzikiego. Dzikie robaki wykazują krótsze cykle (46 s ± 5 s) niż mutanci RAC1/CED-10 (55 s ± 12 s).
Tabela 1: Reprezentatywny zbiór danych pomiarów cyklu wydalania dla poszczególnych robaków. Tabela podsumowuje reprezentatywne dane zebrane od trzech zwierząt. Dla każdego robaka zbiór danych zawiera identyfikator pliku wideo, rozmiar ciała (μm), punkty czasowe (w s) odpowiadające pojedynczym zdarzeniom wydalania, obliczone długości cykli przez 15 kolejnych cykli oraz całkowity czas nagrywania. Długość cyklu otrzymano przez odejmowanie kolejnych punktów czasu wydalania (np. dla VID_154028 robaka długość pierwszego cyklu wynosiła 66 s, obliczona jako 71-5 s). Pozostałe wpisy ilustrują podobne pomiary dla dwóch dodatkowych robaków, dostarczając przykładów typowej zmienności w zbiorze danych. Kliknij tutaj, aby pobrać tę tabelę.
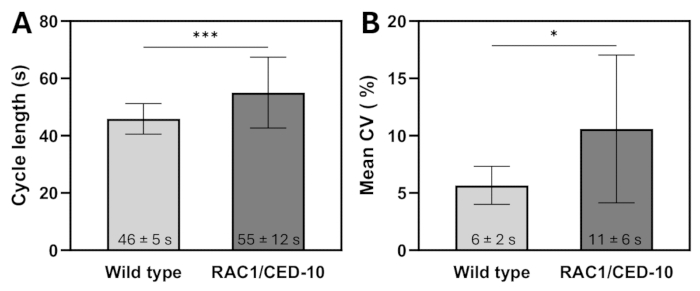
Rysunek 5: Parametry cyklu defekacji. (A) Długość cyklu defekacji oraz (B) średnia CV dzikiego typu oraz robaków RAC1/CED-10. Dane reprezentują średnią ± SD. N=3 n=5. Zastosowano nieparametryczny test Manna-Whitneya dla długości cyklu defekacji. Do danych Średniej CV zastosowano niesparowany test t z korektą Welcha. p < 0,001 * p < 0,05. Zobacz krok 8, aby poznać informacje o analizie statystycznej. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
Regularność cyklu oblicza się za pomocą średniego współczynnika zmienności (CV), który jest średnią współczynników zmienności dla każdego robaka w eksperymencie18. Rysunek 5B pokazuje większą zmienność u zwierząt mutantów RAC1/CED-10 w porównaniu do zwierząt typu dzikiego. Średnia CV wynosi 6% ± 2% u typów dzikich, w porównaniu do 11% ± 6% u mutantów RAC1/CED-10.
Tabela uzupełniająca 1: Szablon do obliczania długości cyklu wypróżniania u Caenorhabditis elegans. Użytkownicy powinni wpisać nazwę każdego pliku robaka w pierwszej kolumnie i opcjonalnie zapisywać długość ciała robaka. Czas (w s) odpowiadający każdemu zdarzeniu wydalania (Wydalanie 1-16) jest następnie wpisywany sekwencyjnie, zgodnie z odtworzeniem wideo. Szablon automatycznie oblicza odstęp między kolejnymi wydaleniami (wydalanie czasowe N - wydalanie czasowe N-1), reprezentując długość cyklu defekacji. Po wprowadzeniu 16 zdarzeń wydalania, łączny czas potrzebny na ukończenie piętnastu pełnych cykli jest automatycznie obliczany i wyświetlany w komórce Total Time (mm:ss). Kliknij tutaj, aby pobrać ten plik.
Dyskusja
C. elegans jako potężny model do badania prodromalnego Parka Parkowego
Podczas gdy większość modeli chorób neurodegeneracyjnych koncentruje sięna patologii w późnym stadium, badanie wczesnego początku choroby pozostaje technicznie wymagające. Tradycyjne modele ssaków, takie jak myszy, szczury czy naczelne, są ograniczone długimi cyklami życia i wysokimi kosztami. Nicienie mikroskopowe C. elegans przezwycięża te ograniczenia dzięki 3-tygodniowemu okresowi życia, 3-dniowemu cyklowi rozrodczemu oraz genetycznej podatności na leczenie – co czyni go idealnym systemem do efektywnych, szeroko zakrojonych badań neurodegeneracji6.
Mutant C. elegans RAC1/CED-10 zapewnia trzy kluczowe zalety w badaniu wczesnej patogenezy Parkinson. Po pierwsze, precyzyjne rozdzielenie czasowe pozwala śledzić zdarzenia neurodegeneracyjne na dobrze określonych etapach rozwojowych6. Po drugie, model oferuje wyjątkową wszechstronność eksperymentalną dzięki genetycznej łatwości obradliwości, niskim wymaganiom utrzymania oraz zgodności z wysoką przepustowością 6,7. Po trzecie, ponieważ C. elegans nie posiada endogennego homologu α-synukleiny, w tym w modelu RAC-1/CED-10, zapewnia cenną przewagę. Naukowcy mogą badać mechanizmy przedkliniczne PD bez interferencji α-synukleiny, co oznacza bardziej zaawansowane stadium6. To pozycjonuje model jako doskonałe narzędzie do badania początkowych zdarzeń patogennych oraz do późniejszej integracji ekspresji α-synukleiny w celu badania zaawansowanej patogenezy. Wreszcie, ewolucyjna konserwacja homologii CED-10 z ludzkim RAC1 zapewnia bezpośrednie znaczenie translacyjne10,20.
Model C. elegans opisany tutaj jest dobrze przystosowany do testów farmakologicznych17,21. Ponieważ mutanty RAC-1/CED-10 wykazują opóźnienie rozwojowe, oślepienie nie jest możliwe na początkowym etapie, ponieważ ich tożsamość nie może być ukryta względem dzikiego typu. W przypadku badań farmakologicznych stronniczość można jednak zminimalizować, stosując podwójnie ślepy projekt, w którym badacz zbierający dane i osoba analizująca pozostają nieświadomi wszystkich zmiennych eksperymentalnych.
Zaparcia dotykają niemal wszystkich pacjentów z Parkinsonem w fazie prodromalnej, często poprzedzając objawy ruchowe5. C. elegans oferuje wyjątkowe korzyści w badaniu tej wczesnej dysfunkcji przewodu pokarmowego. W przeciwieństwie do modeli ssaków wymagających interwencji inwazyjnych, przejrzystość i prostota nicienia umożliwiają nieinwazyjną, w czasie rzeczywistym obserwację jego wysoce stereotypowego programu motoryki defekacji – cechy kluczowej dla ilościowego określania defektów motoryki jelit. Krótki cykl życia i precyzyjna rytmiczność wypróżniania C. elegans umożliwiają szybką i powtarzalną analizę upośledzeń funkcji. U mutantów RAC1/CED-10 odchylenia w czasie wypróżniania odzwierciedlają fenotypy podobne do zaparć obserwowane u prodromalnego PD6. Te odkrycia stanowią podstawę do późniejszej walidacji u złożonych ssaków (np. myszy, naczelnych), jednocześnie bezpośrednio łącząc sygnalizację RAC1 z dysfunkcją jelitowej.
Poza mechanistycznym znaczeniem, model RAC1/CED-10 oferuje także użyteczność translacyjną. Test defekacji jest prosty, powtarzalny i skalowalny, co czyni go odpowiednim do wczesnych badań przesiewowych na obecność narkotyków. Związki normalizujące czas lub regularność cyklu mogą być szybko priorytetyzowane do testów w modelach ssaków, zapewniając opłacalny filtr dla kandydatów terapeutycznych. Ponieważ zaburzenia układu przewodu pokarmowego są powszechne w kilku schorzeniach neurodegeneracyjnych4, test ten może być stosowany także poza Parkinsonem, służąc zarówno jako narzędzie odkrywania, jak i most translacyjny do badań przedklinicznych.
Kluczowe kroki w protokole
Przedstawiamy udoskonaloną metodologię badania dysmotylności jelitowej u mutantów RAC1/CED-10, kluczowego fenotypu nieruchowego istotnego dla prodromalnego Parkinstonu. Chociaż oparty na ustalonych testach defekacji18,22, protokół ten odpowiada na unikalne wyzwania związane z mutantami RAC1/CED-10, aby zapewnić solidne i powtarzalne wyniki.
Kluczowe adaptacje dla mutantów RAC1/CED-10 są następujące:
Korekty synchronizacji: Mutanty RAC1/CED-10 wykazują mniejszą płodność w porównaniu z szczepami typu dzikiego (obserwacja osobista). Aby zrekompensować niższą wydajność potomstwa, podczas synchronizacji zastosuj następujące korekty: metoda fragmentów płytek – użyj większego inokulum, około dwukrotnie większej objętości niż szczepy typu dzikiego, aby uwzględnić zwiększoną zmienność rozwojową. Metoda dorosłych gravidów – Przenieś 15-20 dorosłych (w porównaniu do standardowych 10), aby zapewnić wystarczającą liczbę zarodków do kolejnych eksperymentów.
Wrażliwość na wybielacz: Zarodki mutantów RAC1/CED-10 wykazują zwiększoną wrażliwość na leczenie podchlorytem. Aby zminimalizować uszkodzenia, skróć czas ekspozycji na wybielacz o 20%-30% w porównaniu z protokołami typu dzikiego oraz zweryfikować integralność zarodków mikroskopowo po leczeniu.
Rozważania dotyczące opóźnienia rozwojowego: Mutanty RAC1/CED-10 dojrzewają wolniej niż dzikie robaki typu10. Aby osiągnąć właściwą synchronizację nagrań, rozpocznij analizy wideo z dzikimi robakami, aby ustalić odniesienie czasowe i rejestrować mutantów na dopasowanych etapach morfologicznych (np. morfologia sromu), a nie według wieku chronologicznym.
Uzasadnienie workflow: Przeprowadzenie wstępnych eksperymentów z dzikimi C. elegans kontrolującymi zmienność środowiskową i stanowi punkt odniesienia dla normalnych rytmów wypróżniania. Ze względu na opóźnienia rozwojowe mutantów RAC1/CED-10-10, harmonogramy nagrań powinny zostać dostosowane tak, aby priorytetowo traktować porównania etapowe (a nie ściśle wiekowe).
Specyficzne dla szczepu rozważania dotyczące czasu: Opóźnienia rozwojowe u mutantów wymagają elastycznego harmonogramu eksperymentalnego, z naciskiem na dopasowanie etapów rozwojowych między genotypami, zamiast polegać wyłącznie na wieku chronologicznym.
Ograniczenia modelu nicieni
Chociaż C. elegans nie posiada anatomicznej złożoności i redundancji szlaków charakterystycznych dla systemów ssaków – co jest ograniczeniem niektórych badań translacyjnych – jego prostota jest korzystna przy badaniu dyskretnych funkcji biologicznych. Skupienie się na motoryce jelit wykorzystuje tę siłę, ponieważ uprościona fizjologia nicienia pozwala na precyzyjną analizę konkretnych parametrów funkcjonalnych. Chociaż badania komplementarnych ssaków są niezbędne do walidacji terapeutycznej, C. elegans stanowi wyjątkową platformę do mechanistycznych badań konserwowanych procesów biologicznych21,23.
Nasz model nie zawiera również endogennej α-synukleiny, która jest korzystna do badania wczesnej, przedklinicznej choroby Parkinsona (PD), czyli etapu, w którym zaparcia mogą pojawić się jako objaw prodromalny3. Długość cyklu wypróżniania stanowi obiektywny, wysokoprzepustowy wskaźnik, ale odzwierciedla tylko jeden aspekt zaburzeń układu pokarmowego i nie jest specyficzna dla choroby.
Chociaż ten test nie obejmuje postępującej agregacji α-synukleiny, neurodegeneracji złożonej ani ogólnoustrojowych patologii związanych z wiekiem obserwowanych u ludzkiego Parkinsonu5, obserwujemy zmienioną funkcję dopaminergiczną i GABAergiczną oraz zakłóconą sygnalizację Rac16, co podkreśla mechanistyczne znaczenie tego modelu. Dlatego pozostaje cenny do analizowania wczesnych mechanizmów neuro-gajelitowych związanych z Parkinsonem oraz zachowanych szlaków.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
A.M.J. docenia stypendium doktoranckie (FPU18/05190) w ramach doktoratu z biotechnologii na Universitat Autònoma de Barcelona. AL i AMJ potwierdzają wsparcie finansowe PID2021-122645OB-100 oraz PID2024-1576370B-100 przez MCIN/AEI//10.13039/501100011033/FEDER "Una manera de hacer Europa"; program "Severo Ochoa" dla Centrów Doskonałości, w zakresie badań i rozwoju CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446 oraz europejski program badawczo-innowacyjny Horizon Europe w ramach umowy grantowej nr 101057527 (NextGEM). EDC potwierdza wsparcie z grantu na rok 2024 (PMI24006), finansowanego przez Fundació d'Estudis Superiors en Ciències de la Salut (FESS) oraz Fundació Institut de Recerca i Innovació en Ciències de la Vida i la Salut de Catalunya (IRIS-CC).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 12 dołków Wielodołkowe płytki wielodołowe, obtraktowane, sterylne | Labbox | CCPP-012-100 | |
| Agar | VWR | AAA10752-0E | Aby przygotować płyty NGM |
| Bactopeptone | VWR | 90000-264 | Aby przygotować płyty NGM |
| Bleach | Każde gospodarstwo domowe | Do procesu wybielania | |
| CaCl2 | Labkem | CACH-02P-1K0 | Aby przygotować płyty NGM |
| Wirówka Sorvall ST8 | Sorvall | 15194923 | |
| Cholesterol | Sigma-Aldrich | C8667-25G | Aby przygotować płyty NGM |
| Zegar | Windows | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Etanol | Panreac | 131086.1214 | Aby przygotować płyty NGM |
| Inkubator 20 stopni; C | Ecogen | CIR180 | |
| KH2PO4 | Sigma-Aldrich | P0662 | Aby przygotować bufor M9 |
| KPO4 | Sigma-Aldrich | P5655 + P3786 | KH2PO4 + K2HPO4; Aby przygotować płyty NGM |
| MgSO4 | Sigma-Aldrich | M7506 | Do przygotowania płyt NGM; Aby przygotować bufor M9 |
| Mikroskop | Olympus | Olympus BX51 | |
| Na2HPO4 | Sigma-Aldrich | S9763 | Aby przygotować bufor M9 |
| Na2HPO4 | Sigma Aldrich | 7558-79-4 | Aby przygotować bufor M9 |
| NaCl | Sigma-Aldrich | S5886 | Do przygotowania płyt NGM; Aby przygotować bufor M9; LB |
| NaOH | Sigma-Aldrich | 567530 | Do procesu wybielania; LB |
| Narzędzie do cięcia w Windows | Windows | V 11.2504.42.0 | |
| Trypton | CONDA | 1612 | LB |
| Ekstrakt drożdżowy | CONDA | 1702 | LB |
Bibliografia
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Przedruki i uprawnienia
