W badaniu przedstawiono protokół oceny wpływu kurkuminy na zachowanie komórek siatkówczaka poprzez modulację szlaku Wnt / β-kateniny i ekspresję miR-22.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł badawczy
Regulacja sygnalizacji Wnt / β-kateniny za pośrednictwem miR-22 przez kurkuminę w siatkówczaku
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Siatkówczak (RB) jest powszechnym nowotworem złośliwym wewnątrzgałkowym dotykającym niemowlęta i dzieci, jednak jego dokładna etiologia i patogeneza pozostają nie w pełni poznane. Kurkumina, bioaktywny polifenol, hamuje progresję guza poprzez modulację kaskady sygnalizacyjnej Wnt / β-kateniny za pośrednictwem mikroRNA. Badanie to miało na celu wyjaśnienie, w jaki sposób kurkumina pośredniczy w działaniu przeciwnowotworowym w RB poprzez zbadanie jej regulacji ekspresji miRNA-22 (miR-22) i zbadanie podstawowych mechanizmów molekularnych. Dwa zwalidowane modele siatkówczaka (SO-RB50/WERI-Rb-1) leczono kurkuminą w różnych stężeniach. Aby nakreślić regulację miR-22 sygnalizacji Wnt / β-kateniny, komórki docelowe transdukowano albo lentiwirusem mimicznym miR-22, albo niefunkcjonalnym lentiwirusem kontrolnym. Modele guza ksenoprzeszczepu stworzono u myszy przy użyciu ludzkich komórek RB w celu obserwacji wpływu kurkuminy in vivo na wielkość guza, ekspresję miR-22 i poziomy białka Wnt / β-kateniny. Proliferację, inwazję i apoptozę komórkową oceniano odpowiednio za pomocą testu podwójnego barwienia CCK-8, Transwell i Annexin V-APC-PI. Poziomy miR-22 określono ilościowo za pomocą RT-PCR, a profile ekspresji Wnt1 i β-kateniny określono za pomocą analizy Western blot. Leczenie kurkuminą spowodowało zmniejszenie proliferacji i inwazyjności w komórkach RB, przy jednoczesnym zwiększeniu apoptozy i podniesieniu ekspresji miR-22. Hamowanie miR-22 zmniejszyło wpływ kurkuminy na szlak sygnałowy Wnt / β-kateniny. W badaniach ksenoprzeszczepów kurkumina znacznie zmniejszyła rozmiar guza i zwiększyła ekspresję miR-22 w guzach, skutecznie hamując sygnalizację Wnt / β-kateniny. Odkrycia te pokazują, że kurkumina hamuje proliferację i inwazyjność komórek RB, jednocześnie promując apoptozę, głównie za pośrednictwem regulacji w górę miR-22, a następnie hamowania szlaku Wnt / β-kateniny.
Wprowadzenie
Retinoblastoma (RB), nowotwór złośliwy u dzieci o wysokiej agresywności powstający w tkankach siatkówki, stanowi poważne zagrożenie dla zdrowia, zwłaszcza dla dzieci poniżej piątego roku życia. Mutacje genetyczne, szczególnie te dotyczące genu RB1, są ściśle związane z rozwojem tej choroby1. Biorąc pod uwagę znaczne rozpowszechnienie siatkówczaka (RB) wśród niemowląt i dzieci, w połączeniu z faktem, że rocznie zgłasza się około 9000 nowych przypadków, głównie w krajach o niskich dochodach i rozwijających się, kompleksowe zrozumienie mechanizmów choroby jest niezbędne do opracowania skutecznych strategii terapeutycznych i poprawy wyników leczenia pacjentów2. Przez lata badania nad RB koncentrowały się przede wszystkim na zmianach genomowych, w szczególności na ekspresji miRNA3. Z pewnością miR-34a i miR-22 okazały się istotnymi graczami w nowotworzeniu RB 4,5. Wśród tych miRNA, miR-22 wykazał swój udział w nowotworzeniu różnych nowotworów 6,7,8, wpływając na proliferację, inwazję i migrację 6,9. Co więcej, wcześniejsze badania wykazały zmniejszoną ekspresję miR-22 zarówno w mysich, jak i ludzkich liniach komórkowych RB, co jeszcze bardziej podkreśla jego potencjalną rolę w tej chorobie10.
Kurkumina, główny bioaktywny kurkuminoid w kłączach Curcuma longa, jest podstawowym składnikiem tradycyjnej medycyny i kuchni azjatyckiej11. Jego bogaty profil farmakologiczny, obejmujący działanie przeciwnowotworowe, przeciwbakteryjne, przeciwzapalne, przeciwutleniające i neuroprotekcyjne, przyciągnął znaczną uwagę w badaniach biomedycznych 12,13,14. Liczne badania badały jego rolę przeciwnowotworową w RB, podkreślając jego wpływ na różne szlaki sygnałowe, w tym NF-κB15, JAK/STAT16 i MRP117. W porównaniu z tymi wcześniej badanymi szlakami, oś kurkumina-miR-22/Wnt/β-katenina może oferować bardziej ukierunkowane i specyficzne podejście, potencjalnie poprawiając skuteczność terapeutyczną i zmniejszając efekty niedocelowe.
Wcześniejsze badania sugerowały, że kurkumina osiąga działanie przeciwnowotworowe poprzez modulację osi szlaku sygnałowego TET1 / Wnt / β-kateniny w komórkach raka wątrobowokomórkowego18 i raku okrężnicy19. Jednak to, czy kurkumina może hamować progresję guza w komórkach RB poprzez wpływ na szlak sygnałowy Wnt / β-kateniny, pozostaje nieznane. Ostatnie badania wykazały zmniejszoną ekspresję miR-22 w komórkach siatkówczaka i raku płaskonabłonkowym jamy ustnej związaną ze zmianami w aktywności szlaku sygnałowego Wnt / β-kateniny 20,21. Biorąc pod uwagę praktyczne zastosowanie, kurkumina wykazuje skuteczne działanie przeciwnowotworowe w określonym zakresie stężeń (10-40 μM in vitro)15,22 i może być podawana in vivo z możliwymi do opanowania właściwościami farmakokinetycznymi, co ułatwia badania translacyjne. Dlatego badanie to ma na celu ustanowienie modelu RB w celu zbadania, czy kurkumina zwiększa poziom miR-22, a następnie zmniejsza aktywność sygnalizacyjną Wnt / β-kateniny, zapewniając potencjalnie bardziej skuteczną i klinicznie istotną strategię terapeutyczną w porównaniu z konwencjonalnymi podejściami do modulacji NF-κB, JAK/STAT lub MRP1.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie procedury z udziałem zwierząt zostały sprawdzone i zatwierdzone przez Komitet ds. Etyki i Dobrostanu Zwierząt (AEWC) Szpitala Okulistycznego w Tianjin (nr zatwierdzenia. NKYY-DWLL-2023-054). Odczynniki i używany sprzęt są wymienione w Tabeli Materiałów.
1. Hodowla komórkowa
Komórki ludzkich linii siatkówczaka WERI-Rb-1 i SO-RB50 hodowano w zmodyfikowanym pożywce Eagle firmy Dulbecco o wysokiej zawartości glukozy, uzupełnionej 10% płodowej surowicy bydlęcej i 1% penicyliny-streptomycyny. Komórki wysiewano w odpowiedniej gęstości w kolbach hodowlanych i utrzymywano w temperaturze 37 °C w wilgotnej atmosferze zawierającej %CO2 . Pożywkę wymieniano co 2-3 dni, a komórki pasażowano przy zbieganiu 70%-80% przy użyciu standardowej trypsynizacji.
2. Doświadczenia na zwierzętach
W sumie wykorzystano 48 wolnych od specyficznych patogenów nagich myszy Balb/c (4 tygodnie, 16-18 g). Zwierzęta trzymano w sterylnych, indywidualnie wentylowanych klatkach pod laminarnym przepływem powietrza w kontrolowanych warunkach środowiskowych 26-28 °C i wilgotności względnej 40%-60%. Pasza, woda i ściółka były sterylizowane przed użyciem. Myszy miały swobodny dostęp do pożywienia i wody i były aklimatyzowane przez tydzień przed eksperymentami.
3. Grupowanie zwierząt i traktowanie zwierząt
Do inokulacji guza użyto komórek WERI-Rb-1 i SO-RB50 stabilnie transfekowanych mimikiem miR-22 lub sekwencją kontroli negatywnej. Komórki w logarytmicznej fazie wzrostu zebrano, ponownie zawieszono w sterylnym roztworze soli fizjologicznej buforowanej fosforanami i dostosowano do gęstości 5 × 10⁷ komórek/ml. Każdej myszy wstrzyknięto podskórnie 0,1 ml zawiesiny do prawej kończyny przedniej. Myszy zostały losowo podzielone na sześć grup (n = 6 na grupę): grupa modelowa, grupa kurkuminy, grupa mimiczna 22, grupa miR-22 mimiczna + kurkumina, grupa kontroli negatywnej miR-22 i grupa kontroli negatywnej miR-22 + kurkumina. W grupach otrzymujących kurkuminę myszom podawano dootrzewnowe zastrzyki 15 mg/kg kurkuminy raz dziennie, zaczynając natychmiast po inokulacji komórek nowotworowych. Pozostałe grupy otrzymały równe ilości DMSO jako kontrolę pojazdu.
4. Pomiar masy i objętości guza
Wskaźnik wchłaniania guza wynosił około 80%-90% u ksenoprzeszczepionych nagich myszy. Wielkość guza mierzono co tydzień za pomocą suwmiarki cyfrowej, przy czym najdłuższą średnicę zarejestrowano jako długość (L), a najkrótszą średnicę zarejestrowano jako szerokość (W). Objętość guza obliczono za pomocą wzoru V = (L × W2)/2. Myszy były regularnie monitorowane pod kątem wzrostu guza i stanu zdrowia, a humanitarne punkty końcowe stosowano, jeśli guzy przekraczały 1500mm3 lub jeśli zwierzęta wykazywały oznaki niepokoju lub utraty wagi. Pod koniec 4 tygodnia myszy zostały poddane eutanazji przez wdychanie CO2 , a następnie zwichnięcie szyjki macicy w celu zapewnienia śmierci. Guzy zostały wypreparowane i zważone natychmiast po usunięciu.
5. Transfekcja mikroRNA
Do transfekcji użyto syntetycznych oligonukleotydów, w tym mimika miR-22, kontroli negatywnej, anty-miR-22 (modyfikowanej 20-metoksy), kontroli negatywnej anty-miR, siRNA specyficznych dla Wnt1 i kontrolnego siRNA. Komórki przy zbieganiu 70%-80% wysiewano na płytkach 6-dołkowych na dzień przed transfekcją. Transfekcję przeprowadzono przy użyciu odczynnika na bazie lipidów zgodnie z instrukcjami producenta. Dla każdej studzienki kwasy nukleinowe rozcieńczano w pożywce bez surowicy i łączono z odczynnikiem do transfekcji w zalecanym stosunku, tworząc kompleksy, które inkubowano przez 15-20 minut w temperaturze pokojowej przed dodaniem kroplami do komórek w kompletnym pożywce. Ostateczna objętość na studzienkę wynosiła 2 ml. Po 6 godzinach inkubacji w temperaturze 37 °C z 5% CO2 pożywkę zastąpiono świeżą kompletną pożywką. Komórki utrzymywano przez 48 godzin przed kolejnymi testami. Skuteczność transfekcji oceniano za pomocą ilościowego PCR w czasie rzeczywistym. Trzy różne siRNA ukierunkowane na Wnt1 (si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3'; si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTGCTA-3'; si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCACAACAA-3') stosowano indywidualnie lub jako mieszaninę równomolową w celu zminimalizowania efektów niedocelowych.
6. Test do liczenia komórek Kit-8 (CCK-8)
Komórki wysiewano na 96-dołkowych płytkach o gęstości 5 × 10³ komórek na dołek w 100 μl kompletnej pożywki i pozostawiono do przylegania na noc. Po potraktowaniu kurkuminą o wskazanych stężeniach przez określony czas, 10 μl roztworu roboczego CCK-8 dodano bezpośrednio do każdej studzienki. Studnie zawierające samo pożywkę służyły jako ślepe próby kontrolne. Płytki inkubowano w temperaturze 37 °C z 5% CO2 przez 4 godziny, po czym zmierzono absorbancję przy 490 nm za pomocą czytnika mikropłytek. Żywotność komórek obliczono w następujący sposób:
Rentowność (%) = 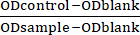 x 100
Wygenerowano krzywe dawka-odpowiedź i odpowiednio określono połowę maksymalnego stężenia hamującego (IC50) kurkuminy.
7. Test Transwell
Do testu migracji komórki zawieszono w pożywce bez surowicy i wysiano do górnych komór wkładek Transwell (wielkość porów 8 μm) w ilości 3 × 10⁵ komórek po 200 μl na wkładkę. Dolne komory wypełniono 600 μl kompletnej pożywki zawierającej 10% płodowej surowicy bydlęcej jako chemoatraktantu. Płytki inkubowano w temperaturze 37 °C z 5% CO2 przez 24 godziny. Po inkubacji niemigrujące komórki znajdujące się na górnej powierzchni błony delikatnie usunięto sterylnym wacikiem. Wkładki przepłukano dwukrotnie solą fizjologiczną buforowaną fosforanami, utrwalono w 5% aldehydzie glutarowym w temperaturze 4 °C przez 30 min, ponownie przepłukano i zabarwiono 0,1% fioletem krystalicznym przez 30 min w temperaturze pokojowej. Nadmiar barwnika został usunięty przez pranie w PBS. Błony pozostawiono do wyschnięcia na powietrzu, a migrujące komórki wizualizowano pod odwróconym mikroskopem w powiększeniu 400×. W celu kwantyfikacji zobrazowano trzy losowe pola na wstawkę i obliczono średnią liczbę komórek.
8. Test V-APC-PI załącznika
Komórki z każdej grupy zebrano, dwukrotnie przemyto wstępnie schłodzonym roztworem soli fizjologicznej buforowanej fosforanami (PBS) i odwirowano w temperaturze 300 × g przez 5 minut w temperaturze 4 °C. Osad zawieszono ponownie w 300 μl buforu wiążącego 1× o gęstości około 1 × 10⁶ komórek/ml. Dodano aneksynę V-APC (5 μl), a próbki inkubowano przez 15 minut w temperaturze pokojowej w ciemności. Bezpośrednio przed cytometrią przepływową 5 μl jodku propidyny dodano do 200 μl zawiesiny komórkowej i inkubowano przez 5 minut w temperaturze pokojowej. Próbki analizowano na cytometrze przepływowym przy użyciu odpowiednich kanałów (APC i PI), a dane przetwarzano za pomocą standardowych strategii bramkowania w celu rozróżnienia żywych, wczesnych komórek apoptotycznych, późnych apoptotycznych i martwiczych.
9. Profilowanie qRT-PCR
Całkowite RNA wyekstrahowano metodą fenolowo-chloroformową, a stężenie i czystość określono za pomocą spektrofotometrii ultrafioletowej. Do odwrotnej transkrypcji użyto 1 μg całkowitego RNA w reakcji 20 μl z główną mieszanką odwrotnej transkrypcji zgodnie z protokołem producenta. Ilościowy PCR przeprowadzono w 20 μl reakcji zawierających 2 μl cDNA, 10 μl mieszanki SYBR Green master i 0,4 μM każdego startera. Reakcje prowadzono w systemie PCR w czasie rzeczywistym z następującym programem cykli: 95 °C przez 1 minutę, a następnie 40 cykli po 95 °C przez 15 s i 63 °C przez 25 s, z akwizycją fluorescencji na końcu każdego cyklu. Przeprowadzono analizę krzywej topnienia w zakresie od 55 °C do 95 °C w celu sprawdzenia specyfiki produktu. Każdą próbkę analizowano trzykrotnie, a względną ekspresję określono ilościowo przy użyciu metody 2-ΔΔCt. U6 służył jako gen referencyjny do kwantyfikacji mikroRNA, a β-aktyna była używana do normalizacji mRNA.
Sekwencje starterów były następujące: U6: naprzód 5'-CTCGCTTCGGCAGCACA-3', odwrotna 5'-AACGCTTCACGAATTTGCGT-3'; miR-22: do przodu 5'-GCCTGAAGCTGCCAGTTGA-3', do tyłu 5'-GTGCAGGGTCGAGGT-3'; Wnt1: do przodu 5'-CGATGGTGGGGTATTGTGAAC-3', do tyłu 5'-CCGGATTGGCGTATCAGAC-3'; β-aktyna: do przodu 5'-AGTGTGACGTGGACATCCGCAAAG-3', do tyłu 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. Dane dotyczące wzmocnienia zostały przetworzone za pomocą oprogramowania systemowego. Wszystkie podkłady zostały pozyskane od komercyjnego dostawcy.
10. Western blot
Białka ekstrahowano z hodowanych komórek lub tkanek za pomocą buforu do lizy zawierającego inhibitory proteazy, a stężenia białek oznaczono metodą kwasu bicynkowego. Równe ilości białka (40 μg na linię) oddzielono 10% SDS-PAGE pod stałym napięciem (80 V dla żelu do układania w stosy i 120 V dla żelu rozdzielczego) i przeniesiono do membran z polifluorku winylidenu za pomocą mokrego systemu transferowego przy napięciu 100 V przez 90 minut. Błony zablokowano w 5 % odtłuszczonym mleku przygotowanym w soli fizjologicznej buforowanej Tris z 0,1 % Tween-20 (TBST) przez 1 godzinę w temperaturze pokojowej. Pierwszorzędowe przeciwciała przeciwko Wnt1, β-kateninie i β-aktynie rozcieńczono w stosunku 1:1000 w TBST zawierającym 1% odtłuszczonego mleka i inkubowano z błonami przez noc w temperaturze 4 °C. Po trzykrotnym przemyciu TBST (po 10 minut każda), błony inkubowano z przeciwciałem drugorzędowym sprzężonym z peroksydazą chrzanową (rozcieńczenie 1:5000) przez 1 godzinę w temperaturze pokojowej. Po kolejnych trzech płukaniach TBST, prążki białkowe zostały zobrazowane za pomocą ulepszonego odczynnika do wykrywania chemiluminescencji, a sygnały zostały przechwycone za pomocą cyfrowego systemu obrazowania. Intensywność pasma określono ilościowo za pomocą oprogramowania ImageJ.
11. Test lucyferazy
Skonstruowano plazmid reporterowy typu dzikiego (Wnt1-WT) zawierający 3′UTR Wnt1 z przewidywanymi miejscami wiązania miR-22 oraz zmutowany reporter (Wnt1-MUT) z zakłóconymi miejscami wiązania. Ludzkie komórki siatkówczaka wysiewano na 24-dołkowych płytkach o gęstości 1 × 10⁵ komórek na dołek i kotransfekowano plazmidami reporterowymi Wnt1-WT lub Wnt1-MUT wraz z mimiką miR-22 lub kontrolą ujemną przy użyciu odczynnika do transfekcji na bazie lipidów. Dla każdej studzienki użyto 500 ng plazmidu reporterowego i 50 nM mimiki miRNA lub kontroli. Po 48 godzinach inkubacji w temperaturze 37 °C z 5 % CO2 komórki poddano lizie w 100 μl pasywnego buforu do lizy. Aktywność lucyferazy świetlików i renili mierzono sekwencyjnie przy użyciu systemu testów reporterowych z podwójną lucyferazy, zgodnie z protokołem producenta. Aktywność lucyferazy świetlików znormalizowano do aktywności lucyferazy Renilla w celu kontroli wydajności transfekcji. Każdy warunek został przetestowany w trzech studzienkach i powtórzony w trzech niezależnych powtórzeniach biologicznych.
12. Analiza statystyczna
Wszystkie dane przedstawiono jako średnią ± odchylenie standardowe (SD) z co najmniej trzech niezależnych kontrprób biologicznych. Analizy statystyczne przeprowadzono przy użyciu oprogramowania statystycznego. Porównania między wieloma grupami przeprowadzono za pomocą jednokierunkowej analizy wariancji (ANOVA), a następnie testu post hoc Tukeya. Wartość p wynosząca <0,05 została uznana za statystycznie istotną.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Zależne od dawki antyproliferacyjne i przeciwinwazyjne działanie kurkuminy na ludzkie komórki siatkówczaka, któremu towarzyszy dezaktywacja szlaku Wnt / β-kateniny
Ludzkie komórki RB traktowano różnymi dawkami kurkuminy przez okres 24 godzin. Odkrycia ujawniły zależny od dawki spadek żywotności i inwazji komórek, w połączeniu ze wzrostem apoptozy. W szczególności, gdy stężenie kurkuminy wzrosło z 10 do 50 μM, proliferacja komórek zmniejszała się stopniowo zarówno w liniach komórkowych SO-Rb50, jak i W...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Kurkumina, polifenol pochodzący z kłączy Curcuma longa, jest znana ze swoich właściwości przeciwzapalnych, antyangiogennych, antyproliferacyjnych i przeciwutleniających23,24. Dodatkowo ma właściwości przeciwnowotworowe, w szczególności zdolność do indukowania apoptozy w komórkach nowotworowych25. Chociaż wcześniejsze badania podkreślały hamujące wzrost działanie kurkuminy na komórki RB 22,26,27, nadal istnieje ograniczone zrozumienie dokła...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do zadeklarowania konfliktu interesów.
Podziękowania
Chińska Narodowa Fundacja Nauk Przyrodniczych (82271218); Fundusz Naukowy Szpitala Okulistycznego w Tianjin (projekt ogólny ykyb1908).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Zestaw do podwójnego barwienia Annexin V-APC/PI | Solarbio (Słoneczna Biologia) | Zobacz materiał CA1020 | ilościowa ocena apoptozy w komórkach RB za pomocą cytometrii przepływowej |
| Zestaw testowy CCK-8 | Beyotime | Zobacz materiał C0038 | Pomiar absorbancji przy długości fali 490 nm w celu oceny zdolności proliferacyjnej komórek |
| Inkubator CO2 | Eppendorf powiedział: | utrzymywać optymalne warunki hodowli (37° C, 5% CO2 i wilgotność nasycona) do propagacji komórek RB | |
| Kurkumina | Sigma | Zobacz materiał C1386 | Badanie przeciwnowotworowego działania kurkuminy na siatkówczaka (RB) |
| Podłoże chemiluminescencyjne ECL | Życiorys (Życiorys) | Nr kat. C05-07004 | wizualizacja pasm białkowych w analizie Western blot |
| Płodowa surowica bydlęca (FBS) | Komórka VivaCell | C04001-500 C04002-500 | Hodowla komórkowa |
| Cytometria przepływowa | Beckman Coulter | Gallios (Wyspa Gallios) | Ilościowa analiza szybkości apoptozy komórek |
| Oprogramowanie ImageJ | Narodowe Instytuty Zdrowia | Wersja 6 | Analiza pasma Western blot, ocena poziomów ekspresji białek |
| Mikroskop odwrócony | Olympus | CKX53 powiedział: | obserwuj i licz komórki inwazyjne 400 razy; powiększenie w teście Transwell |
| Lipofektamina 3000 | Invitrogen | L3000015 | Transfekcja komórek |
| Czytnik mikropłytek | Thermo | Zobacz materiał K3 | kwantyfikacja testu immunoenzymatycznego (ELISA) |
| miR-22 naśladuje lentiwirusa | Hanheng Biotechnologia | has-miR-22 powiedział: | ustanowić stabilnie transfekowaną linię komórkową do doświadczeń na zwierzętach |
| Multipleksowy system PCR w czasie rzeczywistym | Bio-Rad | Zobacz materiał CFX384 | wykonać ilościowy RT-PCR (QRT-PCR) w celu precyzyjnej analizy ekspresji genów |
| Penicylina-Streptomycyna (PS) | Abbkine powiedział: | BMC1030 | Dodawany do pożywek do hodowli komórkowych w celu zapobieżenia skażeniu bakteryjnemu |
| Zestaw do ekstrakcji białek | Solarbio (Słoneczna Biologia) | Zobacz materiał BC3640-50T | izolacja białek z próbek komórkowych i tkankowych |
| Wektor psiCHECK-2 | promega powiedział: | JR20110328 | skonstruować plazmidy reporterowe Wnt1-WT (typ dziki) i Wnt1-MUT (zmutowany) do badania interakcji między miR-22 a Wnt1 3'UTR |
| Membrana PVDF | Merck | ISEQ00010 | białkiem |
| Przeciwciało drugorzędowe królika IgG | Technologie sygnalizacji komórkowej | 14708 | Wykrywanie Western blot poprzez wiązanie się z przeciwciałem pierwszorzędowym |
| Oprogramowanie statystyczne SPSS | IBM | SPSS 20.0 | przeprowadzanie analizy statystycznej na danych eksperymentalnych |
| Zestaw SuperScript III do syntezy pierwszej nici SuperMix | Invitrogen | 11752-050 | odwrotna transkrypcja RNA do cDNA w celu późniejszej analizy RT-PCR |
| Zestaw SYBR Premix Ex Taq II | Życiorys TaKaRa | Przekaźnik RR820A | Do RT-PCR do ilościowego wykrywania ekspresji Wnt1, β-aktyny i innych genów docelowych |
| Odczynnik TRIzol | Invitrogen | 12183-555 | Ekstrakcja RNA zarówno z próbek komórkowych, jak i tkankowych |
| Spektrofotometr UV | Beckman | DU800 | określić stężenie i czystość próbek RNA |
| Przeciwciało Wnt1 | Księga Abcam | ab15251 powiedział: | Analiza Western blot w celu wykrycia ekspresji białka Wnt1 |
| β-aktyna przeciwciało | Księga Abcam | ab8227 powiedział: | używany jako wewnętrzne odniesienie do normalizacji obciążenia białkami w analizie Western blot |
| β-katenina przeciwciało | Technologie sygnalizacji komórkowej | 37447 | Analiza Western blot w celu wykrycia ekspresji białka beta;-kateniny |
Bibliografia
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.