Niniejszy artykuł przedstawia protokół hodowli neuronów receptorów węchowych, umożliwiający długoterminowe przeżycie i różnicowanie. To podejście stanowi alternatywę dla bardzo wymagających nagrań in situ poprzez wykorzystanie dysocjacji enzymatycznej i mechanicznej z techniką hodowli kolumnowej wiszącej, umożliwiając badania funkcjonalne, takie jak nagrania patch-clamp.
Artykuł metodologiczny
Pierwotne kultury neuronów receptorów węchowych
W tym artykule
Podsumowanie
Streszczenie
Owady krytycznie polegają na węchu w wielu zachowaniach związanych z godami, żerowaniem i interakcjami społecznymi. Wyewoluowały one wysoce czułe neurony receptorów węchowych (ORN). Chociaż do analizy profilu odpowiedzi, właściwości kodujących i fizjologii tych komórek często stosuje się zapisy in situ zewnątrzkomórkowe, szczegółowa analiza ich szlaków sygnału wymaga nagrań typu patch-clamp. Aby ułatwić stosowanie tej techniki elektrofizjologicznej oraz dobrą kontrolę składu roztworów ORN wewnątrzkomórkowych i zewnętrznych, artykuł ten opisuje protokół hodowli ORN owadów. Ponieważ owadzi ORN są ściśle otoczone komórkami pomocniczymi, co uniemożliwia ostrą dysocjację dorosłych ORN i bezpośredni dostęp do ich błon, protokół ten opisuje rozwarstwienie komórek czułkowych z poczwarek, przed różnicowaniem ORN. Rozwijające się czułki są enzymatycznie i mechanicznie dysocjowane, a następnie hodowane do góry nogami za pomocą "techniki wiszącej kolumny" w warunkowanym nośniku, który wspiera różnicowanie i przeżywalność ORN przez kilka tygodni. ORN hodowane tą metodą nadają się do testów funkcjonalnych, takich jak nagrania patch-clamp.
Wprowadzenie
Owady w dużej mierze polegają na węchu, aby poruszać się w otoczeniu, lokalizować źródła pożywienia, identyfikować partnerów i unikać drapieżników 1,2. Ich system węchowy jest niezwykle wydajny i precyzyjnie dostrojony, umożliwiając wykrywanie szerokiego zakresu lotnych sygnałów chemicznych o wysokiej czułości i swoistości3. Substancje zapachowe są przede wszystkim wykrywane przez neurony receptorów węchowych (ORN), które znajdują się w sensilla umieszczonych na czułkach, głównych narządach węchowych, a także na palpach szczękowych, które pełnią funkcję wtórnych struktur węchowych u Diptera, takich jak komary i Drosophila4.
Aby zbadać molekularne mechanizmy leżące u podstaw transdukcji sygnału węchowego, nieoceniony jest bezpośredni dostęp elektrofizjologiczny do poszczególnych ORN. Rejestracja patch-clamp, złoty standard w neurofizjologii, pozwala na szczegółową funkcjonalną charakterystykę kanałów jonowych, receptorów i szlaków sygnalizacji. Możliwe są nagrania in situ patch-clamp z ORN owadów, ale technicznie trudne ze względu na niewielki rozmiar, gęste upakowanie w komórkach pomocniczych oraz otoczkowanie skórkowe tych neuronów. Trudności te zostały przezwyciężone przez łatanie wytłoczonych zewnętrznych dendrytów z olbrzymiej saturnidowej Antheraea polyphemus5 lub łatanie ORN z półnienaruszonego lub wycięcia czułkowego w Drosophila 6,7. Chociaż nagrania in situ umożliwiają rejestrację neuronów normalnie zróżnicowanych, te podejścia stanowią poważne trudności techniczne, podkreślając potrzebę alternatywnych metod zapewniających bardziej dostępne warunki eksperymentalne.
Ten artykuł opisuje solidny protokół hodowli ORN z anten. Protokół wydaje się mieć zastosowanie do szerokiego zakresu motyli (Lepidoptera), choć nie został jeszcze przetestowany na innych grupach owadów. Metoda ta umożliwia utrzymanie i wzrost ORN in vitro, zapewniając tym samym bezpośredni dostęp do tych komórek do badań patch-clamp8, 9, 10 oraz badań farmakologicznych i obrazowych. Ten system hodowli stanowi cenną platformę do funkcjonalnej analizy szlaków transdukcji węchowej oraz zaangażowanych składników molekularnych, omijając wiele ograniczeń związanych z rejestracją in situ.
Protokół
Nie są wymagane oświadczenia etyczne i zgodności w badaniach z udziałem owadów. Pierwotne kultury owadów ORN opisano na tytoniowej Manduca sexta (Lepidoptera, Sphingidae)11, pszczołe miodnej Apis mellifera12 oraz kapustnej Mamestra brassicae (Lepidoptera, Noctuidae)13. Opisane protokoły wykazują pewne podobieństwa (rozwarstwienie od stadium poczwarki) oraz różnice (podłoże hodowlane, powierzchnia wzrostu). Opisany tutaj protokół został z powodzeniem stosowany bez modyfikacji do hodowli ORN z kilku gatunków: M. brassicae, Spodoptera littoralis, Bombyx mori i Agrotis ipsilon. Wszystkie etapy wykonywane są pod laminarnym przepływem (sekcje 2 do 8 mają być wykonywane aseptycznie).
1. Owady
- Larwy tylne S. littoralis (Lepidoptera: Noctuidae) stosują sztuczną dietę i utrzymują je w temperaturze 22-24 °C, wilgotności względnej 60-70% oraz w cyklu światło-ciemność 16:8 godzin, jak opisano wcześniej14.
- Oddziel samce i samice na etapie poczwarki. Po wykluciu trzymaj dorosłe samce osobno od samic w plastikowych pudełkach i zapewnij im swobodny dostęp do roztworu sacharozy 20%.
- Codziennie zbieraj nowe poczwarki i utrzymuj je w temperaturze 22 °C. W takich warunkach poczwarkownictwo trwa 14-16 dni. Przeprowadzaj eksperymenty na samcach lub samicach.
2. Przygotowanie warunkowego medium kultury Łaski
UWAGA: Medium Grace's używane do hodowli ORN jest warunkowane linią komórkową Manduca sexta (MRRL-CH115; linia komórkowa dostępna jest na życzenie). Podhodowla komórek MRRL-CH1 co 3 tygodnie (około 80% współbycia) w temperaturze 20 °C pod normalnym powietrzem. Nie pozwól, by komórki przekroczyły 90% konfluentności, ponieważ prowadzi to do odwarstwienia komórek i zwiększonego poziomu śmierci komórek. W każdym fragmencie wykonaj następujące kroki.
- Delikatnie odłącz przylegające komórki od dolnej powierzchni jednej kolby za pomocą pipety 10 mL.
- Rozłóż 1,5 mL zawiesiny komórkowej w 4 kolbkach i dodaj 6,2 mL podłoża Grace z dodatkiem 10% surowicy płodowej bydła (FBS) do każdej kolby.
- Dwa dni po przepuszczeniu komórek, jeśli nie ma skażenia w ostatnich przygotowanych kolbach, należy pobrać podłoże hodowlane z pozostałych 3 kolb z poprzedniego przejścia. Przefiltruj (0,2 μm) i przechowuj podłoże Grace's w temperaturze 5 °C. Używaj go do 6 miesięcy.
3. Przygotowanie papainu
UWAGA: Papaina musi być przechowywana w skoncentrowanych alikwotach (100 mL przy 10 mg/mL) i w temperaturze -80 °C, aby zminimalizować utratę aktywności enzymatycznej w czasie. Dlatego aliquoty rozpuszczalników papainy muszą być przygotowywane osobno. Kwas etylendiaminetetraoctowy (EDTA) i L-Cysteina dodaje się do aktywnej papainy16. Po zmieszaniu z papainą, ich końcowe stężenie wynosi 0,5 mM EDTA, 1 mM cysteiny oraz 1 mg/mL papainy (~10 U/mL).
- Alikwoty papainy: Rozcieńczona papaina (25 mg) w 2,5 mL sterylnego roztworu Hanks Balanced Salt Solution (HBSS) z 20% glicerolem. Trzymaj go w alikwotach 100 μL przy -80 °C.
- Alikwoty rozpuszczalnika papainu: Pipeta 27 mL manitolu i dostosuj ciśnienie osmotyczne do 380 mOsmol/L z mannitolem. Dodaj 5,6 mg EDTA i 5,3 mg L-Cysteiny. Reguluj pH do 6,7. Sterylizuj za pomocą filtrów o niskim wiązaniu 0,2 μm. Utrzymuj ją w alikwotach 900 μL w temperaturze -20 °C.
4. Przygotowanie mediów kulturowych
UWAGA: Wszystkie media są sterylne. Sterylizacje przeprowadza się przy użyciu sterylnych filtrów o pojemności 0,2 μm.
- 3+2 średni:
- Dodaj 3 części pożywki Leibovitza (16,4 mL), 2 części pożywki Grace (11 mL) oraz 2% penicylin-streptomycyny (0,6 mL) do probówki o pojemności 30 mL. Sreguluj ciśnienie osmotyczne do 370 mOsmol/L (około 150 mg mannitolu) i pH do 6,7 (NaOH 1 M).
- Z uzyskanych 28 mL medium 3+2 przefiltruj i przelej 5 mL do rurki 7 mL. Dodaj kilka kryształów fenylomocuru (około 1-2 mg) do pozostałych 23 mL podłoża 3+2, a następnie sterylizuj i przelać 1,5 mL do probówki 7 mL (probówka #1) oraz do 6 szalek Petriego, które później użyto do rozcinania poczwarek, a następnie nazywanych poniżej "naczyniami do sekcji".
UWAGA: Fenylotiomoczor hamuje aktywność oksydazy 17,18,19, co skutkowałoby czernieniem tkanek czułkowych.
- Średni 3+2 w kondycji:
- Dodaj 67 mg manitolu do probówki 30 mL oraz 9 ml podłoża i filtra Leibovitza (0,2 μm). Następnie dodaj 2 części medium Grace conditioned Grace.
- Dostosuj ilość mannitolu do ciśnienia osmotycznego w ośrodku Leibovitza i Grace'a, tak aby ciśnienie osmotyczne w warunkowanym ośrodku 3+2 wynosiło 370 ± 15 mOsmol/L (rurka #2).
- Medium HBSS: Dodaj 12 mL HBSS i 0,25 mL penicylin-streptomycyny. Dostosować ciśnienie osmotyczne do 370 mOsmol/L (około 216 mg mannitolu), pH do 6,7 (HCl 1 M) i wysterylizować (probówka #3).
- Medium HBSS-EGTA: Dodaj 2 mg etylenglikol-bis (β-aminoetyloeter)-N,N,N,N′,N′-tetraoctowego kwasu (EGTA) oraz 2 mL wcześniej przygotowanego roztworu HBSS do probówki 7 mL. Ustawiam pH do 6,7 (NaOH 1 M) i sterylizuję (probówka #4).
5. Sekcja poczwarek (Rysunek 1)
UWAGA: Okresowo czyść kleszcze 70% etanolem i chłonnym papierem, a następnie szybko je podpalać. Sekcja na czarnym tle ułatwia wizualizację anteny.
- Przepłukaj poczwarki mające 2,5 do 3 dni pod wodą z kranu, a następnie wodą destylowaną.
- Wprowadź 20-25 poczwarek w szalce Petriego pod laminarnym kapturem.
- Pod maską zapal 2 zlewki. Jedną napełnij 70% etanolem, a drugą sterylną (autoklawowaną) wodą destylowaną.
- Weź 4 poczwarki z kleszczemi, zanurz je przez około 10 sekund w etanolu 70%, a następnie w sterylnej wodzie destylowanej i przelej do pokrywy szalki Petriego do sekcji.
- Przetnij kutikulę wokół każdej anteny za pomocą kłączek płomienia i przenieś parę czułek do anteny do rozcinania wypełnionej medium 3+2 (Rysunek 1A,B).
- W ośrodku 3+2 usuń wszystkie tkanki pokrywające rurki, gdzie zachodzi rozwój czułki, tak aby pozostały tylko antena i poczwarka (Rysunek 1C), a następnie przenieś czułki (Rysunek 1D) do nowej anteny wypełnionej ośrodkiem 3+2.
UWAGA: Rysunek 1E-J przedstawia obrazy procesu sekcji. - Otwórz rurkę, w której rozwija się antena, delikatnymi kleszczami i delikatnie usuń antenę. Usunięcie każdej anteny w jednym kawałku ułatwia dalsze płukania (kroki 7.1-7.9), ponieważ są bardziej podatne na zapadanie się na dno rurki.
- Używając sterylnej pipety Pasteura, zasysaj trochę medium z miseczki i wypchnij je z powrotem do naczynia, aby zwilżyć wewnętrzną powierzchnię pipety. Pomaga to zmniejszyć tendencję czułek do przyklejania się do szkła wewnątrz pipety. Następnie przenieś rozcięte czułki pipetą do rurki 7 mL wypełnionej 1,5 mL 3+2 (rurka #1).
- Powtórz kroki 5.4–5.8 dla 20 poczwarek i zbierz 20 par czułków w rurce #1.
6. Przygotowanie szalek Petriego
UWAGA: Komórki czułkowe hodowane są techniką wiszących kolumn20. Wymaga to przygotowania szalek Petriego. Można to zrobić wcześniej.
- Wycinam kawałki szkła (6-7 mm × 6-7 mm) ze szkiełka. Trzymaj je w etanolu.
- Pod maską podpal kawałki szkła, natychmiast zanurz je w sterylnej (autoklawowanej) wazelinie (np. wazelinie) i umieść w szalkach Petriego, jak pokazano na Rysunku 2A.
7. Dysocjacja i powłoka komórek
UWAGA: W przypadku wymienionych ośrodków opisanych poniżej ważne jest, aby usunąć jak najwięcej medium za pomocą sterylnej pipety Pasteura, nie usuwając przy tym tkanki czułkowej. Ramię źródła zimnego światła pomaga wyraźniej zobrazować anteny unoszące się w ośrodku. Dysocjacja enzymatyczna i mechaniczna trituracja przeprowadza się sekwencyjnie, a nie jednocześnie, aby uniknąć wirowania komórek czułkowych w celu usunięcia papainy.
- Umieść papainę aliquot i rozpuszczalnik papainowy w temperaturze pokojowej.
- Zamień medium 3+2 w rurce #1 na antenę rozciętą na 1 mL HBSS (z rury #3) i odczekaj 10 minut.
- Zamień podłoże HBSS na 1 mL HBSS-EGTA (z probówki #4) i odczekaj 5 minut.
- Zamień HBSS-EGTA medium na 1 mL HBSS i poczekaj 5 minut.
- Zamień medium HBSS na 1 mL HBSS i odczekaj 5 minut.
- Przełóż rozpuszczalnik papainowy (900 μL) do aliquotu papainu (100 μL). Dostosuj pH powstałego rozcieńczenia papainy (0,2-0,5 μL HCl 1M), jeśli kolor nie jest taki sam jak żółty roztworu 3+2. Nie mierz pH, ponieważ mogłoby to zanieczyścić roztwór.
- Zamień podłoże HBSS na 1 ml świeżo rozcieńczonego roztworu papainy i inkubuj przez 10-15 minut. Trawienie enzymatyczne przeprowadzaj w temperaturze pokojowej.
- Zamień roztwór papainy na 1 ml HBSS + 50 μL FBS i odczekaj 5 minut, aby dezaktywować aktywność papainy.
- Przepłukaj dwa razy 1 ml HBSS przez 5 minut.
- Zamień medium HBSS na 1 mL 3+2 medium.
- Poleruj końcówkę pipety Pasteura palnikiem Bunsena, aby zmniejszyć średnicę otworu do 50-100 μm (można to ocenić na oko, jeśli masz odpowiednią praktykę).
- Mechanicznie rozłącz komórki czułkowe, delikatnie pipetując tam i z powrotem w medium za pomocą ogniowo polerowanej pipety Pasteura, aż nie będzie widoczna żadna skupiska komórek. Medium musi wydawać się zamglone.
- Dodaj 2 mL podłoża 3+2 i ponownie zawiesij komórki w podłożu pipetą Pasteura, aby zapewnić jednorodną gęstość komórek.
- Podziel zawiesinę ogniwa na 20 szalek Petriego (około 150 μL na talerz) (Rysunek 2B).
- Pozwól komórkom się uspokoić przez 45 minut.
- Zamień podłoże 3+2 w każdej misce na 150 μL kondycjonowanego medium 3+2, uzupełnionego 5% FBS.
- Dodaj pokrywkę (rysunek 2C) i zabezpiecz naczynia Parafilmem.
- Odwróć naczynia (rysunek 2D) i trzymaj je między dwoma nawilżonymi warstwami tkanki chłonnej w temperaturze 20 °C w inkubatorze.
8. Zmiana medium kulturowego
UWAGA: Wymieniaj połowę podłoża co 4-7 dni.
- Sprawdź naczynia, aby znaleźć potencjalne zanieczyszczenia. Zazwyczaj skutkuje to zmianą koloru (z żółtego na czerwonawy).
- Otwieraj naczynia i delikatnie zdejmuj pokrywki. Przy mikropipecie P100 usuń 75 μL podłoża i zastąp go 85 μL świeżo kondycjonowanego medium 3+2 z dodatkiem 5% FBS.
- Zakładaj pokrywki, zabezpieczaj naczynia Parafilm i trzymaj je jak wcześniej między nawilżonymi warstwami chłonnej tkanki w temperaturze 20 °C w inkubatorze.
Wyniki
Protokół ten pozwala na utrzymanie owadów ORN przy życiu w hodowli przez 3-5 tygodni. ORN są łatwo rozpoznawalne po morfologii, charakteryzującej się małym, okrągłym lub migdałowatym ciałem komórkowym oraz cienkimi wyrostkami (neuritami), które są wyraźnie widoczne już po jednym dniu w hodowli (rysunek 3A) i rozciągają się przez kilka dni (rysunek 3B-D). Można wyróżnić dwie populacje neuronów na podstawie wielkości ich somy: 5-7 μm dla większości neuronów oraz 10-12 μm dla mniejszości (rysunek 3D). Najprawdopodobniej małe neurony to ORN, natomiast duże neurony to neurony mechanosensoryczne. Neurony są albo monopolarne, albo dwubiegunowe i występują pojedynczo, w małych skupiskach lub w niedysocjacyjnych wybuchach czułkowych. Tożsamość neuronalna tych komórek została potwierdzona przez immunocytochemię z antyciałami przeciwciałami HRP13 (Rysunek 4), złotym standardem narzędzia do znakowania neuronów w neurobiologii owadów21. Po 2 tygodniach komórki nieneuronalne, najprawdopodobniej komórki glejowe, tworzą ciągłą warstwę na powierzchni naczynia, na której rosną ORN i rozszerzają swoje neurity (rysunek 5A,B).
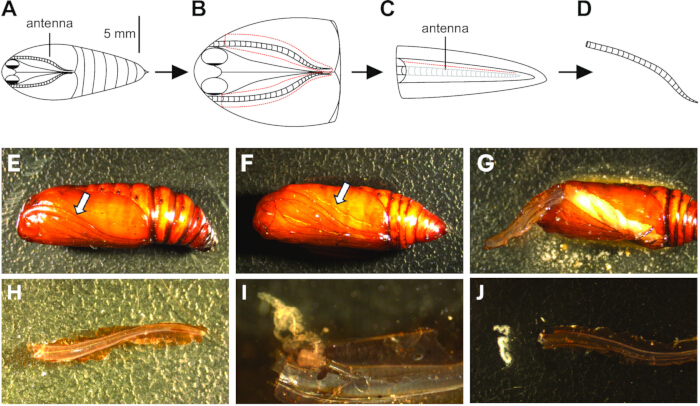
Rysunek 1: Sekcja poczwarek. (A) Brzuszna strona poczwarki. (B) Skórka jest przecięta wokół obu czułek (czerwona linia przerywana), z zachowaniem ostrożności, by nie przenikać zbyt głęboko poczwarki i nie przebić rozwijających się tkanek dorosłych. Każda antena jest delikatnie usuwana i przekazywana na antenę wypełnioną medium 3+2. (C) Wszystkie tkanki nietykałowe, które pozostały przyczepione do poczwarki, są usuwane, a antena przenoszona jest na nową antenę z czystym medium 3+2. Przezroczysta membrana zakrywająca rozwijającą się antenę jest starannie przecięta (czerwona linia przerywana). (D) Antena jest delikatnie usuwana. (E) Obraz przedstawiający odpowiednik A. Biała strzałka wskazuje na antenę. (F) Obraz przedstawiający odpowiednik B. Biała strzałka wskazuje na nacięcie wykonane w skórze. (G) Antena jest delikatnie podnoszona (H) i następnie usuwana. (I) Po rozszczepieniu błony, w której się rozwija, antena jest wypychana z dalszego końca w kierunku podstawy (J), a następnie usuwana. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
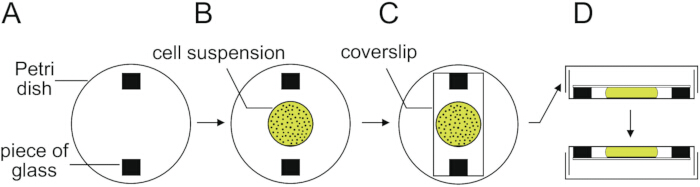
Rysunek 2: Technika wiszących kolumn stosowana do hodowli komórek czułkowych. (A) Dwa kawałki szkła są przyklejane sterylną wazeliną do dna naczyń o średnicy 35 mm. (B) Zawiesina komórkowa jest delikatnie pokrywana na środku naczynia i pozostawiona do przyczepienia się do naczynia przez 45 minut. (C) Po zmianie podłoża hodowlanego na kawałki szkła starannie nakłada się sterylny pokrywak, który zakrywa i utrzymuje zawiesinę komórkową na miejscu. (D) Miska Petriego jest ostatecznie zamykana pokrywką i uszczelniana paskiem Parafilm. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
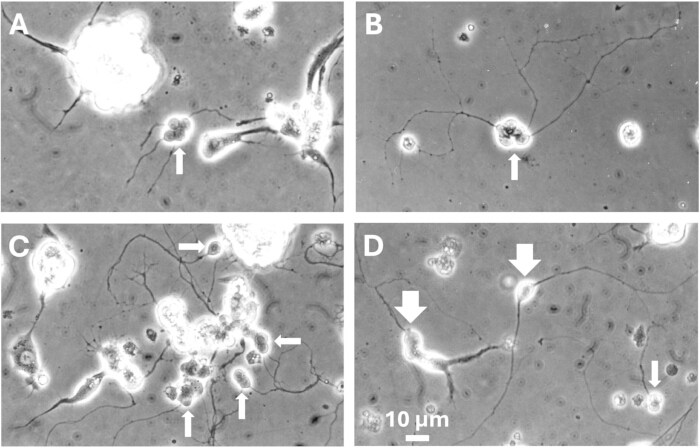
Rysunek 3: Widoki młodych kultur z anten M. brassicae. (A) Po 1 dniu neurity zaczynają się wydłużać. (B) Po 2 dniach neurity wydają się bardziej wydłużone. (C,D) Po 5 dniach sieć neurytowa staje się gęstsza. ORN (białe strzałki) łatwo rozpoznać po morfologii. Występują albo samotnie, albo w małych skupiskach. Duże skupiska komórek, takie jak te widoczne w (C), najprawdopodobniej to niedysocjowane eksplanty czułkowe. Mogą zawierać neurony, o czym świadczą neurity wyłaniające się z nich. Małe neurony oznaczane są małymi strzałkami (A-D), a 2 duże neurony wielkimi strzałkami (D). Skala (10 μm) jest taka sama w A do D. Proszę kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
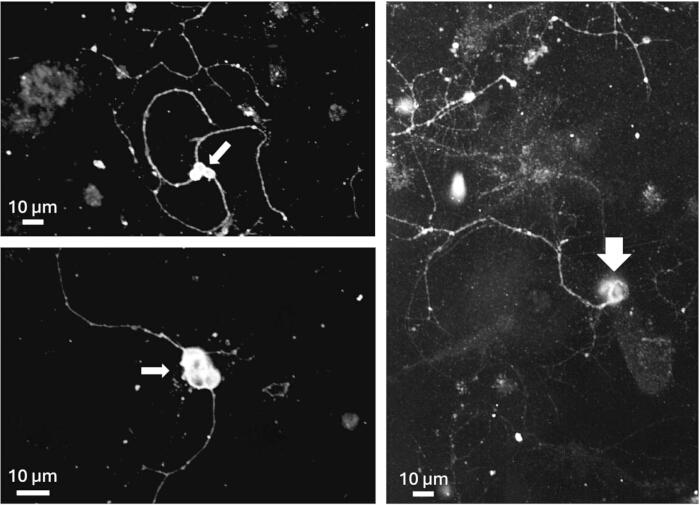
Rysunek 4: Anty-HRP barwienie na małych (mała strzałka) i dużych neuronach (duża strzałka). Eksperyment przeprowadzono na kulturach 5-dniowych. Pasek skali: 10 μm. Szczegółowy protokół można znaleźć wartykule 13. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
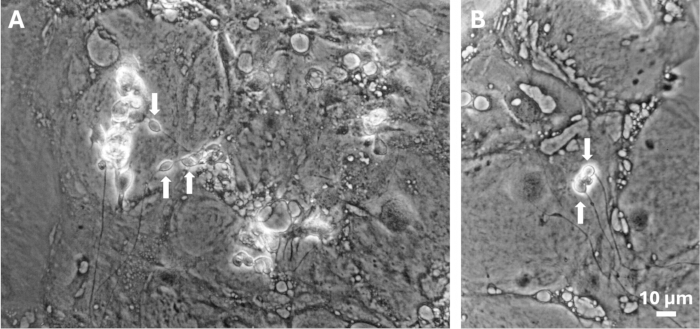
Rysunek 5: Widoki starych hodowli z czułek M. brassicae. (A,B) Po 2 tygodniach hodowli powierzchnia talerza pokryta jest gęstą warstwą komórek nieneuronalnych. Białe strzałki wskazują ORN. Skala (10 μm) jest taka sama w A i B. Proszę kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
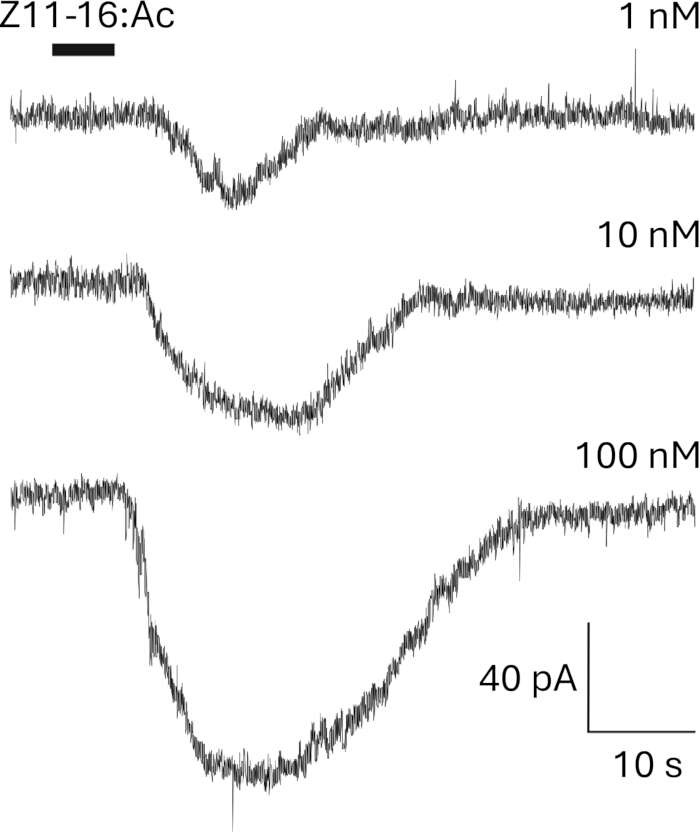
Rysunek 6: Neurony w hodowli przez co najmniej 2 tygodnie reagują na bodźce zapachowe. Reakcje na Z11-16:Ac, główny związek feromonów M. brassicae, można zarejestrować w konfiguracji całej komórki techniki patch-clamp. Z11-16:Ac rozpuszczono w dimetylosulfoksydzie (DMSO) z końcowym stężeniem nieprzekraczającym 0,1%. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
Dyskusja
Kluczowe kroki protokołu to: (i) Rozcinanie poczwarek na odpowiednim etapie rozwoju. Gdy poczwarki są zbyt młode, tkanka czułkowa jest bardzo mała, a zbieranie jest bardzo trudne, ponieważ jest luźna i szybko się rozprasza. Gdy poczwarki są zbyt stare, rozwarstwienie czułek jest znacznie łatwiejsze, ale ORN nie przeżywają in vitro. W trzech różnych gatunkach, z których przygotowywaliśmy pierwotne kultury ORN, ustaliliśmy eksperymentalnie, że optymalny etap do sekcji poczwarek trwa tylko pół dnia, od 2,5 do 3 dni, gdy poczwarki są utrzymywane w temperaturze 20 °C. (ii) Mieszanie ośrodka L-15 Grace'a i Leibovitza. Medium Grace jest powszechnie stosowane do wspierania wzrostu komórek owadów, a medium L-15 Leibovitza wspiera wzrost neuronów. (iii) Usuwanie FBS podczas nakładania komórek. Jeśli konieczne jest uzupełnienie podłoża FBS, pośrednik używany do zasiewania szalek Petriego zawiesiną komórkową musi być wolny od FBS, ponieważ jego obecność hamuje przyczepianie komórek, a tym samym przeżycie. (iv) Hodowla komórek czułowych o wysokiej gęstości. To kluczowe dla przetrwania ORN. (v) Używanie techniki wiszącego słupa. Sprzyja lepszemu wzrostowi komórek i znacząco wydłuża życie hodowli.
Potencjalnym problemem w protokole jest konieczność dostosowania czasu inkubacji z papainą (10-15 min) do partii papainy oraz czasu od przygotowania aliquotów 100 μl papainy, ponieważ papain stopniowo traci aktywność nawet przy przechowywaniu w temperaturze -80 °C. Ponieważ wygląd czułków nie zmienia się zauważalnie podczas inkubacji papainy, czasu inkubacji nie można ocenić wzrokowo.
Podstawowe pytanie dotyczy różnicowania ORN in vitro. Przy opisanym protokole ORN mogą przetrwać 3-5 tygodni. Biorąc pod uwagę, że czułki są zbierane około 10 dni przed wykluciem dorosłych, a ORN stają się w pełni funkcjonalne 1-2 dni przed wykłęciem – mierzone przez zapisy EAG i pojedyncze sensillum (osobista obserwacja) – ten okres przeżycia teoretycznie zapewnia wystarczający czas na ich różnicowanie in vitro. Stwierdzono, że ORN wyrażają dużą różnorodność kanałów jonowych 8,9,10,14,22,23,24,25,26. Reagują na bodźce węchowe w sposób zależny od dawki (Rysunek 6), co wskazuje, że przynajmniej częściowo podążają za swoim normalnym przebiegiem różnicowania in vitro.
ORN owadów są otoczone przez trzy komórki pomocnicze27, które wyznaczają przedział sensillar i kontrolują skład jonowy i białkowy limfy sensillarnej, w której topią się dendryty ORN. Te komórki pomocnicze syntetyzują w szczególności białka wiążące węch (OBP). W poprzednim badaniu zaobserwowaliśmy wysoką ekspresję OBP w hodowlach wieku 3-4 tygodni, co sugeruje, że komórki dodatkowe różnicują się również in vitro13. Ograniczeniem hodowli jest to, że dendryt hodowanych ORN nie znajduje się w limfie sensylarnej, ośrodku o wyższym stężeniu K+ i niższym stężeniu Na+ niż hemolimfa28,29, co tworzy potencjał przeznabłonkowy między tymi dwoma przedziałami30. Z kolei hodowla komórkowa umożliwia dostęp do komórek dodatkowych do charakteryzacji elektrofizjologicznej, co – o ile nam wiadomo – nie było wcześniej stosowane.
Co ciekawe, wstępne testy przeprowadzone na S. littoralis sugerują, że protokół ten nadaje się także do hodowli komórek trąbki. Podobnie ukształtowane neurony, które najprawdopodobniej są neuronami receptorowymi gustatory, były obserwowane, choć w niewielkich ilościach.
Hodowle pierwotne umożliwiają łatwy dostęp do ORN owadów do rejestracji za pomocą patch-clamp. Główna wada jest podwójna: komórki muszą być hodowane w wysokiej gęstości, co oznacza, że wiele czułek musi zostać rozciętych; Są to kultury pierwotne, co oznacza, że nowe kultury muszą być regularnie przygotowywane. Warto jednak, ponieważ mimo ich niewielkich rozmiarów, łatanie takich neuronów jest stosunkowo łatwe, pod warunkiem dobrej jakości hodowla.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy chcieliby podziękować Monice Stengl za dar linii komórkowej MRRL-CH1.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10 mL strzykawek | Avantor | Nie ma | |
| 2,5 mL strzykawek | Avantor | Nie ma | |
| 21 mm x 26 mm pokrywy pokrywkowego; | Avantor | WVR - 631-1335 | |
| Szklane slajdy 76 mm x 26 mm | Avantor | WVR - 631-9460 | Grubość: 1 mm i plusmn; 0,05 mm |
| Akrodysk Supor PF, 0,8/0,2 μ M, 25 mm | Avantor | WVR - 514-4102 | Filtry strzykawkowe o niskim wiązaniu |
| Autoklaw | Brak konkretnej marki | Nie ma | |
| Palnik Bunsena | Brak konkretnej marki | Nie ma | Musi być obsługiwany przez pedał |
| Corning Falcon Easy-Grip do hodowli tkanek to naczynia o wymiarach 35 mm x 10 mm. Corning 353001 | Avantor | WVR - 734-0005 | Sterylne szalki Petriego do hodowli komórek |
| D-Mannitol | Sigma-Aldrich | M9546 | Przechowuj w temperaturze pokojowej |
| Kleszcze Dumont #5 | Nie ma | ||
| EGTA | Sigma-Aldrich | E4378 | Przechowuj w temperaturze pokojowej |
| Sokół: 50 mL, 25 cm², uszczelnienie korka, tkanka Leczone kulturowo | Avantor | WVR - 734-0009 | Kolby do hodowli komórkowych |
| Serum bydlęce płodowe | ThermoFisher Scientific | A3160801 | Przechowywać w temperaturze -20 i stopień; C |
| Medium Grace's Insect uzupełnione hydrolizatem laktalbuminy i drożdżownicą (1x)-Gibco | ThermoFisher Scientific | 11605045 | Uzupełnione podłożem Grace's Insect. Przechowywać w temperaturze 5 i stopni; C |
| HBSS bez wapnia i magnezu - Gibco | ThermoFisher Scientific | 14170138 | Zrównoważony Roztwór Soli Hanksa (HBSS). Przechowywać w temperaturze 5 i stopni; C |
| Indywidualnie owinięte pipety serologiczne, Falcon | Avantor | WVR - 734-0352 | Sterylne jednorazowe pipety 10 mL |
| Indywidualnie owinięte pipety serologiczne, Falcon | Avantor | WVR - 734-0343 | Sterylne, jednorazowe pipety 25 mL |
| L15 średni – Gibco | ThermoFisher Scientific | 11415056 | L-15 medium Leibovitza. Przechowywać w temperaturze 5 i stopni; C |
| Maska do hodowli tkanek laminarnych | Brak konkretnej marki | Nie ma | |
| N-fenylotiourea | Sigma-Aldrich | P7629 | Przechowuj w temperaturze pokojowej |
| Papain | Sigma-Aldrich | P5306 | Proszek liofilizowany, wypełniony aseptycznie. Przechowywać alikwoty w temperaturze -80 i stopni; C |
| Parafilm | Sigma-Aldrich | P7793 | |
| Pipety Pasteura zatykane< br/> z watą – 150 mm | Brak konkretnej marki | Do autoklawu w obecnej formie (z bawełnianym korkiem) i przechowywania w puszce sterylizacyjnej < > pod maską | |
| Penicylina-streptomycyna | Sigma-Aldrich | P4333 | Penicylina-streptomycyna: 5000 UI/ml + 5000 i mikro; g/ml. Przechowywanie w temperaturze -20 stopni; C w 1 mL sterylnych aliquotów |
| pH miernik | Brak konkretnej marki | ||
| Sterowanie pipetą | Avantor | WVR - 612-7179 | Tanią alternatywą jest ręczne stosowanie pipety Sterowniki (np. pompy pipetowe lub pompy pipety Bel-Art) |
| Inkubator chłodzony | PHC Europe | Model MIR-154-PE | System regulacji stężenia CO2 to niepotrzebne do regulacji pH podłoża upraw owadów |
| Stereomikroskop | Brak konkretnej marki | Powiększenie od 10x do 64x wyposażone w zimne źródło światła i elastyczne przewodniki świetlne | |
| Sterylne naczynia Petriego do rozcinania poczwarek | Avantor | WVR - 391-0868 | Można użyć dowolnej sterylnej misy |
| Pojemniki ze steryliną z nakrętką, 30 mL | Avantor | WVR - 215-0321 | 30 mL probówki sterylne |
| Pojemniki na sterylinę z nakrętką, 7 mL | Avantor | WVR - 215-0328 | Rurki sterylne 7 mL |
| Wazelina | Sigma-Aldrich | Przechowywać aseptycznie w temperaturze pokojowej; Wazelina |
Bibliografia
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).