Za pomocą obrazowania time-lapse można śledzić cały proces regeneracji sferoidów Hydra. Ten protokół opisuje wytwarzanie sferoidów Hydra, omawia różne strategie mocowania i szczegółowo opisuje, jak wykonywać długotrwałą obrazowanie na żywo za pomocą mikroskopi konfokalnej z krążącym dyskiem, jak również mikroskopi fluorescencyjnego z arkuszem świetlnym.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Przygotowanie i obrazowanie na żywo regenerujących się kulek Hydra
W tym artykule
Podsumowanie
Streszczenie
Hydra słynie ze swojej wyjątkowej zdolności regeneracyjnej. Co ciekawe, małe regenerujące się fragmenty tkanki Hydra, zwane sferoidami Hydra, mogą ustanowić organizator de novo. Po ustanowieniu, ten organizator kieruje otaczającą tkankę do różnicowania się w odpowiednie struktury oralne. W ciągu kilku dni sferoida może rozwinąć się w mały, ale w pełni wzorowany polip. Stosunkowo krótki czas trwania tego procesu umożliwia ciągłe nagrywanie time-lapse całego procesu, oferując unikalną możliwość badania przestrzenno-czasowej dynamiki regeneracji. Przedstawiamy tu szczegółowy przepływ pracy i pokazujemy reprezentatywne wyniki dotyczące generowania zestawów danych time-lapse regenerujących się sferoydów Hydra. Protokół obejmuje szczegółową procedurę generowania sferoydów oraz wytyczne dotyczące wybierania optymalnych próbek do obrazowania. Omawiamy strategie montażu nadające się do długoterminowego obrazowania żywych próbek i demonstrujemy podejścia do obrazowania zarówno za pomocą konfokalnego mikroskopu z dyskiem wirującym, jak i mikroskopu light-sheet. Zasady opisane tutaj mają szerokie zastosowanie do innych systemów modelowych, w których dynamiczne procesy morfogenezy można badać za pomocą długoterminowego obrazowania.
Wprowadzenie
Hydra to mały polip słodkowodny, najbardziej znany ze swojej wyjątkowej zdolności do regeneracji. Fragmenty tkanek wycięte z środka jej ciała zginają się w wypukłą kulę, która składa się z dwóch warstw nabłonkowych Hydry, ektoderma i endoderma. Podczas regeneracji, te kuliste formy Hydry tworzą nowego organizatora de novo1. W ciągu około 3 dni, oś ciała wydłuża się, a komórki na końcach głowy i stopy ulegają różnicowaniu. Ze względu na stosunkowo krótki czas, cały proces regeneracji można uchwycić poprzez żywe obrazy. Zestawy danych time-lapse były niezwykle pomocne w ujawnieniu charakterystycznych cykli napełniania i opróżniania, którymi przechodzą kuliste formy Hydry podczas regeneracji2. Rozciąganie tkanki, które jest generowane przez te osmotycznie napędzane oscylacje mechaniczne, przyczynia się do lokalizacji organizatora3.
Skuteczna długotrwała żywa obrazowanie wymaga szybkiego nabywania obrazów, aby uniknąć artefaktów ruchu, jednocześnie minimalizując ekspozycję na światło, aby zapobiec fotouszkodzeniu próbki. Klasyczna mikroskopowa konfokalna skanująca metoda jednego punktu nie spełnia tych wymagań. Jednak opracowano zaawansowane techniki. W tym protokole skupimy się na dwóch szeroko stosowanych modalnościach: mikroskopii konfokalnej z obracającym się dyskiem (SDCM) i mikroskopii fluorescencyjnej z płaszczyzną świetlną (LSFM). SDCM wykorzystuje szybko obracający się dysk z układem świderków4. Ten projekt umożliwia jednoczesne wzbudzanie i wykrywanie wielu punktów w próbce, zachowując jednocześnie konfokalność. To równoległe nabywanie obrazów znacznie przyspiesza obrazowanie, umożliwiając bezruchowe uchwycenie ruchomych próbek. Jako dodatkową zaletę, skrócone narażenie znacznie zmniejsza fototoksyczność. Mimo to, z powodu ograniczonej głębokości obrazu, żywe obrazowanie większych struktur jest wyzwaniem.
LSFM swoją nazwę bierze od cienkiej warstwy światła, która jest używana do wzbudzenia fluoroforów tylko na tej płaszczyźnie5. W przeciwieństwie do świderka, który tworzy rozdzielczość osiową poprzez ograniczenie emitowanego światła, mikroskop z płaszczyzną świetlną tworzy rozdzielczość osiową poprzez ograniczenie wzbudzanej objętości. Obiektyw detekcyjny jest umieszczony prostopadle, zbierając fluorescencje pod kątem 90° w stosunku do płaszczyzny światła. To pozwala kamerze na zbieranie sygnału fluorescencyjnego z całej oświetlonej płaszczyzny w jednym naświetleniu, zwiększając szybkość nabywania i minimalizując fototoksyczność. Typowe geometrie LSFM, które budują się wokół jednego lub dwóch poziomo ustawionych obiektywów detekcyjnych, mają dodatkową zaletę, że to samo próbki można obrazować z wielu kątów. Jeśli mikroskop jest wyposażony w dwa obiektywy detekcyjne, próbki mogą być jednocześnie obrazowane z dwóch stron6. Alternatywnie, próbka może być obracana, aby uzyskać widoki z wielu kątów.
Techniki obrazowania stosowane do badania żywej Hydry uległy znacznemu rozwojowi w ostatnich latach, umożliwiając obserwację zmian morfologicznych związanych z regeneracją aż do dynamiki aktywności neuronowej7,8,9,10. Tutaj rozszerzamy wcześniej opublikowane protokoły6,11, koncentrując się na przedstawieniu różnorodnych podejść do żywego obrazowania kulistych form Hydry podczas regeneracji. Opisujemy metody generowania kulistych form Hydry z małych fragmentów tkanek i dostarczamy wskazówek do identyfikacji prawidłowo sfałdowanych próbek. Krok po kroku instrukcje są opisane dla trzech strategii montażu powszechnie stosowanych do żywego obrazowania. W przypadku obrazowania na odwróconym mikroskopie, czyli powszechnej geometrii dla SDCM, kuliste formy są zazwyczaj montowane w dołkach agarozy. To pozwala im swobodnie poruszać się i obracać, pozostając jednocześnie w polu widzenia. Fluoroethylene propylene (FEP) jest powszechnie używany do montażu, ponieważ jego współczynnik załamania (1,34) jest zbliżony do wody (1,33). Folia FEP może być termicznie formowana na niestandardowe komory obrazu, dostosowane do konkretnych potrzeb eksperymentu. Podobnie, osadzanie kulistych form w agarozie w szklanych kapillarach jest standardowym podejściem dla LSFM. Mimo że ta technika ogranicza liczbę próbek na kapillar, ułatwia obrót wymagany dla wielowidokowego wykrywania. Wreszcie, pokazujemy jak przeprowadzić żywe obrazowanie używając zarówno SDCM jak i LSFM, oraz omawiamy kluczowe zagadnienia dotyczące wyboru odpowiedniej techniki w zależności od celów eksperymentu. Chociaż ten protokół jest zoptymalizowany dla Hydry, jego podstawowe zasady są szeroko stosowane do innych systemów modelowych, które opierają się na długotrwałym obrazowaniu do badania dynamicznych procesów morfogenezy.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie opisane procedury zostały przeprowadzone zgodnie z wytycznymi etycznymi szwajcarskich przepisów dotyczących badań na zwierzętach. Przed rozpoczęciem eksperymentu Hydra powinna być karmiona normalnie, 3 razy w tygodniu, przez co najmniej 2 tygodnie. Hydra używana do eksperymentów powinna być zdrowa12, bez narządów płciowych i nie pączkująca. Świeżo pączkujących Hydr, które można rozpoznać po krótszej długości w porównaniu z innymi Hydrami w kolonii, również należy unikać.
1. Przygotowanie sferoidów Hydra (Rysunek 1)
- Rozpocznij od przygotowania płytki z środowiskiem dysocjacji (DM; przepis patrz Tabela 1). DM powinno być w temperaturze pokojowej na potrzeby eksperymentu.
- Przygotuj resztę miejsca roboczego: Umieść pokrywkę 10 cm naczynia do hodowli komórek pod stereoskopem i wypełnij ją warstwą środowiska Hydra (HM; przepis patrz Tabela 1). Samo naczynie do hodowli komórek może być użyte do zbierania pozostałego tkanki Hydra. Następnie zbierz Hydry i umieść je w naczyniu blisko stereoskopu.
- Użyj szkła Pasteura, aby przenieść Hydrę na pokrywkę pod stereoskopem. Zaleca się stępienie końcówek pipet Pasteura. Aby to osiągnąć, szybko przytrzymaj ich końcówkę w płomieniu.
- Często Hydry będą unosić się na powierzchni medium; ponownie pipetuj Hydrę aż zanurza się na dnie pokrywki.
- Przekroić Hydrę wykonując pojedynczy prosty cięcie między regionami ciała B2 i B3 (Rysunek 1A,B). Bądź konsekwentny w części ciała, z której są cięte sfroidy, ponieważ znacząco wpływa to na zachowanie sfroidów.
UWAGA: Jeśli cięcie w określonej części ciała nie jest wymagane, użyj sfroidów z środka osi ciała. Dla zwierząt o silnym fenotypie (np. zwierząt z wieloma ektopicznymi głowami), szukaj regionów ciała, które najbardziej przypominają środek osi ciała. - Poczekaj, aż Hydra będzie całkowicie rozluźniona po cięciu. Jeśli to konieczne, ponownie pipetuj unoszące się części ciała, aby ponownie zanurzały się.
- Gdy przekrojone tkanki się rozluźnią, przekrojone końce tkanki pozostaną spuchnięte. Wykonaj drugie cięcie tam, gdzie kończy się spuchlizna, aby wygenerować pierścień tkanki (Rysunek 1C). Pierścienie tkanki można wyciąć z każdej połowy Hydry.
- Usuń pozostałe końce głowy i stopy z pokrywki. Te pozostałe części ciała można pozostawić do regeneracji. Gdy Hydry prawidłowo się zregenerują i będą karmione przez co najmniej 2 tygodnie, można je ponownie wykorzystać do innych eksperymentów.
- Odłóż pierścienie tkankowe. Pokrój otwarte pierścienie na wiele kawałków tkanki (Rysunek 1D). Dąż do prostokątnych kawałków tkanki o wymiarach ~100-150 µm na ~300-500 µm.
UWAGA: Liczba kawałków, które można wyciąć z pierścienia, jest zmienna. Na przykład Hydry z szczepu 105 są zwykle znacznie cieńsze niż Hydry ze szczepu AEP. Jeśli pierścień tkankowy jest zbyt mały, aby wygenerować dwa odpowiednie kawałki tkanki, przytnij otwarty pierścień, aby wygenerować jeden odpowiednio wielkości kawałek tkanki i wyrzuć drugi mniejszy kawałek. - Przenieś kawałki tkanki do środowiska DM w temperaturze pokojowej. Zminimalizuj ilość HM, która jest przenoszona wraz z kawałkami tkanki.
- Pozwól sfroidom słożyć się w DM przez 3-4 h. Oceń, czy sfroidy zostały prawidłowo słożone. Prawidłowo słożone sfroidy powinny mieć zaokrąglony kształt i być całkowicie pokryte przez ektoderma (Rysunek 2A-D).
UWAGA: Jeśli więcej niż połowa sfroidów jeszcze nie została pomyślnie słożona, pozostaw sfroidy w DM na kolejne 30 minut. - Wybierz słożone sfroidy o średnicy 250-350 µm (Rysunek 2E-H). Unikaj sfroidów zanieczyszczonych obcym materiałem, takim jak włókna plastikowe. Przenieś wybrane sfroidy do HM przed zamontowaniem.
UWAGA: Jeśli eksperyment zostanie przeprowadzony w uzupełnionym medium (np. leczenie lekami), przenieś sfroidy natychmiast do tego medium. Pamiętaj, że gdy sfroidy zostaną przeniesione do HM, zaczną oscylować.
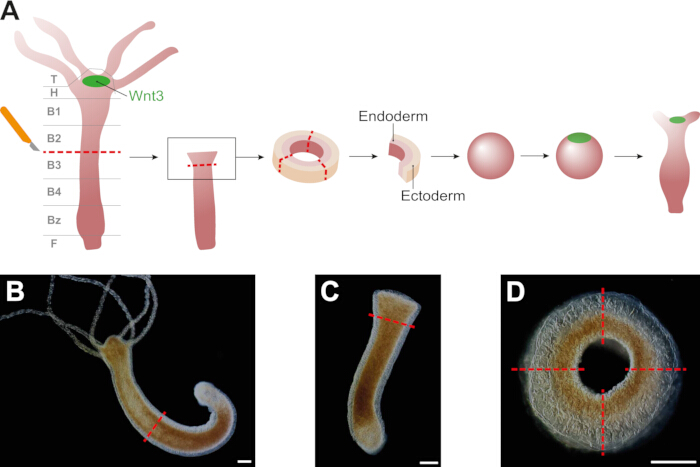
Rysunek 1: Przygotowanie sfroidów Hydra. (A) Schemat przedstawiający generację sfroid
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Pomyślnie wygenerowaliśmy długoterminowe zestawy danych time-lapse na regenerację Hydra kulistości korzystając zarówno z konfokalnej mikroskopii dysków obrotowych (SDCM) jak i fluorescencyjnej mikroskopii arkuszy świetlnych (LSFM). Regeneracja przebiegała normalnie w obu konfiguracjach obrazowania: kulistości przełamywały symetrię, wydłużały się i rozwijały wyrostki i stopę w ciągu 3 dni (Rysunek 5A, Rysunek 6A, Dodatkowy Wideo 1 i Dodatkowy Wid...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Zobacz obraz Zarówno SDCM, jak i LSFM są odpowiednie do generowania długoterminowych zestawów danych time-lapse odnowionych kulistości Hydra. Zasady optyczne, na których oparte są poszczególne techniki, są różne i dlatego oferują unikalne zalety i ograniczenia (Tabela 2). SDCM jest preferowany, gdy nie jest wymagany pełny, wysokiej rozdzielczości widok próbki. Wiele próbek może być obrazowanych w jednym doświadczeniu, co sprawia, że jest szczególnie przydatne do testowania różnych warunków, taki...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują, że nie mają żadnych sporów interesu.
Podziękowania
Chcielibyśmy podziękować Laure Plantard z Facility for Advanced Imaging and Microscopy w FMI za jej cenny wkład. Ta praca została wsparta przez Novartis Research Foundation.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 20×/0.8 Plan-Apochromat objective | Zeiss | 440640-9903-000 | Do mikroskopii konfokalnej z wirującą maską |
| 20x/1.0 W Plan-Apochromat water dipping objective | Zeiss | 421452-9700-000 | Używane jako obiektyw detekcyjny w Zeiss Lightsheet 7 |
| 3D-printed holder for FEP chamber mounting | wykonane na zamówienie | ||
| 4-well glass bottom imaging plate (#1.5H) | Ibidi | 80427 | |
| Agarose | Carl Roth | 3810.4 | |
| Aluminium mold for FEP chamber | wykonane na zamówienie | ||
| Calcium chloride | Sigma-Aldrich | C4901 | |
| Canned air | Durable | POWERCLEAN STANDARD 400 | |
| Cell culture plate (6 cm) | Thermo Fisher Scientific | 150288 | |
| D-(+)-glucose | Sigma-Aldrich | G8769 | |
| FEP foil (127 μm thickness) | Adtech Polymer Engineering | ||
| FluoSpheres carboxylate-modified (0.2 μm, dark red) | Thermo Fisher Scientific | F8807 | |
| Glass capillary | Brand | 701904 | |
| Glass pasteur pipette (150 mm) | VWR | 612-1701 | |
| Hydra vulgaris | |||
| Imaging software | Visitron | VisiView | Do mikroskopii konfokalnej z wirującą maską |
| Inverted light microscope | Zeiss | Axio observer 7 | Do mikroskopii konfokalnej z wirującą maską |
| Light sheet microscope | Leica | Viventis Deep LS2 | |
| Light sheet microscope | Zeiss | Lightsheet 7 | |
| Low melting point Agarose | Thermo Fisher Scientific | R0801 | |
| Magnesium chloride | Sigma-Aldrich | M8266 | |
| Magnesium sulfate | Sigma-Aldrich | M2643 | |
| Microscalpel | pfm medical | 200300745 | |
| Pipette bulb | |||
| Piston rod transferpettor | Brand | 701932 | |
| Potassium chloride | Sigma-Aldrich | P9333 | |
| Safety Bunsen burner | INTEGRA Biosciences | FIREBOY plus | |
| sCMOS cameras | Photometrics | Prime 95B | Do mikroskopii konfokalnej z wirującą maską |
| Sodium bicarbonate | Fluka Analytical, Sigma-Aldrich | 71630 | |
| Sodium citrate dihydrate | Sigma-Aldrich | W302600 | |
| Sodium pyruvate | Sigma-Aldrich | P2256 | |
| Spinning disk confocal scanning unit (50 μm pinholes) | Yokogawa | CSU-W1 | Do mikroskopii konfokalnej z wirującą maską |
| Stereoscope | Leica | M80 | |
| TES | Sigma-Aldrich | T1375 | |
| Thermoformer | Yuyao Jintai Machine Factory | Jintai JT-18 | |
| Tissue culture dish (10 cm) | VWR | 734-2321 | |
| Tris-HCl buffer | Roche Diagnostics | 10812846001 |
Bibliografia
- Bode, P. M., Bode, H. R. Formation of pattern in regenerating tissue pieces of hydra attenuata: I. Head-body proportion regulation. Dev Biol. 78 (2), 484-496 (1980).
- Fütterer, C., Colombo, C., Jülicher, F., Ott, A. Morphogenetic oscillations during symmetry breaking of regenerating hydra vulgaris cells. Europhys Lett. 64 (1), 137(2003).
- Weevers, S. L., et al. Mechanochemical patterning localizes the organizer of a luminal epithelium. Sci Adv. 11 (26), eadu2286(2025).
- Oreopoulos, J., Berman, R., Browne, M. Chapter 9 - Spinning-disk confocal microscopy: present technology and future trends. Meth Cell Biol. 123, 153-175 (2014).
- Stelzer, E. H. K., et al. Light sheet fluorescence microscopy. Nat Rev Meth Primers. 1 (1), 73(2021).
- Moos, F., et al. Open-top multisample dual-view light-sheet microscope for live imaging of large multicellular systems. Nat Meth. 21 (5), 798-803 (2024).
- Soriano, J., Colombo, C., Ott, A. Hydra molecular network reaches criticality at the symmetry-breaking axis-defining moment. Phys Rev Lett. 97 (25), 258102(2006).
- Livshits, A., Shani-Zerbib, L., Maroudas-Sacks, Y., Braun, E., Keren, K. Structural inheritance of the actin cytoskeletal organization determines the body axis in regenerating hydra. Cell Rep. 18 (6), 1410-1421 (2017).
- Hanson, A., et al. Automatic monitoring of neural activity with single-cell resolution in behaving hydra. Sc Rep. 14 (1), 5083(2024).
- Escobar, A., et al. Terminal differentiation precedes functional circuit integration in the peduncle neurons in regenerating hydra vulgaris. Neural Dev. 19 (1), 18(2024).
- Ferenc, J., Tsiairis, C. D. Studying Mechanical Oscillations During Whole-Body Regeneration in Hydra. Whole-Body Regenerat. 2450, 619-633 (2022).
- Bossert, P., Galliot, B. How to use hydra as a model system to teach biology in the classroom. Int J Dev Biol. 56 (6-8), 637-652 (2012).
- Jemielita, M., Taormina, M. J., Delaurier, A., Kimmel, C. B., Parthasarathy, R. Comparing phototoxicity during the development of a zebrafish craniofacial bone using confocal and light sheet fluorescence microscopy techniques. J Biophotonics. 6 (11-12), 920-928 (2013).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 1700003(2017).
- Ravichandran, Y., Vogg, M., Kruse, K., Pearce, D. J. G., Roux, A. Topology changes of hydra define actin orientation defects as organizers of morphogenesis. Sci Adv. 11 (3), eadr9855(2025).
- Maroudas-Sacks, Y., Garion, L., Suganthan, S., Popović, M., Keren, K. Confinement modulates axial patterning in regenerating hydra. PRX Life. 2 (4), 043007(2024).
- Bailles, A., et al. Anisotropic stretch biases the self-organization of actin fibers in multicellular hydra aggregates. Proc Natl Acad Sci. 122 (32), e2423437122(2025).
- Luu, P., Fraser, S. E., Schneider, F. More than double the fun with two-photon excitation microscopy. Comm Biol. 7 (1), 364(2024).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
