Za pomocą dwupróbkowych analiz randomizacji mendelowskiej i mediacji, niniejsze badanie identyfikuje 32 fenotypy komórek odpornościowych i 9 metabolitów osocza przyczynowo związanych z zapaleniem tarczycy Hashimoto i potwierdza częściową oś immunometaboliczną CD39+Treg-izowalerylkarnityna (C5)-HT. Wstępne dane z cytometrii przepływowej i metabolomii dostarczają początkowej biologicznej wiarygodności zgodnej z tym szlakiem.
Artykuł badawczy
Badanie losowego przypisywania Mendelowskiego cech komórek odpornościowych i metabolitów osocza w chorobie Hashimoto
W tym artykule
Podsumowanie
Streszczenie
Zespół Hashimoto (HT) jest autoimmunologicznym zaburzeniem tarczycy. Chociaż komórki odpornościowe są zaangażowane w jego patogenezę, ich konkretne role nie zostały jeszcze w pełni wyjaśnione. Przeprowadzono analizę randomizacji mendelowskiej (MR) z dwoma próbkami, integrując sumaryczne statystyki badań skojarzeń genomowych (GWAS) z dużych publicznych zbiorów danych dla cech komórek odpornościowych (ebi-a-GCST90001391 do ebi-a-GCST90002121), metabolitów osocza (GCST90199621-9020102) i HT (ebi-a-GCST90018855). Przyczynowe efekty oszacowano za pomocą metod odwrotnie zważonych wariancją (IVW), z analizami MR-Egger, mediany zważonej i leave-one-out w celu oceny pleiotropii i wytrzymałości. Analizy MR dwukierunkowe i mediacyjne zostały dodatkowo zastosowane, aby przetestować kierunkowość i zidentyfikować potencjalne szlaki pośredniczące metabolitów. Komórki CD3⁺CD4⁺CD25⁺CD39⁺Treg zostały sprecyzowane w próbkach krwi obwodowej za pomocą cytometrii przepływowej. Izowalerylokarnitynę (C5) zmierano za pomocą tandemowej chromatografii cieczowej z widmometrią masową. Analiza IVW wykryła 32 fenotypy komórek odpornościowych znacząco związane z ryzykiem HT (P < 0,05 po korekcji FDR). Odwrotna analiza MR wykazała, że HT był pozytywnie przyczynowo związany z 2 cechami odpornościowymi, podczas gdy 4 cechy odpornościowe (wszystkie P < 0,05) były odwrotnie związane z HT. Analizy wrażliwości nie wykazały pleiotropii poziomej ani heterogeniczności. Ponadto metoda IVW wstępnie zidentyfikowała 9 metabolitów osocza jako przyczynowo związanych z HT, w tym zwiększające ryzyko C5 (OR = 1,120, 95% CI: 1,032-1,215, P = 0,006) i ochronną ergotioneinę (OR = 0,958, 95% CI: 0,927-0,990, P = 0,010). Dwustopniowa mediacja MR wykazała C5 jako kandydatowego pośrednika łączącego CD3⁺ CD39⁺ Treg z HT (proporcja mediacji 8,89%, 95% CI: 2,34%-15,4%, P = 0,008). Cytometria przepływowa wykazała podwyższone poziomy CD39⁺Treg i C5 w osoczu u pacjentów z HT, przy czym C5 był pozytywnie skorelowany z proporcją komórek CD39⁺Treg. Badanie to ustanawia nowe przyczynowe łącza między fenotypami komórek odpornościowych a HT oraz podkreśla metabolity osocza, szczególnie C5, jako potencjalne pośredniki w patogenezie HT. Te odkrycia pogłębiają rozumienie mechanizmu choroby autoimmunologicznej tarczycy i mogą wskazywać na przyszłe odkrycia biomarkerów i potencjalnych celów terapeutycznych.
Wprowadzenie
Zespół Hashimoto (HT) jest częstą chorobą autoimmunologiczną, w której układ odpornościowy atakuje gruczoł tarczycy, powodując niedoczynność tarczycy1,2. Ostatnie badania wykazały stały coroczny wzrost zachorowań na HT. W Chinach szacuje się, że jego częstość występowania waha się od 0,2% do 1,3%3. Dokładna przyczyna HT jest nieznana, chociaż uważa się, że jej patogeneza obejmuje złożoną interakcję genetycznych, środowiskowych i immunologicznych składników4,5.
Rozwój HT jest mocno wpływany przez układ odpornościowy6,7,8. Nieprawidłowe reakcje odpornościowe atakują tkankę tarczycy, wywołując produkcję autoprzeciwciał, w tym przeciwko peroksydazie tarczycowej (anti-TPO) i przeciwko tyreoglobulinie (anti-Tg)9. Te autoprzeciwciała wchodzą w interakcję z komórkami tarczycy, indukując śmierć komórek pośredniczoną przez układ odpornościowy i reakcje zapalne, co prowadzi do upośledzenia funkcji tarczycy10. Określone ścieżki patogenne, szczególnie sygnały metaboliczne, które prowadzą do dysfunkcji komórek immunologicznych, pozostają nie do końca zrozumiałe. Komórki T regulatorowe (Tregs), szczególnie te wyrażające CD39, odgrywają kluczową rolę w utrzymaniu tolerancji immunologicznej poprzez hydrolizę pozakomórkowego ATP do immunosupresyjnego adenozynu. Zakłócenia w funkcji Treg lub ich środowisku metabolicznym mogą prowadzić do upadku tolerancji własnej, jednak zależność przyczynowa między określonymi podzbiorami Treg a HT pozostaje do wyjaśnienia11,12,13,14,15,16.
Tradycyjne badania obserwacyjne są często ograniczone przez zmienne mylące i potencjalną relację przyczynowo-skutkową, co komplikuje możliwość określenia ścisłych relacji przyczynowych między fenotypami komórek immunologicznych a HT17. Ponadto, ponieważ HT jest chorobą ogólnoustrojową, wpływającą na różne podzbiory immunologiczne i pośrednie metabolity, wąskie skupienie się na pojedynczych kandydatach może pominąć nowe czynniki patogenne18. Dlatego konieczne jest zastosowanie dużej skali podejścia przesiewowego, aby zapewnić nieuprzedzone i kompleksowe spojrzenie na czynniki immunometaboliczne przyczyniające się do HT. Ostatnie osiągnięcia w badaniach skojarzeń genomowych (GWAS) dostarczyły kompleksowych danych na temat fenotipów komórek immunologicznych i metabolitów osocza, otwierając nowe szlaki do zbadania mechanizmów leżących u podstaw HT19. Randomizacja Mendelowska (MR) opiera się na zasadach losowego przypisywania gamiet Mendelowskich i wolnych kombinacji16 oraz wykorzystuje polimorfizmy pojedynczego nukleotydu (SNP) jako zmienne instrumentalne (IV) do wywnioskowania potencjalnych przyczynowych wpływów ekspozycji na wyniki20,21. Ta metoda pomaga zmniejszyć wpływ czynników mylących i relację przyczynowo-skutkową, które często komplikują tradycyjne badania obserwacyjne16,22.
W świetle tych rozwojów, celem niniejszego badania jest dwojakie. Po pierwsze, przeprowadzono eksploracyjną analizę generującą hipotezy, wykorzystującą strukturę MR na dwóch próbach, aby systematycznie przesiewać 731 fenotipów komórek immunologicznych i 1400 metabolitów osocza, w celu zidentyfikowania nowych kandydatów do czynników ryzyka HT. Po drugie, przeprowadzono przejście do badania opartego na hipotezie, aby ocenić szczególną rolę mediatorów zidentyfikowanych metabolitów, takich jak izwalerylkarnityna, w ścieżce łączącej komórki T regulatorowe z ryzykiem HT. Niniejsze badanie integruje więc przesiewanie MR na dużą skalę z analizą mediacji i wstępną walidacją kliniczną, aby dostarczyć genetycznie wspartych dowodów zgodnych z hipotetyczną strukturą immunometaboliczną (Treg–metabolit–HT), podkreślając jednocześnie eksploracyjny charakter tych wyników. Identyfikując te precyzyjne łańcuchy przyczynowe, zapewnia się nowe perspektywy na metaboliczną regulację autoimmunologii tarczycy, a także solidne kandydatury na przyszłe cele terapeutyczne.
Protokół
Badanie zostało zatwierdzone przez Komitet Etyczny Szpitala Uniwersytetu Medycznego w Mongolii Wewnętrznej. Wszystkie procedury przeprowadzano zgodnie z Deklaracją Helsińską i odpowiednimi wytycznymi etycznymi. Pisemną, świadomą zgodę uzyskaono od wszystkich uczestników przed rozpoczęciem jakichkolwiek procedur związanych z badaniem. Badanie objęło dwie grupy uczestników: grupę z zapaleniem tarczycy Hashimoto (HT, n = 10) i grupę zdrowych osób kontrolnych (Zdrowi, n = 10). Obie grupy były dobrane z uwzględnieniem wieku i płci. Wszystkie próbki krwi obwodowej pobrane zostały od pacjentów ambulatoryjnych lub osób przechodzących rutynowe badania zdrowia, z pobrania krwi dokonano po 12-godzinnym poście.
Projekt badania
W niniejszym badaniu zastosowano dwu-próbkową analizę MR oraz analizę mediacyjną, aby ocenić przyczynową relację między 731 fenotypami komórek odpornościowych (7 grup) a HT i zbadać potencjalną rolę modulującą metabolitów osocza w tej relacji. Przepływ analityczny składał się z 5 kolejnych kroków: (1) dobór zestawów danych GWAS ekspozycji dla fenotypów odpornościowych; (2) dobór zestawu danych GWAS wyników dla HT; (3) identyfikacja i harmonizacja zmiennych instrumentalnych; (4) pierwotna dwu-próbkowa analiza MR i dwukierunkowa walidacja; oraz (5) dwu-krokowa analiza MR mediacyjna. Schematyczne przedstawienie projektu badania przedstawiono w Rysunku 1 dodatkowym. W analizie MR zmienne genetyczne służą jako proksie dla ekspozycji modyfikowalnych. Aby uzyskać ważne wnioski przyczynowe, zmienne instrumentalne (IV) muszą spełniać trzy podstawowe kryteria: (1) są mocno związane z interesującą nas ekspozycją; (2) są niezależne od wszelkich czynników mylących, które mogą wpływać zarówno na ekspozycję, jak i na wynik; oraz (3) wpływają na wynik wyłącznie poprzez ekspozycję, bez alternatywnych ścieżek przyczynowych.
Zestawy danych GWAS dla źródła danych HT
Aby zapewnić zgodność zestawu danych i zminimalizować stratyfikację populacji, wszystkie statystyki sumaryczne GWAS zostały w pierwszej kolejności pochodzenia europejskiego. Baza danych GWAS (https://gwas.mrcieu.ac.uk/) dostarczyła dane wynikowe dla HT, a użyto zestawu danych ebi-a-GCST90018855. Badanie przeprowadzono GWAS na 395 640 Europejczykach (Ncase = 15 654, Ncontrol = 379 986), po kontroli jakości i interpolacji, przeanalizowano 24 146 037 SNP. Dla czynników mylących specyficznych dla HT (np. płeć, wiek), oryginalne GWAS (ebi-a-GCST90018855) uwzględniły te zmienne w swoich modelach, co jest standardem w pipeline'ach GWAS.
Zestawy danych GWAS dla komórek odpornościowych
Statystyki sumaryczne GWAS dotyczących fenotypów komórek odpornościowych uzyskano z GWAS Catalog, obejmującego zestawy danych z numerami dostępu od ebi-a-GCST90001391 do ebi-a-GCST90002121 (dostępne na https://www.ebi.ac.uk/gwas/). Analiza obejmowała łącznie 731 fenotypów immunologicznych, w tym względne liczby komórek (n = 192), parametry morfologiczne (MP) (n = 389), współczynniki aktywacji (AC, n = 118) oraz średnią intensywność fluorescencji (MFI, n = 389) reprezentującą stopień antygenu powierzchniowego23. Wpływ prawie 22 milionów polimorfizmów na 731 fenotypach komórek odpornościowych u 3757 Sardyńczyków udokumentowało wstępne GWAS na komórki odpornościowe.
Zestawy danych GWAS dla metabolitów osocza
Sumaryczne dane GWAS dla łącznie 1 400 metabolitów osocza pobrane zostały z GWAS Catalog (https://www.ebi.ac.uk/gwas/studies/GCST90199621-90201020), obejmujące 1 091 indywidualnych stężeń metabolitów oraz 309 cech proporcji metabolitów. Zestawy danych GWAS wykorzystane do analizy MR w niniejszym badaniu pochodzą od osób pochodzenia europejskiego. Szczegółowe charakterystyki wykorzystanych danych GWAS dla metabolitów osocza podano w Tabeli 1 dodatkowej.
Zestawy danych GWAS dla fenotypów komórek odpornościowych (sardyńska kohorta), HT (FinnGen/EBI-a-GCST90018855) oraz metabolitów osocza (europejskie kohorty) są niezależne bez nakładania próbek, co potwierdziły odpowiednie publikacje konsorcjum. Spełnia to założenie niezależności dla dwu-próbkowej MR.
Dobór zmiennych instrumentalnych (IV)
Przyjęto założenie, że IV są mocno związane z ekspozycją, zachowując jednocześnie niezależność od zmiennych wynikowych. Ponadto założono, że tylko czynnik ekspozycji ma bezpośredni wpływ na wynik. Aby zidentyfikować odpowiednie IV, wybrano SNP powiązane z czynnikami ekspozycji z poziomem istotności ustawionym na 5 × 10⁻⁸. Aby uwzględnić nierównowagę łączenia (LD),
Wyniki
Genetyczne efekty przyczynowe fenotypów komórek odpornościowych w nadciśnieniu tętniczym (HT)
Po wykluczeniu potencjalnych czynników zakłócających oraz stwierdzeniu braku plejotropii horyzontalnej (P > 0,05), przeprowadzono analizę MR dwóch próbek w celu oceny przyczynowego wpływu fenotypów komórek odpornościowych na ryzyko HT. Dla każdego fenotypu komórek odpornościowych wykorzystanego jako ekspozycja obliczono statystykę F, aby ocenić siłę zmiennych instrumentalnych. Wszystkie instrumenty przekroczyły konwencjonalny próg F > 10, co wskazuje na minimalne obciążenie słabymi instrumentami. Szczegółowe statystyki F dla kluczowych cech odpornościowych omówionych w tekście głównym przedstawiono w Tabeli uzupełniającej 2. Łącznie 32 fenotypy związane z odpornością wykazały istotne powiązania z ryzykiem HT (P < 0,05) (Rysunek 1). Solidność tych wyników została potwierdzona analizami wykresów rozrzutu (Uzupełniający Rysunek 2A,B) oraz analizami wrażliwości z wykorzystaniem metody leave-one-out (Rysunek uzupełniający 3A,B).
Wśród głównych wyników fenotyp Treg wykazał najbardziej rozległy udział, przy czym CD3 na wydzielających Treg CD39+ (OR = 1.063; 95% CI: 1.023–1.105; P = 0.002) oraz %aktywowanych Treg CD39+ aktywowanych Treg (OR = 1.081; 95% CI: 1.008–1.161; P = 0.030) okazały się kluczowymi cechami związanymi z ryzykiem, które następnie priorytetyzowano do analizy mediacji. W etapach dojrzewania limfocytów T, CD3 na CM CD8br wykazało największą wielkość efektu wśród cech związanych z ryzykiem (OR = 1.094; 95% CI: 1.040–1.150; P < 0.001), podczas gdy TD DN (CD4⁻CD8⁻) AC wykazało istotny związek ochronny (OR = 0.930; 95% CI: 0.881–0.982; P = 0.009). Wśród fenotypów limfocytów B, podgrupy komórek mieloidalnych wykazujące ekspresję HLA-DR konsekwentnie wykazywały efekty zwiększające ryzyko, przy czym HLA DR na CD33dim HLA DR+ CD11b⁻ osiągnęło OR = 1.095 (95% CI: 1.032–1.162; P = 0.003). Pełne wyniki dla wszystkich sześciu kategorii komórek odpornościowych: cDC, Treg, etapów dojrzewania limfocytów T, TBNK, monocytów, limfocytów B oraz fenotypów komórek mieloidalnych zostały podsumowane na Rysunku 1.
Analizy wrażliwości dodatkowo potwierdziły uzyskane wyniki. Na podstawie odpowiednich ocen statystycznych nie stwierdzono istotnych dowodów na heterogeniczność i plejotropię horyzontalną (Tabela uzupełniająca 3 oraz Tabela uzupełniająca 4). Wyniki te zostały potwierdzone przez analizę „leave-one-out”.
Przyczynowe efekty HT na komórki odpornościowe
Wyniki wykazały, że HT był pozytywnie powiązany przyczynowo z 2 cechami immunologicznymi: wydzielającymi limfocytami T regulacyjnymi CD4 (1.143: 1.023-1.277; P = 0.018) oraz monocytarnymi mieloidalnymi komórkami supresyjnymi (1.373: 1.058-1.782; P = 0.017). Z kolei HT był negatywnie powiązany przyczynowo z 4 cechami immunologicznymi: aktywowanymi limfocytami T regulacyjnymi CD4 (0.818: 0.679-0.987; P = 0.036), aktywowanymi limfocytami T regulacyjnymi CD4+ (0.790: 0.676-0.924; P = 0.003), aktywowanymi i spoczynkowymi limfocytami T regulacyjnymi CD4 (0.871: 0.780-0.974; P = 0.015) oraz limfocytami T CD25++ CD4+ (0.855: 0.747-0.980; P = 0.017) (Rysunek 2). Odkrycia te sugerują wzajemną zależność między HT a stanami aktywacji Treg, co może odzwierciedlać indukowane chorobą przebudowywanie układu odpornościowego. Wykresy rozrzutu (Rysunek uzupełniający 4) oraz metoda „leave-one-out” (Rysunek uzupełniający 5) potwierdziły stabilność wyników. Analizy wrażliwości również zwalidowały otrzymane rezultaty. Siła tych wyników została potwierdzona oceny heterogeniczności i horyzontalnej wielokrotności (Tabela uzupełniająca 5 oraz Tabela uzupełniająca 6). Wnioski te są wspierane przez analizę „leave-one-out”.
Genetyczne efekty przyczynowe metabolitów osocza w nadciśnieniu tętniczym
Po wybraniu odpowiednich zmiennych instrumentalnych i wykluczeniu niezrównoważenia łańcuchów oraz słabych instrumentów, zidentyfikowano łącznie 34 843 SNP powiązane z metabolitami osocza, przy czym minimalna statystyka F wyniosła 19,50 (Tabela uzupełniająca 7). Przy zastosowaniu metody IVW wstępnie stwierdzono, że 9 metabolitów osocza jest przyczynowo powiązanych z HT. Spośród nich 4 metabolity były pozytywnie skorelowane ze zwiększonym ryzykiem HT: stosunek glukozy do maltozy (1,195: 1,082-1,319; P < 0,001), kwas taurocholowy (1,190: 1,073-1,321; P = 0,001), 5-hydroksymetylo-2-furoylokarnityna (1,127: 1,046-1,215; P = 0,002) oraz C5 (1,120: 1,032-1,215; P = 0,006) (Tabela 1).
Z drugiej strony, 5 metabolitów może być ujemnie skorelowanych z ryzykiem HT, w tym ergoteineina (0.958: 0.927-0.990; P = 0.010), stosunek karnytyny do propionylokarnytyny (C3) (0.895: 0.825-0.970; P = 0.007), stosunek adenozylo-5'-difosforanu (ADP) do N-acetyloneuraminianu (0.890: 0.823-0.963; P = 0.004), stosunek argininy do glutaminianu (0.882: 0.802-0.968; P = 0.009) oraz 1-(1-enyl-palmitoyl)-2-linoleoyl-GPE (p-16:0/18:2) (0.873: 0.798-0.955; P = 0.003).
Analizy wrażliwości również potwierdziły uzyskane wyniki. Wiarygodność tych wyników została potwierdzona poprzez oceny heterogeniczności i multiplicity poziomej (Supplementary Table 8 oraz Supplementary Table 9). Wnioski te są wspierane przez analizę typu „leave-one-out”.
Mediacja ryzyka HT przez komórki odpornościowe i metabolity osocza
W oparciu o wcześniej zidentyfikowane fenotypy komórek odpornościowych i metabolity osocza zastosowano strategię MR dla dwóch próbek w celu oszacowania potencjalnych efektów mediacyjnych. W pierwszym kroku przeprowadzono analizy MR, przyjmując 32 fenotypy komórek odpornościowych jako ekspozycje i 9 metabolitów osocza jako wyniki, co ujawniło 12 istotnych związków przyczynowych obejmujących 10 fenotypów komórek odpornościowych i 8 metabolitów osocza, z odpowiadającymi im szacunkami efektu β1 od komórek odpornościowych do metabolitów. Wśród nich najistotniejszy związek zidentyfikowano pomiędzy CD3 na wydzielających Treg komórkach CD39+ a poziomem C5 (1,050: 1,016-1,085; P = 0,004). W drugim kroku C5 potraktowano jako ekspozycję, a HT jako wynik. Wykonano analizy MR, w tym wykrywanie wartości odstających metodą MR-PRESSO oraz oceny heterogeniczności i plejotropii poziomej. Nie wykryto odstających SNP ani dowodów na heterogeniczność lub plejotropię (Tabela 2), co pozwoliło na oszacowanie efektu przyczynowego od metabolitu osocza do HT (β2) (Rycina uzupełniająca 6).
W końcowym etapie analizy MR przeprowadzono analizy mediacji, aby wyjaśnić, czy przyczynowy wpływ fenotypów komórek odpornościowych na HT jest mediowany przez metabolity osocza. Wyniki wykazały, że podwyższone poziomy C5 pełniły rolę mediatora w ścieżce łączącej CD3 na wydzielających Treg komórkach CD39+ z wyższym ryzykiem rozwoju HT (Rycina uzupełniająca 7 oraz Rycina 3). Testy wykrywania wartości odstających MR-PRESSO, testy heterogeniczności i plejotropii nie wykazały obciążonych SNP ani oznak heterogeniczności lub plejotropii horyzontalnej (Tabela 3, Tabela uzupełniająca 10, oraz Tabela uzupełniająca 11). Wśród nich proporcja mediacji poziomu C5 wyniosła 8,89% (2,34% do 15,4%) (P = 0,008). Ostatecznie przeprowadzono odwrotne analizy mediacji MR, aby rygorystycznie przetestować założenia dotyczące kierunkowości. W przypadku zależności od metabolitów do komórek odpornościowych, odwrotna analiza MR (poziomy C5 do CD3 na wydzielających Treg komórkach CD39+) nie wykazała istotnych efektów przyczynowych (IVW P > 0,05 po korekcie Bonferroniego), co potwierdza jednokierunkowość (Tabela 4). W przypadku zależności od HT do metabolitów, odwrotna analiza MR (HT do poziomów C5) nie wykazała powiązań przyczynowych (IVW P > 0,05 po korekcie Bonferroniego), co potwierdza przyjętą kierunkowość (Tabela 5). Biorąc pod uwagę umiarkowany efekt całkowity oraz brak dowodów wzajemnych w dwukierunkowej analizie MR, wyniki mediacji te należy uznać za wstępne.
Analiza cytometryczna do wykrywania komórek Treg CD3+CD4+CD25+CD39+
Aby zweryfikować wyniki analizy metabolomicznej, in vitro przeprowadzono walidację eksperymentalną w celu oceny charakterystyki ekspresji CD39+ Treg a poziom C5 w osoczu. Do ilościowego oznaczenia komórek Treg (CD3⁺CD4⁺CD25⁺) oraz ich podzbiorów CD39⁺ (CD3⁺CD4⁺CD25⁺CD39⁺) we krwi obwodowej pacjentów z HT i zdrowej grupy kontrolnej wykorzystano cytometrię przepływową. Jak pokazano w Rysunek 4A–Czarówno liczba komórek Treg (CD3⁺CD4⁺CD25⁺), jak i podgrupy Treg CD39⁺ była znacznie wyższa u pacjentów z nadciśnieniem tętniczym w porównaniu z osobami zdrowymi (P < 0,001). Celowana analiza profilu metabolomicznego osocza z wykorzystaniem tandemowej spektrometrii mas wykazała ponadto, że poziomy C5 były znacznie wyższe w grupie HT (P < 0.001, Rysunek 4D). Ponadto analiza korelacji Pearsona wykazała pozytywną zależność między poziomami C5 w osoczu a częstością występowania podgrupy CD39⁺Treg (Rysunek 4E), co jest zgodne z domniemaną ścieżką CD39⁺Treg-C5-HT zidentyfikowaną przez MR. Jednakże przekrojowy charakter badania oraz mała liczebność próby uniemożliwiają wyciągnięcie wniosków przyczynowych wyłącznie na podstawie tych danych.
DOSTĘPNOŚĆ DANYCH:
Statystyki podsumowujące badanie asocjacyjne całego genomu (GWAS) dla Hashimoto’s thyroiditis pobrano z katalogu GWAS Catalog (ebi-a-GCST90018855; https://gwas.mrcieu.ac.uk/). Statystyki podsumowujące cechy komórek odpornościowych pobrano z katalogu GWAS Catalog (od ebi-a-GCST90001391 do ebi-a-GCST90002121; https://www.ebi.ac.uk/gwas/). Dane GWAS dla metabolitów osocza pobrano z katalogu GWAS Catalog (GCST90199621-GCST90201020; https://www.ebi.ac.uk/gwas/studies/GCST90199621-90201020). Dane stanowiące podstawę wyników niniejszego badania znajdują się w Supplementary File 1.
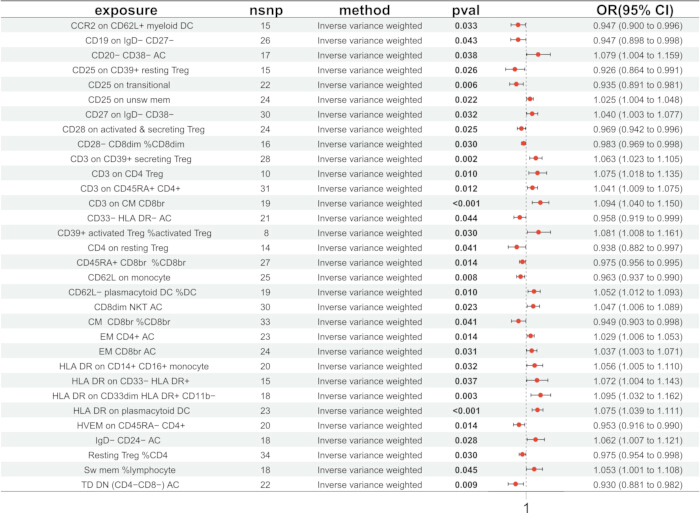
Rycina 1: Wykres leśny przedstawiający związki przyczynowe cech komórek odpornościowych z zapaleniem tarczycy Hashimoto. Wykres leśny podsumowujący związki przyczynowe wszystkich badanych w niniejszej pracy cech komórek odpornościowych z zapaleniem tarczycy Hashimoto (HT). Skróty: nsnp, liczba polimorfizmów pojedynczego nukleotydu (SNPs); pval, wartość P; OR, iloraz szans; CI, przedział ufności. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
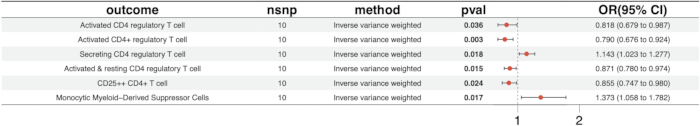
Rycina 2: Wykres leśny przedstawiający efekty przyczynowe Hashimoto w odniesieniu do fenotypów komórek odpornościowych. Wykres leśny podsumowujący efekty przyczynowe HT na różne fenotypy komórek odpornościowych. Skróty: nsnp, liczba SNP; pval, wartość P; OR, iloraz szans; CI, przedział ufności. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
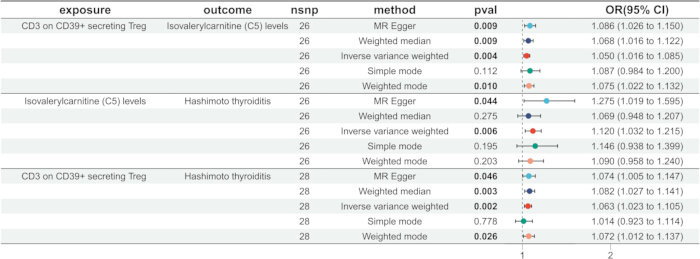
Rysunek 3: Wykres leśny przedstawiający efekt mediacyjny izowalerylokarnityny (C5) w osoczu pomiędzy CD39+ a zapaleniem tarczycy Hashimoto. Wykres leśny podsumowujący efekty przyczynowe C5 w osoczu, które pośredniczą w powiązaniu między CD39+ a HT. Skróty: OR, iloraz szans; CI, przedział ufności. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
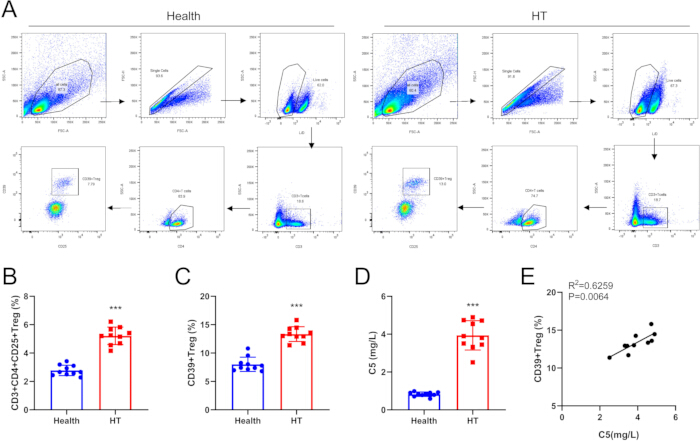
Rycina 4: Ekspresja regulacyjnych komórek T CD39+ i poziomy izowalerylokarnityny (C5) w osoczu u pacjentów z zapaleniem tarczycy Hashimoto. (A) Strategia bramkowania w cytometrii przepływowej dla regulacyjnych komórek T (Treg; CD3+CD4+CD25+) oraz komórek CD39+ Treg. (B) Całkowite poziomy komórek Treg. (C) Poziomy komórek CD39+ Treg. (D) Poziomy izowalerylokarnityny (C5) w osoczu zmierzone za pomocą tandemowej spektrometrii mas. (E) Analiza korelacji Pearsona pomiędzy poziomami izowalerylokarnityny (C5) w osoczu a proporcją komórek CD39+ Treg. Skróty: SSC-A, pole rozproszenia bocznego; FSC-A, pole rozproszenia przedniego; FSC-H, wysokość rozproszenia przedniego. ***P < 0.001 względem zdrowych kontroli. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela 1: Efekty przyczynowe dziewięciu istotnie powiązanych metabolitów osocza w zapaleniu tarczycy Hashimoto. Kliknij tutaj, aby pobrać ten plik.
Tabela 2: Efekt przyczynowy poziomu izowalerylokarnityny (C5) w zapaleniu tarczycy Hashimoto (β₂). Kliknij tutaj, aby pobrać ten plik.
Tabela 3: Przyczynowy wpływ regulatorowych limfocytów T CD3+CD39+ na zapalenie tarczycy Hashimoto. Kliknij tutaj, aby pobrać ten plik.
Tabela 4: Wpływ poziomu izowalertylokarnityny (C5) na regulacyjne limfocyty T CD3+CD39+.Proszę kliknąć tutaj, aby pobrać ten plik.
Tabela 5: Wpływ przyczynowy zapalenia tarczycy Hashimoto na poziomy izowalerylokarnityny (C5). Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 1: Projekt badania i schemat analizy. Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 2: Wykresy rozrzutu przedstawiające szacunki przyczynowe dla powiązań między 32 cechami komórek odpornościowych a zapaleniem tarczycy Hashimoto. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 3: Analizy typu „leave-one-out” oceniające odporność efektów przyczynowych 32 cech komórek odpornościowych w zapaleniu tarczycy Hashimoto.Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 4: Wykresy punktowe przedstawiające związki przyczynowe zapalenia tarczycy Hashimoto z sześcioma fenotypami komórek odpornościowych.Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 5: Analizy typu leave-one-out oceniające odporność efektów przyczynowych zapalenia tarczycy Hashimoto na sześć fenotypów komórek odpornościowych. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 6: Związek przyczynowy między poziomami izowalerylokarnityny (C5) a ryzykiem zapalenia tarczycy Hashimoto. (A) Wykres leśny (forest plot) przedstawiający efekt przyczynowy poziomu izowalerylokarnityny (C5) na ryzyko HT (β₂). (B) Wykres rozproszony przedstawiający szacowany efekt przyczynowy każdego SNP na ryzyko HT. (C) Wykres lejkowy (funnel plot) oceniający heterogeniczność szacunków randomizacji mendlowskiej (MR) dla wpływu poziomu C5 na ryzyko HT. (D) Analiza z pominięciem jednego wariantu (leave-one-out), wykazująca, że całkowita ocena ryzyka nie była w znacznym stopniu zależna od żadnego pojedynczego SNP. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 7: Związek przyczynowy między regulacyjnymi limfocytami T CD3+CD39+ a ryzykiem zapalenia tarczycy Hashimoto. (A) Wykres leśny (forest plot) przedstawiający całkowity efekt przyczynowy regulacyjnych limfocytów T CD3+CD39+ na ryzyko HT. (B) Wykres rozrzutu przedstawiający szacowany efekt przyczynowy dla każdego SNP w odniesieniu do ryzyka HT. (C) Wykres lejkowy (funnel plot) oceniający heterogeniczność szacunków MR dla efektu regulacyjnych limfocytów T CD3+CD39+ na ryzyko HT. (D) Analiza z pominięciem pojedynczego wariantu (leave-one-out analysis) wykazująca, że ogólna ocena ryzyka nie była w istotny sposób wpływana przez żaden pojedynczy SNP. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Charakterystyka zbiorów danych z badania asocjacyjnego całego genomu dla metabolitów osocza wykorzystanych w analizie randomizacji mendlowskiej.Prosimy kliknąć tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Charakterystyka zmiennych instrumentalnych (SNP) i statystyki F dla kluczowych fenotypów komórek odpornościowych wykorzystanych jako ekspozycje w analizie randomizacji mendlowskiej. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 3: Ocena plejotropii dla analiz randomizacji mendlowskiej fenotypów komórek odpornościowych w kontekście Hashimoto thyroiditis.Prosimy kliknąć tutaj, aby pobrać ten plik.
Tabela uzupełniająca 4: Ocena heterogeniczności dla analiz randomizacji mendlowskiej fenotypów komórek odpornościowych w zapaleniu tarczycy Hashimoto. Prosimy kliknąć tutaj, aby pobrać ten plik.
Tabela uzupełniająca 5: Ocena plejotropii dla analiz randomizacji mendlowskiej wpływu zapalenia tarczycy Hashimoto na fenotypy komórek odpornościowych.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 6: Ocena heterogeniczności dla analiz randomizacji mendlowskiej wpływu zapalenia tarczycy Hashimoto na fenotypy komórek odpornościowych.Aby pobrać ten plik, kliknij tutaj.
Tabela uzupełniająca 7: Polimorfizmy pojedynczego nukleotydu związane z metabolitami osocza. Aby pobrać ten plik, kliknij tutaj.
Tabela uzupełniająca 8: Ocena plejotropii dla analiz randomizacji mendlowskiej wpływu metabolitów osocza na zapalenie tarczycy Hashimoto. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 9: Ocena heterogeniczności dla analiz randomizacji mendlowskiej metabolitów osocza w chorobie Hashimoto.Prosimy kliknąć tutaj, aby pobrać ten plik.
Tabela uzupełniająca 10: Ocena plejotropii dla analiz mediacji powiązań między fenotypem komórek odpornościowych a zapaleniem tarczycy Hashimoto za pośrednictwem metabolitów osocza.Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 11: Ocena heterogeniczności dla analiz mediacyjnych powiązań fenotypu komórek odpornościowych z zapaleniem tarczycy Hashimoto za pośrednictwem metabolitów osocza.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1: Dane wspierające wyniki niniejszego badania.Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
W tej pracy zastosowano randomizację Mendelowską w celu zbadania przyczynowego wpływu fenotypu komórek odpornościowych na zapalenie tarczycy Hashimoto (HT) i zbadania potencjalnej roli pośredniczącej metabolitów osocza. Zidentyfikowano trzydzieści dwa fenotypy odpornościowe związane z ryzykiem HT, obejmujące komórki dendrytyczne, komórki T regulacyjne, etapy dojrzewania komórek T, komórki B i komórki mieloidalne, z zarówno działaniem sprzyjającym ryzykowi, jak i ochronnym. Ponadto 9 metabolitów osocza wykazało przyczynowe związki z HT, a dodatkowo stwierdzono, że C5 może częściowo pośredniczyć w związku między ekspresją CD3 na komórkach Treg wydzielanych CD39 a HT. Te wyniki powinny być interpretowane jako dowód na przypuszczalne przyczynowe efekty wnioskowane z instrumentów genetycznych, a nie bezpośrednie potwierdzenie mechanizmu.
Wśród fenotipow cDC, CD62L- plazmocytoidalne DC %DC i HLA DR na plazmocytoidalnych DC były związane ze zwiększonym ryzykiem HT, podczas gdy CCR2 na CD62L+ mieloidalnych DC, CD39+ aktywowane Treg %aktywowanych Treg i CD62L na monocytach. Zidentyfikowane związki między określonymi fenotipow komórek odpornościowych a HT oferują nowe wglądy w patogenezę choroby. Na przykład stwierdzono, że ryzyko HT koreluje z cechami takimi jak HLA DR na plazmocytoidalnych DC i CD62L-plazmocytoidalne DC, co wskazuje, że te typy komórek mogą być istotne w inicjowaniu lub utrzymywaniu reakcji autoimmunologicznych przeciwko gruczołowi tarczycowemu 28. Liczne badania wykazały, że komórki nabłonkowe tarczycy z HLA DR+ aktywnie stymulują odpowiedzi odpornościowe w gruczołach tarczycowych pacjentów z HT28,29,30,31. To badanie ujawniło korelację między HLA DR na plazmocytoidalnych a podwyższonym ryzykiem HT, co wskazuje, że HLA DR na plazmocytoidalnych może być czynnikiem przyczynowym w HT. Poprzednie badania identyfikowały kluczowe geny o wysokiej dokładności diagnostycznej dla HT metodami bioinformatycznymi, a testy immunologiczne wykazały, że infiltracja monocytów jest ujemnie skorelowana z ekspresją kluczowych genów. Xu i in.32 zgłosili, że wyższy poziom ekspresji CD62L na monocytach był związany ze zmniejszonym ryzykiem HT, zgodnie z obecnymi wynikami. W szczególności fenotypy takie jak CCR2 na CD62L+ mieloidalnych komórkach dendrytycznych i CD62L na monocytach były związane z efektem ochronnym, wskazując na potencjalne role regulacyjne lub supresyjne, które mogą łagodzić autoimmunizację tarczycy.
Liczne dowody wskazują na krytyczną rolę równowagi komórek Th17 i Treg w rozwoju HT33,34. To badanie zidentyfikowało przyczynowy związek między HT a kilkoma cechami Treg. W szczególności ryzyko rozwoju HT było odwrotnie związane z ekspresją CD25 na spoczynkowych komórkach T regulacyjnych CD39+, podczas gdy stosunek Th17/Treg zwiększał się wraz z postępem HT35. Skomplikowana funkcja komórek T regulacyjnych w zachowaniu tolerancji immunologicznej i zapobieganiu chorobom autoimmunologicznym jest podkreślona przez silne korelacje różnych fenotipow Treg zarówno ze zwiększonym, jak i zmniejszonym ryzykiem HT. Komórki Treg są dualne, przy czym niektóre podgrupy mogą nasilać reakcje autoimmunologiczne, podczas gdy inne je tłumią. Podkreśla to potrzebę dalszych badań w celu dokładnego określenia ich ról w HT.
Ponadto, w fazach dojrzewania komórek T, grupach TBNK, monocytów i komórek B, obserwowano spójny wzór, w którym niektóre fenotypy odpornościowe były związane z wyższym ryzykiem HT, podczas gdy inne zdawały się zapewniać efekt ochronny32,36,37,38. Podkreśla to skomplikowane zaangażowanie komórek odpornościowych w rozwój HT. Przeprowadzono również analizę MR odwrotną w celu zbadania wpływu HT na cechy komórek odpornościowych. Analiza wykazała, że HT był związany ze zwiększonymi poziomem niektórych fenotipow komórek odpornościowych, takich jak wydzielane komórki T regulatorowe CD4 i monocytarne MDSC, oraz zmniejszonymi innymi, w szczególności aktywowanymi komórkami T regulatorowymi CD4 i komórkami T CD25+ CD4+.
Na szczególną uwagę zasługuje analiza pośrednicząca, która podkreśla przyczynową rolę poziomów C5 w progresji od fenotipu komórek odpornościowych do rozwoju HT. Poprzednie badania wykazały, że poziomy C5 w osoczu przyczyniają się do rozwoju neuropatii obwodowej cukrzycowej39 i są skorelowane zarówno z sarkopenia, jak i zmniejszonym wskaźnikiem mięśni szkieletowych40. Ponadto, pod względem metabolizmu lipidów, niższe stężenia izovaleryllarniny obserwowano u osób o fenotypie niedoborów41. Proporcja pośredniczenia 8,89% zaobserwowana w tym badaniu sugeruje, że C5 może reprezentować przypuszczalne połąc
Oświadczenia
Autorzy deklarują, że badania przeprowadzono bez żadnych komercyjnych lub finansowych relacji, które mogłyby być interpretowane jako potencjalny konflikt interesów.
Podziękowania
Jesteśmy wdzięczni wszystkim badaniom, które udostępniły publiczne dane podsumowujące GWAS. Ten artykuł jest finansowany przez Specjalistyczne Regionalne Centrum Medyczne Regionu Autonomicznego Wewnętrznej Mongolii.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| CD25-PE monoclonal antibody | BD Biosciences | 340938 | Przeciwciało do cytometrii przepływowej do wykrywania ludzkiego CD25 |
| CD39-PE-Cy7 monoclonal antibody | BD Biosciences | 567526 | Przeciwciało do cytometrii przepływowej do wykrywania ludzkiego CD39 |
| CD4-FITC monoclonal antibody | BD Biosciences | 340133 | Przeciwciało do cytometrii przepływowej do wykrywania ludzkiego CD4 |
| D3-APC monoclonal antibody | BD Biosciences | 555333 | Przeciwciało do cytometrii przepływowej do wykrywania ludzkiego CD3 |
| FACS Lysing Solution | BD Biosciences | 349202 | Bufor do lizy czerwonych krwinek do przygotowania próbek do cytometrii przepływowej |
| Flow cytometer | BD Biosciences | FACSCanto II | Wielokolorowy instrument do cytometrii przepływowej do immunofenotypizacji |
| Flow cytometry analysis software (FACSDiva) | BD Biosciences | — | Oprogramowanie do pozyskiwania i analizy danych cytometrii przepływowej |
| gwasglue package | R package | — | Harmonizacja zestawów danych GWAS |
| ieugwasr package | R package | — | Interfejs do bazy danych IEU GWAS |
| Liquid chromatography–tandem mass spectrometry system (LC–MS/MS) | Thermo Fisher Scientific | — | Używany do ilościowego oznaczania izowalerylkarnityny (C5) w osoczu |
| Phosphate-buffered saline (PBS) | Thermo Fisher Scientific | AM9624 | Sterylny PBS, pH 7,4, stosowany do mycia i resuspendowania |
| R software | Oprogramowanie open source | Wersja 4.4.1 | Środowisko do analizy statystycznej |
| TwoSampleMR package | R package | — | Pakiet do analizy randomizacji mendelowskiej |
| VariantAnnotation package | Bioconductor | — | Adnotacja danych wariantów |
Bibliografia
- Koca SB, Seber T. Factors affecting thyroid elastography in healthy children and patients with Hashimoto’s thyroiditis. J Clin Res Pediatr Endocrinol. 2023;15(1):7-15.
- Zhao T, et al. Comparison of various ultrasound-based malignant risk stratification systems on an occasion for assessing thyroid nodules in Hashimoto's thyroiditis. Int J Gen Med. 2023;16:599-608.
- Chen P, et al. Effect of large dosage of Prunella on Hashimoto's thyroiditis: a protocol of systematic review and meta-analysis of randomized clinical trials. Medicine (Baltimore). 2020;99(50):e23391.
- Won JH, et al. Thyroid nodules and cancer in children and adolescents affected by Hashimoto's thyroiditis. Br J Radiol. 2018;91(1087):20180014.
- Liu Y, et al. The impact of coexistent Hashimoto’s thyroiditis on central compartment lymph node metastasis in papillary thyroid carcinoma. Front Endocrinol (Lausanne). 2021;12:772071.
- Weetman AP. An update on the pathogenesis of Hashimoto's thyroiditis. J Endocrinol Invest. 2021;44(5):883-890.
- Ihnatowicz P, et al. The importance of nutritional factors and dietary management of Hashimoto's thyroiditis. Ann Agric Environ Med. 2020;27(2):184-193.
- Ragusa F, et al. Hashimoto's thyroiditis: epidemiology, pathogenesis, clinic and therapy. Best Pract Res Clin Endocrinol Metab. 2019;33(6):101367.
- Janicki L, et al. Prevalence and impact of BRAF mutation in patients with concomitant papillary thyroid carcinoma and Hashimoto's thyroiditis: a systematic review with meta-analysis. Front Endocrinol (Lausanne). 2023;14:1273498.
- Hwangbo Y, Park YJ. Genome-wide association studies of autoimmune thyroid diseases, thyroid function, and thyroid cancer. Endocrinol Metab (Seoul). 2018;33(2):175-184.
- Hu Y, et al. Effect of selenium on thyroid autoimmunity and regulatory T cells in patients with Hashimoto's thyroiditis: a prospective randomized-controlled trial. Clin Transl Sci. 2021;14(4):1390-1402.
- Ralli M, et al. Hashimoto's thyroiditis: an update on pathogenic mechanisms, diagnostic protocols, therapeutic strategies, and potential malignant transformation. Autoimmun Rev. 2020;19(10):102649.
- Pyzik A, et al. Immune disorders in Hashimoto's thyroiditis: what do we know so far? J Immunol Res. 2015;2015:979167.
- Zhang QY, et al. Lymphocyte infiltration and thyrocyte destruction are driven by stromal and immune cell components in Hashimoto's thyroiditis. Nat Commun. 2022;13(1):775.
- Zheng H, et al. A global regulatory network for dysregulated gene expression and abnormal metabolic signaling in immune cells in the microenvironment of Graves' disease and Hashimoto's thyroiditis. Front Immunol. 2022;13:879824.
- Guo J, et al. Treg cells as a protective factor for Hashimoto's thyroiditis: a Mendelian randomization study. Front Endocrinol (Lausanne). 2024;15:1347695.
- Xu D, Wu B. Association between systemic lupus erythematosus and osteoporosis: a Mendelian randomization analysis. BMC Rheumatol. 2024;8(1):17.
- Moon G, Park JH, Lee T, Yoon JH. A machine learning-based model for preoperative assessment and malignancy prediction in patients with atypia of undetermined significance thyroid nodules. J Clin Med. 2024;13(24):7769.
- Yan J, et al. Gut microbiota's role in glioblastoma risk, with a focus on the mediating role of metabolites. Front Neurol. 2024;15:1386885.
- Portilla-Fernandez E, et al. Genetic and clinical determinants of abdominal aortic diameter: genome-wide association studies, exome array data and Mendelian randomization study. Hum Mol Genet. 2022;31(20):3566-3579.
- Bowden J, Holmes MV. Meta-analysis and Mendelian randomization: a review. Res Synth Methods. 2019;10(4):486-496.
- Luo H, et al. Causal relationships between CD25 on immune cells and hip osteoarthritis. Front Immunol. 2023;14:1247710.
- Zha B, et al. Distribution of lymphocyte subpopulations in thyroid glands of human autoimmune thyroid disease. J Clin Lab Anal. 2014;28(3):249-254.
- Burgess S, et al. A review of instrumental variable estimators for Mendelian randomization. Stat Methods Med Res. 2017;26(5):2333-2355.
- Bowden J, et al. Mendelian randomization with invalid instruments: effect estimation and bias detection through Egger regression. Int J Epidemiol. 2015;44(2):512-525.
- Bowden J, et al. Consistent estimation in Mendelian randomization with some invalid instruments using a weighted median estimator. Genet Epidemiol. 2016;40(4):304-314.
- Hartwig FP, et al. Robust inference in summary data Mendelian randomization via. the zero modal pleiotropy assumption. Int J Epidemiol. 2017;46(6):1985-1998.
- Zhao Z, et al. Causal role of immune cells in Hashimoto's thyroiditis: Mendelian randomization study. Front Endocrinol (Lausanne). 2024;15:1352616.
- Wang C, et al. Causal role of immune cells in schizophrenia: Mendelian randomization study. BMC Psychiatry. 2023;23(1):590.
- Aichinger G, et al. In situ immune complexes, lymphocyte subpopulations, and HLA-DR-positive epithelial cells in Hashimoto thyroiditis. Lab Invest. 1985;52(2):132-140.
- Yu M, et al. Discordant expression of Ii and HLA-DR in thyrocytes: a possible pathogenetic factor in Hashimoto's thyroiditis. Endocr Pathol. 1998;9(3):201-208.
- Xu B, et al. Comprehensive analysis of hub biomarkers associated with immune and oxidative stress in Hashimoto's thyroiditis. Arch Biochem Biophys. 2023;745:109713.
- Fang J, et al. The changes in peripheral blood Th17 and Treg ratios in Hashimoto's thyroiditis are accompanied by differential PD-1/PD-L1 expression. Front Endocrinol (Lausanne). 2022;13:959477.
- Wang W, et al. Leptin receptor antagonist attenuates experimental autoimmune thyroiditis in mice by regulating Treg/Th17 cell differentiation. Front Endocrinol (Lausanne). 2022;13:1042511.
- Liu Y, et al. Th17/Treg cells imbalance and GITRL profile in patients with Hashimoto's thyroiditis. Int J Mol Sci. 2014;15(12):21674-21686.
- Cai YJ, et al. Hashimoto's thyroiditis induces neuroinflammation and emotional alterations in euthyroid mice. J Neuroinflammation. 2018;15(1):299.
- Raoof IB, et al. The prevalence role of monocyte chemoattractant protein-1 in Hashimoto's thyroiditis via .various stimuli mechanisms. J Pharm Bioallied Sci. 2021;13(2):244-247.
- Krysiak R, Okopien B. The effect of levothyroxine and selenomethionine on lymphocyte and monocyte cytokine release in women with Hashimoto's thyroiditis. J Clin Endocrinol Metab. 2011;96(7):2206-2215.
- An Z, et al. Correlation between acylcarnitine and peripheral neuropathy in type 2 diabetes mellitus. J Diabetes Res. 2022;2022:8115173.
- Meng L, et al. Specific lysophosphatidylcholine and acylcarnitine related to sarcopenia and its components in older men. BMC Geriatr. 2022;22(1):249.
- Meng L, et al. Specific metabolites involved in antioxidation and mitochondrial function are correlated with frailty in elderly men. Front Med (Lausanne). 2022;9:816045.
- Valencia-Hernández CA, Del Greco MF, Sundaram V, Portas L, Minelli C, Bloom CI. Asthma and incident coronary heart disease: an observational and Mendelian randomisation study. Eur Respir J. 2023;62(5):2301788.
- Li W, et al. Assessment of the relationship between telomere length and atherosclerosis: a Mendelian randomization study. Medicine (Baltimore). 2023;102(46):e35875.
- Morgan RA, et al. Carbonyl reductase 1 catalyzes 20β-reduction of glucocorticoids, modulating receptor activation and metabolic complications of obesity. Sci Rep. 2017;7(1):10633.