Niniejszy przegląd określa oś immunometliczną między jelitami a wątrobą w chorobie steatotycznej wątroby związanej z zaburzeniami metabolicznymi oraz jej fenotypu zapalno-fibrotycznego (MASH), od niepowodzenia bariery do aktywacji inflammasomu, a także ocenia produkty naturalne wielocelowe i strategie zhierarchizowane przez biomarkery precyzyjne interwencje.
Artykuł przeglądowy
Tradycyjna modulacja osi jelita i wątroby w medycynie chińskiej: od zakłócenia bariery do aktywacji inflammasomu w MASLD/MASH
W tym artykule
Podsumowanie
Streszczenie
Zaburzenia metaboliczne związane ze steatotyczną chorobą wątroby (MASLD) oraz jej fenotyp zapalno-fibrotyczny (MASH) wykazują wyraźne sprzężenie immunometliczne. Niniejszy przegląd syntetyzuje dowody wzdłuż osi jelit–wątroba, od niewydolności nabłonkowego styku ciasnego i bariery naczyniowej jelitowej (GVB) po amplifikację TLR4–MyD88/TRIF–NF-κB oraz aktywację inflammasomu NLRP3, a także przedstawia logikę spektrum ekspozycji pochodzącego z jelit—lipopolisacharyd (LPS), endogenny etanol, kwasy żółciowe (BA), krótkołańcuchowe kwasy tłuszczowe (SCFA) oraz trimetyloamina N-tlenek (TMAO). Ustawiamy BA-FXR/TGR5, SCFAs-GPR41/43 oraz AMPK/Nrf2 jako modulatory upstream/downstream, które resetują progi zapalne i zapewniają podatność na ukarzanie od stopnia. Na podstawie mapowania węzłów do szlaków podsumowujemy mechanizmy i sygnały translacyjne dla berberyny (BBR), Qushihuayu (QSHY), dekokcji Da-Chai-Hu (DCHD) oraz polisacharydów (np. Astragalus, Ganoderma), kładąc nacisk na farmakokinetyczne i miejsca ekspozycji ograniczenia wspierające działanie "jelitowe w pierwszej kolejności". Proponujemy minimalny zestaw biomarkerów towarzyszących — LBP/sCD14, profile BA z dynamiką FGF19–C4 oraz IL-1β/GSDMD-N — połączony z hierarchicznymi bramkami obrazowania (≥30% względny spadek MRI-PDFF; MRE/ELF) do wspierania typowania odpowiedzi i decyzji go/no-go. Na koniec podkreślamy kluczowe luki (bezpośrednie odczyty ludzkiego GVB; podłużne multi-omiki powiązane z wynikami klinicznymi) oraz przedstawiamy ścieżkę wieloetapową (MAMS) napędzaną biomarkerami dla adaptacyjnego, warstwowego rozwoju wielocelowych interwencji medycyny tradycyjnej w MASLD/MASH.
Wprowadzenie
Steatotyczna choroba wątroby (MASLD) powiązana z zaburzeniami metabolicznymi oraz jej fenotyp zapalno-fibrotyczny MASH są coraz częściej przedstawiane nie jako izolowane zaburzenia metaboliczne, lecz jako stany systemowe wywołane zaburzeniami immunometlicznymi. Zbieżne dowody umieszczają oś jelita – wątroba w centrum ewolucji choroby: gdy integralność bariery jelitowej słabnie, wzorce molekularne związane z patogenami świetlnymi i sygnały metaboliczne łatwiej dochodzą do krążenia wrotnego, inicjując i wzmacniając wewnątrzwątrobową wrodzoną odpowiedź immunologiczną1. Mechanicznie dysfunkcja bariery obejmuje przebudowę nabłonka ciasnego złącza oraz zakłócenie bariery naczyniowej jelitowej (GVB), a także zwiększenie dostarczania sygnałów pochodzących od mikroorganizmów i diety, które obniżają próg aktywacji wrodzonej odporności wątroby.
Pod nabłonkiem bariera naczyniowa jelitowa (GVB) pełni funkcję drugiego punktu kontrolnego, z zasadami selektywności analogicznymi do bariery krew–mózg. Dane eksperymentalne i translacyjne wskazują, że destabilizacja GVB może poprzedzać jawne steato-wątroby, a stabilizacja bariery jest mechanistycznie powiązana ze zmniejszonym obciążeniem zapalnym w obrocie.
Endotoxyna krążąca (lipopolisacharyd, LPS) wykazuje najbardziej spójne pozytywne powiązanie z progresją od MASLD do MASH oraz zaawansowanego włóknienia, umacniając związek na poziomie populacji między obciążeniem molekularnym pochodzącym z jelit a uszkodzeniem wątroby1. Droga "autowarzenia" jest również przyczynowa: wysoko produkowana alkoholem Klebsiella pneumoniae wiąże się z MASLD, a kolonizacja eksperymentalna indukuje stłuszczenie wątroby przy braku egzogenicznego etanolu2. Dodatkowe metabolity pochodzące z jelit (np. kwasy żółciowe, SCFA i TMAO) kształtują tonus immunometliczny gospodarza i mogą przyczyniać się do międzyosobowej heterogeniczności w przebiegu choroby i odpowiedzi na leczenie.
Na poziomie receptorów i szlaków sygnały wrotne są wykrywane w sinusoidze przez TLR4/MD-2, który sygnalizuje przez MyD88/TRIF→IKK aktywację NF-κB, zwiększając regulację TNF-α, IL-1β i CCL2 oraz napędzając infiltrację leukocytów i uszkodzenie mięścia-przyduszkowy3. TLR4 dodatkowo obniża poziom pseudoreceptora TGF-β BAMBI w komórkach wątrobowych gwiaździstych, uczulając sygnalizację fibrogeniczną, oraz rekrutuje monocyty przez oś CCL2/CCR2, łącząc tym samym stan zapalny z włóknieniem 4,5. W dalszej fazie NLRP3 inflammasom wymaga stymulacji NF-κB (sygnał 1) wraz ze stymulacjami mitochondrialnymi ROS, ATP–P2X7 lub kryształami cholesterolu (sygnał 2), aby aktywować kaspazę-1, uwolnić IL-1β/IL-18 i wykonać pirostozę; hamowanie farmakologiczne (np. MCC950) jest skuteczne w kilku modelach, ale korzyści histologiczne nie są jednolite w kontekstach wysokotłuszczowych i cholesterolowych, co wskazuje, że "podatność na lekowanie" jest ograniczona przez skład DAMP i czas 6,7,8. Równolegle szlaki BA–FXR/TGR5, SCFA–GPR41/43 oraz AMPK/Nrf2 modulują kręgosłup na wielu poziomach, resetując progi zapalne i nadając zależną od etapu reakcję 9,10,11.
Ten system wyznacza węzły umożliwiające działania dla interwencji wielocelowej. Berberyna (BBR) jest przykładem strategii niskiej ekspozycji układowej, która hamuje bakteryjne BSH, przebudowuje pulę BA oraz aktywuje oś osi FXR–FGF15 w celu "zdalnej" rekalibracji odczytów immunometalicznych wewnątrzwątrobowych12,13; jego kompleks jonowy BUDCA/HTD1801 zmniejszył MRI-PDFF w randomizowanym, kontrolowanym badaniu fazy 2 (RCT)14. Wzory, takie jak Qushihuayu (QSHY), wykazały skoordynowane odpowiedzi mikrobiomu z metabolitami z poprawą enzymów wątrobowych i zastępców włóknienia w wielocentrowej randomizacji15. Dekoktura Da-Chai-Hu (DCHD) oraz polisacharydy (np. Astragalus, Ganoderma) odpowiadają stabilizacji GVB oraz plastyczności na odporność śluzową/inflammasom, odpowiednio16, 17, 18. Jednak krajobraz dowodowy tradycyjnej medycyny chińskiej (TCM) w MASLD/MASH pozostaje nierówny, obejmując niewielką liczbę randomizowanych badań z heterogenicznymi punktami końcowymi i zmienną jakością raportowania, obok większej liczby badań przedklinicznych i generujących hipotezy.
W związku z tym głównym celem tego przeglądu jest zapewnienie uporządkowanej, krytycznej syntezy dowodów TCM, oddzielenie solidnych danych z ludzi od wnioskowania przedklinicznego oraz ocena projektu badania, ryzyka błędu, wielkości efektów, sygnałów bezpieczeństwa oraz trwałości odpowiedzi. Dodatkowo podkreślamy praktyczne ograniczenia translacyjne, które są szczególnie istotne dla interwencji TCM, w tym standaryzację produktów, spójność partia do partii oraz ramy markerów Q, a także kwestie regulacyjne regulujące progi dowodowe dla rozwoju i przyjęcia klinicznego.
Na tym tle recenzja rozwija trzy wersy. Najpierw śledzimy ciągłość od niewydolności nabłonkowej/GVB do aktywacji TLR4–NF-κB i NLRP3, integrując kluczowe dowody na poziomie ludzkim, zwierzęcym i komórkowym. Po drugie, syntetyzujemy farmakologię systemową oraz reprezentatywne dane kliniczno-translacyjne dotyczące czynników pochodzących z TCM i innych naturalnych czynników celujących w kręgosłup barier–receptor–inflammasom oraz jego wzajemne przesłuchiwanie immunometliczne, z wyraźnym dopasowaniem farmakokinetyki, ekspozycji i mechanizmu. Po trzecie, przedstawiamy mierzalne biomarkery oraz schematy typowania odpowiedzi, które łączą się z tymi szlakami, aby poprawić interpretowalność i zewnętrzną powtarzalność w heterogenicznych kohortach MASLD/MASH. Łącząc mechanizmy z interwencją i mierzalnymi odczytami, oś immunologiczna jelit–wątroba staje się testowalną ramą translacyjną, która może informować przyszłą terapię stratyfikowaną (Rysunek 1). Najnowsze syntezy dodatkowo pozycjonują strategie skoncentrowane na mikrobiomie jako główną oś translacyjną w MASLD/MASH, obejmującą modulację opartą na diecie, pre/pro/synbiotykę, przeszczepianie mikrobioty kałowej oraz nowe podejścia, takie jak inżynierowane bakterie i bakteriofagi, wzmacniając kliniczne znaczenie interwencji ukierunkowanych na jelita19.
Przegląd i perspektywa
Oś jelito-wątrobowa: od niewydolności bariery do aktywacji inflammasomu
Nierównowaga bariery nabłonkowej i zwiększone wycieki międzykomórkowe
Bariera nabłonkowa jelita jest utrzymywana przez luminalną warstwę śluzu opartą na MUC2 wraz z szczytowymi kompleksami złącz ciasnych (TJ); ZO-1, okudyna i wiele klaudin określają selektywność międzykomórkową, ograniczając w ten sposób bezpośrednie styki między luminalnymi wzorcami molekularnymi związanymi z mikrobiomami a nabłonkowymi receptorami odporności wrodzonej. W metabolicznie zapalnych stanach czynnik nekrozy nowotworu-α (TNF-α) aktywuje program zależny od NF-κB, który wzmaga kinazę łańcuchową lekkiej miozyny (MLCK), napędzając endocytozę okudyny i reorganizację akto-miosyny w okolicy złączy, tworząc ścieżkę "wycieku" - efekt wykazano zarówno w modelach in vivo jak i in vitro20,21.
Te obserwacje mechanistyczne zgadzają się z fenotypami klinicznymi. Badania na ludziach konsekwentnie wykazują zwiększoną przepuszczalność jelitową w MASLD, która koreluje ze steatozą i nasileniem zapalenia. W badaniach fizjologicznych związanych z biopsją pacjenci z niealkoholową chorobą wątroby (obecnie w ramach struktury MASLD) wykazują zwiększoną przepuszczalność 51Cr-EDTA wraz z anomaliami złączy ciasnych i nadmiernym wzrostem bakterii w jelicie cienkim, przy czym przepuszczalność koreluje pozytywnie ze steatozą i aktywnością zapalną. Kolejne przeglądy systematyczne testów przepuszczalności z dwoma cukrami potwierdziły znacznie wyższą przepuszczalność jelita cienkiego w MASLD w porównaniu ze zdrowymi kontrolami, konsolidując uszkodzenie bariery nabłonkowej jako występującą na poziomie populacji cechę. W tym kontekście, luminalne PAMP-y i sygnały metaboliczne łatwiej dostępne są do krążenia wrotnego, zapewniając sygnały początkowe, które inicjują sygnalizację TLR4-NF-κB w wątrobie i aktywację inflammasomu NLRP3.
Współpraca mikrobioty jelitowej z barierą w homeostazie i MASLD/MASH
W fizjologicznych warunkach, mikrobiota jelitowa przyczynia się do utrzymania bariery poprzez zskoordynowany wpływ na śluz, złącza ciasne i odporność śluzówkową. Struktura społeczności komensalnej wpływa na właściwości bariery śluzowej, podczas gdy interakcje nabłonkowo-mikrobiotalne kształtują remodelację złączy ciasnych i przepuszczalność przez nabłonek, ograniczając w ten sposób translokację produktów mikrobiotalnych w warunkach homeostazy22,23,24. SCFA produkowane przez fermentację mikrobioty działają jako metabolity sygnałowe, które mogą wspierać programy bariery nabłonkowej i buforować transkrypcyjne reakcje zapalne, zapewniając funkcyjną odporność na uszkodzenie bariery23,25.
W MASLD/MASH, dysbioza i zmieniony funkcjonalny wpływ mikrobioty mogą erodować te stabilizujące programy i wzmacniać dysfunkcję bariery. Zmieniona przepuszczalność i translokacja produktów mikrobiotalnych zwiększają ekspozycję wrotną i obniżają próg aktywacji wrodzonej odporności wątrobowej, tworząc pętlę sprzężenia zwrotnego od dysbiozy do niewydolności bariery i wzmożenia zapalenia23. Mechanistycznie bezpośrednia ilustracja to endogenna produkcja etanolu przez Klebsiella pneumoniae o wysokiej produkcji alkoholu, która może wywoływać fenotypy stłuszczenia wątroby bez zewnętrznego alkoholu, łącząc określoną funkcję mikrobioty z obrażeniem metabolicznym gospodarza i dolnoprądową podatnością na zapalenie2.
Niniejsza sekcja konsoliduje powiązanie "mikrobiota → ton bariery → ekspozycja wrotna", aby zapewnić wyraźny punkt wejścia do interpretacji interwencji TCM, które twierdzą o przywróceniu bariery lub remodelacji mikrobioty.
Niewychowanie bariery naczyniowej jelita i wczesna ekspozycja wrotna
Położona pod nabłonkiem bariera naczyniowa jelita (GVB) składa się z submukozalnych komórek śródbłonka naczyń i ich kompleksów złączowych; funkcjonalnie analogiczna do bariery krew-mózg, ogranicza translokację bakterii i makrocząsteczek przez ścianę jelita do krążenia wrotnego26. Modele eksperymentalnego stłuszczenia wątroby wykazują, że niszczenie GVB poprzedza stan zapalny wątroby, podczas gdy farmakologiczne wzmocnienie sygnalizacji FXR-β-kateniny śródbłonka zmniejsza obciążenie zapalne wrotową27.
Wraz z tymi odkryciami, operacjonalizowana zostaje warstwowa koncepcja przechwytywania - "bariera nabłonkowa → GVB → ekspozycja wrotna" - oraz GVB uznana zostaje za traktowalny wczesny węzeł patologiczny w MASLD/MASH28. Mechanistycznie, integralność GVB odzwierciedla interakcję między
Wnioski
W całej ciągłej sekwencji niewydolności bariery nabłonkowej i naczyniowej jelitowej, wrotnego napływu molekularnego, amplifikacji TLR4–NF-κB oraz pirostozy podleganej NLRP3, obecne dowody wskazują na architekturę chorób immunometalicznych dla MASLD/MASH. Reorganizacja ciasnych złączy nabłonkowych wraz z przeciekiem GVB obniża próg aktywacji wrodzonej odporności sinusoidalnej; Sygnały pochodzące z jelit—LPS, endogenny etanol oraz zaburzenia profili kwasów żółciowych—są następnie wykrywane przez TLR4 wątroby i rozprzestrzeniane przez kaskady zapalne, ostatecznie zbiegając się do sygnalizacji NLRP3–kaspaza-1–IL-1β/IL-18, która wywołuje stan zapalny i włóknienie 26,27,33. Ten kręgosłup jest hierarchicznie powiązany z obwodami BA–FXR/TGR5, SCFA–GPR41/43 oraz AMPK/Nrf2, co umożliwia dwukierunkowe strojenie między metabolizmem a odpornością 9,10. W tym kontekście biologicznym czynniki wielocelowe umożliwiają "współosiową" interwencję na bariery, węzły sygnałowe receptorowo-sygnałowe oraz progi metaboliczne: berberyna, poprzez hamowanie bakteryjnego BSH, przebudowywanie basenu kwasów żółciowych oraz aktywację osi FXR–FGF15 w kształcie nieruchowej strony, wywiera niską kontrolę nad odczytami immunometlicznymi wewnątrzwątrobowych i redukuje MRI-PDFF w fazie 2 badania jej kompleksu jonowego12, 13. Terapie oparte na wzorach i polisacharydy dodają sygnały translacyjne do naprawy bariery i powstrzymania inflammasomu15,17. Razem oś jelita–wątroba stanowi praktyczną podstawę do wyrównania mechanizmów, biomarkerów i klinicznych punktów końcowych w ramach jednego układu współrzędnych.
Przełożenie tej wiedzy na wyniki wymaga trzech kluczowych rozwiązań. Po pierwsze, potrzebne są bezpośrednie dowody ludzkie dla GVB oraz powtarzalne odczyty funkcjonalne. Złożone miary rejestrujące skoordynowane naruszenie błonka nabłonkowego–śródbłonkowego—profilowanie czasowe postu oraz standaryzowane LBP/sCD14 poposiłkowe powiązane z dynamiką FGF19/C4 syntezy kwasów żółciowych i sprzężenia zwrotnego jelita (EEA—osadzone w obrazowaniu podłużnym i klinicznej obserwacji, ustaliłyby weryfikowalny łańcuch "bariery → ekspozycji → organy"26,27. Po drugie, należy jasno wyjaśnić mosty między multi-omiką a poziomowymi punktami końcowymi: metagenomika prospektywna/transkryptomika z widmami BA w osocze i kału oraz SCFA dopasowanymi do progów obrazowania—≥30% względny spadek MRI-PDFF po 12–24 tygodniach jako bramka tymczasowa, oraz MRE (~3,3–3,5 kPa) z ELF (9,8/11,3) po 24–48 tygodniach dla włóknienia i stratyfikacji prognosycznej — tak aby sygnały mechanistyczne zajmowały tę samą ramę co odczyty strukturalne i wyniki102, 105. Po trzecie, hipotezy stratyfikacyjne powinny być z góry określone i obalone: osoby z górnej kwartyla postu lub standaryzowanego LBP/sCD14 powinny mieć większe szanse na osiągnięcie redukcji PDFF o ≥30% przy skoordynowanej ochronie barierowej/GVB oraz normalizacji mikrobioty–BA, wraz z zgodnymi spadkami LBP/sCD14; osoby z podwyższonymi sygnaturami IL-1β lub NLRP3/piroptozą (GSDMD-N) powinny preferencyjnie wykazywać poprawę ELF/MRE, gdy blokada NLRP3–kaspaza-1 jest sprzężona z przestrojeniem AMPK/Nrf2; Poleganie na strategiach opartych wyłącznie na barierze w biologii dominującej w zapaleniu zagrożenie znanym niedopasowaniem redukcji steatozybez zwłóknienia 1,7,102.
Metodologicznie, adaptacyjne projekty wieloramień, wieloetapowe i biomarkerowe mogą zwiększyć efektywność i powtarzalność w programach wielomechanizmowych. Początkowy etap zablokowany przez spadek MRI-PDFF o ≥30% może triage ramion o niskim prawdopodobieństwie; drugi etap z uwzględnieniem ELF/MRE może aktualizować randomizację w warstwach dominujących barierami, inflammasomowych oraz dysregulowanych przez BA–FXR; Trzeci etap może ocenić wyniki kliniczno-obrazowe po 48 tygodniach. Progi bram, zasady zatrzymania oraz przydział α powinny być wstępnie rejestrowane i przejrzystie raportowane; Testy o niskiej biomasie (np. krążące lub tkankowe 16S rDNA) wymagają rygorystycznych negatywnych kontrol i potoków dekontaminacyjnych, a markery Q-markery powinny zapewniać spójność partii i śledzenie na podstawie materiału, ekspozycji in vivo oraz odczytów farmakodynamicznych101,106. Integracja kręgosłupa barier–odporności wrodzonej–metabolicznego z wcześniej określonymi warstwami, hierarchicznymi punktami końcowymi oraz badaniami adaptacyjnymi może przesunąć interwencje wielocelowe z proof-of-concept do trwałych korzyści w określonych populacjach, ukazując biologiczną heterogeniczność w MASLD/MASH i zapewniając operacyjne ramy dla precyzyjnej i przekładalnej terapii skojarzonej.
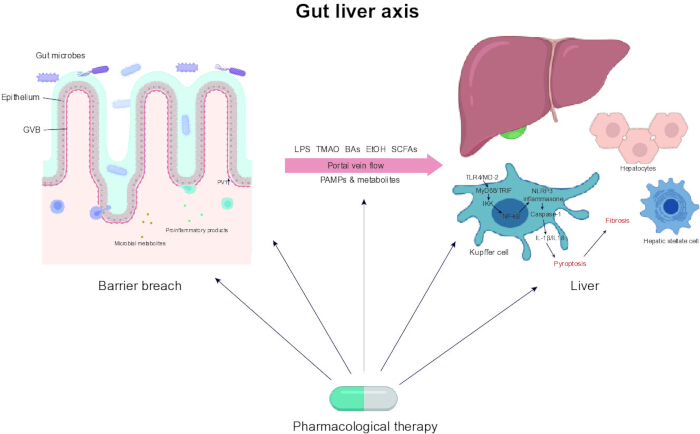
Rysunek 1: Graficzne streszczenie osi jelita–wątroba w MASLD/MASH. Ten diagram podsumowuje kluczowe mechanizmy i terapeutyczne implikacje osi jelit–wątroba w MASLD oraz jej progresję do MASH. Ilustruje, jak substancje pochodzące z jelit (np. LPS, BAs, SCFAs, TMAO) translokują się do wątroby przez żyłę wrotną w przypadku uszkodzenia bariery jelitowej, aktywując odpowiedzi immunologiczne (np. TLR4–NF-κB, inflammasom NLRP3), które napędzają stan zapalny, uszkodzenia hepatocytów i włóknienie. Ramy podkreślają również terapie wielocelowe, stanowiące podstawę strategii interwencji sterowanej markerami i stratyfikowanej w MASLD/MASH. Skróty: MASLD = zaburzenia metaboliczne związane z zaburzeniami steatotycznymi wątroby; MASH = zaburzenia metaboliczne związane ze steato-wątroby; LPS = lipopolisacharyd; BA = kwasy żółci; SCFA = krótkołańcuchowe kwasy tłuszczowe; TMAO = trimetyloamina N-tlenek; TLR4 = Receptor podobny do Toll-like 4; NF-κB = czynnik jądrowy kappa B; NLRP3 = białko zawierające domenę NOD, LRR i pirynę 3. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
Oświadczenia
Autorzy nie mają żadnych konfliktów interesów do ujawnienia.
Podziękowania
Prace te były wspierane przez Program Nauki i Technologii Tradycyjnej Medycyny Chińskiej Prowincji Zhejiang (nr 2024ZL1181) oraz Program Nauki i Technologii Miejskiej Jinhua, Kluczowy Projekt Rozwoju Społecznego (nr 2024-3-071).
Bibliografia
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).