Zdolność do ekspresji wektorów wirusowych w mózgu przed dojrzewaniem jest podstawą badania mechanizmów komórkowych i obwodowych rozwoju mózgu. Tutaj opisujemy protokół przeprowadzania stereotaksyjnej operacji wirusowej u niemowlęcia myszy w 11 lub 12 dniu poporodowym (P11-P12) oraz przedstawiamy wytyczne dotyczące opieki pooperacyjnej.
Artykuł metodologiczny
Chirurgia stereotakstyczna u niemowląt myszy i opieka pooperacyjna
W tym artykule
Podsumowanie
Streszczenie
Zrozumienie procesów rozwojowych, komórkowych i obwodowych w okresie poporodowym jest kluczowe dla wyjaśnienia złożoności rozwoju mózgu oraz jego wpływu na dojrzewanie behawioralne i społeczne. Przejście od niemowlęcia do dorosłości wiąże się ze znaczącymi zmianami neurobiologicznymi, w tym przycinaniem synaptycznym i mielinizacją, które są fundamentalne dla zdolności poznawczych, regulacji emocji i interakcji społecznych. Badanie rozwoju mózgu u myszy przedokresowych pozwala badaczom identyfikować kluczowe okresy wspierające zdrowy wzrost mózgu oraz wdrażać terminowe interwencje w zaburzeniach neurorozwojowych. Aby precyzyjnie analizować funkcje mózgu, chirurgia stereotakstyczna była kluczową techniką w badaniach neurobiologicznych, oferując niezrównaną precyzję w celowaniu obszarów mózgu i umożliwiając podawanie środków wirusowych. Mimo że operacje stereotaksyjne u dorosłych myszy są szeroko stosowane w laboratoriach neurobiologicznych, istnieją bardzo ograniczone wytyczne dotyczące wykonywania operacji stereotaksyjnych u myszy przedokresowych oraz kluczowej opieki pooperacyjnej, aby zapewnić pomyślne powrót dziecka do matki i rodzeństwa. Tutaj opisujemy protokół chirurgii stereotaksyjnej i zastrzyków wirusowych u niemowląt (P11-P12) myszy, podkreślając znieczulenie i podawanie środków przeciwbólowych, kwestie dotyczące opieki pooperacyjnej oraz różnice w stosunku do chirurgii stereotaksji u dorosłych. Protokół ten można wdrożyć w dowolnym obszarze mózgu poprzez aktualizację pożądanych współrzędnych docelowych oraz zmodyfikować go pod kątem celowania w mózg na późniejszych etapach rozwoju poporodowego, na przykład w okresie młodzieńczym (P15-P30). Ogólnie rzecz biorąc, protokół ten stanowi punkt wyjścia do badania rozwoju i funkcji mózgu poporodowego.
Wprowadzenie
Niemowlęce i okres dojrzewania to kluczowe okresy poporodowe dla rozwoju mózgu, charakteryzujące się mielinizacją, synaptogenezą i przycinaniem synaptycznym, które ułatwiają udoskonalanie obwodów 1,2. Pojawienie się zachowań społecznych, w tym godowania, agresji i zabawy społecznej, pojawia się w okresie okresu dojrzewania (P28-40)3 i jest ściśle regulowane przez krążące hormony sterydowe 4,5. Pomimo znaczących postępów w narzędziach do rozkładania komórkowych podstaw zachowań społecznych u dorosłych, niewiele wiadomo o mechanizmach nerwowych leżących u podstaw pojawiania się zachowań społecznych w okresie rozwoju poporodowego. Przyczyny braku zrozumienia rozwijających się obwodów społecznych obejmują: 1) wyzwania związane z przeprowadzaniem operacji u niemowląt myszy, w tym stereotaksyjne zestawy nieprzystosowane dla młodszych myszy, 2) równowagę bezpieczeństwa i skuteczności leczenia przeciwbólowego i znieczulenia podczas operacji6 oraz 3) akceptacja niemowląt przez matkę po operacji. Ponadto obecne metody stosowane do dostarczania konstrukcji genetycznych we wczesnych punktach poporodowych, takie jak elektroporacja in utero7, intrace-wędrowo-komorowy zastrzyk wirusowy w mózgu noworodka (P0-P10)8 czy krzyżowanie genetyczne rekombinazy i rekombinacji z linią -reagującą 9, nie są idealne, ponieważ brakuje im precyzyjnego celowania i skupiają się na celowaniu embrionalnym lub P0.
Przedstawiamy tutaj prosty protokół chirurgii stereotaksyjnej u niemowląt myszy (P11-P12) oraz opieki pooperacyjnej, aby wspierać skuteczną reintegrację z matką i rodzeństwem. Protokół ten wykorzystuje obecny protokół stereotakstyczny dla dorosłychmyszy 10 i wymaga jedynie drobnych zmian w ustawieniu stereotaksyjnym. Dostarczamy również szczegółowe wskazówki dotyczące opieki pooperacyjnej oraz skutecznej anestezji i analgezji u niemowląt myszy. Wybraliśmy punkt czasowy P11-12 dla operacji, ponieważ istnieje dwutygodniowy okres inkubacji ekspresji wirusa, dzięki czemu myszy można badać in vivo od P24, przed okresem dojrzewania (P28-40)3. Jednak ten sam protokół można stosować w późniejszych okresach operacji stereotaksji. Koncentrujemy się na rozwijającym się mięśniu migdałowatym (MeA), pododdziale ciała migdałowatego charakteryzującego się rolą w różnorodnym zestawie zachowań społecznych 11,12. Szczegółowo badamy subpopulację MeA wyrażającą Foxp2 (MeA Foxp2)13, czynnik transkrypcyjne typu forkhead box, ponieważ wcześniej odkryliśmy, że komórki te są unikalnie zaprogramowane do przetwarzania in vivo bodźców bodźców sensorycznych u samców myszy w okresie rozwoju poporodowego14. Dodatkowo, subpopulacjaMeA Foxp2 jest wymagana do dwukierunkowej modulacji agresji terytorialnej u samców14. Ogólnie rzecz biorąc, obecny protokół pozwala neurobiologom precyzyjnie dostarczać środki wirusowe do wybranych obszarów mózgu na kluczowych etapach rozwoju poporodowego, aby badać komórkowe i obwodowe podstawy zachowań społecznych i afiliacyjnych w okresie dojrzewania i dorosłości.
Protokół
Procedura ta została zatwierdzona przez Komitet ds. Opieki i Użytkowania Zwierząt NIEHS i była zgodna z wytycznymi Narodowych Instytutów Zdrowia dotyczącymi korzystania i opieki nad zwierzętami. Przez cały czas operacji oraz w obecności zwierząt stosowano odpowiednie środki ochrony osobistej, w tym rękawiczki, maseczkę na twarz, jednorazową fartuchę, siatkę na włosy oraz pokrowce na buty.
1. Przygotowanie i regulacje aparatury stereotaksyjnej myszy (Rysunek 1)
- Przygotuj aparat stereotaksyczny z akcesoriami stereotaktycznymi dla niemowląt myszy, w tym parą drążków do uszu bez uniesienia, zmodyfikowanym uchwytem na głowę gazową oraz drążkiem podniebienia dla niemowląt P12.
- Dezynfekuj wszystkie narzędzia chirurgiczne sterylizatorem z kulkami szklanymi (250 °C, 30 sekund dla mniejszych narzędzi i 1 minuta dla większych). Po sterylizacji umieść sterylne narzędzia na sterylnej zasłonie. Sterylne narzędzia powinny pozostawać na sterylnym polu przez cały czas trwania zabiegu.
- Na stereotaksyjnym urządzeniu załóż kolejną sterylną zasłonę na poduszkę grzewczą o temperaturze ~37 °C, aby utrzymać dziecko w kontrolowanej temperaturze przez cały czas zabiegu. Monitoruj temperaturę termoforu przez cały czas trwania zabiegu.
2. Przygotowanie chirurgiczne myszy, stereotakstyczne umieszczenie, poziomowanie i kraniotomia
- Zmierz masę ciała, aby zapewnić odpowiednią dawkę analgezji.
- Umieść mysz w komorze indukcyjnej wypełnionej izofluranem o 3% przepływie tlenu 0,9 L/min. Sprawdź, czy oddech myszy spadł do ~1 oddechu na sekundę i czy nie ma reakcji po przetestowaniu odruchu wycofania pedałów. Przełącz przepływ izofluranu/tlenu do ramy stereotaksyjnej i zmniejsz stężenie izofluranu do 2%.
UWAGA: Odpowiednie znieczulenie musi być potwierdzone przez brak reakcji na odruch wycofania pedału co 5 minut przez cały czas trwania zabiegu. Uważnie obserwuj wzorzec oddechu myszy przez cały czas operacji. Dostosowuj stężenie izofluranu przez cały zabieg, aby jak najniższy procent był używany do utrzymania głębokiego znieczulenia i unikania przedawkowania. - Zamontuj mysz na zmodyfikowanym urządzeniu stereotaksyjnym z akcesoriami stereotaksyjnymi dla niemowląt myszy. Umieść nieprzebijające się nauszniki po boku głowy myszy i ustaw linijkę nauszną tak, aby była równomiernie oddalona od ramki stereotaksyjnej po obu stronach. Dla niemowląt P11 ustaw linijkę stereotaksyjną na 5 mm.
UWAGA: Niemowlęta w P11 zazwyczaj nie mają jeszcze otwartych oczu, więc nie jest potrzebny żaden lubrykant do oczu. Do P12 niektóre niemowlęta mają oczy otwarte. Jeśli oczy dziecka są otwarte, należy nakładać maść okulistyczną i stosować ją ponownie w razie potrzeby podczas całej operacji. - Wstrzyknąć 5 mg/kg meloksykamu drogą podskórną (s.c.) wewnątrzłopatkową, używając strzykawki 1 ml z igłą 27 G.
- Rozcieńcz 0,5% bupivakainy (5 mg/mL) solą fizjologiczną do 0,5 mg/mL (1:10) i wstrzykuj s.c. pod skórę głowy (czyli 0,05 mL dla niemowlęcia o wadze 5 g).
UWAGA: Kroki od 2.6 do 3.15 należy wykonywać w sterylnych rękawiczkach. - Wykonaj nacięcie o długości 1,5 cm małymi nożyczkami wzdłuż linii środkowej głowy.
- Użyj sterylnego patyczka watowego, aby ostrożnie usunąć tkanki miękkie z powierzchni czaszki za pomocą betadyny.
- Umieść wyciągniętą szklaną kapilarę (~0,8 mm długości) w szklanym uchwytie na pipetę. Zamontuj uchwyt na pionowym ramieniu stereotaksyjnym.
UWAGA: Kroki od 2.9 do 3.10 należy wykonać pod mikroskopem rozcinającym. - Wyrównaj kąt przednio-tylny powierzchni czaszki:
- Przesuń kapilarę do punktu styku zatok grzbietowych (RCS) (Rysunek 2), jak opisano w Chan i in.15.
- Pod mikroskopem z powiększeniem 2x zeruj współrzędne X (przyśrodkowo-boczne), Y (przednie-tylne) i Z (grzbietowo-brzuszne), gdy kapilara dotyka czaszki w punkcie RCS za pomocą cyfrowej konsoli wyświetlacza instrumentu stereotaksyjnego.
- Przesunąć kapilarę do lambda (w Y = -7,30 mm) i obniżyć ją tak, aby lekko dotknęła czaszki (rysunek 2).
- Sprawdź wartość współrzędnych Z i wypoziomuj kąt przednio-tylny w stereotaksyjnym zestawie, aby zmienić kąt nachylenia głowy. Powtarzaj kroki od 2.9.1 do 2.9.3, aż różnica w wartości współrzędnej Z między RCS a lambda wyniesie <0,02 mm.
- Wypoziomuj kąt przyśrodkowo-boczny powierzchni czaszki:
- Przesuń kapilarę do punktu RCS.
- Zeruj współrzędne X (przyśrodkowo-boczne) i Y (przednie-tylne), gdy kapilara lekko dotyka czaszki w punkcie RCS.
- Aby wypoziomować głowę za pomocą współrzędnych posterodorsalnych MeA (MeApd), przesuń kapilarę do X = +2,50 mm, Y = -4,20 mm i zera Z (grzbietowo-brzuszna), gdy kapilara lekko dotyka czaszki.
- Przesuń kapilarę na X = -2,50 mm, Y = -4,20 mm na drugą półkulę i lekko obniż kapilarę, aby dotknęła czaszki.
- Sprawdź wartość Z i dostosuj oś przyśrodkowo-boczną w stereotaksyjnym zestawie, aby zmienić kąt nachylenia głowy. Powtarzaj kroki od 2.10.1 do 2.10.4, aż różnica wartości Z między prawą a lewą półkulą wyniesie <0,03 mm.
- Usuń uchwyt kapilarny i zamontuj mikrowiertarkę z wiertłem #75 w stereotaksyjnym uchwytie wiertła na pionowym ramieniu stereotaksyjnym.
- Umieść końcówkę wiertła nad punktem RCS, zeruj współrzędne X (przyśrodkowo-boczne) i Y (przednie-tylne). Przesuń na X = ±2,03 mm, Y = -4,20 mm, aby celować w MeApd niemowląt P11.
- Przewiercę czaszkę o średnicy 0,5 mm.
- Powierzchnię czaszki dokładnie oczyść sterylną solą fizjologiczną, używając delikatnych chusteczek do pracy i patyczków kosmetycznych.
UWAGA: Regularnie stosuj sterylną sól fizjologiczną, aby utrzymać powierzchnię czaszki nawilżoną.
3. Zastrzyk wirusowy
- Napełnij nową kapilarę olejem mineralnym za pomocą elastycznej igły mikrofilowej.
- Przymocuj i dokręć kapilarę do nanolitrowego wtryskiwacza.
- Wyjmij mikrowiertarkę i zamontuj nanolitrowy wtryskiwacz na pionowym ramieniu stereotaksyjnym.
- Pobieraj co najmniej dwukrotnie więcej wirusa potrzebnego do operacji (tutaj 400 nL) w tempie 10 nL/s.
UWAGA: Każdy interesujący się wirus AAV może być stosowany do zastrzyków wirusowych po zatwierdzeniu przez instytucję. W tym protokole zastosowaliśmy AAV2-DIO-mCherry (BSL-1, 2,5 E+13 vg/mL, 3 μl/sonda, przechowywany w temperaturze -80 °C, a następnie przeniesiony do lodu na operację). - Przesuń kapilarę do punktu RCS i wyzeruj współrzędne X i Y.
- Przenieś kapilarę do docelowego obszaru zainteresowania mózgu, tutaj MeApd (współrzędne: X = ±2,03 mm, Y = -4,20 mm, Z= -5,08 mm od RCS).
- Obniż kapilarę do powierzchni czaszki, a następnie zeruj współrzędną Z.
- Utworz ścieżkę, obniżając kapilarę do pożądanej głębokości i wyciągając ją z powrotem z mózgu.
- Wstrzyknij ~8 nL wirusa, aby upewnić się, że naczynie włosowato nie jest zatkane przed ponownym wprowadzeniem do mózgu. Jeśli jest zatkane, dodaj bezpłodną sól fizjologiczną do wycieraczki i delikatnie wytrzyj boki oraz dno kapilary, aby usunąć zwężenie.
- Obniż kapilarę jeszcze raz do pożądanej głębokości i wstrzyknij pożądaną ilość wirusa (w tym przypadku 150 nL wirusa) z prędkością 20 nL/min.
- Po zakończeniu odczekaj 5 minut, zanim powoli wyciągniesz kapilarę.
- W razie potrzeby powtórz kroki 3.4-3.11, aby wstrzyknąć wirusa w półkulę przeciwległą.
- Usuń kapilarę z nanolitrowego wtryskiwacza. Usuń zużyte naczynia włosowate i rurki wirusowe w stożkowej probówce o pojemności 50 mL z 10% wybielaczem.
UWAGA: Poszczególne laboratoria powinny przestrzegać wszystkich wytycznych dotyczących obchodzenia się z odpadami, zarządzania wyciekami oraz zgodności z bezpieczeństwem biologicznym wydanych przez Oddział Instytucjonalny ds. Biologii i Bezpieczeństwa Biologicznego. - Zszyj skórę niewchłaniającym szwem 7-0. Spróbuj podnieść włosy podczas szycia, aby szwy pozostały ukryte.
UWAGA: Zazwyczaj wystarczy 3-4 szwy. W naszych rękach najlepiej sprawdza się szew 7-0, który zapobiega rozerwaniu szwów przez zaporę po powrocie niemowlęcia do klatki. - Przetrzyj obszar szwów nadtlenkiem wodoru 3%, a następnie sólą fizjologiczną sterylnymi patyczkami watowymi.
UWAGA: Operacja zazwyczaj trwa od 1 do 2 godzin, w zależności od liczby wstrzykniętych wirusów. Wirusy zazwyczaj wymagają minimum 2 tygodni na pełną ekspresję.
4. Opieka pooperacyjna
- Wyjmij niemowlę z ramy stereotaksyjnej i umieść je w czystej klatce na poduszce grzewczej. Aby zapobiec odwodnieniu, zaleca się wstrzyknięcie sterylnego roztworu soli fizjologicznej.
- Monitoruj niemowlę, aż stanie się ruchome.
- Gdy niemowlę będzie mogło się poruszać po klatce, umieść mamę w nowej, czystej klatce na ~2 minuty.
- Umieść niemowlę w jego pierwotnej klatce obok jego rodzeństwa. Ostrożnie wytrzyj wszystkie młode materiałem do gniazda i ściółki z klatki, a następnie umieść je z powrotem w gnieździe. Następnie umieść tamę z powrotem w klatce.
- Uważnie obserwuj matkę i niemowlęta. Potwierdź, że matka wraca do gniazda i czyszuje niemowlę po operacji, ale nie wyrywa szwów.
- Jeśli po 1 godzinie matka nie przyjmuje chirurgicznego niemowlęcia, użyj matki tymczasowej. Jeśli matka już wykazała akceptację niemowląt, użyj jej dla kolejnych miotów (akceptacja po przyjęciu niemowląt do pierwszego miotu była 100%).
- Dwadzieścia cztery godziny po operacji sprawdź miejsce nacięcia i podaj Meloksycam (5 mg/kg, s.c.).
- Po udanej opiece pooperacyjnej pozostawić mysz chirurgiczną z matką i rodzeństwem aż do odstawienia od piersi w P21. Usuń wszelkie widoczne szwy w ciągu 10-14 dni po operacji.
UWAGA: Nie oczekuje się istotnych różnic w spożyciu pokarmu, masie ciała ani zachowaniu lokomocyjnym u myszy chirurgicznych w porównaniu do kontrolnych z miotu.
Niemowlęta będą monitorowane codziennie przez co najmniej 2 dni po operacji, a następnie co najmniej 2 razy w tygodniu. Kryteria humanitarnego zakończenia: Jeśli niemowlę nie będzie chodzić po 2 godzinach po operacji, zostanie uśpione w sposób humanitarny. Jeśli niemowlę wykazuje zmniejszoną masę ciała i/lub ruch po operacji, zostanie uśpione w sposób humanitarny.
Wyniki
Bezpieczeństwo połączenia izofluranu, bupiwakainy i meloksykamu podczas operacji niemowląt
Bezpieczeństwo stosowania znieczulenia i analgetyki u niemowląt myszy pozostaje niejasne6. Dlatego przetestowaliśmy użycie kombinacji znieczulenia i analgezji u niemowląt myszy, aby określić wskaźnik przeżywalności. Młode myszy w wieku P11 (masa ciała = 6,09 ± 0,90 g, najniższa masa ciała 3,9 g; n=13) umieszczono w komorze indukcyjnej na początkową anestezję z 3% izofluranem w 0,9 L/min tlenu. Po znieczuleniu niemowląt i niereagowaniu na odruch wycofania pedałów, przenoszono je do aparatu stereotaksyjnego, a znieczulenie izofluranowe zmniejszono do 1,5-2% izofluranu w 0,9 L/min tlenu z podkładką grzewczą (41,23 ± 2,28 °C). Po umieszczeniu niemowląt w aparacie stereotaksyjnym podano analgezję s.c. interscapular (5 mg/kg Meloksykam) oraz znieczulenie miejscowe podawano s.c. pod skórą głowy (0,05 mg/mL Bupivacaine). Trzydzieści minut później wyjęliśmy niemowlęta z zestawu stereotaksyjnego i umieściliśmy je w czystej klatce. Zaobserwowaliśmy 100% przeżywalność (13/13) 30 minut po porodzie przeciwbólowym. Ponadto nie zaobserwowaliśmy żadnych powikłań 24 i 72 godziny po operacji ani w dorosłości. Wyniki te pokazują, że połączenie znieczulenia miejscowego z niesteroidowym lekiem przeciwzapalnym jest bezpieczne dla niemowląt myszy i zmniejsza ból oraz niedogodność.
Precyzyjne i dokładne dostarczanie wirusa do MEA
Aby potwierdzić dokładność i precyzję podawania wirusa podczas operacji stereotaksycznych niemowląt, podaliśmy AAV2-hSyn-DIO-mCherry obustronnie do MeApd u samców myszy Foxp2cre+/- w wieku P11 (rysunek 3A). Myszy odstawiono od piersi w wieku P21. W wieku P45 pobrano mózgi myszy do immunohistochemii i analizy obrazowej, jak wcześniej opisała nasza grupa14 oraz inni16 (rysunek 3B,C). Myszy zostały znieczulone i przekroczone 30 mL 1× PBS, a następnie 30 mL 4% PFA przy 10 mL/min. Mózgi były postfiksowane przez noc w temperaturze 4 °C w 4% PFA, kriochronione w 30% sacharozie, osadzone w O.C.T. i przecięte w kriostatie przy 50 μm. Co trzecia sekcja była przetwarzana pod kątem immunohistochemii opisanej wcześniej14. Wolno unoszące się sekcje były blokowane w 10% normalnej surowicy osiołki, inkubowane z pierwotnym przeciwciałem przez noc, myte, inkubowane z przeciwciałem wtórnym przez 4 godziny, ponownie myte i mocowane medium zawierającym DAPI przed przesuwaniem się do pokrywy. Fragmenty mózgu barwione były przeciwciałem Foxp2 oraz Alexa Fluor 488 AffiniPure Donkey Anti-Rabbit IgG (H+L).
Aby potwierdzić efektywność docelową, określiliśmy współekspresję komórek mCherry+ i Foxp2+ w MeA i zaobserwowaliśmy nakładanie się 90,2% ± 2,1 w populacjach, co wskazuje, że ekspresja mCherry jest ograniczona do komórek Foxp2+ w sposób zależny od cre (Rysunek 3D). Wynik ten podkreśla wysoką skuteczność zastrzyku wirusowego przy użyciu tego protokołu. Ponadto zbadaliśmy dokładność zastrzyków wirusowych, analizując procent komórek mCherry+ w MeApd w porównaniu do całkowitego procentu mCherry we wszystkich regionach. Zaobserwowaliśmy, że 93,7% ± 1,4 komórek mCherry+ znajdowało się w MeApd, co wskazuje, że ekspresja przestrzenna wirusa jest ograniczona do obszaru zainteresowania (Rysunek 3E).

Rysunek 1: Przygotowanie do stereotaksyjnej chirurgii niemowląt. (A) Stereotaksyjne urządzenie. (B) Pręty uszne bez pęknięć. (C) Uchwyt na głowę i drążek podniebienia gazowego dla niemowląt P12. (D) Sterylizator kulek. (E) Kontroler podkładki grzewczej. (F) Ramię stereotaksyjne. (G) Nanolitrowy wtryskiwacz. Proszę kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.

Rysunek 2: Główne punkty orientacyjne w czaszce myszy P11. (A) Schematyczna ilustracja głównych punktów orientacyjnych w czaszce niemowlęcia. (B) Głowa niemowlęcia jest zabezpieczona specjalistycznymi akcesoriami stereotaksyjnymi, które obejmują niepęknięte pręty uszne, zmodyfikowany uchwyt na gaz oraz drążek na pellet dla myszy P12. Skrót: RCS = Styk zatok rostralny, SSS = Zatoka strzałkowa górna, RRV = żyły rostralno-rożne, SOS = Zatoka węchowa górna. Kliknij tutaj, aby zobaczyć większą wersję tego rysunku.
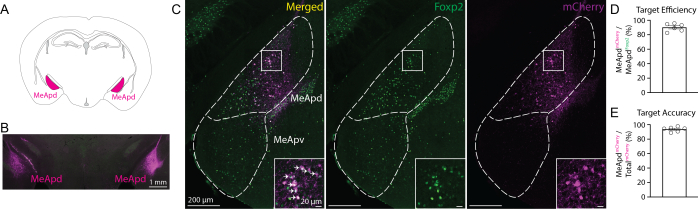
Rysunek 3: Ukierunkowana obustronna ekspresja wirusa w MeApd po operacji stereotaksji niemowląt. (A) Schematyczna ilustracja MeApd (widok koronalny). (B) Reprezentatywny obraz histologiczny obustronnej ekspresji przeciwciała Foxp2 (zielona) i komórek mCherry+ (magenta) u dorosłych myszy Foxp2cre+/- - dorosłych. (C) Powiększony widok MeA zarówno z kanałów połączonych, jak i indywidualnych. Białe strzałki oznaczają współoznaczane przeciwciało Foxp2 oraz komórki mCherry+ . (D) Wydajność wstrzykiwania. (E) Dokładność wstrzykiwania. (D,E) n=3 myszy, lewa i prawa półkula/mysz. Skróty: MeApd = ciało migdałowate przyśrodkowe tylne i odśrodkowe; MeApv = ciało migdałowate przyśrodkowe tylne i wentralne. Proszę kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
| Metody | Zalety | Wady | Bibliografia |
| Elektroporacja w łonie matki | Transfekcja większej transfekcji plazmidów | Brak precyzyjnego celowania, toksyczność, potrzeba wysokich umiejętności | Wang i in., Methods Mol Biol. (2013). |
| Intrace-rebrowo-komorowe zastrzyki wirusowe | Szybko, łatwo, ekonomicznie | Brak precyzyjnego celowania, ryzyko infanticydu | Kim i in., J Vis Exp. (2014). |
| Stereotaktyczna mikroiniekcja w P0 | Precyzyjne celowanie, niższe ryzyko odrzucenia przez matkę | Toksyczność komórek spowodowana wirusem, nie jest idealna do badania okresów po okresie dojrzewania | Chen i in., J Vis Exp. (2018). |
| Genetyczne skrzyżowanie linii rekombinazy | Nieinwazyjne | Brak precyzyjnego celowania, drogie | Robertson i in., Nat Neurosci. (2013). |
Tabela 1: Podsumowanie wcześniejszych metod stosowanych do badania rozwoju embrionalnego i poporodowego komórkowego i obwodowego u gryzoni.
Dyskusja
Badanie mechanizmów nerwowych leżących u podstaw zachowań społecznych w okresie rozwoju poporodowego jest kluczowe dla zrozumienia nie tylko ich powstawania, ale także do tego, jak te mechanizmy mogą być zakłócane przez czynniki środowiskowe lub zaburzenia neurorozwojowe. Nasze badanie opisuje szczegółowy protokół chirurgii stereotaksyjnej, aby precyzyjnie i efektywnie dostarczyć wirusa do mózgów młodych myszy P11-12. Dlatego protokół ten umożliwia manipulację, rejestrowanie i badanie obwodów molekularnie zdefiniowanych subpopulacji neuronalnych przed i po dojrzewaniu z wykorzystaniem strategii wirusowej. Podkreślamy modyfikacje i opiekę przed- i pooperacyjną, a także bezpieczną kombinację środków znieczulających i przeciwbólowych, które są dobrze tolerowane przez młode myszy.
Kluczowym i trudnym elementem stereotaksyjnej chirurgii niemowląt jest skuteczne ponowne wprowadzenie dziecka do klatki domowej wraz z matką i rodzeństwem. Aby zapewnić odpowiednią opiekę nad niemowlęciem po ponownym wprowadzeniu do klatki, matka powinna je odebrać i pielęgnować (bez nadmiernego pielęgnacji), a wszelkie oznaki potencjalnego zaniedbania powinny być ściśle monitorowane. Ze względu na nacięcie i szwy u niemowlęcia, matka może nadmiernie pielęgnować obszar głowy, co może skutkować zerwaniem i usuwaniem szwów. Byłoby to szkodliwe i dlatego monitorowanie zachowania matki wobec niemowlęcia po operacji jest kluczowe dla zapewnienia przeżycia. Aby zwiększyć akceptację młodego po operacji, zalecamy stosowanie nadtlenku wodoru i soli fizjologicznej po zszyciu do usunięcia pozostałości krwi ze skóry i sierści oraz stosowanie cieńszych szwów (7-0) niż u dorosłych (5-0). Te dwie strategie sprawiły, że matka zaakceptowała pooperacyjne młode myszy.
Dodatkowo nasze badanie dostarcza wskazówek dotyczących bezpiecznego stosowania znieczulenia i analgetyki podczas operacji niemowląt. Jest to kluczowe, ponieważ noworodki i młode myszy nie wytrzymują dawk analgezji i znieczulenia tak dobrze jak dorośli, co może prowadzić do szkodliwych skutków ubocznych układu oddechowego i sercowego6. Zaobserwowaliśmy, że izofluran, znieczulenie doustne, oraz połączenie meloksykamu i bupiwakainy, podawane podskórnie (odpowiednio wewnątrzkuszlowo i pod skórą głowy), były dobrze tolerowane przez niemowlęta i zapewniały długotrwałe przeżycie. Ponadto wcześniej wykazano, że zabieg chirurgiczny stereotakstyczny u niemowląt myszy prowadził do podobnych badań u młodych myszy tego samego gatunku 2 tygodnie po operacji, w porównaniu do grup kontrolnych dopasowanych do wieku, które nie przeszły operacji14. Dlatego wyniki te wskazują na wystarczającą regenerację i brak widocznych deficytów ruchowych po operacji u młodych myszy. Warto zauważyć, że nie mierzyliśmy natlenienia krwi podczas całej operacji. Poziom tlenu we krwi powinien być monitorowany za pomocą pulsoksymetru, aby zapobiec hipoksji17.
Kolejnym kluczowym elementem tego protokołu jest zastosowanie stereotaksyjnego systemu współrzędnych opartego na lambda i RCS na linii środkowej strzałku15. RCS jest punktem orientacyjnym zdefiniowanym przez połączenie zatoki strzałkowej górnej i zatoki węchowej górnej wzdłuż linii środkowej strzałku. Ten punkt orientacyjny wykazuje konsekwentnie niższą zmienność pozycji niż inne punkty orientacyjne grzbietu po globalnym wyrównaniu głowy. Dzieje się tak, ponieważ zwiększona odległość między RCS/lambda, w porównaniu z bregmą/lambdą, zwiększa stabilność i powtarzalność poziomego kąta międzyzwierzęcego15.
Poprzednie metody badania rozwoju neuronów koncentrowały się na strategiach wirusowych w punktach czasowych embrionalnych i P0 lub na krzyżowaniu genetycznym dla mapowania losu komórek zainteresowanych (Tabela 1). Techniki takie jak elektroporacja in utero czy intraceventriularne zastrzyki wirusowe nie mają precyzyjnego celowania. Wykonywanie celowanych zastrzyków wirusowych w P018 pozwala rozwiązać ten problem poprzez precyzyjne wstrzyknięcie konstruktu wirusowego do interesującego obszaru. Jednak konstrukty wirusowe mogą stać się cytotoksyczne po kilku tygodniach, prowadząc do śmierci komórki. Dlatego wstrzyknięcie konstruktu wirusowego do mózgu noworodka w ramach badań podłużnych w okresie dojrzewania, które mogłyby trwać do dorosłości, może nie być idealne. Dlatego nasze podejście, w którym zastrzyk wirusa następuje półtora tygodnia po urodzeniu, zmniejsza ryzyko toksyczności komórek w okresie dojrzewania.
Pomimo zalet naszego podejścia, pozostaje kilka kwestii. Po pierwsze, współrzędne mózgu używane u niemowląt myszy muszą zostać zmodyfikowane względem tych stosowanych u dorosłych. Na przykład u młodych myszy P11 używamy następujących współrzędnych do celowania MeApd: X= +2,03 mm, Y= -4,20 mm, Z= -5,08 mm; natomiast współrzędne używane u dorosłych to X= +2,15 mm, Y= -5,00 mm, Z= -5,10 mm. Niestety, istnieje mniej odniesień do atlasu mózgu dla myszy przedokresowych19 niż dla dorosłych (Allen Mouse Brain Atlas, mouse.brain-map.org i atlas.brain-map.org)20,21. Dlatego, aby skutecznie osiągnąć prawidłowe celowanie wirusa w innych obszarach mózgu poza MeA, naukowcy będą musieli uzyskać świadome oszacowanie współrzędnych i przeprowadzić testy koordynacyjnych. Po drugie, należy uwzględnić czas inkubacji AAV. Optymalny czas inkubacji ekspresji AAV in vivo wynosi co najmniej 2-3 tygodnie. Biorąc pod uwagę, że w naszym protokole operacja stereotakstyczna przeprowadza się u niemowląt myszy w wieku P11, naukowcy będą mogli rozpocząć testowanie myszy po operacji dopiero od P25, po optymalnym okresie inkubacji AAV.
Ogólnie protokół ten dostarcza szczegółowych wytycznych dla badaczy dotyczących precyzyjnego celowania w interesujące obszary mózgu u niemowląt myszy za pomocą wektorów wirusowych. To podejście jest bardzo korzystne, ponieważ jest niezwykle elastyczne: można wstrzyknąć dowolną komercyjną lub na zamówienie konstrukcję AAV. Dzięki temu pozwala badać molekularnie określone subpopulacje komórek oraz ich obwody anatomiczne, dynamikę neuronów i rolę komórkową przed i po okresie dojrzewania w krytycznym okresie zgodnym z pojawieniem się zachowań społecznych. Dodatkowo podejście to skutecznie celuje nie tylko w ciało migdałowate, jak pokazano tutaj, ale także w inne struktury podkorowe, takie jak podwzgórze i obszary korowe.
Oświadczenia
Autorzy nie mają żadnych konfliktów interesów do zgłoszenia.
Podziękowania
Dziękujemy dr Andrew Gormanowi, dr Donnie Webb oraz Davidowi Gouldingowi z Oddziału Medycyny Porównawczej (CMB) w National Institute of Environmental Health Sciences (NIEHS/NIH) za cenne dyskusje na temat najlepszych praktyk w znieczuleniu i przeciwbólu w leczeniu gryzoni. Dziękujemy również wszystkim członkom CMB w NIEHS za najwyższą troskę o zwierzęta oraz wszystkich członków Grupy Obwodów Neurobehawioralnych. Prace te zostały wsparte przez Program Badań Wewnętrznych National Institute of Environmental Health Sciences, National Institutes of Health (NIEHS/NIH) (ZIA ES103403) (J.E.L.). Wkład autorów NIH jest uznawany za Dzieło Rządu Stanów Zjednoczonych. Wyniki i wnioski przedstawione w tym artykule są wyłącznie autorami i niekoniecznie odzwierciedlają stanowiska NIH ani Departamentu Zdrowia i Opieki Społecznej USA.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Wiertło #75 | Miasto wiertła | 10WS75-850FL | |
| Wskazówka 27 G | Covetrus | 60757 | |
| 3% nadtlenku wodoru | Łabędź | NDC 0809-0871-43 | |
| 32% paraformalnego dehydu | Nauki o mikroskopii elektronowej | 15714 | |
| AAV2-hSyn-DIO-mCherry | Addgene | 50459-AAV2 | |
| Alexa Fluor 488 AffiniPure Donkey (1:1000) Anti-Rabbit IgG (H+L) | Badania Jackson Immuno | 711-545-152 | |
| Analityczna równowaga | Sartorius | 1102--15 | |
| Betadyna | Apteka Avrio | NDC 67618-155-15 | |
| Bupivacaine | Hospira | NDC 0409-1163-18 | |
| Kriostat | Leica | CM1950 | |
| Mikroskop rozcinający | Zeiss | 2149-629 | |
| maść do oczu | Dechra Veterinary | Puralube | |
| Nośnik montażowy Fluoromount z DAPI | Thermo Fisher Scientific | 00-4959-52 | |
| Przeciwciało Foxp2 (1:1000) | Atlas Antibody/Cosmo Bio | HPA000382 | |
| Foxp2cre+/- myszy | Laboratorium Jacksona | 30541 | |
| Uchwyt na głowę i drążek podniebienia do znieczulenia gazowego dla szczeniąt P12 | David Kopf Instruments | 1934-C | |
| Sterylizator szklanych kulek | Fisher Scientific | 10-000-632 | |
| Kapilara szklana | Światowe Precyzyjne Instrumenty | 504949 | |
| Uchwyt na szklane pipety | David Kopf Instruments | 1975-1.2-A | |
| Podkładka grzewcza | Kent Scientific Korporacja | RT-0520 | |
| Izofluran | Piramal Intensywna Opieka Krytyczna | NDC 66794-017-10 | |
| Meloksykam | Pivetal Veterinary Supply | NDC 46066-937-13 | |
| Mikrowiertarka | David Kopf Instruments | Model 1911 Drill | |
| Microfil Flexible Needle | Światowe Precyzyjne Instrumenty | MF28G67-5 | |
| Szkiełka mikroskopowe | Thermo Fisher Scientific | 12-550-15 | |
| Olej mineralny | Sigma-Aldrich | M5904-500ML | |
| Nanolitrowy wtryskiwacz | Światowe Precyzyjne Instrumenty | NANOLITER2020 | |
| Szew niechłonny | Chirurgia AD | S-N718SP13 | |
| Uszniki nie-Rapture | David Kopf Instruments | 1921-A | |
| Normalne osiołko serum | Jackson ImmunoResearch | 017-000-121 | |
| Kompleks O.C.T. | Sakura | 4583 | |
| Stereotaksowy zestaw | David Kopf Instruments | 1900 | |
| Sterylny patyczek kosmetyczny | ULINE | S-21102 | |
| Sterylna zasłona | Jednorazowe rzeczy szpitalne Busse | 696 | |
| Sól fizjologiczna sterylna | Hospira | NDC 0409-1966-02 | |
| Woda sterylna | Hospira | NDC 0409-4887-24 | |
| Sacharoza | Fisher Chemical | S5-500 | |
| Strzykawka | Fisher Scientific | 50-252-2568 |
Bibliografia
- Andersen, S. L. Trajectories of brain development: Point of vulnerability or window of opportunity. Neurosci Biobehav Rev. 27 (1-2), 3-18 (2003).
- Zeiss, C. J. Comparative milestones in rodent and human postnatal central nervous system development. Toxicol Pathol. 49 (8), 1368-1373 (2021).
- Bell, M. R. Comparing postnatal development of gonadal hormones and associated social behaviors in rats, mice, and humans. Endocrinology. 159 (7), 2596-2613 (2018).
- Auger, A. P., Olesen, K. M. Brain sex differences and the organisation of juvenile social play behaviour. J Neuroendocrinol. 21 (6), 519-525 (2009).
- Barkley, M. S., Goldman, B. D. A quantitative study of serum testosterone, sex accessory organ growth, and the development of intermale aggression in the mouse. Horm Behav. 8 (2), 208-218 (1977).
- National Research Council (US) Committee on Guidelines for the Use of Animals in Neuroscience and Behavioral Research. Guidelines for the care and use of mammals in neuroscience and behavioral research. , The National Academies Press. (2003).
- Wang, C., Mei, L. In utero electroporation in mice. Methods Mol Biol. 1018, 151-163 (2013).
- Kim, J. Y., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. J Vis Exp. (91), e51863(2014).
- Robertson, S. D., Plummer, N. W., De Marchena, J., Jensen, P. Developmental origins of central norepinephrine neuron diversity. Nat Neurosci. 16 (8), 1016-1023 (2013).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Prakash, N., Abu Irqeba, A., Corbin, J. G. Development and function of the medial amygdala. Trends Neurosci. 48 (1), 22-32 (2025).
- Raam, T., Hong, W. Organization of neural circuits underlying social behavior: A consideration of the medial amygdala. Curr Opin Neurobiol. 68, 124-136 (2021).
- Lischinsky, J. E., et al. Embryonic transcription factor expression in mice predicts medial amygdala neuronal identity and sex-specific responses to innate behavioral cues. Elife. 6, e21012(2017).
- Lischinsky, J. E., et al. Transcriptionally defined amygdala subpopulations play distinct roles in innate social behaviors. Nat Neurosci. 26 (12), 2131-2146 (2023).
- Chan, E., Kovacević, N., Ho, S. K., Henkelman, R. M., Henderson, J. T. Development of a high resolution three-dimensional surgical atlas of the murine head for strains 129s1/svimj and c57bl/6j using magnetic resonance imaging and micro-computed tomography. Neuroscience. 144 (2), 604-615 (2007).
- Tu, L., et al. Free-floating immunostaining of mouse brains. Methods Mol Biol. 176, 1-12 (2021).
- Thal, S. C., Plesnila, N. Non-invasive intraoperative monitoring of blood pressure and arterial pCO during surgical anesthesia in mice. J Neurosci Methods. 159 (2), 261-267 (2007).
- Chen, S. -Y., Kuo, H. -Y., Liu, F. -C. Stereotaxic surgery for genetic manipulation in striatal cells of neonatal mouse brains. J Vis Exp. (137), e57270(2018).
- Kronman, F. N., et al. Developmental mouse brain common coordinate framework. Nat Commun. 15 (1), 9072(2024).
- Dong, H. W. The Allen reference atlas: A digital color brain atlas of the C57BL/6J male mouse. , John Wiley & Sons. (2008).
- Paxinos, G., Franklin, K. B. The mouse brain in stereotaxic coordinates. , Academic Press. (2004).
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny