Funkcja soczewki ocznej do skupiania światła na siatkówce zależy od przezroczystości tkanek, biomechaniki oraz współczynnika załamania. Niniejszy przegląd podkreśla trójwymiarową architekturę soczewki i omawia złożone mechanizmy utrzymujące homeostazę tkanek.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł przeglądowy
Soczewka oka ssaków w centrum uwagi: rozwój, anatomia, fizjologia, przejrzystość, biomechanika i wyzwania związane z wiekiem
W tym artykule
Podsumowanie
Streszczenie
Soczewka to przezroczysty, elipsoidalny organ w przedniej komorze oka, który skupia światło na siatkówce. Składająca się z komórek nabłonkowych i włókniskowych, ta trójwymiarowa tkanka jest wysoko zorganizowana, aby zapewnić wyraźną ścieżkę światła i wykorzystuje wiele strategii do ustanowienia oraz utrzymania wysokiego współczynnika załamania i przezroczystości. U ludzi soczewka zmienia kształt, aby skupiać światło z różnych odległości w procesie zwanym akomodacją, a te właściwości elastyczne i biomechaniczne soczewki zależą od mechanizmów tkankowych, komórkowych i molekularnych. Zaćma, definiowana jako każda nieprzezroczystość w normalnie przezroczystej soczewce, pozostaje główną przyczyną ślepoty na świecie. Prezbiopia, spowodowana zmianami sztywności soczewek związanych z wiekiem, została powiązana z akomodacyjnym pogorszeniem stanu stanu i koniecznością noszenia okularów do czytania. Niniejszy przegląd przybliży rozwój soczewek ssaków i wzrost przez całe życie, kryształki i białka cytoszkieletowe, komunikację między komórkami i mikrocyrkulację, biomechanikę soczewek oraz wyzwania i nowe metody badania tej unikalnej tkanki.
Wprowadzenie
Soczewka oka jest, na pierwszy rzut oka, stosunkowo prostą tkanką składającą się z dwóch typów komórek: komórek nabłonkowych i komórek włókien. Większość masy soczewki stanowią komórki włókien, a przednią półkulę pokrywa warstwa pojedyncza komórek nabłonkowych1 (Rysunek 1A). Cała tkanka jest otoczona cienką błoną podstawną, zwaną torebką soczewki, która składa się głównie z kolagenu IV i lamininy, jak opisano w poprzednim przeglądzie2. Pozbawiona unaczynienia i unerwienia, soczewka jest zawieszona w przedniej komorze oka za pomocą elastycznych włókien zonularnych (tzw. zonul), łączących torebkę soczewki z ciałem rzęskowym1. Przednie lub centralne komórki nabłonka soczewki mają kształt sześcienny i są ułożone w strukturę przypominającą bruk3,4,5 (Rysunek 1A, jasnoniebieskie komórki, góra). Komórki te są spoczynkowe i nie proliferują6. Tuż przed równikiem soczewki, w strefie generatywnej, komórki nabłonka ulegają podziałom (Rysunek 1A, pomarańczowe komórki, góra po prawej), a te komórki równikowe migrują w stronę równika, gdzie układają się w uporządkowane rzędy południkowe o sześciokątnym kształcie7,8,9,10 (Rysunek 1A, zielone komórki, góra po prawej). Komórki rzędów południkowych kotwiczą swoje wierzchołki apikalne w punkcie podparcia soczewki lub modiolusie, a następnie zaczynają się wydłużać i różnicować w nowe wtórne komórki włókien (Rysunek 1A, dół po lewej). Wierzchołki apikalne włókien wtórnych migrują w stronę bieguna przedniego, oddziałując z powierzchnią apikalną komórek nabłonkowych, tworząc nietypowe połączenie apikalno-apikalne3 (Rysunek 1A, czerwona linia). Tylne wierzchołki bazalne nowo powstałych włókien rozciągają się w stronę bieguna tylnego, przemieszczając się wzdłuż torebki soczewki (Rysunek 1A, dół po lewej). Gdy wierzchołki wydłużających się komórek włókien dotrą do bieguna przedniego lub tylnego, komórki oddzielają się od przedniego nabłonka lub tylnej torebki i łączą się z wierzchołkami komórek rozciągającymi się z przeciwnej strony tkanki, tworząc szew11,12,13 (Rysunek 1A, góra po lewej). Komórki włókien soczewki w przekroju poprzecznym mają wydłużony sześciokątny kształt z 2 długimi/szerokimi bokami, 4 krótkimi bokami i 6 połączeń trójkomórkowych (Rysunek 1A, dół po prawej)14. Minimalna przestrzeń międzykomórkowa między sąsiednimi komórkami włókien ogranicza rozpraszanie światła14. Ciągłe dodawanie korowych komórek włókien na peryferiach, nakładających się na poprzednie generacje włókien, umożliwia dożywotni wzrost soczewki14,15. Środek soczewki nazywany jest jądrem; obszar ten charakteryzuje się zwiększoną sztywnością w porównaniu z obwodem lub korą, jak opisano w poprzednim przeglądzie16.
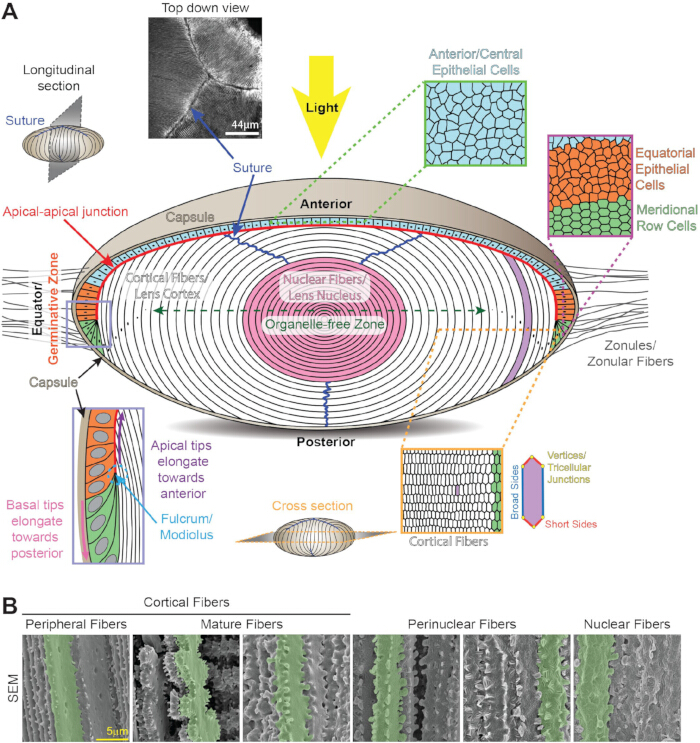
Rysunek 1: Anatomia i budowa soczewki. (A) Soczewka składa się z monowarstwy komórek nabłonkowych (jasnoniebieskie, pomarańczowe i jasnozielone) pokrywającej przednią półkulę oraz masy włókien soczewki (białe i różowe). Cienka błona kolagenowa, znana jako torebka soczewki (beżowa), otacza tkankę. Soczewka jest zawieszona w przedniej komorze oka za pomocą włókien zonularnych (zonule) wczepionych w torebkę wokół równika soczewki. Przednie/centralne komórki nabłonka (jasnoniebieskie, góra) mają kształt sześcianowy i strukturę brukową w przekroju poprzecznym. Nabłonkowe komórki równikowe (pomarańczowe) w strefie germinatywnej przekształcają się z komórek ułożonych chaotycznie (pomarańczowe) w zorganizowane południkowe rzędy komórek sześciokątnych (zielone). Komórki rzędów południkowych wydłużają się, tworząc nowe warstwy wtórnych komórek włókien korowych (białe) na obwodzie soczewki. Wierzchołki apikalne nowo powstałych włókien wtórnych zakotwiczają się w punkcie podparcia/modiolusie (obramowanie w kolorze niebiesko-fioletowym, dół po lewej). Wierzchołki apikalne wydłużających się włókien wtórnych migrują w stronę bieguna przedniego wzdłuż strony apikalnej komórek nabłonkowych soczewki i tworzą nietypowe połączenie apikalno-apikalne (czerwona linia). Wierzchołki bazalne wydłużających się włókien migrują w stronę bieguna tylnego wzdłuż torebki tylnej. Po pełnym wydłużeniu włókien wtórnych, ich wierzchołki odrywają się od nabłonka przedniego lub torebki tylnej, tworząc szwy soczewki (ciemnoniebieskie linie i obraz w lewym górnym rogu). Komórki włókien soczewki w przekroju poprzecznym są wydłużonymi sześciokątami (dół po prawej) z 2 długimi/szerokimi bokami, 4 krótkimi bokami i 6 połączeniami trójkomórkowymi. Podczas dojrzewania komórek włókien wszystkie organella komórkowe są usuwane, aby stworzyć strefę wolną od organelli (ciemnozielona strzałka dwukierunkowa) i zminimalizować rozpraszanie światła. Najstarsze komórki włókien soczewki są zagęszczone w centrum tkanki, tworząc jądro soczewki (różowe). Schematy nie są narysowane w skali. (B) Obrazy z transmisyjnego mikroskopu elektronowego (SEM) komórek włókien na różnych głębokościach soczewki pokazują zmieniającą się morfologię komórek podczas różnicowania i dojrzewania. Pojedyncze komórki są wyróżnione na zielono dla podkreślenia. Obwodowe włókna korowe mają zazębienia typu „ball-and-socket” wzdłuż długich boków i małe wypustki wzdłuż krótkich boków. Podczas dojrzewania komórek włókien, krótkie boki dojrzałych komórek zdobią duże łopatki z małymi wypustkami oraz duże wypustki. Włókna okojądrowe mają zazębienia typu „tongue and groove” wzdłuż całej błony i duże wypustki wzdłuż krótkich boków. Włókna jądrowe mają duże wypustki wzdłuż krótkich boków i globularną morfologię błony. Pasek skali, 5 µm. Zmodyfikowano na podstawie 16,328. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Złożoność soczewki wynika z wysoką uporządkowanego trójwymiarowego (3D) układu komórek, specjalistycznego dojrzewania komórek włókien, które prowadzi do degradacji i usunięcia wszystkich organelli komórkowych, oraz mechanizmów molekularnych i komórkowych służących do ustanawiania i utrzymywania przejrzystości oraz wysokiego współczynnika refrakcji tkanki. Brak organelli komórkowych w większości komórek włókien soczewki utrudnia utrzymanie zdrowia i żywotności każdej komórki soczewki powstałej w ciągu całego życia organizmu. Soczewka jest doskonałą tkanką do badania starzenia się i zmian związanych z wiekiem, ponieważ komórki położone najbliżej centrum powstały podczas wczesnego rozwoju zarodkowego, a soczewka w dalszym ciągu generuje nowe komórki na obwodzie tkanki przez całe życie, co pozwala na badanie komórek chronologicznie starych w porównaniu z komórkami powstałymi w podeszłym wieku. Funkcja precyzyjnego ogniskowania soczewki umożliwia powstanie wyraźnego obrazu na siatkówce obiektów znajdujących się w różnych odległościach i zależy od zdolności soczewki do zmiany kształtu, czyli akomodacji. Soczewka jest tkanką niełączną i niemięśniową, w której właściwości biomechaniczne są niezbędne do prawidłowego funkcjonowania.
Główną przyczyną upośledzenia wzroku jest starzenie się organizmu17. Zmiany związane z wiekiem prowadzą do dwóch głównych patologii soczewki: zaćmy oraz presbiopii18. Zaćma lub inne zmętnienia soczewki pozostają główną przyczyną ślepoty na świecie19 i są wywoływane przez czynniki genetyczne oraz środowiskowe, w tym promieniowanie UV, palenie tytoniu, cukrzycę oraz stres oksydacyjny, co prowadzi do agregacji białek i/lub defektów komórkowych, jak opisano w poprzednich przeglądach literatury18,20,21,22,23,24,25. Presbiopia, czyli związane z wiekiem zmniejszenie akomodacji, jest spowodowane ograniczeniem zdolności soczewki do zmiany kształtu podczas ogniskowania na obiektach znajdujących się w pobliżu, co w konsekwencji prowadzi do konieczności stosowania okularów do czytania26,27,28. Światowa Organizacja Zdrowia szacuje, że na całym świecie znajduje się co najmniej 1 miliard osób z nieleczonym upośledzeniem wzroku, w tym 65,2 miliona osób z zaćmą i 826 milionów osób z presbiopią17. W obliczu starzenia się populacji istnieje pilna potrzeba lepszego zrozumienia fizjologii i biologii soczewki.
Niniejszy przegląd obejmuje architekturę tkanki, rozmieszczenie komórek oraz mechanizmy molekularne istotne dla funkcji i homeostazy soczewek ssaków, wraz z niektórymi informacjami na temat soczewek innych kręgowców. Celem jest przedstawienie ogólnego przeglądu biologii i fizjologii soczewki z odniesieniami do dodatkowych, szczegółowych opracowań. Tematyka obejmuje embrionalny rozwój soczewki, postnatalny wzrost soczewki, trójwymiarowy układ komórek i tkanek, biomechaniczne właściwości tkanki oraz mikrokrążenie. Poniżej omówiono główne białka soczewki, a mianowicie krystaliny, sieci cytoszkieletowe oraz komunikację międzykomórkową. Przegląd kończy się omówieniem aktualnych wyzwań i nowoczesnych metod badania tej wyjątkowej tkanki.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przegląd i perspektywa
Zarodkowy rozwój soczewki oraz postnatalny wzrost soczewki
U kręgowców soczewka rozwija się z komórek ektodermy powierzchniowej, a przyszła soczewka zaczyna formować się poprzez pogrubienie ektodermy powierzchniowej nad pęcherzykiem optycznym6,29,30 (Ryc. 2A). Równocześnie z formowaniem się kielicha optycznego, pogrubiona ektoderma, czyli placoda soczewki, ulega inwagiacji, tworząc dołek soczewki6,29,30 (Ryc. 2B). Filamenty aktynowe (F-aktyna) łączą tylną część dołka soczewki z przednią powierzchnią rozwijającego się kielicha optycznego, aby koordynować ruchy i zmiany kształtu tych rozwijających się tkanek31,32,33,34, a do inwagiacji dołka soczewki niezbędna jest konstrikcja apikalna komórek nabłonkowych soczewki35,36,37,38,39,40 (Ryc. 2C). Otwór dołka soczewki sukcesywnie się zwęża, aż do całkowitego zamknięcia, gdy komórki szyjki soczewki ulegają apoptozie41,42,43. Pęcherzyk soczewki oddziela się od przyszłej ektodermy rogówki, tworząc pęcherzyk soczewki, czyli pustą sferę komórek nabłonkowych6,29,30 (Ryc. 2D). Tylne komórki nabłonkowe w pęcherzyku soczewki wydłużają się w kierunku nabłonka przedniego i różnicują w pierwotne komórki włókien, aby wypełnić jamę i utworzyć embrionalną soczewkę (Ryc. 2E). Monowarstwa komórek nabłonkowych pokrywająca przednią półkulę zostaje zachowana, podczas gdy w pełni uformowana soczewka embrionalna nie posiada już tylnych komórek nabłonkowych (Ryc. 2F). Pierwotne komórki włókien tworzą najbardziej centralną część jądra soczewki i są otoczone nowymi generacjami wtórnych włókien soczewki, które są dodawane z obwodu lub kory soczewki przez całe życie6,29,30. Choć większość soczewek kręgowców powstaje w wyniku inwagiacji, u zebrafish placoda ulega pogrubieniu, a następnie delaminacji, tworząc soczewkę44.
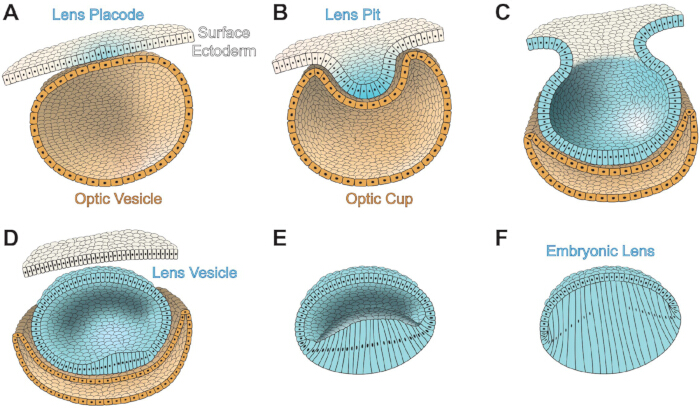
Rysunek 2: Rozwój zarodkowej soczewki w oczach ssaków. Komórki ektodermy powierzchniowej są białe, komórki soczewki są jasnoniebieskie, a komórki pucharka/pęcherzyka optycznego mają kolor piaskowy. (A) Zarodkowy placod soczewki (jasnoniebieski) rozwija się z ektodermy powierzchniowej. Za ektodermą powierzchniową i placodem soczewki znajduje się pęcherzyk optyczny. (B) Inwaginacja placodu soczewki tworzy dołek soczewki, a inwaginacja pęcherzyka optycznego tworzy pucharek optyczny. Przednia część pucharka optycznego przekształci się w tęczówkę i ciało rzęskowe, natomiast tylna część pucharka optycznego utworzy siatkówkę oraz nabłonek pigmentowy siatkówki. (C) Otwór placodu soczewki zwęża się, aż do jego całkowitego zamknięcia. (D) Pęcherzyk soczewki oddziela się od ektodermy powierzchniowej i stanowi pustą sferę wyściełaną komórkami nabłonka soczewki. (E) Tylne komórki nabłonka soczewki w pęcherzyku soczewki zaczną się wydłużać i różnicować w pierwotne włókna soczewki. (F) Pierwotne włókna soczewki wypełniają jamę pęcherzyka soczewki, tworząc soczewkę zarodkową. Schematy nie są narysowane w skali. Opracowano na podstawie 411. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Podczas rozwoju embrionalnego soczewka jest otoczona koszykowatą siecią naczyń krwionośnych6,45,46. Naczynia te wywodzą się z tętnicy szkłowatej siatkówki i zaczynają tworzyć sieć w tylnej części dołka soczewki, by ostatecznie stworzyć uporządkowaną strukturę tunica vasculosa lentis, która odżywia embrionalną soczewkę aż do pełnego wykształcenia się przedniej komory i produkcji cieczy wodnistej6,45. Naczynia te ulegają regresji i zanikają, aby zapewnić przejrzystą drogę światła przed narodzinami lub przed otwarciem oczu, w zależności od gatunku6,45,46,47.
Pax6 jest niezbędny dla wczesnego rozwoju oka48,49,50,51,52 oraz jest kluczowy i wystarczający dla rozwoju soczewki53,54,55,56. Fosforylacja i SUMOylacja Pax6 regulują funkcję tego czynnika transkrypcyjnego podczas rozwoju mózgu, ośrodkowego układu nerwowego i oka57,58,59,60. Inne istotne szlaki sygnalizacyjne wymagane dla embrionalnego rozwoju oka i soczewki przecinają się z sygnalizacją Pax6, w tym enhancery [Meis, białka morfogenetyczne kości (Bmp) oraz czynnik wzrostu fibroblastów (FGF)] i białka downstream [Foxe3 i kwas retinowy (RA)], jak opisano w poprzednim przeglądzie61. Meis1 i Meis2 wiążą się z regionem enhancera genu Pax6 i są wymagane do indukcji soczewki u kręgowców62. Badania genetyczne wykazują, że Bmp7 jest niezbędny dla rozwoju płytki soczewki poprzez regulację ekspresji Pax663,64. Foxe3 znajduje się downstream sygnalizacji Pax6 i jest potrzebny do rozwoju soczewki65,66, w szczególności do pełnego oddzielenia szyjki soczewki od ektodermy powierzchniowej podczas formowania się pęcherzyka soczewki. Utrata Foxe3 prowadzi do wrodzonych wad oka znanych jako anomalia Petersa67. Sygnalizacja receptora FGF (FGFR) współpracuje z Bmp7 w celu regulacji ekspresji Pax6, co z kolei wpływa na poziomy Foxe3 w rozwijającej się soczewce68. Ekspresja hamującej formy FGFR prowadzi do opóźnienia formowania się płytki soczewki, niepełnego oddzielenia szyjki soczewki oraz powstania małego pęcherzyka soczewki68. Zaburzenie sygnalizacji RA prowadzi do wad formowania oka69, a w przypadku zaburzenia Pax6 obserwuje się obniżoną ekspresję RA, co sugeruje istnienie wzajemnych oddziaływań między tymi dwoma szlakami sygnalizacyjnymi70.
Uważa się, że po pełnym uformowaniu się zarodkowej soczewki ciągły wzrost soczewki poprzez proliferację i różnicowanie komórek nabłonkowych równika w wtórne włókna soczewki jest sterowany przez sygnalizację czynników wzrostu, przede wszystkim przez FGF w soczewkach ssaków, jak opisano w poprzednim przeglądzie71. FGF są bardziej obfite w ciele szklistym niż w cieczy wodnistej, co tworzy gradient narastających sygnałów wzrostu i różnicowania w pobliżu równika soczewki72,73. Soczewka wykazuje ekspresję 3 z 4 receptorów FGFR: FGFR1, FGFR2 i FGFR3, przy czym ekspresja wzrasta na równiku soczewki oraz za nim74,75. Nadmierna ekspresja FGF indukuje nieprawidłowe wydłużenie i różnicowanie zazwyczaj spoczywających przednich komórek nabłonkowych w komórki włókniste76,77,78. Oprócz sygnalizacji FGF, badania z użyciem inhibitorów wykazały, że szlak Bmp odgrywa rolę w wydłużaniu komórek włóknistych79,80, a nieprawidłowy receptor czynnika wzrostu beta (TGFβ) zaburza prawidłowe dojrzewanie komórek włóknistych81.
Przezroczystość soczewki i współczynnik załamania światła
Komórki włókien soczewki przechodzą wyspecjalizowany proces usuwania wszystkich organelli komórkowych podczas dojrzewania, aby wyeliminować obiekty rozpraszające światło na drodze jego przejścia i stworzyć strefę wolną od organelli (OFZ)82 (Rycyna 1A). Skoordynowana utrata wszystkich organelli komórkowych następuje gwałtownie, gdy komórki włókien osiągną określony etap programowania dojrzewania83,84,85,86,87,88. Nieprawidłowa degradacja organelli prowadzi do powstania zaćmy, a w kilku modelach knockout (KO) u rybek danio-ostrolepis i myszy zidentyfikowano geny odpowiedzialne za degradację chromatyny i DNA89,90,91,92,93, kinazy zależne od cyklin94,95, czynnik szoku cieplnego 491,96,97,98 oraz fosfolipazę PLATT99, które są istotne dla formowania się OFZ. Nieprawidłowa ekspresja lub mutacje w białkach błony komórkowej i cytoszkieletu100,101,102,103,104, krystalinach105,106,107 oraz onkogenach108,109 mogą również wpływać na usuwanie organelli i przejrzystość soczewki. Jednak dokładny sygnał wyzwalający degradację organelli w komórkach włókien pozostaje niejasny. Niedawne prace wykazały znaczenie białek wiążących RNA w rozwoju soczewki i kataraktogenezie, co opisano w poprzednim przeglądzie110. Zaburzenia białek wiążących RNA, w tym Tdrd7111, caprin2112, Rbm24113 i Celf1114,115,116, prowadzą do nieprawidłowego rozwoju soczewki, zaburzonej degradacji organelli i zaćmy.
W porównaniu do większości typów komórek w organizmie, komórki włókien soczewki ssaków charakteryzują się niezwykle wysokim stężeniem białek (200–450 mg/ml)117,118,119,120. Białka stanowią 30%–35% całkowitej masy soczewki, w związku z czym soczewka ma stosunkowo niską zawartość wody, około 65%–70%121,122. Dziewięćdziesiąt procent białek soczewki pod względem masy stanowią krystaliny123, a w soczewkach ssaków występują 3 rodziny białek krystalin: α, β i γ, jak opisano w poprzednich przeglądach124,125. Wysoka zawartość białek normalnie zwiększałaby ryzyko powstawania agregatów większych niż połowa długości fali światła, co prowadziłoby do rozpraszania światła126, jednak białka krystaliny są zorganizowane w cytoplazmie komórek włókien z bliskiego zasięgu porządku, aby zapewnić wysoki współczynnik załamania światła i przejrzystość117,127. Agregacja białek jest łagodzona przez funkcje chaperonowe α-krystalin, omówione poniżej. Gradientowy współczynnik załamania światła (GRIN) w obrębie soczewki sprzyja ogniskowaniu światła, jak opisano w poprzednich przeglądach128,129, a maksymalny współczynnik załamania w centrum soczewki jest skorelowany z zagęszczeniem komórek włókien jądra130,131,132. W przypadku soczewek ryb dane sugerują, że wysoki współczynnik załamania w jądrze jest wynikiem transportu białek do centrum tkanki133. Hipoteza zakłada, że jednorodny rozkład białek krystalin w obrębie komórek i między warstwami włókien jest ułatwiony przez makromolekularną ścieżkę transportu poprzez fuzje błon wzdłuż błon komórek włókien134,135. Jednakże fuzji błon nie zaobserwowano jednoznacznie w soczewkach myszy136,137,138, a badania impedancji w soczewkach wielu gatunków nie wykazały obecności fuzji błon139,140,141,142. Dane z modeli mysich z zaburzoną komunikacją poprzez złącza szczelinowe sugerują, że komunikacja międzykomórkowa i elongacja komórek włókien również przyczyniają się do makromolekularnej ścieżki transportu143.
Krystaliny mają masę cząsteczkową ok. 20–30 kDa i pełnią funkcję strukturalną oraz refrakcyjną w soczewce. Krystaliny alfa składają się z podjednostek αA i αB, które wykazują 55%–60% homologii144,145,146; podczas gdy αB jest powszechnie eksprymowana w większości komórek, krystalina αA jest eksprymowana głównie w soczewce, a w niskich poziomach wykryto ją w innych tkankach, w tym w śledzionie i grasicy147,148. Niedawne badania wykazały również, że komórki nabłonka barwnikowego siatkówki oraz komórki zwojowe siatkówki mogą eksprymować krystalinę αA podczas stresu lub choroby, prawdopodobnie w celu zapewnienia efektu neuroprotekcyjnego149,150,151. Krystaliny alfa zazwyczaj łączą się w duże heteromultimery składające się z 30–35 mieszanych podjednostek αA i αB123. W nabłonku soczewki myszy, bydła i człowieka w komórkach przednich wykrywana jest tylko αB, podczas gdy w komórkach równikowych αA i αB występują w stosunku 1:3; stosunek ten zmienia się na 3:1 podczas różnicowania i wydłużania wtórnych komórek włókien123,152,153. Krystaliny alfa należą do rodziny małych białek szoku cieplnego i posiadają funkcje chaperonowe154, co pozwala tym białkom wiązać i izolować nieprawidłowe lub niefałdowane białka, zapobiegając dalszej agregacji białek. Małe peptydy krystaliny α były badane pod kątem zapobiegania chorobom wywołanym agregacją białek, w tym zaćmie, jak opisano w poprzednim przeglądzie155. Jednak zwiększona lub zmniejszona aktywność chaperonowa krystalin alfa w modelach mysich wykazuje, że oba scenariusze prowadzą do zwiększenia nasilenia zaćmy, co sugeruje, że odpowiednia aktywność chaperonowa krystalin alfa jest kluczowa dla przejrzystości soczewki156. Krystaliny beta i gamma należą do własnej rodziny białek krystalin β/γ i są specyficzne dla komórek włókien; u ssaków istnieje 7 izoform krystalin β, które występują jako dimery, tetramery lub oligomery wyższego rzędu, oraz 7 izoform krystalin γ, które są monomerami, jak opisano w poprzednim przeglądzie125. Oprócz funkcji strukturalnych, krystaliny β i γ wiążą jony wapnia i regulują dostępność oraz rezerwy jonów wapnia we włóknach soczewki157,158,159,160,161.
Białka cytoszkieletowe i błonowe soczewki
Komórki nabłonkowe i włókienkowe soczewki posiadają sieci F-aktyny, filamentów pośrednich keratyny lub wimentyny, wyspecjalizowanych paciorkowatych filamentów pośrednich oraz mikrotubul, jak opisano w poprzednich przeglądach162,163,164,165,166. Oprócz funkcji w rozwoju oka i soczewki31,32,33,34, różnorodne sieci F-aktyny w komórkach nabłonkowych i włókienkowych soczewki są istotne dla jej przezroczystości167,168,169,170,171,172. Niedawne prace wykazały, że zmiana sieci F-aktyny wpływa na biomechanikę soczewki173,174,175,176. Filamenty pośrednie złożone z wimentyny lub keratyny występują odpowiednio tylko we wczesnych etapach różnicowania komórek włókienkowych soczewki lub podczas rozwoju embrionalnego177,178,179,180,181; w przeciwieństwie do nich, wszystkie włókna soczewki posiadają paciorkowate filamenty pośrednie złożone z heterodimerów filensyny (znanej jako CP95/CP115 i kodowanej przez Bsfp1) oraz CP49 (znanej jako fakinina i kodowanej przez Bsfp2)182,183,184. Paciorkowaty wygląd tych heterodimerów wynika z obecności oligomerów złożonych z CP49 i filensyny zdobiących rdzeń filamentu185,186 oraz wiązania się α-krystalin wzdłuż tych wyspecjalizowanych filamentów pośrednich187,188,189,190,191. Utrata filensyny lub CP49 prowadzi do całkowitego zaniku tej sieci192,193,194,195. Zaburzenia filamentów pośrednich wimentyny lub paciorkowatych filamentów pośrednich powodują kataraktę u ludzi i w modelach zwierzęcych192,193,196,197,198,199,200,201,202,203,204, co wskazuje na znaczenie tych sieci cytoszkieletu dla przezroczystości soczewki. Niedawne badania sugerują, że mikrotubule są istotne dla wydłużania komórek włókienkowych soczewki205,206 oraz tworzenia strefy wolnej od organelli177.
Złącza przylegające oddziałujące z cytoszkieletem aktynowym są istotne dla formowania się soczewki207 oraz różnicowania komórek włókien. Zarówno E-kadheryna, jak i N-kadheryna są ekspresjonowane w komórkach nabłonkowych soczewki208,209,210,211, przy czym ekspresja E-kadheryny zostaje wyłączona na początku różnicowania komórek włókien212. N-kadheryna jest silnie ekspresjonowana w komórkach włókien soczewki i gromadzi się w punktach środkowych podstawy sześciokątnej stopy wydłużających się komórek włókien8,209. Utrata N-kadheryny po formowaniu się pierwotnych komórek włókien powoduje zaburzenia wydłużania wtórnych komórek włókien w wyniku nieprawidłowej migracji wierzchołków różnicujących się włókien wzdłuż powierzchni apikalnej przednich komórek nabłonkowych213. Zaburzenie dwukierunkowego sygnalizowania Eph-efryna w soczewce prowadzi do defektów złączy przylegających4,7,214,215,216.
Do innych głównych białek błonowych soczewki należą akwaporyny, koneksyny, MP20 (opisane w poprzednim przeglądzie217), galektyna 3, białko interfibrylowe powiązane z galektyną (GRIFIN), integryny (opisane w poprzednim przeglądzie218) oraz wydzielane białko kwasowe bogate w cysteinę (SPARC). Akwaporyny i koneksyny zostaną omówione w następnej sekcji. MP20 (znane również jako MP17 lub Lim2) jest białkiem błonowym specyficznym dla soczewki, pełniącym funkcje adhezyjne między komórkami85,219, występującym w dużym stężeniu w komórkach włókien220,221; mutacje w MP20 prowadzą do katarakty222,223,224,225,226,227,228,229,230. Niedawne prace wykazały interakcje między MP20 a galektyną 3, inną istotną cząsteczką adhezyjną między komórkami231,232,233. GRIFIN, izoforma galektyny specyficzna dla soczewki, lokalizuje się w błonach komórek włókien i oddziałuje z Pax6, krystalinami oraz kadherynami234,235,236,237. Integryny są istotnymi łącznikami między macierzą pozakomórkową (ECM) a cytoszkieletem, niezbędnymi do prawidłowego rozwoju soczewki. Izoformy integryn ekspresjonowane w soczewce pełnią rolę receptorów dla składników torebki, takich jak laminina, kolagen lub fibronektyna8,238,239,240,241,242,243,244,245. Każdy składnik macierzy może oddziaływać z wieloma integrynami, co prowadzi do zróżnicowanego sygnalizowania poprzez czasoprzestrzenną ekspresję integryn podczas rozwoju i wzrostu soczewki218. Szczególne zainteresowanie budzi zrozumienie zmian w TGFβ, integrynach i składnikach ECM podczas przejścia epitelialno-mezenchymalnego w pozostałych komórkach nabłonkowych soczewki po operacji katarakty, co prowadzi do zmętnienia tylnej torebki, jak opisano w poprzednim przeglądzie218. SPARC, cząsteczka adhezyjna między komórkami i regulująca proliferację, lokalizuje się w nabłonku soczewki i nie występuje w różnicujących się włóknach246. Utrata SPARC prowadzi do katarakty246,247,248, a niedawne badania wykazały, że SPARC może pełnić funkcje chaperonowe249, wpływać na integryny i białka ECM250,251,252 oraz oddziaływać na szlaki mikrokrażenia253.
Droga mikrokrażeniowa tkanki anawaskularnej
Ze względu na brak unaczynienia, w pełni uformowana soczewka wytwarza własny szlak mikrokrażenia w celu dostarczania składników odżywczych i usuwania produktów przemiany materii, co opisano w poprzednich przeglądach254,255,256,257. Prąd jonowy wnika do soczewki w biegunach przednim i tylnym, a opuszcza ją w okolicy równika258. Prąd wnikający opiera się na ruchu sodu do przestrzeni zewnątrzkomórkowych między komórkami soczewki w każdym z biegunów wzdłuż gradientu stężeń wytworzonego przez transport aktywny, natomiast prąd wychodzący jest wspomagany przez kanały połączeń szczelinowych w błonach komórek włókien, które są skoncentrowane w pobliżu równika soczewki, aby umożliwić opuszczanie jonów sodu w tym obszarze259. Komórki nabłonkowe równikowe i obwodowe komórki włókien wykazują wysoką ekspresję pomp Na+/K+ ATPase, które aktywnie wymieniają 3 jony sodu wypompowywane z komórek na 2 jony potasu z otoczenia pozasoczewkowego260,261,262. Soczewka utrzymuje wysokie stężenie potasu (135mM) i niskie stężenie sodu (16mM), aby stworzyć warunki umożliwiające ponowne wnikanie sodu do soczewki w biegunach, zgodnie z gradientem stężeń259,263. Oprócz Na+/K+ ATPase, kotransporter jonowy Na-K-2Cl cotransporter 1 (NKCC1) również pomaga regulować stężenia jonów w soczewce poprzez aktywację za pomocą kanałów mechanosensytywnych, co opisano w poprzednim przeglądzie264.
Złącza szczelinowe w soczewce składają się z trzech koneksyn: koneksyny 43 (Cx43 lub α1), Cx46 (lub α3) oraz Cx50 (lub α8)265,266. Cx43 jest ekspresowana głównie w komórkach nabłonkowych soczewki267. Chociaż inicjacja powstawania komórek włókien w soczewkach z nokautem Cx43 (Cx43 KO) przebiega prawidłowo, na styku komórek nabłonkowych i włókien występuje powiększona przestrzeń zewnątrzkomórkowa oraz wakuole wewnątrzkomórkowe, co sugeruje rolę Cx43 w utrzymaniu równowagi osmotycznej268. Cx46 koncentruje się w komórkach włókien soczewki, natomiast Cx50 występuje zarówno w komórkach nabłonkowych, jak i włókien269. Cx23 jest również ekspresowana w komórkach włókien soczewek myszy, ale nie w soczewkach ludzkich270,271,272,273. Dominująca mutacja w Cx23 powoduje wady komórek włókien u myszy270, jednak soczewki z nokautem Cx23 nie wykazują żadnych istotnych wad274. Sześć podjednostek koneksyny tworzy koneksom lub hemikanał; koneksom w jednej komórce łączy się z koneksomem w komórce sąsiedniej, tworząc złącze szczelinowe, które generuje por o średnicy około 10 angstromów między sąsiednimi komórkami, umożliwiając wymianę małych cząsteczek, jonów i wody275,276. Hemikanały koneksyn umożliwiają transport substancji między cytoplazmą wewnątrzkomórkową a środowiskiem zewnątrzkomórkowym, jak opisano w poprzednich przeglądach277,278. Hemikanały są istotne dla mikrocyrkulacji279, mechanosensytywnego transportu składników odżywczych i przeciwutleniaczy280,281,282,283 oraz odpowiedzi na stres oksydacyjny284,285,286,287,288. Złącza szczelinowe gromadzą się w duże blaszki na błonie komórek włókien; w soczewce blaszki te mogą mieć średnicę rzędu mikrometrów i są ułożone wzdłuż długich boków sąsiadujących komórek włókien289. Utrata Cx46 w soczewkach myszy prowadzi do gęstych zaćmy jądrowych z powodu zablokowania szlaku odpływu mikrocyrkulacji soczewki290,291. Montaż i/lub stabilność dużych blaszek Cx46 na błonie komórek włókien wymagają obecności F-aktyny oraz sieci paciorkowatych filamentów pośrednich289. Nokaut Cx50 prowadzi do mikroftalmusa, łagodnych zaćmy jądrowych i małych soczewek w wyniku nieprawidłowej proliferacji komórek nabłonkowych292,293. Utrata Cx50 wpływa na bramkowanie pozostałych blaszek złączy szczelinowych Cx46 w komórkach włókien soczewki139. Zastąpienie Cx50 poprzez knock-in Cx46 ekspresowaną pod endogennym locus Cx50 (4 kopie Cx46) ratuje przed wystąpieniem zaćmy spowodowanej utratą Cx50 i zwiększa sprzężenie złączy szczelinowych między włóknami, lecz te przezroczyste soczewki knock-in pozostają małe142,294. Zatem Cx46 nie może zastąpić funkcji Cx50 w zakresie wzrostu soczewki. Strategia knock-in została również wykorzystana do cofnięcia zaćmy jądrowej wywołanej przez zmutowane białka γB-krystaliny, co sugeruje, że zwiększone sprzężenie złączy szczelinowych może być strategią poprawy homeostazy soczewki i zapobiegania zaćmie295.
Strumień jonowy generowany przez jony sodu towarzyszy przepływ wody do komórek soczewki poprzez kanały akwaporynowe259. Kanały akwaporynowe w komórkach nabłonkowych są zbudowane z Aqp1, natomiast w komórkach włókien, w zależności od stopnia dojrzałości komórek, kanały wodne tworzą Aqp0 (znana również jako MIP) oraz Aqp5, co opisano w poprzednich przeglądach264,296,297. Ruch wody przez kanały połączeń szczelinowych generuje gradient ciśnienia hydrostatycznego w całej soczewce298,299, a gradient ten utrzymuje ciśnienie osmotyczne soczewki poprzez mechanosensytywne kanały potencjału przejściowego waniloidowego 1 (TRPV1) i TRPV4, które odpowiednio zwiększają i zmniejszają ciśnienie hydrostatyczne soczewki299,300,301,302. Zmniejszone napięcie więzadełek soczewki obniża ciśnienie hydrostatyczne, co aktywuje TRPV1, a następnie NKCC1, aby zwiększyć stężenie jonów w soczewce i wymusić przepływ wody do jej wnętrza w celu przywrócenia prawidłowego ciśnienia hydrostatycznego300,301. I odwrotnie, zwiększone napięcie więzadełek i objętość soczewki aktywują TRPV4, a następnie Na+/K+ ATPase, co prowadzi do zmniejszenia stężenia jonów w soczewce, a tym samym do obniżenia ciśnienia hydrostatycznego300,301,302.
Niezbędne składniki odżywcze i aminokwasy są transportowane do soczewki poprzez szlak mikrokrążenia303, a transport ten jest szczególnie istotny dla włókien OFZ. Ułatwiające transport glukozy transportery (GLUT) występują w komórkach nabłonkowych i włóknistych soczewki; GLUT1 jest ekspresjonowany w obu typach komórek, natomiast GLUT3 jest ekspresjonowany w komórkach nabłonkowych304,305,306,307. Myszy z knockoutem GLUT1 (GLUT1 KO) rozwijają zaćmę, co sugeruje, że pobieranie glukozy jest niezbędne dla przejrzystości soczewki308. Glutation (GSH), ważny przeciwutleniacz dla przejrzystości soczewki309,310, jest syntetyzowany w soczewce oraz może być transportowany do niej z cieczy wodnistej311,312,313,314,315. Cysteina, glutaminian i glicyna są niezbędnymi aminokwasami do syntezy GSH, a ich akumulacja występuje w korze i jądrze soczewki314,315. Związany z wiekiem spadek syntezy GSH lub zwiększone zużycie GSH może prowadzić do zmniejszenia dostępności GSH w soczewce, szczególnie w jej jądrze316,317,318,319,320,321. Peroksydazy glutationowe (GPX) wykorzystują GSH jako koenzym do neutralizacji hydroperoksydów, a niedawne badania wskazują, że ferroptoza wywołana toksycznymi nadtlenkami lipidów może prowadzić do zaćmy w wyniku zaburzenia funkcji GPX4322,323.
Architektura 3D i biomechanika soczewki
Wzorcowanie włókien soczewki w zorganizowane rzędy komórek o kształcie sześciokątnym wynika z wzorcowania równikowych komórek nabłonkowych w rzędy południkowe (Rycina 1A). Mechanizmy sterujące organizacją przypadkowo upakowanych i brukowatych równikowych komórek nabłonkowych w sześciokątne komórki rzędów południkowych opierają się na cytoszkielecie aktynowym. Sygnalizacja receptora tyrozynowej kinazy EphA2 jest niezbędna do stymulacji akumulacji F-aktyny w wierzchołkach sześciokątnych komórek rzędów południkowych w celu promowania organizacji komórek7,324. Miozyna IIA, białko kurczliwe wiążące się z F-aktyną, jest również istotna dla promowania sześciokątnego kształtu komórek8,325,326. Przez długi czas teoretyzowano, że to wysoce uporządkowane upakowanie komórek włókien jest wymagane dla przejrzystości soczewki, jednak nieprawidłowe upakowanie wynikające z utraty EphA27,324, mutacji w miozynie IIA325,326 lub zniekształcenie komórek występujące w starczym wieku130 sugerują, że sześciokątne upakowanie komórek nie jest niezbędne dla przejrzystości.
Komórki włókien, rozciągające się od bieguna przedniego do tylnego, mogą mieć długość kilku milimetrów, w zależności od gatunku zwierzęcia i wielkości soczewki327. Typowo komórki włókien mają przekrój zaledwie 4–7 µm327, a te długie i wąskie komórki są połączone dynamicznymi interdigitacjami międzykomórkowymi, które tworzą trójwymiarowy „zamek” pomiędzy sąsiadującymi komórkami włókien, jak opisano w poprzednim przeglądzie328. Interdigitacje komórek włókien soczewki wykazują złożone wzorce, które zmieniają się w miarę różnicowania i dojrzewania komórek: 1) obwodowe, nowo powstałe włókna z małymi wypustkami wzdłuż krótkich krawędzi oraz wypustkami typu „ball and socket” wzdłuż długich krawędzi, 2) dojrzałe komórki włókien przechodzące proces utraty organelli, posiadające duże „łopatki” z małymi, zazębiającymi się wypustkami wzdłuż krótkich krawędzi, 3) włókna okojądrowe z dużymi, zazębiającymi się wypustkami wzdłuż krótkich krawędzi oraz interdigitacjami typu „tongue and groove” wzdłuż całej błony, oraz 4) włókna jądrowe z dużymi wypustkami wzdłuż krótkich krawędzi i globularną morfologią błony wzdłuż całej jej powierzchni137,328,329,330,331,332,333,334,335,336,337,338,339 (Rysunek 1B). Niedawne badania dostarczyły bezpośrednich dowodów na to, że interdigitacje między komórkami włókien soczewki, zależne od sieci F-aktyny, są istotne dla sztywności tkanki174, co potwierdza od dawna wysuwaną hipotezę. Utrata ARVCF, składnika złączy przylegających, prowadzi do nieprawidłowych interdigitacji komórek włókien, powiększenia przestrzeni zewnątrzkomórkowej oraz wczesnego pojawienia się zaćmy korowej340. Defekty sztywności i wielkości jądra soczewki korelują ze zmianami w interdigitacjach typu „tongue and groove” oraz opóźnionym przejściem do globularnej morfologii błony131.
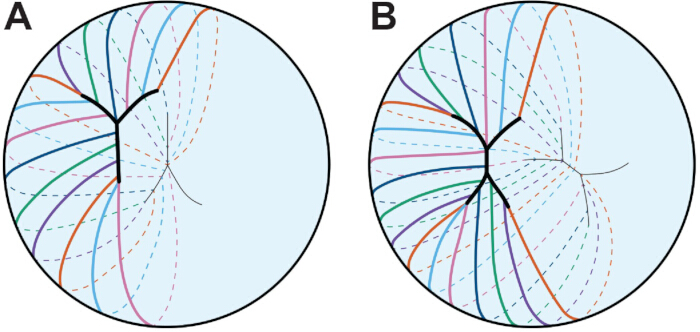
Rycina 3: Wzorzec szwów soczewki. Każda kolorowa linia reprezentuje pojedynczą komórkę włókna. (A) Komórki włókien w embrionalnej ludzkiej soczewce tworzą szew w kształcie litery Y. Szew Y jest lustrzany na biegunie przednim i tylnym. (B) W miarę dalszego rozwoju i wzrostu ludzkiej soczewki szew staje się bardziej rozgałęziony. Dla uproszczenia przedstawiono tutaj szew 4-ramienny. Wzorzec szwów jest przesunięty pomiędzy dwoma biegunami. Schematy nie są narysowane w skali. Opracowano na podstawie 45. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Ogólny kształt soczewki różni się w zależności od gatunku, a przyjmuje się, że krzywizna komórek włókien oraz typ szwu determinują kształt soczewki341,342. Szew powstaje w wyniku spotkania końców wydłużających się komórek włókien na biegunach przednim i tylnym, przy czym szew jest lustrzanym odbiciem między tymi dwoma biegunami11,12,13,343 (Rysunek 3). W soczewkach myszy szew ma kształt litery Y, natomiast w soczewkach naczelnych i ludzkich szew początkowo ma kształt litery Y, a z wiekiem staje się bardziej rozgałęziony11,12,45. Co ciekawe, szew w kształcie litery Y w soczewkach myszy ogranicza elastyczność lub sprężystość soczewki po usunięciu obciążenia mechanicznego, a rozgałęzione szwy w soczewkach KO z zaburzeniem sygnalizacji Eph-efryny korelują ze zwiększoną sprężystością344. Prawidłowe formowanie się szwu soczewki wymaga komunikacji poprzez połączenia szczelinowe345, a związane z wiekiem zaćmy przednie w soczewkach myszy są wynikiem niepełnego uformowania się szwu130.
Właściwości biomechaniczne soczewki mogą być modulowane przez szereg czynników molekularnych, komórkowych i tkankowych, co opisano w poprzednim przeglądzie16. Uważa się, że związany z wiekiem wzrost sztywności soczewki jest głównym czynnikiem przyczyniającym się do presbiopii346. U ludzi, podczas patrzenia na odległe obiekty, rozluźnienie mięśni rzęskowych napina włókna zonularne przytwierdzone do torebki, co skutkuje spłaszczeniem soczewki1. Przy skupianiu wzroku na obiekcie znajdującym się blisko, mięsień rzęskowy kurczy się, umożliwiając rozluźnienie zonul, a soczewka zaokrągla się, aby skupić światło pochodzące z bliskiego obiektu1. Ten proces akomodacji wymaga odpowiednich właściwości biomechanicznych soczewki, skurczu mięśnia rzęskowego oraz napięcia zonularnego. Badania wykazały, że wraz z wiekiem kurczliwość mięśnia rzęskowego oraz elastyczność i napięcie zonularne ulegają niewielkim zmianom lub nie zmieniają się wcale347,348,349,350. Kilka badań sugerowało, że zwiększony rozmiar soczewki, rozmiar i sztywność jądra soczewki przyczyniają się do ogólnego usztywnienia całej soczewki z wiekiem26,351,352,353,354. Jednak badania sztywności soczewki wraz z wiekiem u myszy sugerują, że istnieje niewielka korelacja między rozmiarem soczewki i jądra a sztywnością całej soczewki130,132, co wskazuje, że na związane z wiekiem usztywnienie soczewki wpływają inne czynniki. Niedawne prace wykazały, że zmiany w sieciach cytoszkieletu wpływają na sztywność soczewki; utrata tropomiozyny 3.5, białka stabilizującego F-aktynę, wpływa na skład i układ sieci F-aktyny w błonie komórek włókien i zmniejsza sztywność soczewki173. Podobnie, spontaniczne mutacje w kilku inbredowych liniach myszy typu dzikiego prowadzą do spontanicznego KO CP49192,355 i powstania miększych soczewek356,357. Błony komórek włókien soczewki charakteryzują się niezwykle wysoką zawartością cholesterolu358,359,360,361,362,363, co może regulować elastyczność błony364. Wysunięto teorię, że zmiany w zawartości cholesterolu w błonie oraz wiązanie α-krystalin z błoną komórek włókien wraz z wiekiem zwiększają sztywność soczewki365,366,367,368,369,370,371,372.
Wyzwania i nowe metody badania soczewki
Struktura 3D soczewki stwarza trudności w zrozumieniu rozmieszczenia komórek oraz w tworzeniu odpowiednich modeli in vitro, które odzwierciedlałyby architekturę tkanki. Choć dzięki zastosowaniu unieśmiertelnionych komórek lub kultur pierwotnych uzyskano cenne informacje na temat sygnalizacji i lokalizacji zmutowanych białek, to izolowane komórki nabłonka soczewki nie posiadają charakterystycznej morfologii kostkowej ani nie wykazują takiej samej ekspresji genów czy struktur cytoszkieletu, jak natywne komórki nabłonka soczewki373. Modele lentoidów in vitro, opisane w poprzednim przeglądzie374, oraz modele lensletów375 prowadzą odpowiednio do powstania komórek przypominających włókna oraz skupisk komórek przypominających minisoczewkę. Modele te tworzą przezroczystą strukturę podobną do soczewki, która może być przydatna do szybkiego screeningu leków, jednak żaden z nich nie odtwarza prawidłowej organizacji komórek włókien ani struktury 3D soczewki. Opracowano wiele protokołów lokalizacji białek w przekrojach tkanki soczewki i immunobarwienia, a metoda ta pozostaje najskuteczniejszym sposobem ustalenia, czy białka są wyrażane w konkretnych przedziałach komórkowych. Jednakże przygotowanie przekrojów tkankowych do badań histologicznych i immunobarwienia może być trudne, szczególnie w próbkach od starszych ssaków, ze względu na niepełną fiksację soczewki137; ponadto badanie struktury 3D w przekrojach 2D pomija szczegóły istotne dla zrozumienia kształtu komórek, interakcji między nimi oraz lokalizacji białek. Chociaż mikroskopia elektronowa (EM) pozostaje złotym standardem w badaniu kształtu komórek włókien, lokalizacja białek w próbkach EM wciąż stanowi wyzwanie376,377,378. Niedawne prace z wykorzystaniem preparatów płaskich monowarstwy komórek nabłonka4,7,324,373, barwienia pojedynczych komórek włókien85,173,174,379 oraz obrazowania całej soczewki4,7,324,344,380,381 ujawniły istotne informacje na temat adhezji międzykomórkowych, biomechaniki soczewki oraz zmieniających się sieci cytoszkieletu we włóknach soczewki.
Komórki nabłonka i włókna soczewki mają różne funkcje, transkryptomy i proteomy. Poprzednie badania porównujące poszczególne przedziały komórkowe były utrudnione, ponieważ przednią półkulę pokrywa jedynie jednowarstwowy nabłonek, co ogranicza ilość RNA lub białek, które można zebrać bez łączenia wielu próbek. Postępy w technikach ekstrakcji RNA, PCR w czasie rzeczywistym oraz zautomatyzowanej elektroforezie kapilarnej (Western) umożliwiły analizę genów i białek w próbkach komórek nabłonka soczewki pobranych z jednej pary oczu myszy130,132,373,382 lub z mikrodysekcyjnych regionów nabłonka soczewki, włókien korowych i włókien jądra383. Transkryptomika pojedynczych komórek pozwala na szczegółowe profilowanie komórek soczewki z embrionów i larw zebrafish oraz embrionów kurcząt384,385. Te nowe metody otwierają drogę do odkrycia mechanizmów molekularnych, które utrzymują każdy przedział komórkowy soczewki podczas normalnego starzenia się oraz w stanach patologicznych.
Wraz z rozwojem tej dziedziny należy pamiętać, że tło genetyczne myszy może odgrywać istotną rolę w patologii soczewki386,387 oraz w jej biomechanice355,356,357, dlatego w analizie danych kluczowe jest zastosowanie kontroli z tych samych miotów. Modele myszy mutantów i KO umożliwiają badanie zaćmy związanej z wiekiem oraz wzrostu sztywności soczewki130,356,357,388,389,390,391,392,393,394,395,396,397, a ze względu na stosunkowo krótki czas życia myszy, badania nad starzeniem powinny być prowadzone na starych zwierzętach, zamiast ekstrapolować dane z osobników młodych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wnioski
Postępy technologiczne w zakresie transkryptomiki, proteomiki, obrazowania i badań biomechanicznych poprawiły nasze zrozumienie biologii, fizjologii i patologii soczewki. Nasza rosnąca wiedza na temat różnic między różnymi populacjami komórek nabłonkowych soczewki i włókien będzie istotna dla zrozumienia zmian podczas starzenia się oraz mechanizmów wpływających na długość życia białek i komórek. Wzrosło zainteresowanie opracowywaniem interwencji farmaceutycznych mających zapobiegać lub opóźniać zaćmę i/lub prezbiopię ora...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Prace te zostały sfinansowane z grantu R01 EY032056 (dla CC) od National Eye Institute. Autorzy dziękują Isaiahowi J. Innisowi i Gryffinowi M. Flowersowi za pomocne komentarze.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Bibliografia
- Freddo, T. F., Chaum, E. Anatomy of the Eye and Orbit: The Clinical Essentials, 1e. , Lippincott Williams & Wilkins, a Wolters Kluwer business. (2018).
- Danysh, B. P., Duncan, M. K. The lens capsule. Exp Eye Res. 88 (2), 151-164 (2009).
- Zampighi, G. A., Eskandari, S., Kreman, M. Epithelial organization of the mammalian lens. Exp Eye Res. 71 (4), 415-435 (2000).
- Cheng, C., Gong, X. Diverse roles of Eph/ephrin signaling in the mouse lens. PLoS One. 6 (11), e28147(2011).
- Parreno, J., Cheng, C., Nowak, R. B., Fowler, V. M. The effects of mechanical strain on mouse eye lens capsule and cellular microstructure. Mol Biol Cell. 29 (16), 1963-1974 (2018).
- Lovicu, F. J., Robinson, M. L. Development of the Ocular Lens. , Cambridge University Press. (2011).
- Cheng, C., Ansari, M. M., Cooper, J. A., Gong, X. EphA2 and Src regulate equatorial cell morphogenesis during lens development. Development. 140 (20), 4237-4245 (2013).
- Bassnett, S., Missey, H., Vucemilo, I. Molecular architecture of the lens fiber cell basal membrane complex. J Cell Sci. 112 (Pt 13), 2155-2165 (1999).
- Bassnett, S., Sikic, H. The lens growth process. Prog Retin Eye Res. 60, 181-200 (2017).
- Sikic, H., Shi, Y., Lubura, S., Bassnett, S. A full lifespan model of vertebrate lens growth. R Soc Open Sci. 4 (1), 160695(2017).
- Kuszak, J. R. The development of lens sutures. Progress in Retinal and Eye Research. 14 (2), 567-591 (1995).
- Kuszak, J. R., Mazurkiewicz, M., Zoltoski, R. Computer modeling of secondary fiber development and growth: I. Nonprimate lenses. Mol Vis. 12, 251-270 (2006).
- Kuszak, J. R., Zoltoski, R. K., Tiedemann, C. E. Development of lens sutures. Int J Dev Biol. 48 (8-9), 889-902 (2004).
- Kuszak, J. R. The ultrastructure of epithelial and fiber cells in the crystalline lens. Int Rev Cytol. 163, 305-350 (1995).
- Kuszak, J. R., Macsai, M. S., Rae, J. L. Stereo scanning electron microscopy of the crystalline lens. Scan Electron Microsc. (Pt 3), 1415-1426 (1983).
- Cheng, C. Tissue, cellular, and molecular level determinants for eye lens stiffness and elasticity. Front Ophthalmol (Lausanne). 4, 1456474(2024).
- World Health Organization. World report on vision. , (2019).
- Michael, R., Bron, A. J. The ageing lens and cataract: a model of normal and pathological ageing. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1278-1292 (2011).
- Asbell, P. A., et al. Age-related cataract. Lancet. 365 (9459), 599-609 (2005).
- Hejtmancik, J. F. Oxidative Stress in Genetic Cataract Formation. Antioxidants (Basel). 13 (11), (2024).
- Shiels, A., Hejtmancik, J. F. Biology of Inherited Cataracts and Opportunities for Treatment. Annu Rev Vis Sci. 5, 123-149 (2019).
- Truscott, R. J. W., Friedrich, M. G. Molecular Processes Implicated in Human Age-related Nuclear Cataract. Invest Ophthalmol Vis Sci. 60 (15), 5007-5021 (2019).
- Fan, X., Monnier, V. M. Protein posttranslational modification (PTM) by glycation: Role in lens aging and age-related cataractogenesis. Exp Eye Res. 210, 108705(2021).
- Budnar, P., Tangirala, R., Bakthisaran, R., Rao, C. M. Protein Aggregation and Cataract: Role of Age-related Modifications and Mutations in alpha Crystallins. Biochemistry (Mosc). 87 (3), 225-241 (2022).
- Shiels, A., Hejtmancik, J. F. Inherited cataracts: Genetic mechanisms and pathways new and old. Exp Eye Res. 209, 108662(2021).
- Heys, K. R., Cram, S. L., Truscott, R. J. Massive increase in the stiffness of the human lens nucleus with age: the basis for presbyopia? Mol Vis. 10, 956-963 (2004).
- Glasser, A., Campbell, M. C. Biometric, optical and physical changes in the isolated human crystalline lens with age in relation to presbyopia. Vision Res. 39 (11), 1991-2015 (1999).
- Weeber, H. A., et al. Dynamic mechanical properties of human lenses. Exp Eye Res. 80 (3), 425-434 (2005).
- Piatigorsky, J. Lens differentiation in vertebrates. A review of cellular and molecular features. Differentiation. 19 (3), 134-153 (1981).
- Gunhaga, L. The lens: a classical model of embryonic induction providing new insights into cell determination in early development. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1193-1203 (2011).
- Chauhan, B. K., et al. Cdc42 and IRSp53 dependent contractile filopodia tether presumptive lens and retina to coordinate epithelial invagination. Development. 136 (21), 3657-3667 (2009).
- McAvoy, J. W. Cytoplasmic processes interconnect lens placode and optic vesicle during eye morphogenesis. Exp Eye Res. 31 (5), 527-534 (1980).
- Mann, I. The development of the human eye. , 3d, Grune & Stratton. (1964).
- Eiraku, M., et al. Self organizing optic cup morphogenesis in three dimensional culture. Nature. 472 (7341), 51-56 (2011).
- Lang, R. A., Herman, K., Reynolds, A. B., Hildebrand, J. D., Plageman, T. F. Jr p120 catenin dependent junctional recruitment of Shroom3 is required for apical constriction during lens pit morphogenesis. Development. 141 (16), 3177-3187 (2014).
- Plageman, T. F. Jr, et al. A Trio RhoA Shroom3 pathway is required for apical constriction and epithelial invagination. Development. 138 (23), 5177-5188 (2011).
- Borges, R. M., Lamers, M. L., Forti, F. L., Santos, M. F., Yan, C. Y. Rho signaling pathway and apical constriction in the early lens placode. Genesis. 49 (5), 368-379 (2011).
- Quintin, S., Gally, C., Labouesse, M. Epithelial morphogenesis in embryos: asymmetries, motors and brakes. Trends Genet. 24 (5), 221-230 (2008).
- Muccioli, M., Qaisi, D., Herman, K., Plageman, T. F. Jr Lens placode planar cell polarity is dependent on Cdc42 mediated junctional contraction inhibition. Dev Biol. 412 (1), 32-43 (2016).
- Houssin, N. S., Martin, J. B., Coppola, V., Yoon, S. O., Plageman, T. F. Jr Formation and contraction of multicellular actomyosin cables facilitate lens placode invagination. Dev Biol. 462 (1), 36-49 (2020).
- Glucksmann, A. Cell deaths in normal vertebrate ontogeny. Biol Rev Camb Philos Soc. 26 (1), 59-86 (1951).
- Ozeki, H., Ogura, Y., Hirabayashi, Y., Shimada, S. Suppression of lens stalk cell apoptosis by hyaluronic acid leads to faulty separation of the lens vesicle. Exp Eye Res. 72 (1), 63-70 (2001).
- Yan, Q., Liu, J. P., Li, D. W. Apoptosis in lens development and pathology. Differentiation. 74 (5), 195-211 (2006).
- Easter, S. S. Jr, Nicola, G. N. The development of vision in the zebrafish (Danio rerio). Dev Biol. 180 (2), 646-663 (1996).
- Mann, I. The development of the human eye. , The University Press. (1928).
- Darche, M., et al. Three dimensional characterization of developing and adult ocular vasculature in mice using in toto clearing. Communications Biology. 5 (1), 1135(2022).
- Wang, Z., Liu, C. H., Huang, S., Chen, J. Assessment and Characterization of Hyaloid Vessels in Mice. J Vis Exp. (147), e59222(2019).
- Hill, R. E., et al. Mouse small eye results from mutations in a paired like homeobox containing gene. Nature. 354 (6354), 522-525 (1991).
- Jordan, T., et al. The human PAX6 gene is mutated in two patients with aniridia. Nat Genet. 1 (5), 328-332 (1992).
- Hogan, B. L., et al. Small eyes (Sey): a homozygous lethal mutation on chromosome 2 which affects the differentiation of both lens and nasal placodes in the mouse. J Embryol Exp Morphol. 97, 95-110 (1986).
- Hanson, I. M., et al. Mutations at the PAX6 locus are found in heterogeneous anterior segment malformations including Peters' anomaly. Nat Genet. 6 (2), 168-173 (1994).
- Grindley, J. C., Davidson, D. R., Hill, R. E. The role of Pax 6 in eye and nasal development. Development. 121 (5), 1433-1442 (1995).
- Fujiwara, M., Uchida, T., Osumi Yamashita, N., Eto, K. Uchida rat (rSey): a new mutant rat with craniofacial abnormalities resembling those of the mouse Sey mutant. Differentiation. 57 (1), 31-38 (1994).
- Collinson, J. M., Hill, R. E., West, J. D. Different roles for Pax6 in the optic vesicle and facial epithelium mediate early morphogenesis of the murine eye. Development. 127 (5), 945-956 (2000).
- Quinn, J. C., West, J. D., Hill, R. E. Multiple functions for Pax6 in mouse eye and nasal development. Genes Dev. 10 (4), 435-446 (1996).
- Ashery Padan, R., Marquardt, T., Zhou, X., Gruss, P. Pax6 activity in the lens primordium is required for lens formation and for correct placement of a single retina in the eye. Genes Dev. 14 (21), 2701-2711 (2000).
- Kim, E. A., et al. Phosphorylation and transactivation of Pax6 by homeodomain interacting protein kinase 2. J Biol Chem. 281 (11), 7489-7497 (2006).
- Mikkola, I., Bruun, J. A., Bjorkoy, G., Holm, T., Johansen, T. Phosphorylation of the transactivation domain of Pax6 by extracellular signal regulated kinase and p38 mitogen activated protein kinase. J Biol Chem. 274 (21), 15115-15126 (1999).
- Yan, Q., et al. Sumoylation activates the transcriptional activity of Pax 6, an important transcription factor for eye and brain development. Proc Natl Acad Sci U S A. 107 (49), 21034-21039 (2010).
- Yan, Q., et al. Protein phosphatase 1 modulates the function of Pax 6, a transcription factor controlling brain and eye development. J Biol Chem. 282 (19), 13954-13965 (2007).
- Cvekl, A., Zhang, X. Signaling and Gene Regulatory Networks in Mammalian Lens Development. Trends Genet. 33 (10), 677-702 (2017).
- Zhang, X., Friedman, A., Heaney, S., Purcell, P., Maas, R. L. Meis homeoproteins directly regulate Pax6 during vertebrate lens morphogenesis. Genes Dev. 16 (16), 2097-2107 (2002).
- Dudley, A. T., Lyons, K. M., Robertson, E. J. A requirement for bone morphogenetic protein 7 during development of the mammalian kidney and eye. Genes Dev. 9 (22), 2795-2807 (1995).
- Wawersik, S., et al. BMP7 acts in murine lens placode development. Dev Biol. 207 (1), 176-188 (1999).
- Blixt, A., et al. A forkhead gene, FoxE3, is essential for lens epithelial proliferation and closure of the lens vesicle. Genes Dev. 14 (2), 245-254 (2000).
- Brownell, I., Dirksen, M., Jamrich, M. Forkhead Foxe3 maps to the dysgenetic lens locus and is critical in lens development and differentiation. Genesis. 27 (2), 81-93 (2000).
- Dimanlig, P. V., Faber, S. C., Auerbach, W., Makarenkova, H. P., Lang, R. A. The upstream ectoderm enhancer in Pax6 has an important role in lens induction. Development. 128 (22), 4415-4424 (2001).
- Faber, S. C., et al. Fgf receptor signaling plays a role in lens induction. Development. 128 (22), 4425-4438 (2001).
- Bavik, C., Ward, S. J., Chambon, P. Developmental abnormalities in cultured mouse embryos deprived of retinoic by inhibition of yolk sac retinol binding protein synthesis. Proc Natl Acad Sci U S A. 93 (7), 3110-3114 (1996).
- Enwright, J. F. 3rd, Grainger, R. M. Altered retinoid signaling in the heads of small eye mouse embryos. Dev Biol. 221 (1), 10-22 (2000).
- Lovicu, F. J., McAvoy, J. W. Growth factor regulation of lens development. Dev Biol. 280 (1), 1-14 (2005).
- Schulz, M. W., Chamberlain, C. G., de Iongh, R. U., McAvoy, J. W. Acidic and basic FGF in ocular media and lens: implications for lens polarity and growth patterns. Development. 118 (1), 117-126 (1993).
- Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential effects of aqueous and vitreous on fiber differentiation and extracellular matrix accumulation in lens epithelial explants. Invest Ophthalmol Vis Sci. 36 (7), 1459-1469 (1995).
- de Iongh, R. U., Lovicu, F. J., Chamberlain, C. G., McAvoy, J. W. Differential expression of fibroblast growth factor receptors during rat lens morphogenesis and growth. Invest Ophthalmol Vis Sci. 38 (9), 1688-1699 (1997).
- de Iongh, R. U., Lovicu, F. J., Hanneken, A., Baird, A., McAvoy, J. W. FGF receptor 1 (flg) expression is correlated with fibre differentiation during rat lens morphogenesis and growth. Dev Dyn. 206 (4), 412-426 (1996).
- Lovicu, F. J., Overbeek, P. A. Overlapping effects of different members of the FGF family on lens fiber differentiation in transgenic mice. Development. 125 (17), 3365-3377 (1998).
- Robinson, M. L., et al. Extracellular FGF 1 acts as a lens differentiation factor in transgenic mice. Development. 121 (2), 505-514 (1995).
- Robinson, M. L., et al. Disregulation of ocular morphogenesis by lens specific expression of FGF 3/int 2 in transgenic mice. Dev Biol. 198 (1), 13-31 (1998).
- Faber, S. C., Robinson, M. L., Makarenkova, H. P., Lang, R. A. Bmp signaling is required for development of primary lens fiber cells. Development. 129 (15), 3727-3737 (2002).
- Belecky Adams, T., et al. Pax 6, Prox 1, and Chx10 homeobox gene expression correlates with phenotypic fate of retinal precursor cells. Invest Ophthalmol Vis Sci. 38 (7), 1293-1303 (1997).
- de Iongh, R. U., et al. Requirement for TGFbeta receptor signaling during terminal lens fiber differentiation. Development. 128 (20), 3995-4010 (2001).
- Bassnett, S. Lens organelle degradation. Exp Eye Res. 74 (1), 1-6 (2002).
- Bassnett, S. The fate of the Golgi apparatus and the endoplasmic reticulum during lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 36 (9), 1793-1803 (1995).
- Bassnett, S., Beebe, D. C. Coincident loss of mitochondria and nuclei during lens fiber cell differentiation. Dev Dyn. 194 (2), 85-93 (1992).
- Bassnett, S., Shi, Y., Vrensen, G. F. Biological glass: structural determinants of eye lens transparency. Philos Trans R Soc Lond B Biol Sci. 366 (1568), 1250-1264 (2011).
- Counis, M. F., et al. Analysis of nuclear degradation during lens cell differentiation. Cell Death Differ. 5 (4), 251-261 (1998).
- Vrensen, G. F., Graw, J., De Wolf, A. Nuclear breakdown during terminal differentiation of primary lens fibres in mice: a transmission electron microscopic study. Exp Eye Res. 52 (6), 647-659 (1991).
- Costello, M. J., et al. Autophagy and mitophagy participate in ocular lens organelle degradation. Exp Eye Res. 116, 141-150 (2013).
- De Maria, A., Bassnett, S. DNase IIbeta distribution and activity in the mouse lens. Invest Ophthalmol Vis Sci. 48 (12), 5638-5646 (2007).
- He, S., et al. Chromatin remodeling enzyme Brg1 is required for mouse lens fiber cell terminal differentiation and its denucleation. Epigenetics Chromatin. 3 (1), 21(2010).
- Cui, X., et al. HSF4 regulates DLAD expression and promotes lens de nucleation. Biochim Biophys Acta. 1832 (8), 1167-1172 (2013).
- Nakahara, M., et al. Degradation of nuclear DNA by DNase II like acid DNase in cortical fiber cells of mouse eye lens. FEBS J. 274 (12), 3055-3064 (2007).
- Nishimoto, S., et al. Nuclear cataract caused by a lack of DNA degradation in the mouse eye lens. Nature. 424 (6952), 1071-1074 (2003).
- Chaffee, B. R., et al. Nuclear removal during terminal lens fiber cell differentiation requires CDK1 activity: appropriating mitosis related nuclear disassembly. Development. 141 (17), 3388-3398 (2014).
- Lyu, L., et al. Unfolded protein response associated stabilization of p27(Cdkn1b) interferes with lens fiber cell denucleation, leading to cataract. FASEB J. 30 (3), 1087-1095 (2016).
- Gao, M., et al. HSF4 regulates lens fiber cell differentiation by activating p53 and its downstream regulators. Cell Death Dis. 8 (10), e3082(2017).
- Fujimoto, M., et al. HSF4 is required for normal cell growth and differentiation during mouse lens development. EMBO J. 23 (21), 4297-4306 (2004).
- Min, J. N., Zhang, Y., Moskophidis, D., Mivechi, N. F. Unique contribution of heat shock transcription factor 4 in ocular lens development and fiber cell differentiation. Genesis. 40 (4), 205-217 (2004).
- Morishita, H., et al. Organelle degradation in the lens by PLAAT phospholipases. Nature. 592 (7855), 634-638 (2021).
- Capetanaki, Y., Smith, S., Heath, J. P. Overexpression of the vimentin gene in transgenic mice inhibits normal lens cell differentiation. J Cell Biol. 109 (4 Pt 1), 1653-1664 (1989).
- Hamai, Y., Kuwabara, T. Early cytologic changes of Fraser cataract. An electron microscopic study. Invest Ophthalmol. 14 (7), 517-527 (1975).
- Muggleton Harris, A. L., Festing, M. F., Hall, M. A gene location for the inheritance of the cataract Fraser (CatFr) mouse congenital cataract. Genet Res. 49 (3), 235-238 (1987).
- Hamai, Y., Fukui, H. N., Kuwabara, T. Morphology of hereditary mouse cataract. Exp Eye Res. 18 (6), 537-546 (1974).
- Takehana, M. Hereditary cataract of the Nakano mouse. Exp Eye Res. 50 (6), 671-676 (1990).
- Uga, S., Kador, P. F., Kuwabara, T. Cytological study of Philly mouse cataract. Exp Eye Res. 30 (1), 79-92 (1980).
- Nakamura, M., Russell, P., Carper, D. A., Inana, G., Kinoshita, J. H. Alteration of a developmentally regulated, heat stable polypeptide in the lens of the Philly mouse. Implications for cataract formation. J Biol Chem. 263 (35), 19218-19221 (1988).
- Wang, K., et al. GammaD crystallin associated protein aggregation and lens fiber cell denucleation. Invest Ophthalmol Vis Sci. 48 (8), 3719-3728 (2007).
- Cavalheiro, G. R., et al. N myc regulates growth and fiber cell differentiation in lens development. Dev Biol. 429 (1), 105-117 (2017).
- Khillan, J. S., et al. Defects in lens fiber differentiation are linked to c mos overexpression in transgenic mice. Genes Dev. 1 (10), 1327-1335 (1987).
- Lachke, S. A. RNA binding proteins and post transcriptional regulation in lens biology and cataract: Mediating spatiotemporal expression of key factors that control the cell cycle, transcription, cytoskeleton and transparency. Exp Eye Res. 214, 108889(2022).
- Lachke, S. A., et al. Mutations in the RNA granule component TDRD7 cause cataract and glaucoma. Science. 331 (6024), 1571-1576 (2011).
- Dash, S., Dang, C. A., Beebe, D. C., Lachke, S. A. Deficiency of the RNA binding protein caprin2 causes lens defects and features of Peters anomaly. Dev Dyn. 244 (10), 1313-1327 (2015).
- Dash, S., et al. The master transcription factor SOX2, mutated in anophthalmia/microphthalmia, is post transcriptionally regulated by the conserved RNA binding protein RBM24 in vertebrate eye development. Hum Mol Genet. 29 (4), 591-604 (2020).
- Siddam, A. D., et al. The RNA binding protein Celf1 post transcriptionally regulates p27Kip1 and Dnase2b to control fiber cell nuclear degradation in lens development. PLoS Genet. 14 (3), e1007278(2018).
- Siddam, A. D., et al. High Throughput Transcriptomics of Celf1 Conditional Knockout Lens Identifies Downstream Networks Linked to Cataract Pathology. Cells. 12 (7), (2023).
- Aryal, S., et al. The cataract linked RNA binding protein Celf1 post transcriptionally controls the spatiotemporal expression of the key homeodomain transcription factors Pax6 and Prox1 in lens development. Hum Genet. 139 (12), 1541-1554 (2020).
- Takemoto, L., Sorensen, C. M. Protein protein interactions and lens transparency. Exp Eye Res. 87 (6), 496-501 (2008).
- Oyster, C. W. The human eye : structure and function. , Sinauer Associates, Inc.. (1999).
- Flaugh, S. L., Kosinski Collins, M. S., King, J. Contributions of hydrophobic domain interface interactions to the folding and stability of human gammaD crystallin. Protein Sci. 14 (3), 569-581 (2005).
- Papanikolopoulou, K., et al. Formation of amyloid fibrils in vitro by human gammaD crystallin and its isolated domains. Mol Vis. 14, 81-89 (2008).
- Graw, J. Genetics of crystallins: cataract and beyond. Exp Eye Res. 88 (2), 173-189 (2009).
- Kosinski Collins, M. S., King, J. In vitro unfolding, refolding, and polymerization of human gammaD crystallin, a protein involved in cataract formation. Protein Sci. 12 (3), 480-490 (2003).
- Horwitz, J., Bova, M. P., Ding, L. L., Haley, D. A., Stewart, P. L. Lens alpha crystallin: function and structure. Eye (Lond). 13 (Pt 3b), 403-408 (1999).
- Hejtmancik, J. F., et al. Progress in Molecular Biology and Translational Science. Hejtmancik, J. F., Nickerson, J. M. 134, Academic Press. 169-201 (2015).
- Bloemendal, H., et al. Ageing and vision: structure, stability and function of lens crystallins. Prog Biophys Mol Biol. 86 (3), 407-485 (2004).
- Benedek, G. B. Theory of transparency of the eye. Appl Opt. 10 (3), 459-473 (1971).
- Delaye, M., Tardieu, A. Short range order of crystallin proteins accounts for eye lens transparency. Nature. 302 (5907), 415-417 (1983).
- Bassnett, S., Costello, M. J. The cause and consequence of fiber cell compaction in the vertebrate lens. Exp Eye Res. 156, 50-57 (2017).
- Pierscionek, B. K., Regini, J. W. The gradient index lens of the eye: an opto biological synchrony. Prog Retin Eye Res. 31 (4), 332-349 (2012).
- Cheng, C., et al. Age-related changes in eye lens biomechanics, morphology, refractive index and transparency. Aging (Albany NY). 11 (24), 12497-12531 (2019).
- Cheng, C., et al. EphA2 Affects Development of the Eye Lens Nucleus and the Gradient of Refractive Index. Invest Ophthalmol Vis Sci. 63 (1), 2(2022).
- Flowers, G. M., et al. Eph ephrin signaling affects lens growth and shape, nucleus size, and gradient refractive index in adult mice. Frontiers in Ophthalmology. 5, (2025).
- Kozlowski, T. M., Kroger, R. H. H. Constant lens fiber cell thickness in fish suggests crystallin transport to denucleated cells. Vision Res. 162, 29-34 (2019).
- Shestopalov, V. I., Bassnett, S. Expression of autofluorescent proteins reveals a novel protein permeable pathway between cells in the lens core. J Cell Sci. 113 (Pt 11), 1913-1921 (2000).
- Shestopalov, V. I., Bassnett, S. Development of a macromolecular diffusion pathway in the lens. J Cell Sci. 116 (Pt 20), 4191-4199 (2003).
- Dunia, I., et al. Structural and immunocytochemical alterations in eye lens fiber cells from Cx46 and Cx50 knockout mice. Eur J Cell Biol. 85 (8), 729-752 (2006).
- Blankenship, T., Bradshaw, L., Shibata, B., Fitzgerald, P. Structural specializations emerging late in mouse lens fiber cell differentiation. Invest Ophthalmol Vis Sci. 48 (7), 3269-3276 (2007).
- Lo, W. K., Reese, T. S. Multiple structural types of gap junctions in mouse lens. J Cell Sci. 106 (Pt 1), 227-235 (1993).
- Baldo, G. J., et al. Gap junctional coupling in lenses from alpha(8) connexin knockout mice. J Gen Physiol. 118 (5), 447-456 (2001).
- Baldo, G. J., Mathias, R. T. Spatial variations in membrane properties in the intact rat lens. Biophys J. 63 (2), 518-529 (1992).
- Duncan, G., Patmore, L., Pynsent, P. B. Impedance of the amphibian lens. J Physiol. 312, 17-27 (1981).
- Martinez Wittinghan, F. J., et al. Lens gap junctional coupling is modulated by connexin identity and the locus of gene expression. Invest Ophthalmol Vis Sci. 45 (10), 3629-3637 (2004).
- Cheng, C., et al. Gap junction communication influences intercellular protein distribution in the lens. Exp Eye Res. 86 (6), 966-974 (2008).
- Bloemendal, H. The vertebrate eye lens. Science. 197 (4299), 127-138 (1977).
- van der Ouderaa, F. J., de Jong, W. W., Bloemendal, H. The amino acid sequence of the alphaA2 chain of bovine alpha crystallin. Eur J Biochem. 39 (1), 207-222 (1973).
- Bloemendal, H., de Jong, W. W. Lens proteins and their genes. Prog Nucleic Acid Res Mol Biol. 41, 259-281 (1991).
- Kato, K., et al. Immunoreactive alpha A crystallin in rat non lenticular tissues detected with a sensitive immunoassay method. Biochim Biophys Acta. 1080 (2), 173-180 (1991).
- Srinivasan, A. N., Nagineni, C. N., Bhat, S. P. alpha A crystallin is expressed in non ocular tissues. J Biol Chem. 267 (32), 23337-23341 (1992).
- Nath, M., Fort, P. E. alphaA Crystallin Mediated Neuroprotection in the Retinal Neurons Is Independent of Protein Kinase B. Front Neurosci. 16, 912757(2022).
- Skeie, J. M., Mahajan, V. B. Proteomic interactions in the mouse vitreous retina complex. PLoS One. 8 (11), e82140(2013).
- Ruebsam, A., et al. A specific phosphorylation regulates the protective role of alphaA crystallin in diabetes. JCI Insight. 3 (4), (2018).
- Vermorken, A. J., Hilderink, J. M., van de Ven, W. J., Bloemendal, H. Lens differentiation. Crystallin synthesis in isolated epithelia from calf lenses. J Cell Biol. 76 (1), 175-183 (1978).
- Boyle, D. L., Takemoto, L., Brady, J. P., Wawrousek, E. F. Morphological characterization of the Alpha A and Alpha B crystallin double knockout mouse lens. BMC Ophthalmol. 3, 3(2003).
- Horwitz, J. Alpha crystallin. Exp Eye Res. 76 (2), 145-153 (2003).
- Raju, M., Santhoshkumar, P., Krishna Sharma, K. Alpha crystallin derived peptides as therapeutic chaperones. Biochim Biophys Acta. 1860 (1 Pt B), 246-251 (2016).
- Cheng, C., et al. Altered chaperone like activity of alpha crystallins promotes cataractogenesis. J Biol Chem. 285 (52), 41187-41193 (2010).
- Aravind, P., et al. The betagamma crystallin superfamily contains a universal motif for binding calcium. Biochemistry. 48 (51), 12180-12190 (2009).
- Srivastava, S. S., Mishra, A., Krishnan, B., Sharma, Y. Ca2+ binding motif of betagamma crystallins. J Biol Chem. 289 (16), 10958-10966 (2014).
- Vanmarle, J., Jonges, R., Vrensen, G. F., Dewolf, A. Calcium and its localization in human lens fibres: an electron tomographic study. Exp Eye Res. 65 (1), 83-88 (1997).
- Jobby, M. K., Sharma, Y. Calcium binding to lens betaB2 and betaA3 crystallins suggests that all beta crystallins are calcium binding proteins. FEBS J. 274 (16), 4135-4147 (2007).
- Bergman, M. R., Deravi, L. F. Manipulating polydispersity of lens beta crystallins using divalent cations demonstrates evidence of calcium regulation. Proc Natl Acad Sci U S A. 119 (48), e2212051119(2022).
- Cheng, C., Nowak, R. B., Fowler, V. M. The lens actin filament cytoskeleton: Diverse structures for complex functions. Exp Eye Res. 156, 58-71 (2017).
- Quinlan, R. A., Clark, J. I. Insights into the biochemical and biophysical mechanisms mediating the longevity of the transparent optics of the eye lens. J Biol Chem. 298 (11), 102537(2022).
- Song, S., et al. Functions of the intermediate filament cytoskeleton in the eye lens. J Clin Invest. 119 (7), 1837-1848 (2009).
- FitzGerald, P. G. Lens intermediate filaments. Exp Eye Res. 88 (2), 165-172 (2009).
- Logan, C. M., Menko, A. S. Microtubules: Evolving roles and critical cellular interactions. Exp Biol Med (Maywood). 244 (15), 1240-1254 (2019).
- More, M. I., Kirsch, F. P., Rathjen, F. G. Targeted ablation of NrCAM or ankyrin B results in disorganized lens fibers leading to cataract formation. J Cell Biol. 154 (1), 187-196 (2001).
- Lin, Q., et al. Genetic variations and polymorphisms in the ezrin gene are associated with age-related cataract. Mol Vis. 19, 1572-1579 (2013).
- Hao, J., Kunishima, S., Guo, X., Hu, R., Gao, W. A large family with MYH9 disorder caused by E1841K mutation suffering from serious kidney and hearing impairment and cataracts. Ann Hematol. 91 (7), 1147-1148 (2012).
- De Rocco, D., et al. MYH9 related disease: five novel mutations expanding the spectrum of causative mutations and confirming genotype/phenotype correlations. Eur J Med Genet. 56 (1), 7-12 (2013).
- Economou, M., et al. MYH9 related disorders: report on a patient of Greek origin presenting with macroscopic hematuria and presenile cataract, caused by an R1165C mutation. J Pediatr Hematol Oncol. 34 (6), 412-415 (2012).
- Saposnik, B., et al. Mutation spectrum and genotype phenotype correlations in a large French cohort of MYH9 Related Disorders. Mol Genet Genomic Med. 2 (4), 297-312 (2014).
- Cheng, C., et al. Tropomyosin 3.5 protects the F-actin networks required for tissue biomechanical properties. J Cell Sci. 131 (23), (2018).
- Cheng, C., et al. Tropomodulin 1 Regulation oF-actin Is Required for the Formation of Large Paddle Protrusions Between Mature Lens Fiber Cells. Invest Ophthalmol Vis Sci. 57 (10), 4084-4099 (2016).
- Maddala, R., Walters, M., Brophy, P. J., Bennett, V., Rao, P. V. Ankyrin B directs membrane tethering of periaxin and is required for maintenance of lens fiber cell hexagonal shape and mechanics. Am J Physiol Cell Physiol. 310 (2), C115-C126 (2016).
- Won, G. J., Fudge, D. S., Choh, V. The effects of actomyosin disruptors on the mechanical integrity of the avian crystalline lens. Mol Vis. 21, 98-109 (2015).
- Kasper, M., Moll, R., Stosiek, P., Karsten, U. Patterns of cytokeratin and vimentin expression in the human eye. Histochemistry. 89 (4), 369-377 (1988).
- Kasper, M., Viebahn, C. Cytokeratin expression and early lens development. Anat Embryol (Berl). 186 (3), 285-290 (1992).
- Ellis, M., Alousi, S., Lawniczak, J., Maisel, H., Welsh, M. Studies on lens vimentin. Exp Eye Res. 38 (2), 195-202 (1984).
- Ramaekers, F. C., Dunia, I., Dodemont, H. J., Benedetti, E. L., Bloemendal, H. Lenticular intermediate sized filaments: biosynthesis and interaction with plasma membrane. Proc Natl Acad Sci U S A. 79 (10), 3208-3212 (1982).
- Ramaekers, F. C., et al. Identification of the cytoskeletal proteins in lens forming cells, a special epitheloid cell type. Exp Cell Res. 127 (2), 309-327 (1980).
- FitzGerald, P. G. Immunochemical characterization of a Mr 115 lens fiber cell specific extrinsic membrane protein. Curr Eye Res. 7 (12), 1243-1253 (1988).
- Ireland, M. E., et al. Up regulation of novel intermediate filament proteins in primary fiber cells: an indicator of all vertebrate lens fiber differentiation? Anat Rec. 258 (1), 25-33 (2000).
- Quinlan, R. A., Stewart, M. Molecular interactions in intermediate filaments. Bioessays. 13 (11), 597-600 (1991).
- Goulielmos, G., et al. Filensin and phakinin form a novel type of beaded intermediate filaments and coassemble de novo in cultured cells. J Cell Biol. 132 (4), 643-655 (1996).
- Georgatos, S. D., Gounari, F., Goulielmos, G., Aebi, U. To bead or not to bead? Lens specific intermediate filaments revisited. J Cell Sci. 110 (Pt 21), 2629-2634 (1997).
- Ireland, M., Maisel, H. A cytoskeletal protein unique to lens fiber cell differentiation. Exp Eye Res. 38 (6), 637-645 (1984).
- Bloemendal, H., et al. Interaction of crystallins with the cytoskeletal plasma membrane complex of the bovine lens. Ciba Found Symp. 106, 177-190 (1984).
- Carter, J. M., Hutcheson, A. M., Quinlan, R. A. In vitro studies on the assembly properties of the lens proteins CP49, CP115: coassembly with alpha crystallin but not with vimentin. Exp Eye Res. 60 (2), 181-192 (1995).
- Chaves, J. M., Gupta, R., Srivastava, K., Srivastava, O. Human alpha A crystallin missing N terminal domain poorly complexes with filensin and phakinin. Biochem Biophys Res Commun. 494 (1-2), 402-408 (2017).
- FitzGerald, P. G., Graham, D. Ultrastructural localization of alpha A crystallin to the bovine lens fiber cell cytoskeleton. Curr Eye Res. 10 (5), 417-436 (1991).
- Sandilands, A., et al. Bfsp2 mutation found in mouse 129 strains causes the loss of CP49' and induces vimentin dependent changes in the lens fibre cell cytoskeleton. Exp Eye Res. 78 (4), 875-889 (2004).
- Sandilands, A., et al. Knockout of the intermediate filament protein CP49 destabilises the lens fibre cell cytoskeleton and decreases lens optical quality, but does not induce cataract. Exp Eye Res. 76 (3), 385-391 (2003).
- Alizadeh, A., et al. Targeted deletion of the lens fiber cell specific intermediate filament protein filensin. Invest Ophthalmol Vis Sci. 44 (12), 5252-5258 (2003).
- Alizadeh, A., et al. Targeted genomic deletion of the lens specific intermediate filament protein CP49. Invest Ophthalmol Vis Sci. 43 (12), 3722-3727 (2002).
- Perng, M. D., Zhang, Q., Quinlan, R. A. Insights into the beaded filament of the eye lens. Exp Cell Res. 313 (10), 2180-2188 (2007).
- Muller, M., et al. Dominant cataract formation in association with a vimentin assembly disrupting mutation. Hum Mol Genet. 18 (6), 1052-1057 (2009).
- Bornheim, R., et al. A dominant vimentin mutant upregulates Hsp70 and the activity of the ubiquitin proteasome system, and causes posterior cataracts in transgenic mice. J Cell Sci. 121 (Pt 22), 3737-3746 (2008).
- Jakobs, P. M., et al. Autosomal dominant congenital cataract associated with a deletion mutation in the human beaded filament protein gene BFSP2. Am J Hum Genet. 66 (4), 1432-1436 (2000).
- Conley, Y. P., et al. A juvenile onset, progressive cataract locus on chromosome 3q21 q22 is associated with a missense mutation in the beaded filament structural protein 2. Am J Hum Genet. 66 (4), 1426-1431 (2000).
- Zhang, Q., et al. Clinical description and genome wide linkage study of Y sutural cataract and myopia in a Chinese family. Mol Vis. 10, 890-900 (2004).
- Cui, X., et al. The E233del mutation in BFSP2 causes a progressive autosomal dominant congenital cataract in a Chinese family. Mol Vis. 13, 2023-2029 (2007).
- Ma, X., et al. A new mutation in BFSP2 (G1091A) causes autosomal dominant congenital lamellar cataracts. Mol Vis. 14, 1906-1911 (2008).
- Ramachandran, R. D., Perumalsamy, V., Hejtmancik, J. F. Autosomal recessive juvenile onset cataract associated with mutation in BFSP1. Hum Genet. 121 (3-4), 475-482 (2007).
- Logan, C. M., Bowen, C. J., Menko, A. S. Functional role for stable microtubules in lens fiber cell elongation. Exp Cell Res. 362 (2), 477-488 (2018).
- Basu, S., Rajakaruna, S., Reyes, B., Van Bockstaele, E., Menko, A. S. Suppression of MAPK/JNK MTORC1 signaling leads to premature loss of organelles and nuclei by autophagy during terminal differentiation of lens fiber cells. Autophagy. 10 (7), 1193-1211 (2014).
- Pontoriero, G. F., et al. Co operative roles for E-cadherin and N-cadherin during lens vesicle separation and lens epithelial cell survival. Dev Biol. 326 (2), 403-417 (2009).
- Leonard, M., Zhang, L., Bleaken, B. M., Menko, A. S. Distinct roles for N-cadherin linked c Src and fyn kinases in lens development. Dev Dyn. 242 (5), 469-484 (2013).
- Leonard, M., et al. Modulation of N-cadherin junctions and their role as epicenters of differentiation specific actin regulation in the developing lens. Dev Biol. 349 (2), 363-377 (2011).
- Maddala, R., Nagendran, T., Lang, R. A., Morozov, A., Rao, P. V. Rap1 GTPase is required for mouse lens epithelial maintenance and morphogenesis. Dev Biol. 406 (1), 74-91 (2015).
- Wigle, J. T., Chowdhury, K., Gruss, P., Oliver, G. Prox1 function is crucial for mouse lens fibre elongation. Nat Genet. 21 (3), 318-322 (1999).
- Xu, L., Overbeek, P. A., Reneker, L. W. Systematic analysis of E , N and P cadherin expression in mouse eye development. Exp Eye Res. 74 (6), 753-760 (2002).
- Logan, C. M., et al. N-cadherin regulates signaling mechanisms required for lens fiber cell elongation and lens morphogenesis. Dev Biol. 428 (1), 118-134 (2017).
- Cooper, M. A., et al. Loss of ephrin A5 function disrupts lens fiber cell packing and leads to cataract. Proc Natl Acad Sci U S A. 105 (43), 16620-16625 (2008).
- Son, A. I., et al. Further analysis of the lens of ephrin A5 / mice: development of postnatal defects. Mol Vis. 19, 254-266 (2013).
- Biswas, S., Son, A. I., Yu, Q., Zhou, R., Lo, W. K. Breakdown of interlocking domains may contribute to formation of membranous globules and lens opacity in ephrin A5( / ) mice. Exp Eye Res. 145, 130-139 (2016).
- Maher, G. J., Black, G. C., Manson, F. D. Focus on molecules: lens intrinsic membrane protein (LIM2/MP20). Exp Eye Res. 103, 115-116 (2012).
- Walker, J., Menko, A. S. Integrins in lens development and disease. Exp Eye Res. 88 (2), 216-225 (2009).
- Shi, Y., et al. Further analysis of the lens phenotype in Lim2 deficient mice. Invest Ophthalmol Vis Sci. 52 (10), 7332-7339 (2011).
- Mulders, J. W., et al. MP17, a fiber specific intrinsic membrane protein from mammalian eye lens. Curr Eye Res. 7 (2), 207-219 (1988).
- Voorter, C. E., et al. Distribution of MP17 in isolated lens fibre membranes. Curr Eye Res. 8 (7), 697-706 (1989).
- Steele, E. C. Jr, et al. Identification of a mutation in the MP19 gene, Lim2, in the cataractous mouse mutant To3. Mol Vis. 3, 5(1997).
- Irum, B., et al. Mutation in LIM2 Is Responsible for Autosomal Recessive Congenital Cataracts. PLoS One. 11 (11), e0162620(2016).
- Wang, X., et al. Elongated axial length and myopia related fundus changes associated with the Arg130Cys mutation in the LIM2 gene in four Chinese families with congenital cataracts. Ann Transl Med. 9 (3), 235(2021).
- Berry, V., et al. A recurrent variant in LIM2 causes an isolated congenital sutural/lamellar cataract in a Japanese family. Ophthalmic Genet. 43 (5), 622-626 (2022).
- Pei, R., et al. A novel mutation of LIM2 causes autosomal dominant membranous cataract in a Chinese family. Int J Ophthalmol. 13 (10), 1512-1520 (2020).
- Ponnam, S. P., Ramesha, K., Tejwani, S., Matalia, J., Kannabiran, C. A missense mutation in LIM2 causes autosomal recessive congenital cataract. Mol Vis. 14, 1204-1208 (2008).
- Pras, E., et al. A missense mutation in the LIM2 gene is associated with autosomal recessive presenile cataract in an inbred Iraqi Jewish family. Am J Hum Genet. 70 (5), 1363-1367 (2002).
- Goyal, S., Singh, R., Singh, J. R., Vanita, V. Novel and known variants in GJA3 and LIM2 in congenital cataract families from North India. BMC Genomics. 25 (1), 31(2024).
- Puk, O., Ahmad, N., Wagner, S., de Angelis, M. H., Graw, J. Microphakia and congenital cataract formation in a novel Lim2(C51R) mutant mouse. Mol Vis. 17, 1164-1171 (2011).
- Dahm, R., Bramke, S., Dawczynski, J., Nagaraj, R. H., Kasper, M. Developmental aspects of galectin 3 expression in the lens. Histochem Cell Biol. 119 (3), 219-226 (2003).
- Gonen, T., Donaldson, P., Kistler, J. Galectin 3 is associated with the plasma membrane of lens fiber cells. Invest Ophthalmol Vis Sci. 41 (1), 199-203 (2000).
- Gonen, T., Grey, A. C., Jacobs, M. D., Donaldson, P. J., Kistler, J. MP20, the second most abundant lens membrane protein and member of the tetraspanin superfamily, joins the list of ligands of galectin 3. BMC Cell Biol. 2, 17(2001).
- Barton, K. A., Hsu, C. D., Petrash, J. M. Interactions between small heat shock protein alpha crystallin and galectin related interfiber protein (GRIFIN) in the ocular lens. Biochemistry. 48 (18), 3956-3966 (2009).
- Garcia Caballero, G., et al. Chicken lens development: complete signature of expression of galectins during embryogenesis and evidence for their complex formation with alpha , beta , delta , and tau crystallins, N CAM, and N-cadherin obtained by affinity chromatography. Cell Tissue Res. 379 (1), 13-35 (2020).
- Garcia Caballero, G., et al. Chicken GRIFIN: binding partners, developmental course of localization and activation of its lens specific gene expression by L Maf/Pax6. Cell Tissue Res. 375 (3), 665-683 (2019).
- Ogden, A. T., et al. GRIFIN, a novel lens specific protein related to the galectin family. J Biol Chem. 273 (44), 28889-28896 (1998).
- Menko, A. S., Philip, N. J. Beta 1 integrins in epithelial tissues: a unique distribution in the lens. Exp Cell Res. 218 (2), 516-521 (1995).
- Menko, S., Philp, N., Veneziale, B., Walker, J. Integrins and development: how might these receptors regulate differentiation of the lens. Ann N Y Acad Sci. 842, 36-41 (1998).
- Walker, J. L., Menko, A. S. alpha6 Integrin is regulated with lens cell differentiation by linkage to the cytoskeleton and isoform switching. Dev Biol. 210 (2), 497-511 (1999).
- Walker, J. L., Zhang, L., Zhou, J., Woolkalis, M. J., Menko, A. S. Role for alpha 6 integrin during lens development: Evidence for signaling through IGF 1R and ERK. Dev Dyn. 223 (2), 273-284 (2002).
- Wederell, E. D., et al. Laminin binding integrins in rat lens morphogenesis and their regulation during fibre differentiation. Exp Eye Res. 81 (3), 326-339 (2005).
- Barbour, W., et al. Expression patterns of beta1 related alpha integrin subunits in murine lens during embryonic development and wound healing. Curr Eye Res. 29 (1), 1-10 (2004).
- Wu, J. E., Santoro, S. A. Complex patterns of expression suggest extensive roles for the alpha 2 beta 1 integrin in murine development. Dev Dyn. 199 (4), 292-314 (1994).
- Duncan, M. K., Kozmik, Z., Cveklova, K., Piatigorsky, J., Cvekl, A. Overexpression of PAX6(5a) in lens fiber cells results in cataract and upregulation of (alpha)5(beta)1 integrin expression. J Cell Sci. 113 (Pt 18), 3173-3185 (2000).
- Bassuk, J. A., et al. Disruption of the Sparc locus in mice alters the differentiation of lenticular epithelial cells and leads to cataract formation. Exp Eye Res. 68 (3), 321-331 (1999).
- Gilmour, D. T., et al. Mice deficient for the secreted glycoprotein SPARC/osteonectin/BM40 develop normally but show severe age onset cataract formation and disruption of the lens. EMBO J. 17 (7), 1860-1870 (1998).
- Kantorow, M., Horwitz, J., Carper, D. Up regulation of osteonectin/SPARC in age-related cataractous human lens epithelia. Mol Vis. 4, 17(1998).
- Emerson, R. O., Sage, E. H., Ghosh, J. G., Clark, J. I. Chaperone like activity revealed in the matricellular protein SPARC. J Cell Biochem. 98 (4), 701-705 (2006).
- Weaver, M. S., Sage, E. H., Yan, Q. Absence of SPARC in lens epithelial cells results in altered adhesion and extracellular matrix production in vitro. J Cell Biochem. 97 (2), 423-432 (2006).
- Weaver, M. S., Workman, G., Sage, E. H. The copper binding domain of SPARC mediates cell survival in vitro via interaction with integrin beta1 and activation of integrin linked kinase. J Biol Chem. 283 (33), 22826-22837 (2008).
- Yan, Q., Perdue, N., Blake, D., Sage, E. H. Absence of SPARC in murine lens epithelium leads to increased deposition of laminin 1 in lens capsule. Invest Ophthalmol Vis Sci. 46 (12), 4652-4660 (2005).
- Greiling, T. M., Stone, B., Clark, J. I. Absence of SPARC leads to impaired lens circulation. Exp Eye Res. 89 (3), 416-425 (2009).
- Giannone, A. A., Li, L., Sellitto, C., White, T. W. Physiological Mechanisms Regulating Lens Transport. Front Physiol. 12, 818649(2021).
- Donaldson, P. J., Chen, Y., Petrova, R. S., Grey, A. C., Lim, J. C. Regulation of lens water content: Effects on the physiological optics of the lens. Prog Retin Eye Res. 95, 101152(2023).
- Donaldson, P. J., Grey, A. C., Maceo Heilman, B., Lim, J. C., Vaghefi, E. The physiological optics of the lens. Prog Retin Eye Res. 56, e1-e24 (2017).
- Mathias, R. T., Kistler, J., Donaldson, P. The lens circulation. J Membr Biol. 216 (1), 1-16 (2007).
- Robinson, K. R., Patterson, J. W. Localization of steady currents in the lens. Curr Eye Res. 2 (12), 843-847 (1982).
- Mathias, R. T., Rae, J. L., Baldo, G. J. Physiological properties of the normal lens. Physiol Rev. 77 (1), 21-50 (1997).
- Gao, J., Sun, X., Yatsula, V., Wymore, R. S., Mathias, R. T. Isoform specific function and distribution of Na/K pumps in the frog lens epithelium. J Membr Biol. 178 (2), 89-101 (2000).
- Alvarez, L. J., Candia, O. A., Grillone, L. R. Na+ K+ ATPase distribution in frog and bovine lenses. Curr Eye Res. 4 (2), 143-152 (1985).
- Delamere, N. A., Dean, W. L. Distribution of lens sodium potassium adenosine triphosphatase. Invest Ophthalmol Vis Sci. 34 (7), 2159-2163 (1993).
- Paterson, C. A. Distribution and movement of ions in the ocular lens. Doc Ophthalmol. 31 (1), 1-28 (1972).
- Donaldson, P. J., Petrova, R. S., Nair, N., Chen, Y., Schey, K. L. Regulation of water flow in the ocular lens: new roles for aquaporins. J Physiol. 602 (13), 3041-3056 (2024).
- Goodenough, D. A. The crystalline lens. A system networked by gap junctional intercellular communication. Semin Cell Biol. 3 (1), 49-58 (1992).
- Mathias, R. T., White, T. W., Gong, X. Lens gap junctions in growth, differentiation, and homeostasis. Physiol Rev. 90 (1), 179-206 (2010).
- Beyer, E. C., Kistler, J., Paul, D. L., Goodenough, D. A. Antisera directed against connexin43 peptides react with a 43 kD protein localized to gap junctions in myocardium and other tissues. J Cell Biol. 108 (2), 595-605 (1989).
- Gao, Y., Spray, D. C. Structural changes in lenses of mice lacking the gap junction protein connexin43. Invest Ophthalmol Vis Sci. 39 (7), 1198-1209 (1998).
- Rong, P., et al. Disruption of Gja8 (alpha8 connexin) in mice leads to microphthalmia associated with retardation of lens growth and lens fiber maturation. Development. 129 (1), 167-174 (2002).
- Puk, O., et al. Mutation in a novel connexin like gene (Gjf1) in the mouse affects early lens development and causes a variable small eye phenotype. Invest Ophthalmol Vis Sci. 49 (4), 1525-1532 (2008).
- Sonntag, S., et al. Mouse lens connexin23 (Gje1) does not form functional gap junction channels but causes enhanced ATP release from HeLa cells. Eur J Cell Biol. 88 (2), 65-77 (2009).
- Bassnett, S., Wilmarth, P. A., David, L. L. The membrane proteome of the mouse lens fiber cell. Mol Vis. 15, 2448-2463 (2009).
- Wang, Z., Han, J., David, L. L., Schey, K. L. Proteomics and phosphoproteomics analysis of human lens fiber cell membranes. Invest Ophthalmol Vis Sci. 54 (2), 1135-1143 (2013).
- Berthoud, V. M., et al. Connexin23 deletion does not affect lens transparency. Exp Eye Res. 146, 283-288 (2016).
- Fleishman, S. J., Unger, V. M., Yeager, M., Ben Tal, N. A Calpha model for the transmembrane alpha helices of gap junction intercellular channels. Mol Cell. 15 (6), 879-888 (2004).
- Unger, V. M., Kumar, N. M., Gilula, N. B., Yeager, M. Three dimensional structure of a recombinant gap junction membrane channel. Science. 283 (5405), 1176-1180 (1999).
- Hu, Z., Riquelme, M. A., Gu, S., Jiang, J. X. Regulation of Connexin Gap Junctions and Hemichannels by Calcium and Calcium Binding Protein Calmodulin. Int J Mol Sci. 21 (21), (2020).
- Quan, Y., Du, Y., Tong, Y., Gu, S., Jiang, J. X. Connexin Gap Junctions and Hemichannels in Modulating Lens Redox Homeostasis and Oxidative Stress in Cataractogenesis. Antioxidants (Basel). 10 (9), (2021).
- Ebihara, L., Korzyukov, Y., Kothari, S., Tong, J. J. Cx46 hemichannels contribute to the sodium leak conductance in lens fiber cells. Am J Physiol Cell Physiol. 306 (5), C506-C513 (2014).
- Liu, J., et al. Mechanosensitive collaboration between integrins and connexins allows nutrient and antioxidant transport into the lens. J Cell Biol. 219 (12), (2020).
- Tong, Y., et al. Mechano activated connexin hemichannels and glutathione transport protect lens fiber cells against oxidative insults. Redox Biol. 73, 103216(2024).
- Wang, G., Quan, Y., Ma, B., Gu, S., Jiang, J. X. Mechano activated connexin hemichannels mediate intercellular glutathione transport and support lens redox homeostasis. Redox Biol. 85, 103767(2025).
- Shi, W., Riquelme, M. A., Gu, S., Jiang, J. X. Connexin hemichannels mediate glutathione transport and protect lens fiber cells from oxidative stress. J Cell Sci. 131 (6), (2018).
- Ramachandran, S., Xie, L. H., John, S. A., Subramaniam, S., Lal, R. A novel role for connexin hemichannel in oxidative stress and smoking induced cell injury. PLoS One. 2 (8), e712(2007).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Connexin hemichannels regulate redox potential via metabolite exchange and protect lens against cellular oxidative damage. Redox Biol. 46, 102102(2021).
- Quan, Y., Du, Y., Wu, C., Gu, S., Jiang, J. X. Data on Connexin 43 hemichannels regulation of cellular redox in lens. Data Brief. 39, 107572(2021).
- Ren, Q., et al. Cataract causing mutation of human connexin 46 impairs gap junction, but increases hemichannel function and cell death. PLoS One. 8 (9), e74732(2013).
- Siller Jackson, A. J., et al. Adaptation of connexin 43 hemichannel prostaglandin release to mechanical loading. J Biol Chem. 283 (39), 26374-26382 (2008).
- Cheng, C., et al. Lens ion homeostasis relies on the assembly and/or stability of large connexin 46 gap junction plaques on the broad sides of differentiating fiber cells. Am J Physiol Cell Physiol. 308 (10), C835-C847 (2015).
- Gong, X., et al. Disruption of alpha3 connexin gene leads to proteolysis and cataractogenesis in mice. Cell. 91 (6), 833-843 (1997).
- Gong, X., Baldo, G. J., Kumar, N. M., Gilula, N. B., Mathias, R. T. Gap junctional coupling in lenses lacking alpha3 connexin. Proc Natl Acad Sci U S A. 95 (26), 15303-15308 (1998).
- White, T. W., Goodenough, D. A., Paul, D. L. Targeted ablation of connexin50 in mice results in microphthalmia and zonular pulverulent cataracts. J Cell Biol. 143 (3), 815-825 (1998).
- Sellitto, C., Li, L., White, T. W. Connexin50 is essential for normal postnatal lens cell proliferation. Invest Ophthalmol Vis Sci. 45 (9), 3196-3202 (2004).
- White, T. W. Unique and redundant connexin contributions to lens development. Science. 295 (5553), 319-320 (2002).
- Li, L., et al. Connexin mediated cataract prevention in mice. PLoS One. 5 (9), (2010).
- Schey, K. L., et al. Lens Aquaporins in Health and Disease: Location is Everything! Front Physiol. 13, 882550(2022).
- Schey, K. L., Petrova, R. S., Gletten, R. B., Donaldson, P. J. The Role of Aquaporins in Ocular Lens Homeostasis. Int J Mol Sci. 18 (12), (2017).
- Gao, J., et al. Lens intracellular hydrostatic pressure is generated by the circulation of sodium and modulated by gap junction coupling. J Gen Physiol. 137 (6), 507-520 (2011).
- Gao, J., Sun, X., White, T. W., Delamere, N. A., Mathias, R. T. Feedback Regulation of Intracellular Hydrostatic Pressure in Surface Cells of the Lens. Biophys J. 109 (9), 1830-1839 (2015).
- Shahidullah, M., et al. TRPV1 activation stimulates NKCC1 and increases hydrostatic pressure in the mouse lens. Am J Physiol Cell Physiol. 318 (5), C969-C980 (2020).
- Petrova, R. S., et al. Modulation of Membrane Trafficking of AQP5 in the Lens in Response to Changes in Zonular Tension Is Mediated by the Mechanosensitive Channel TRPV1. Int J Mol Sci. 24 (10), (2023).
- Chen, Y., Petrova, R. S., Qiu, C., Donaldson, P. J. Intracellular hydrostatic pressure regulation in the bovine lens: a role in the regulation of lens optics? Am J Physiol Regul Integr Comp Physiol. 322 (3), R263-R279 (2022).
- Donaldson, P. J., Musil, L. S., Mathias, R. T. Point: A critical appraisal of the lens circulation model an experimental paradigm for understanding the maintenance of lens transparency? Invest Ophthalmol Vis Sci. 51 (5), 2303-2306 (2010).
- Merriman Smith, B. R., Krushinsky, A., Kistler, J., Donaldson, P. J. Expression patterns for glucose transporters GLUT1 and GLUT3 in the normal rat lens and in models of diabetic cataract. Invest Ophthalmol Vis Sci. 44 (8), 3458-3466 (2003).
- Merriman Smith, R., Donaldson, P., Kistler, J. Differential expression of facilitative glucose transporters GLUT1 and GLUT3 in the lens. Invest Ophthalmol Vis Sci. 40 (13), 3224-3230 (1999).
- Zahraei, A., et al. Mapping Glucose Uptake, Transport and Metabolism in the Bovine Lens Cortex. Front Physiol. 13, 901407(2022).
- Lim, J. C., Perwick, R. D., Li, B., Donaldson, P. J. Comparison of the expression and spatial localization of glucose transporters in the rat, bovine and human lens. Exp Eye Res. 161, 193-204 (2017).
- Swarup, A., et al. Deletion of GLUT1 in mouse lens epithelium leads to cataract formation. Exp Eye Res. 172, 45-53 (2018).
- Reddy, V. N. Metabolism of glutathione in the lens. Exp Eye Res. 11 (3), 310-328 (1971).
- Truscott, R. J. Age-related nuclear cataract oxidation is the key. Exp Eye Res. 80 (5), 709-725 (2005).
- Kannan, R., Yi, J. R., Zlokovic, B. V., Kaplowitz, N. Molecular characterization of a reduced glutathione transporter in the lens. Invest Ophthalmol Vis Sci. 36 (9), 1785-1792 (1995).
- Mackic, J. B., et al. Transport of circulating reduced glutathione at the basolateral side of the anterior lens epithelium: physiologic importance and manipulations. Exp Eye Res. 62 (1), 29-37 (1996).
- Li, B., Li, L., Donaldson, P. J., Lim, J. C. Dynamic regulation of GSH synthesis and uptake pathways in the rat lens epithelium. Exp Eye Res. 90 (2), 300-307 (2010).
- Lim, J., Li, L., Jacobs, M. D., Kistler, J., Donaldson, P. J. Mapping of glutathione and its precursor amino acids reveals a role for GLYT2 in glycine uptake in the lens core. Invest Ophthalmol Vis Sci. 48 (11), 5142-5151 (2007).
- Li, L., Lim, J., Jacobs, M. D., Kistler, J., Donaldson, P. J. Regional differences in cystine accumulation point to a sutural delivery pathway to the lens core. Invest Ophthalmol Vis Sci. 48 (3), 1253-1260 (2007).
- Rathbun, W. B. Activity of glutathione synthesis enzymes in the rhesus monkey lens related to age: a model for the human lens. Curr Eye Res. 5 (2), 161-166 (1986).
- Sethna, S. S., Holleschau, A. M., Rathbun, W. B. Activity of glutathione synthesis enzymes in human lens related to age. Curr Eye Res. 2 (11), 735-742 (1982).
- Giblin, F. J., et al. Nuclear light scattering, disulfide formation and membrane damage in lenses of older guinea pigs treated with hyperbaric oxygen. Exp Eye Res. 60 (3), 219-235 (1995).
- Padgaonkar, V. A., et al. Hyperbaric oxygen in vivo accelerates the loss of cytoskeletal proteins and MIP26 in guinea pig lens nucleus. Exp Eye Res. 68 (4), 493-504 (1999).
- Padgaonkar, V., Giblin, F. J., Reddy, V. N. Disulfide cross linking of urea insoluble proteins in rabbit lenses treated with hyperbaric oxygen. Exp Eye Res. 49 (5), 887-899 (1989).
- Lou, M. F., Dickerson, J. E. Jr Protein thiol mixed disulfides in human lens. Exp Eye Res. 55 (6), 889-896 (1992).
- Wei, Z., et al. Aging lens epithelium is susceptible to ferroptosis. Free Radic Biol Med. 167, 94-108 (2021).
- Wei, Z., et al. Deficiency in glutathione peroxidase 4 (GPX4) results in abnormal lens development and newborn cataract. Proc Natl Acad Sci U S A. 121 (48), e2407842121(2024).
- Cheng, C., Fowler, V. M., Gong, X. EphA2 and ephrin A5 are not a receptor ligand pair in the ocular lens. Exp Eye Res. 162, 9-17 (2017).
- Islam, S. T., Cheheltani, S., Cheng, C., Fowler, V. M. Disease related non muscle myosin IIA D1424N rod domain mutation, but not R702C motor domain mutation, disrupts mouse ocular lens fiber cell alignment and hexagonal packing. Cytoskeleton (Hoboken). 81 (12), 789-805 (2024).
- Islam, S. T., Cheng, C., Parreno, J., Fowler, V. M. Nonmuscle Myosin IIA Regulates the Precise Alignment of Hexagonal Eye Lens Epithelial Cells During Fiber Cell Formation and Differentiation. Invest Ophthalmol Vis Sci. 64 (4), 20(2023).
- Forrester, J. V., Dick, A. D., McMenamin, P. G., Roberts, F., Pearlman, E. The Eye (Fourth Edition). Forrester, J. V. , W.B. Saunders. 1-102.e102 (2016).
- D’Amore, P. A. Encyclopedia of the Eye (Second Edition). , Elsevier. 514-520 (2025).
- Vrensen, G. F. Aging of the human eye lens a morphological point of view. Comp Biochem Physiol A Physiol. 111 (4), 519-532 (1995).
- Vrensen, G. F., Duindam, H. J. Maturation of fiber membranes in the human eye lens. Ultrastructural and Raman microspectroscopic observations. Ophthalmic Res. 27 Suppl 1, 78-85 (1995).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rabbit. A scanning electron microscopic reinvestigation. Albrecht Von Graefes Arch Klin Exp Ophthalmol. 216 (4), 275-289 (1981).
- Willekens, B., Vrensen, G. The three dimensional organization of lens fibers in the rhesus monkey. Graefes Arch Clin Exp Ophthalmol. 219 (3), 112-120 (1982).
- Willekens, B., Vrensen, G. Lens fiber organization in four avian species: a scanning electron microscopic study. Tissue Cell. 17 (3), 359-377 (1985).
- Lo, W. K., et al. Aquaporin 0 targets interlocking domains to control the integrity and transparency of the eye lens. Invest Ophthalmol Vis Sci. 55 (3), 1202-1212 (2014).
- Lo, W. K., Harding, C. V. Square arrays and their role in ridge formation in human lens fibers. J Ultrastruct Res. 86 (3), 228-245 (1984).
- Kistler, J., et al. Membrane interlocking domains in the lens. Invest Ophthalmol Vis Sci. 27 (10), 1527-1534 (1986).
- Dickson, D. H., Crock, G. W. Interlocking patterns on primate lens fibers. Invest Ophthalmol. 11 (10), 809-815 (1972).
- Kuszak, J., Alcala, J., Maisel, H. The surface morphology of embryonic and adult chick lens fiber cells. Am J Anat. 159 (4), 395-410 (1980).
- Kuwabara, T. The maturation of the lens cell: a morphologic study. Exp Eye Res. 20 (5), 427-443 (1975).
- Martin, J. B., et al. Arvcf Dependent Adherens Junction Stability is Required to Prevent Age-related Cortical Cataracts. Front Cell Dev Biol. 10, 840129(2022).
- Chen, Y., Stump, R. J., Lovicu, F. J., Shimono, A., McAvoy, J. W. Wnt signaling is required for organization of the lens fiber cell cytoskeleton and development of lens three dimensional architecture. Dev Biol. 324 (1), 161-176 (2008).
- Sugiyama, Y., et al. Concave to convex curve conversion of fiber cells correlates with Y shaped suture formation at the poles of the rodent lens. Exp Eye Res. 248, 110066(2024).
- Kuszak, J. R., Sivak, J. G., Weerheim, J. A. Lens optical quality is a direct function of lens sutural architecture. Invest Ophthalmol Vis Sci. 32 (7), 2119-2129 (1991).
- Cheng, C. EphA2 and Ephrin A5 Guide Eye Lens Suture Alignment and Influence Whole Lens Resilience. Invest Ophthalmol Vis Sci. 62 (15), 3(2021).
- Xia, C. H., et al. Absence of alpha3 (Cx46) and alpha8 (Cx50) connexins leads to cataracts by affecting lens inner fiber cells. Exp Eye Res. 83 (3), 688-696 (2006).
- BEERS, A. P. A., van der HEIJDE, G. L. Age-related Changes in the Accommodation Mechanism. Optometry and Vision Science. 73 (4), 235-242 (1996).
- van Alphen, G. W., Graebel, W. P. Elasticity of tissues involved in accommodation. Vision Res. 31 (7-8), 1417-1438 (1991).
- Fisher, R. F. The ciliary body in accommodation. Trans Ophthalmol Soc U K (1962). 105 (Pt 2), 208-219 (1986).
- Graebel, W. P., van Alphen, G. W. H. M. The Elasticity of Sclera and Choroid of the Human Eye, and Its Implications on Scleral Rigidity and Accommodation. Journal of Biomechanical Engineering. 99 (4), 203-208 (1977).
- Tamm, S., Tamm, E., Rohen, J. W. Age-related changes of the human ciliary muscle. A quantitative morphometric study. Mech Ageing Dev. 62 (2), 209-221 (1992).
- Scarcelli, G., Kim, P., Yun, S. H. In vivo measurement of age-related stiffening in the crystalline lens by Brillouin optical microscopy. Biophys J. 101 (6), 1539-1545 (2011).
- Zhou, H., Yan, H., Yan, W., Wang, X., Li, Q. In vivo ultraosound elastographic evaluation of the age-related change of human lens nuclear stiffness. BMC Ophthalmol. 20 (1), 135(2020).
- Hermans, E., Dubbelman, M., van der Heijde, R., Heethaar, R. The shape of the human lens nucleus with accommodation. J Vis. 7 (10), 16.1-10 (2007).
- Fisher, R. F., Pettet, B. E. Presbyopia and the water content of the human crystalline lens. J Physiol. 234 (2), 443-447 (1973).
- Alizadeh, A., et al. Characterization of a mutation in the lens specific CP49 in the 129 strain of mouse. Invest Ophthalmol Vis Sci. 45 (3), 884-891 (2004).
- Fudge, D. S., et al. Intermediate filaments regulate tissue size and stiffness in the murine lens. Invest Ophthalmol Vis Sci. 52 (6), 3860-3867 (2011).
- Gokhin, D. S., et al. Tmod1 and CP49 synergize to control the fiber cell geometry, transparency, and mechanical stiffness of the mouse lens. PLoS One. 7 (11), e48734(2012).
- Duindam, J. J., Vrensen, G. F., Otto, C., Greve, J. Aging affects the conformation of cholesterol in the human eye lens. Ophthalmic Res. 28 Suppl 1, 86-91 (1996).
- Li, L. K., So, L., Spector, A. Age dependent changes in the distribution and concentration of human lens cholesterol and phospholipids. Biochim Biophys Acta. 917 (1), 112-120 (1987).
- Mainali, L., Raguz, M., O'Brien, W. J., Subczynski, W. K. Changes in the Properties and Organization of Human Lens Lipid Membranes Occurring with Age. Curr Eye Res. 42 (5), 721-731 (2017).
- Truscott, R. J. Age-related nuclear cataract: a lens transport problem. Ophthalmic Res. 32 (5), 185-194 (2000).
- Subczynski, W. K., Raguz, M., Widomska, J., Mainali, L., Konovalov, A. Functions of cholesterol and the cholesterol bilayer domain specific to the fiber cell plasma membrane of the eye lens. J Membr Biol. 245 (1), 51-68 (2012).
- Widomska, J., Subczynski, W. K. Why Is Very High Cholesterol Content Beneficial for the Eye Lens but Negative for Other Organs? Nutrients. 11 (5), (2019).
- Khadka, N. K., Mortimer, M. F., Marosvari, M., Timsina, R., Mainali, L. Membrane elasticity modulated by cholesterol in model of porcine eye lens lipid membrane. Exp Eye Res. 220, 109131(2022).
- Bracchi, P. G., Carta, F., Fasella, P., Maraini, G. Selective binding of aged alpha crystallin to lens fibre ghosts. Exp Eye Res. 12 (1), 151-154 (1971).
- Maraini, G., Fasella, P. Reversible binding of soluble lens proteins to lens fibre ghosts. Exp Eye Res. 10 (1), 133-139 (1970).
- Broekhuyse, R. M., Kuhlmann, E. D. Lens membranes. IV. Preparative isolation and characterization of membranes and various membrane proteins from calf lens. Exp Eye Res. 26 (3), 305-320 (1978).
- Friedrich, M. G., Truscott, R. J. Large scale binding of alpha crystallin to cell membranes of aged normal human lenses: a phenomenon that can be induced by mild thermal stress. Invest Ophthalmol Vis Sci. 51 (10), 5145-5152 (2010).
- Khadka, N. K., Timsina, R., Mainali, L. An AFM Approach Applied in a Study of alpha Crystallin Membrane Association: New Insights into Lens Hardening and Presbyopia Development. Membranes (Basel). 12 (5), (2022).
- Timsina, R., Khadka, N. K., Maldonado, D., Mainali, L. Interaction of alpha crystallin with four major phospholipids of eye lens membranes. Exp Eye Res. 202, 108337(2021).
- Timsina, R., Mainali, L. Association of Alpha Crystallin with Fiber Cell Plasma Membrane of the Eye Lens Accompanied by Light Scattering and Cataract Formation. Membranes (Basel). 11 (6), (2021).
- Timsina, R., Trossi Torres, G., O'Dell, M., Khadka, N. K., Mainali, L. Cholesterol and cholesterol bilayer domains inhibit binding of alpha crystallin to the membranes made of the major phospholipids of eye lens fiber cell plasma membranes. Exp Eye Res. 206, 108544(2021).
- Parreno, J., et al. Methodologies to unlock the molecular expression and cellular structure of ocular lens epithelial cells. Front Cell Dev Biol. 10, 983178(2022).
- Cvekl, A., Camerino, M. J. Generation of Lens Progenitor Cells and Lentoid Bodies from Pluripotent Stem Cells: Novel Tools for Human Lens Development and Ocular Disease Etiology. Cells. 11 (21), (2022).
- Murphy, P., et al. Light focusing human micro lenses generated from pluripotent stem cells model lens development and drug induced cataract in vitro. Development. 145 (1), (2018).
- Goldberg, M. W. High Resolution Scanning Electron Microscopy and Immuno Gold Labeling of the Nuclear Lamina and Nuclear Pore Complex. Methods Mol Biol. 1411, 441-459 (2016).
- Goldberg, M. W., Fiserova, J. Immunogold Labeling for Scanning Electron Microscopy. Methods Mol Biol. 1474, 309-325 (2016).
- Hermann, R., Walther, P., Muller, M. Immunogold labeling in scanning electron microscopy. Histochem Cell Biol. 106 (1), 31-39 (1996).
- Vu, M. P., Cheng, C. Preparation and Immunofluorescence Staining of Bundles and Single Fiber Cells from the Cortex and Nucleus of the Eye Lens. J Vis Exp. (196), e65638(2023).
- Emin, G., et al. Whole Mount Imaging to Visualize and Quantify Peripheral Lens Structure, Cell Morphology, and Organization. J Vis Exp. (203), e66017(2024).
- Zhou, Y., Shiels, A. Epha2 and Efna5 participate in lens cell pattern formation. Differentiation. 102, 1-9 (2018).
- Huynh, P. N., Cheng, C. Spatial temporal comparison of Eph/Ephrin gene expression in ocular lenses from aging and knockout mice. Front Ophthalmol (Lausanne). 4, 1410860(2024).
- Disatham, J., et al. Lens differentiation is characterized by stage specific changes in chromatin accessibility correlating with differentiation state specific gene expression. Dev Biol. 453 (1), 86-104 (2019).
- Farnsworth, D. R., Posner, M., Miller, A. C. Single cell transcriptomics of the developing zebrafish lens and identification of putative controllers of lens development. Exp Eye Res. 206, 108535(2021).
- Tangeman, J. A., et al. Integrated single cell multiomics uncovers foundational regulatory mechanisms of lens development and pathology. Development. 151 (1), (2024).
- Xia, C. H., et al. Periaxin gene variants are linked to age-related cataracts in Cx46 deficient lenses. Commun Biol. 8 (1), 1356(2025).
- Gong, X., Agopian, K., Kumar, N. M., Gilula, N. B. Genetic factors influence cataract formation in alpha 3 connexin knockout mice. Dev Genet. 24 (1-2), 27-32 (1999).
- Baradia, H., Nikahd, N., Glasser, A. Mouse lens stiffness measurements. Exp Eye Res. 91 (2), 300-307 (2010).
- Sindhu Kumari, S., et al. Role of Aquaporin 0 in lens biomechanics. Biochem Biophys Res Commun. 462 (4), 339-345 (2015).
- Cheng, C., Gokhin, D. S., Nowak, R. B., Fowler, V. M. Sequential Application of Glass Coverslips to Assess the Compressive Stiffness of the Mouse Lens: Strain and Morphometric Analyses. J Vis Exp. (111), e53986(2016).
- Wolf, N. S., Li, Y., Pendergrass, W., Schmeider, C., Turturro, A. Normal mouse and rat strains as models for age-related cataract and the effect of caloric restriction on its development. Exp Eye Res. 70 (5), 683-692 (2000).
- Martin Montalvo, A., et al. Metformin improves healthspan and lifespan in mice. Nat Commun. 4, 2192(2013).
- Pearson, K. J., et al. Resveratrol delays age-related deterioration and mimics transcriptional aspects of dietary restriction without extending life span. Cell Metab. 8 (2), 157-168 (2008).
- Pendergrass, W., Penn, P., Possin, D., Wolf, N. Accumulation of DNA, nuclear and mitochondrial debris, and ROS at sites of age-related cortical cataract in mice. Invest Ophthalmol Vis Sci. 46 (12), 4661-4670 (2005).
- Pendergrass, W. R., Penn, P. E., Li, J., Wolf, N. S. Age-related telomere shortening occurs in lens epithelium from old rats and is slowed by caloric restriction. Exp Eye Res. 73 (2), 221-228 (2001).
- Schriner, S. E., et al. Extension of murine life span by overexpression of catalase targeted to mitochondria. Science. 308 (5730), 1909-1911 (2005).
- Wolf, N., et al. Age-related cataract progression in five mouse models for anti oxidant protection or hormonal influence. Exp Eye Res. 81 (3), 276-285 (2005).
- Panja, S., et al. Aggrelyte 2 promotes protein solubility and decreases lens stiffness through lysine acetylation and disulfide reduction: Implications for treating presbyopia. Aging Cell. 22 (4), e13797(2023).
- Panja, S., Nam, M. H., Gaikwad, H., Rankenberg, J., Nagaraj, R. H. Topical ocular application of aggrelyte 2A reduces lens stiffness in mice. Frontiers in Ophthalmology. 3, (2023).
- Kador, P. F., Guo, C., Kawada, H., Randazzo, J., Blessing, K. Topical nutraceutical Optixcare EH ameliorates experimental ocular oxidative stress in rats. J Ocul Pharmacol Ther. 30 (7), 593-602 (2014).
- Kador, P. F., Webb, T. R., Bras, D., Ketring, K., Wyman, M. Topical KINOSTAT ameliorates the clinical development and progression of cataracts in dogs with diabetes mellitus. Vet Ophthalmol. 13 (6), 363-368 (2010).
- Kador, P. F., Wyman, M., Oates, P. J. Aldose reductase, ocular diabetic complications and the development of topical Kinostat((R)). Prog Retin Eye Res. 54, 1-29 (2016).
- Maden, M. Salamanders as Key Models for Development and Regeneration Research. Methods Mol Biol. 2562, 1-23 (2023).
- Grogg, M. W., Call, M. K., Tsonis, P. A. Signaling during lens regeneration. Semin Cell Dev Biol. 17 (6), 753-758 (2006).
- Tsonis, P. A., Makarev, E. On dorsal/ventral specific genes in the iris during lens regeneration. Cell Mol Life Sci. 65 (1), 41-44 (2008).
- Kha, C. X., Son, P. H., Lauper, J., Tseng, K. A. A model for investigating developmental eye repair in Xenopus laevis. Exp Eye Res. 169, 38-47 (2018).
- Gwon, A. E., Gruber, L. J., Mundwiler, K. E. A histologic study of lens regeneration in aphakic rabbits. Invest Ophthalmol Vis Sci. 31 (3), 540-547 (1990).
- Gwon, A., Gruber, L. J., Mantras, C. Restoring lens capsule integrity enhances lens regeneration in New Zealand albino rabbits and cats. J Cataract Refract Surg. 19 (6), 735-746 (1993).
- Medvedovic, M., Tomlinson, C. R., Call, M. K., Grogg, M., Tsonis, P. A. Gene expression and discovery during lens regeneration in mouse: regulation of epithelial to mesenchymal transition and lens differentiation. Mol Vis. 12, 422-440 (2006).
- Call, M. K., Grogg, M. W., Del Rio Tsonis, K., Tsonis, P. A. Lens regeneration in mice: implications in cataracts. Exp Eye Res. 78 (2), 297-299 (2004).
- Kuszak, J. R., Brown, H. G. Embryology and anatomy of the crystallin lens. , W.B. Saunders. 82-96 (1994).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.