Protokół ten przedstawia szczegółową metodę izolowania wysokiej jakości zawiesin pojedynczych komórek zarówno ze zdrowej, jak i z guzowymi tkankami płuc myszy. Protokół ten może być stosowany w scRNA-seq, analizie cytometrii przepływowej oraz izolacji komórek pierwotnych.
Artykuł metodologiczny
Optymalizacja przygotowania całej tkanki płucnej z guzem myszy do cytometrii przepływowej i sekwencjonowania RNA pojedynczego komórkowego
W tym artykule
Podsumowanie
Streszczenie
NSCLC odpowiada za około 85% nowotworów płuc, a mięsak szczura Kirsten (KRAS) jest najczęściej mutowanym genem w NSCLC. Chociaż zarządzanie NSCLC znacznie się rozwinęło w ostatnich latach, jego heterogeniczność i plastyczność pozostają niedo do końca poznane. Sekwencjonowanie pojedynczokomórkowego RNA (scRNA-seq) stało się niezbędnym narzędziem do rozkładania heterogeniczności komórkowej w złożonych tkankach, takich jak płuco. Jednak generowanie wysokiej jakości zawiesin pojedynczych komórek z tkanki płucnej z guzem jest trudne, szczególnie podczas powstawania guza, gdy tkanka staje się włóknista i heterogenna. Kluczowym wymogiem skutecznego scRNA-seq jest przygotowanie żywotnych pojedynczych komórek przy minimalnym stresie lub uszkodzeniu wywołanym przez przetwarzanie. Przedstawiono szczegółowy, krok po kroku protokół izolowania wysokiej jakości zawiesin jednokomórkowych zarówno ze zdrowej, jak i z guzowymi tkankami płuc myszy w KrasG12D; model myszy reportera tdTomato Procedura obejmuje perfuzję tkanek, kontrolowane trawienie enzymatyczne, delikatną dysocjację mechaniczną, lizę czerwonych krwinek, filtrację oraz ocenę żywotności, a także pozwala na >85% żywotnych komórek przed scRNA-seq. Wreszcie, komórki nowotworowe tdTomato+ są efektywnie izolowane przez FACS i mogą być wykrywane jako odrębne skupiska za pomocą scRNA-seq za pomocą tego protokołu.
Wprowadzenie
Rak płuc jest jedną z głównych przyczyn zgonów związanych z rakiem na całym świecie. Można go ogólnie podzielić na dwa główne podtypy: raka płuc drobnokomórkowych (SCLC) oraz niedrobnokomórkowego raka płuc (NSCLC)1. NSCLC odpowiada za około 85% wszystkich przypadków raka płuc, przy czym gruczolakot jest najczęstszym podtypem histologicznym2. Chociaż strategie terapeutyczne NSCLC znacznie się poprawiły w ciągu ostatnich dekad, wskaźnik śmiertelności z powodu raka płuc pozostaje wysoki3. Chemoterapia i immunoterapia to dwie główne metody leczenia stosowane w praktyce klinicznej; Jednak wielu pacjentów doświadcza oporności na leki lub nie reaguje na immunoterapię 4,5.
Mikrośrodowisko guza (TME) odgrywa kluczową rolę w inicjacji, progresji i oporności terapeutycznej guza6. Rosnące dowody sugerują, że skład TME zmienia się dynamicznie w czasie 7,8. Komórki odpornościowe przeciwnowotworowe są zazwyczaj wzbogacane w TME we wczesnych etapach nowotworów, podczas gdy populacje komórek immunosupresyjnych i z rakiem związane z nowotworem stają się dominujące w miarę rozwoju guza9. Dlatego zrozumienie heterogeniczności i plastyczności TME podczas postępu raka płuca jest kluczowe dla wyjaśnienia mechanizmów choroby i poprawy efektów terapeutycznych.
Sekwencjonowanie pojedynczokomórkowego RNA (scRNA-seq) umożliwia wysokorozdzielcze profilowanie ekspresji genów na poziomie poszczególnych komórek, umożliwiając kompleksową charakterystykę złożonych transkryptomów tkanek10. Technika ta stała się nieodłączna do badania heterogeniczności komórkowej oraz identyfikacji mechanizmów leżących u podstaw progresji guza i oporności na leki w raku płuc11. Przygotowanie wysokiej jakości zawiesiny jednokomórkowej jest kluczowym elementem skutecznego scRNA-seq, ponieważ stres lub uszkodzenie komórek podczas dysocjacji może prowadzić do niedokładnych wyników12,13.
Protokół ten umożliwia sekwencjonowanie RNA ze wszystkich pojedynczych komórek oczyszczonych z całych płuc z guzami, niezależnie od wielkości komórek i bez odrzucania żywych podpopulacji komórek. Wiele wcześniejszych badań odnosiło się do sekwencjonowania pojedynczych komórek płuc z nowotworami, które koncentrowały się na komórkach nowotworowych i odrzuconych komórkach CD45+ 14, 15, 16 lub koncentrowały się na komórkach odpornościowych lub innych specyficznych typach komórek17 oraz odrzuconych komórkach nowotworowych. Protokół ten ma na celu efektywne rozdzielenie wszystkich typów komórek z całych tkanek płuc zawierających guz myszy, przy jednoczesnym zapewnieniu uwalniania komórek złośliwych i zachowaniu żywotności komórek normalnych. Dzięki uwzględnieniu wszystkich żywych pojedynczych komórek protokół umożliwia badanie wszystkich istotnych typów komórek w mikrośrodowisku płuc z nowotworem, w tym makrofagowych komórek podobnych z nowotworem (CAMLs)18. Opcjonalne kroki sortowania komórek aktywowanych fluorescencją (FACS) są opcjonalne dla kontroli jakości i wzbogacania określonych populacji komórek. Dodatkowe wytyczne dotyczą barwienia przeciwciał, znakowania 4',6-diamidino-2-fenylindolu (DAPI) oraz procedur krótkotrwałej fiksacji, gdy natychmiastowe sortowanie nie jest możliwe.
Potencjalnym ograniczeniem tego protokołu jest to, że został zoptymalizowany i zweryfikowany dla tkanek płuc zawierających wczesne guzy i z obciążeniem guzów poniżej 40%. W przypadku płuc zawierających guzy o wyższym stopniu lub w których obciążenie guzów przekracza 50%, skuteczność dysocjacji może być osłabiona przez obecność gęstych elementów stromalnych oraz rozległe włóknienie19,20, które mogą blokować całkowite uwalnianie komórek złośliwych.
Protokół
Wszystkie eksperymenty związane ze zwierzętami były przeprowadzane zgodnie z wytycznymi Scripps Research dotyczącymi opieki i wykorzystania zwierząt oraz zatwierdzone przez Komitet ds. Opieki i Użycia Zwierząt Scripps Research Institutional na podstawie protokołu #10-0019. KrasLSL-G12D/+; Myszy TdTomato+/- powstały przez krzyżowanie myszy KrasLSL-G12D/+ z myszami reportera TdTomato. Dziewięciotygodniowy lub dziesięciotygodniowy KrasLSL-G12D/+; Myszy TdTomato+/- zostały wykorzystane jako modele raka płuc. Są zakażone wewnątrztrachealnie lentiwirusem ekspresyjnym rekombinazą Cre, przy mianie wirusowym 5 × 10 5 jednostek tworzącychpłytki na mysz. Po 25 tygodniach pobrano tkanki płuc zawierające guz. Potencjalne problemy trawienne i rozwiązywanie problemów są wymienione w Tabeli Uzupełniającej 1. Odczynniki i używany sprzęt są wymienione w Tabeli Materiałów.
1. Przygotowanie buforów
- Medium DMEM/F12: Przygotuj 2% (v/v) inaktywowany termicznie FBS w medium DMEM/F12.
- Bufor do płukania komórek: Przygotuj 2% (v/v) nieaktywowany termicznie FBS w PBS wolnym od Ca+/Mg+ (pH 7,4).
- Bufor perfuzji: Wcześniej schłodzony PBS bez Ca+/Mg+ (pH 7,4).
- Roztwory enzymów zapasowych: Rozpuścić 10 mg (1600 U/mg) kolagenazy IV w medium DMEM/F12 o pojemności 1 mL w roztwor kolagenazy IV o pojemności 16000 U/mL; Rozpuścić 42 mg (1,19 U/mg) Dispase II w medium 1 mL DMEM/F12, aby uzyskać roztwór stockowy Dispase II o stężeniu 50 U/mL; Rozpuścić 5 mg DNazy I w medium DMEM/F12 o pojemności 1 mL i uzyskać roztwór zapasowy DNazy I o stężeniu 5 mg/mL.
- Medium trawiennicze: Wymieszaj 250 μL kolagenazy IV, 200 μL Dispaze II oraz 100 μL roztworów DNazy I w medium DMEM/F12 o pojemności 5 mL w medium DMEM/F12, aby uzyskać końcowe stężenie 800 U/mL kolagenazy IV, 2 U/mL Dispaze II oraz 0,1 mg/mL DNazy I.
- Bufor rezawisian: Wymieszaj 1 μL 0,5 M EDTA (10 μM), 1 mL termicznie inaktywowanego FBS (2% v/v) w 50 mL wolnego Ca+/Mg+ PBS (pH 7,4).
- Roztwór BSA: Rozpuszcz 0,5 g BSA w 100 mL beztłuszczowego PBS Ca+/Mg+ , aby uzyskać roztwór 0,5% (w/v) BSA.
- FACS buffer: Wymieszaj 2,5 mL 1 M HEPES, 200 μL 0,5 M EDTA w roztworze 100 mL BSA, aby uzyskać końcowe stężenie 25 mM HEPES i 1 mM EDTA.
2. Pobieranie tkanki płucnej myszy
UWAGA: Wszystkie narzędzia chirurgiczne są dezynfekowane 70% etanolem między próbkami. Próbki są przechowywane na lodzie między każdym etapem, a cała plastikowa garść jest certyfikowana jako wolna od DNazy/RNazy.
- Uśpienie myszy w komorzeCO2 (zgodnie z zatwierdzonymi protokołami instytucjonalnymi). Połóż mysz na plecach na podkładce do sekcjonowania i przypiąć stopy. Obficie spryskuj 70% etanolem.
- Wykonaj nacięcie środkowe o szerokości 2–3 cm przez skórę i mięśnie dolnej części brzucha. Ostrożnie otwórz tułów i unikaj przecięcia płuc lub serca.
- Przymocuj igłę bezpieczeństwa multifly 21 G do strzykawki 50 mL i zasysaj bufor perfuzji 30 mL.
- Włóż igłę do lewej komory i wytnij małe nacięcie w prawym przedsionku ostrym, prostym nożycami.
- Przekręć całe ciało21 z 15 ml buforu perfuzyjnego.
UWAGA: Wybielanie wątroby wskazuje, że perfuzja całego ciała została zakończona. - Usuń płuca z tułowia i odciąć nadmiar tkanek przyczepionych do płuc22. Umieść płuca w 10 mL wcześniej schłodzonym PBS bez Ca+/Mg+, aby wypłukać nadmiar krwi.
- Przełóż płuca do rurki o pojemności 1,5 mL zawierającej 500 μL lodowatego DMEM/F12.
3. Przygotowanie zawiesiny jednokomórkowej w płucach
- Przetnij tkankę płucną na małe kawałki (1–2 mm3) za pomocą bardzo wąskich, prostych nożyczek przez 2–3 minuty.
- Przenieś posiekaną tkankę płucną do naczynia o średnicy 6 cm zawierającego podłoże trawienne o pojemności 5 mL.
- Umieść 6 cm talerz na termostatycznej shakerze przy 50 obr./min przez 25 minut w 37 °C. Mieszaj zawieszenie za pomocą pipety 1 mL co 8 minut.
- Włóż sitko o średnicy 100 μm w misce o średnicy 10 cm. Zwilż sitko 1 mL DMEM/F12 medium.
- Przelej strawioną zawiesinę do sitka. Przepchnij tkankę przez sitko gumowym końcem sterylnej tłoka strzykawki.
- Umieść sitko siatki o pojemności 70 μm nad rurką wirówki o pojemności 50 mL. Zwilż sitko 1 mL DMEM/F12 medium.
- Przefiltruj zawiesinę ogniwa przez sitko i przepłucz je 5 mL DMEM/F12 medium.
- Filtruj zawiesinę komórkową w wirówce w stężeniu 400 g przez 10 minut w 4 °C i ostrożnie usuwaj supernatant. Ponownie zawiesić pellet komórkowy w 1 mL buforu lizyjnego czerwonych krwinek na 2 minuty w temperaturze pokojowej.
- Dodaj 14 mL bufora do płukania komórek i wiruj w 400 g przez 10 minut w 4 °C.
UWAGA: Jeśli granulka nadal jest czerwona po praniu, powtórz kroki 8 i 9. - Usuń supernatant i ponownie zawiesij komórki w buforze resuspension 20 mL.
- Wymieszaj 10 μL zawiesiny jednokomórkowej z równą objętością trypanowego niebieskiego i dodaj 10 μL mieszanki do szkła komory liczącej komórki. Sprawdź żywotność komórek na żywo, numer komórek oraz status pojedynczych komórek za pomocą licznika komórek.
4. Analiza cytometrii przepływowej
- Ponownie zawiesić komórki w lodowatym buforze FACS i przenieść 100 μL zawiesiny komórkowej do probarek 1,5 mL zawierających przeciwciało blokujące Fc o pojemności 1 μL (1:100). Inkubuj próbki przez 15 minut na lodzie.
- Próbki w wirówce w dawce 500 g przez 5 minut i odrzucaj supernatant. Ponownie zawiesz komórki w 200 μL przeciwciała CD326-APC (1:100) i inkubuj przez 45 minut w ciemności w temperaturze 4 °C.
- Próbki w wirówce w dawce 500 g przez 5 minut i odrzucaj supernatant. Ponownie zawiesić komórki w 500 μL buforu FACS zawierającego barwnik DAPI (1:5000).
- Przenieś wszystkie próbki do rurek FACS i chroń je przed światłem.
- Przeanalizuj próbki za pomocą cytometru przepływowego. Zastosowano następujące fluorofory: DAPI-V450, Tdtomato-YG585, CD326-APC. Strategia bramkowania została przedstawiona na Rysunku 1.
Wyniki
Wysoka żywotność komórek osiągnięto w zawiesinie jednokomórkowej przygotowanej przy użyciu tego zoptymalizowanego protokołu. Zmiany poprawiające żywotność komórek płuc z guzem obejmowały optymalizację stężenia enzymów (Tabela Uzupełniająca 2), potrząsanie i mieszanie próbek podczas inkubacji w temperaturze 37 °C. Ponadto w kroku 6 wyeliminowano dodatkowe sitko siatki o średnicy 40 μm, aby zmniejszyć mechaniczne naprężenia ścinające, które zwiększają prawdopodobieństwo uszkodzenia komórek; dodanie dodatkowego sitnika może zmniejszyć powstawanie multipletów. Średnio żywotność komórek przekraczała 85%, w porównaniu do poniżej 80% przed optymalizacją (Tabela 1). Zmiany stężenia komórek przypisywano głównie różnicom w rozmiarze płuc i zastosowanym nośniku zawiesin w replikacjach.
W tym modelu grzyba gruczolakoraka płuc sterowanego przez KrasG12D obecne są guzki, a obciążenie guzem waha się od 10% do 40% po23 tygodniach od inicjacji guza. Dwa zawiesiny jednokomórkowe całego płuca zostały poddane scRNA-seq na platformie 10x Genomics. Ocena jakości Cell Ranger wykazała odpowiednio 23 488 i 21 436 szacowanych komórek w obu próbach (Tabela 2). Wykres kodów kreskowych wskazywał na minimalne zanieczyszczenie RNA otoczenia, co prawdopodobnie odzwierciedla wysoką żywotność komórek (Rysunek 2A,B).
Analiza głównych składowych (PCA) oraz jednorodna aproksymacja i projekcja rozmaitości (UMAP) ujawniły dobrze zdefiniowane klastry, z uwzględnieniem wszystkich głównych typów komórek płucnych (Rysunek 3A). Wykresy punktowe reprezentatywnych genów markerów potwierdziły, że kanoniczne biomarkery były wysoko ekspresyjne w odpowiadających im typach komórek (Rysunek 3B). Ponadto komórki TdTomato+ zostały wzbogacone w skupiska nabłonkowe, a komórki TdTomato+/EpCAM+ zostały skutecznie wyizolowane za pomocą FACS (Rysunek 1).
Podsumowując, ten zoptymalizowany protokół umożliwia efektywną dysocjację tkanki płucnej z guzem myszy, co zapewnia wysoką żywotność komórek, niskie zanieczyszczenie RNA oraz kompleksową reprezentację komórkową.
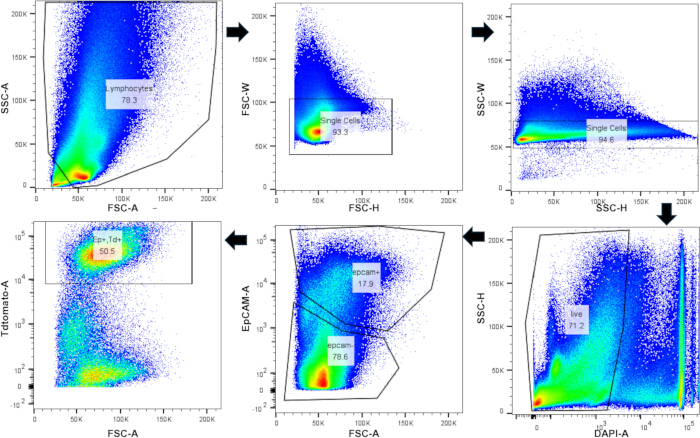
Rysunek 1: Izolacja komórek TdTomato+/CD326 (EpCAM+) za pomocą cytometrii przepływowej. Strategia blokowania cytometrii przepływowej dla zawiesiny jednokomórkowej płuc myszy. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
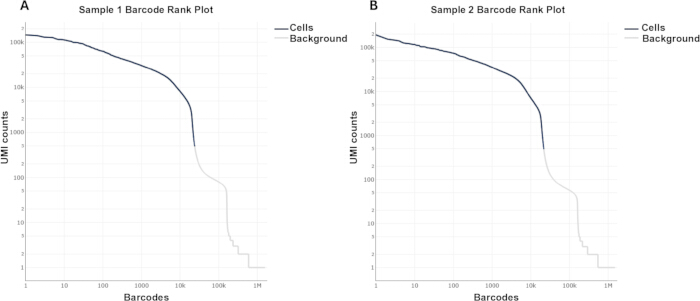
Rysunek 2: Wykres rangi kodów kreskowych ScRNA-seq płuc noszących guz u myszy. KrasLSL-G12D/+; Płuca myszy TdTomato+/- zostały pobrane 25 tygodni po zakażeniu lentiwirusem-Cre. (A,B) Wykres rangi kodu kreskowego płuc z guzem z analizy Cellranger. Prosimy kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
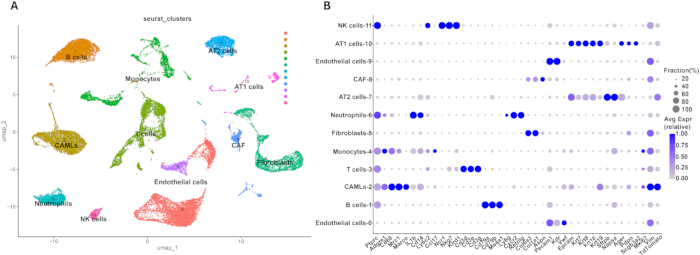
Rysunek 3: Analiza transkryptomiki pojedynczej komórki płuc z guzem myszy. (A) Projekcja UMAP dla całych zbiorów danych płuc z guzami. (B) Wykres krorkowy genów klasycznych używanych do adnotacji klastrowych. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
| Przed optymalizacją | Po optymalizacji | |||
| Powtórz 1 | Powtórz 2 | Powtórz 1 | Powtórz 2 | |
| Całkowita liczba komórek | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Komórki żywe | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Procent żywych komórek | 76% | 77% | 83% | 89% |
Tabela 1: Żywotność komórek zawiesiny płuc z guzem jednokomórkowym przed i po optymalizacji. Stężenie i procent żywych komórek ustalane przed i po użyciu tego protokołu.
| Przykład 1 | Przykład 2 | |
| Szacowana liczba komórek | 23,488 | 21,436 |
| Średnie odczyty na komórkę | 18,354 | 20,542 |
| Mediana genów na komórkę | 2,565 | 2,513 |
| Łączna liczba wykrytych genów | 30,893 | 30,556 |
| Mediana liczby UMI na komórki | 6,864 | 6,583 |
| Ważne kody kreskowe | 95.90% | 95.80% |
| Nasycenie sekwencjonowania | 26.10% | 28.20% |
| Odczyty ułamków w komórkach | 94.10% | 95.40% |
Tabela 2: Analiza kontroli jakości ScRNA-seq przeprowadzona przez Cell Ranger. Kluczowe szacunki danych pojedynczych komórek uzyskanych z Cell Ranger
Tabela uzupełniająca 1: Rozwiązania rozwiązywania problemów. Sugeruje się rozwiązania mające na celu rozwiązanie problemów, które mogą wystąpić podczas procesu trawienia. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Składniki koktajlu enzymów przed optymalizacją i po optymalizacji. Końcowe stężenia koktajlu enzymów użytych przed i po optymalizacji. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Protokół ten zawiera szczegółową, krok po kroku procedurę przygotowania wysokiej jakości zawiesin jednokomórkowych z tkanki płuc myszy. Aby osiągnąć optymalne rezultaty, potrzebnych jest kilka kluczowych kroków.
Przed trawieniem enzymatycznym należy wykonać perfuzję całego ciała, aby usunąć krew z płuc. Zapewnia to, że komórki odpornościowe wykryte przez scRNA-seq pochodzą z tkanki płucnej, a nie z krążenia krwi. Podczas perfuzji niezbędne jest wprowadzenie igły do lewej komory, aby zapobiec przedostaniu się perfuzjatu do krążenia płucnego i uszkodzeniu komórek płucnych. Aby zachować żywotność komórek, wszystkie bufory, w tym roztwory do płukania, zawiesiny i perfuzji, powinny być wcześniej schładzone na lodzie. Biorąc pod uwagę inherentną heterogeniczność tkanki płucnej24, próbki powinny być przechowywane w podłożu DMEM/F12 przed i podczas trawienia, ponieważ to medium dostarcza niezbędnych składników odżywczych utrzymujących żywotność komórek.
Wysoka żywotność komórek oraz dobrze zdefiniowane skupiska komórek obserwowane w tym protokole potwierdzają, że połączenie enzymów jest zarówno łagodne, jak i skuteczne. Jony wapnia i magnezu są znane z tego, że sprzyjają zlepianiu komórek i zwiększają aktywność enzymatyczną25,26. Dlatego do przygotowania większości buforów w celu minimalizacji zlepiania się stosuje PBS wolny od Ca+/Mg+, podczas gdy DMEM/F12 zawierające te jony służy jako podstawowe ośrodek buforu trawiennego, aby utrzymać zrównoważoną efektywność enzymatyczną.
Chociaż wcześniejsze badania opisywały dysocjację płuc myszy lub tkanek nowotworowych, często wykazują one istotną zmienność lub niepełny opis selekcji i stężenia proteazy 11,15,27. Na przykład Han i in.11 używali koktajli enzymatycznych bez zgłaszania stężenia, co utrudnia replikację. Z kolei wysoce wyspecjalizowana metoda opisana przez Chena i in.28 jest skuteczna w dysocjacji komórek pęcherzyka typu II (AT2), ale wymaga złożonego przepływu pracy, co jest niepraktyczne, jeśli trzeba zebrać wiele myszy jednocześnie.
Kluczowym wyzwaniem w badaniach onkologii płuc jest strukturalna heterogeniczność płuca noszącego guz, które składa się zarówno z delikatnych, zdrowych komórek, jak i złośliwych komórek nowotworowych. Standardowe protokoły lub zestawy komercyjne są często projektowane specjalnie dla próbek tkanek normalnych lub guzów. Skutkują one albo niepełnym trawiennością, nieuwalnianiem komórek nowotworowych z rdzenia guza, albo nadmiernym trawiennictwem, co powoduje znaczny stres i śmierć komórek w bardziej wrażliwej tkance normalnej w próbkach płuc z guzami.
Protokół ten rozwiązuje ten problem poprzez precyzyjne dostrojenie koktajlu enzymatycznego (kolagenaza IV, dyspaza II i DNaza I), aby osiągnąć zrównoważoną dysocjację. Ta optymalizacja zapewnia uwalnianie złośliwych komórek, jednocześnie zachowując żywotność komórek zdrowych. Potwierdza to analiza cytometrii przepływowej, podczas której z powodzeniem zidentyfikowaliśmy i rozstrzygliśmy dwie odrębne komórki nabłonkowe. Komórki nabłonkowe są dobrze podzielone na komórki TdTomato+ lub TdTomato-. Ten poziom rozdzielczości pokazuje, że metoda ta nadaje się do badania całego mikrośrodowiska płuc z guzem, bez utraty integralności tkanki gospodarza. Włączając wszystkie żywe pojedyncze komórki do analizy, protokół ten umożliwia badanie wszystkich istotnych typów komórek w mikrośrodowisku płuc noszących guz, w tym komórek makrofagowych związanych z rakiem (CAML) (Rysunek 3), które nie były szeroko opisywane w poprzednich badaniach 15,16,17.
Po trawieniu analizy scRNA-seq wykazały, że ta procedura skutecznie izoluje różne typy komórek. Roztwory enzymów powinny być świeżo przygotowane w dniu eksperymentu. Wszystkie parametry trawienia są zoptymalizowane dla jednego całego płuca myszy. Przy użyciu tylko jednego płata lub kilku płuc, czas trawienia powinien być dostosowany, aby zapewnić wysoką żywotność komórek i całkowitą dysocjację tkanek. Skażenie RNA otoczenia oraz formowanie multipletów to dwa główne czynniki wpływające na jakość scRNA-seq29. Chociaż zestawy do usuwania martwych komórek często są stosowane w celu zwiększenia żywotności, ten protokół konsekwentnie daje ponad 80% żywych komórek po trawieniu, co czyni ten krok opcjonalnym. Wykres rangi kodów kreskowych potwierdził minimalne zanieczyszczenie RNA otoczenia, nawet bez usunięcia martwych komórek.
Obecne badanie potwierdza tę metodologię w kontekście całego płuca myszy z guzem. To zoptymalizowane trawienie enzymatyczne stanowi wzorzec do badania różnych innych tkanek nożących nowotwory, charakteryzujących się podobnymi mikrośrodowiskami. Ponadto wysoka żywotność i zachowanie wszystkich typów komórek osiągnięte dzięki temu protokołowi sprawiają, że nadaje się on do zaawansowanych technologii sekwencjonowania, takich jak CITE-seq do mapowania powierzchni białek oraz ATAC-seq do profilowania epigenetycznego.
Chociaż protokół ten produkuje wysokiej jakości zawiesiny pojedynczych komórek przy niskich kosztach, stres komórkowy wywołany procesem może nadal występować podczas trawienia enzymatycznego. Aby zminimalizować artefakty ekspresji genów związane ze stresem, pojedynczy operator powinien przetwarzać jednocześnie nie więcej niż cztery próbki.
Oświadczenia
Autorzy deklarują, że nie mają ze sobą rywalizujących interesów.
Podziękowania
Prace te zostały wsparte przez National Institute of Health, National Eye Institute (NEI), USA, granty 5R01EY026202, R01EY035333; granty National Institute of Dental and Craniofacial Research (NIDCR) R01DE031044, 2R01DE014756 oraz granty National Cancer Institute (NCI) R01CA271500 i 2R01CA211187.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Hodowla komórkowa |
| Kolagenaza typu IV | Sigma Aldich | C5138 | Enzymy trawienne |
| Dispase II | Sigma Aldich | D4693 | Enzymy trawienne |
| DNaza I | Roche | 11284931001 | Usuń DNA |
| Sto Falcon 70 Cell | Falcon | 352350 | Usuń niestrawioną tkankę |
| Sterylne nożyczki | FST | 14088-10 | Cięcie tkanek |
| Bufor lizy czerwonych krwinek | Sigma Aldich | R7757 | Usuń krwinki |
| Nieaktywny na ciepło FBS | Phoenix Scientific | PS100 | Chroń komórki |
| PBS wolny od Ca+/Mg+ | Thermo Fisher | 10010023 | Enzymy rozpuszczalne/komórki płukania |
| Igła safety-multifly 21G | Sarstedt | 3051524 | Perfuzja całego ciała |
| 50 mL strzykawki i nbsp; | BD | 300866 | Perfuzja całego ciała |
| Miska o średnicy 6 cm | Corning | 430116 | Tkanki trawienne |
| Talerz 10 cm | Corning | 430167 | Tkanki trawienne |
| Przeciwciało blokujące Fc | BD | 553141; RRID:AB_394655 | Cytometria przepływowa |
| DAPI | BD | 564907; RRID:AB_2869624 | Cytometria przepływowa |
| CD326 | BD | 563478; RRID:AB_2738234 | Cytometria przepływowa |
| HIVmPGKCre VSVG | Rdzeń UI Viral Vectore | VVC-U of Iowa-7556 | Lentivirous |
| Cytometr przepływowy ZE5 (Yeti) | Bio-Rad | Analiza cytometrii przepływowej | |
| Mysz KrasLSL-G12D/+ | Laboratorium Jacksona | 008179; RRID:IMSR_JAX:008179 | |
| Mysz reporterka TdTomato | Laboratorium Jacksona | 007909; RRID:IMSR_JAX:007909 |
Bibliografia
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Przedruki i uprawnienia
