Tu opisujemy protokół dotyczący ex vivo nagrań z wysoko gęstej matrycy mikroelektrody z ostrych kroi móżdżku u modelu chomika z dystonią, który otrzymał in vivo ciągłą stymulację głęboką mózgu w zakresie 11 dni.
Artykuł metodologiczny
Badanie mechanizmów działania stymulacji głębokiej mózgu obszaru ciemieniowego za pomocą wysokoczułowych mikroelektrodowych tablic
W tym artykule
Podsumowanie
Streszczenie
Dystonia to neurologiczne zaburzenie ruchowe charakteryzujące się nieprawidłową kontrolą mięśni, wpływające na ruch dowolny i utrzymanie postawy. Chociaż dystonia wiąże się z dysfunkcją jąder podstawy, rosnące dowody sugerują, że móżdżek jest zaangażowany w jej patofizjologię. Protokół ten przedstawia in vivo głęboką stymulację mózgu (DBS) w obszarze blachy szarej w modelu chomika z dystonią (chomik dtsz) w połączeniu z ex vivo rejestracjami z wysokogęstościową tablicą mikrooporów (HD-MEA) w celu zbadania aktywności móżdżku. Protokół obejmuje (1) chirurgię DBS w celu implantacji elektrody i stymulatora, (2) przygotowanie ostrzy móżdżku, (3) wysokiej rozdzielczości rejestracji elektrofizjologicznych i (4) analizę danych. Wyniki reprezentatywne wskazują, że 11 dni stymulacji DBS w obszarze blachy szarej przywróciło aktywność spike’ów do normalnych poziomów w warstwach molekularnych, Purkiniego i ziarnistych, zgodnie z zaangażowaniem sieci móżdżku w dystonię. Protokół ten umożliwia szczegółową analizę aktywności móżdżku i jego modulację przez DBS, zapewniając platformę do badania mechanizmów na poziomie sieci leżących u podstaw terapii neuromodulacyjnych.
Wprowadzenie
Dystonia jest trzecim najczęstszym zaburzeniem ruchowym1 charakteryzującym się wyraźnymi objawami klinicznymi2,3, choć czasami może być mylona z innymi zaburzeniami motorycznymi4,5,6. Najbardziej wyraźnymi objawami klinicznymi są mimowolne skurcze mięśni, powtarzające się ruchy i nieprawidłowe i/lub skręcone położenie ciała7. Objawy te mogą towarzyszyć objawom takim jak ból, upośledzona sprawność motoryczna i zmęczenie, które mogą się pogarszać w okresach stresu, niepokoju lub wyczerpania fizycznego8,9,10,11. Patofizjologia dystonii nie jest w pełni zrozumiała12,13. Chociaż badania tradycyjnie koncentrowały się na jądrach podstawy, coraz więcej dowodów przemawia za pojęciem zaburzenia na poziomie sieci, obejmującym wiele obszarów mózgu, w tym móżdżek14,15,16,17. Niniejszy protokół ma na celu zbadanie aktywności sieci zewnątrzkomórkowej w różnych warstwach kory móżdżku, aby wyjaśnić ich rolę w patofizjologii dystonii oraz zrozumieć mechanizmy działania głębokiej stymulacji mózgu (DBS) na poziomie sieci.
Głęboka stymulacja mózgu (DBS), która ma na celu globus pallidus internus (GPi) lub jądro podwzgórzowe (STN), jest często stosowana w leczeniu niektórych form dystonii18,19, szczególnie tych opornych na leki. Dodatkowo, wyniki leczenia są zróżnicowane i nieprzewidywalne, ponieważ pacjenci z podobnymi objawami klinicznymi mogą reagować różnie na ten sam zabieg20. Bardziej kompleksowe zrozumienie sieci neuronowej leżącej u podstaw dystonii mogłoby poprawić wyniki leczenia21. Dlatego potrzebne są duże i eksperymentalne podejścia, które można osiągnąć jedynie poprzez badania przedkliniczne na modelach zwierzęcych. Łączenie eksperymentów in vivo z DBS z zapisami ex vivo wysokogęstościowych tablic mikroelektrodowych (HD-MEA) umożliwia wysokorozdzielcze monitorowanie działalności sieci neuronowej (prawie) fizjologicznej, aby lepiej zrozumieć patofizjologię dystonii i mechanizmy DBS.
Jądra podstawy i móżdżek wpływają na kontrolę ruchów, przynajmniej częściowo, poprzez swoje połączenia z pierwotną korą ruchowo-czuciową (M1)22. Anatomiczne badanie z uszkodzeniem zwojów czuciowych i chirurgicznym usunięciem móżdżku potwierdza tę hipotezę23. W naszym badaniu wykorzystujemy model zwierzęcy dystonicznego chomika dtsz24,25, który wykazuje nieprawidłowości w móżdżku związane z dystonią26. Za pomocą tablic mikroelektrodowych o wysokiej gęstości (HD-MEA) badaliśmy aktywność sieci korowej móżdżku u dystonicznych i zdrowych chomików. Jednak konwencjonalne podejścia elektrofizjologiczne nie mają odpowiedniej rozdzielczości przestrzennej, aby uchwycić dynamiki sieci specyficzne dla warstwy, podczas gdy ta metoda radzi sobie z tym ograniczeniem. Z drugiej strony, badaliśmy wpływ głębokiej stymulacji mózgu w globus pallidus internus na korowe sieci móżdżku.
System HD-MEA oferuje zaletę szczegółowych zapisów elektrofizjologicznych w sposób równoległy, umożliwiając analizę w warstwach kory móżdżku (warstwa ziarnista, Purkinje i warstwa cząsteczkowa), przy czym każda warstwa odgrywa istotną rolę w przetwarzaniu sekwencji ruchowych27. Warstwa ziarnista, gęsto wypełniona komórkami granulowanymi, odbiera i przekazuje informacje czuciowe i motoryczne z włókien mozzowych, umożliwiając początkową integrację sygnału przed dalszym przetwarzaniem27. Warstwa Purkinje, zawierająca komórki Purkinje, przekazuje sygnały hamujące do głębokich jąder móżdżku, gdzie warstwa ziarnista i cząsteczkową modulują wychodzący sygnał. Warstwa cząsteczkową, bogata w dendryty i interneurony, wspomaga złożoną modulację poprzez interakcje synaptyczne z komórkami Purkinje, precyzyjnie dostosowując wydajność motoryczną28. HD-MEA, w przeciwieństwie do innych technik rejestracji, nie jest ograniczony rozdzielczością przestrzenną ani obszarem próbkowania, co pozwala na uchwycenie unikalnych wkładów każdej warstwy w zmienionej dynamice neuronowej obserwowanej w dystonii15. To podejście zapewnia wyższą rozdzielczość przestrzenną i możliwości rejestracji równoległej w porównaniu z metodami rejestracji jednoelektrodowych lub o niskiej gęstości. Istnieją systemy HD-MEA oparte
Protokół
Użyj dystonicznego dtsz chomiki i kontrolne chomiki syryjskie złote do eksperymentów26Razem w badaniu analizowano cztery grupy eksperymentalne: (1) nietorbiowe chomiki kontrolne (typ dziki, WT), (2) nietorbiowe chomiki leczonesz chomiki, (3) dtsz– placebo (przeszło implantację, ale bez aktywnej stymulacji) oraz (4) dtsz-DBS (z ciągłym DBS) in vivo przez 11 dni przed przygotowaniem przekrojów). Wszystkie eksperymenty na zwierzętach przeprowadzono zgodnie z dyrektywą UE 2010/63/EU oraz ustawami federalnymi dotyczącymi ochrony zwierząt, na podstawie licencji 7221.3-1-029/20.
1. Zwierzęta
- Utrzymuj zwierzęta w standardowych warunkach GV Solas33 w 14 10 godz. światła/ w cyklu ciemnym, z dostępem do wody i pokarmu (standardowa dieta dla chomika, Altromin)
- Przesiej dtsz chomiki mutanty pod kątem objawów dystonii przy użyciu techniki trójstymulacji26, w wieku 20 lat ± 1 i 27 ± 4 dni
UWAGA: Standardowa procedura łagodnego stresu polega na usunięciu chomika z jego domowej klatki i przeniesieniu do nowej, pustej klatki, po czym wykonuje się dożołądkowe lub podskórne wstrzyknięcie roztworu soli fizjologicznej oraz krótkotrwałe pozbawienie snu. Sekwencja tych łagodnych bodźców wywołujących lęk skutecznie indukuje napady dystonii z odtwarzalnym okresem inkubacji, dlatego też stosuje się ją do badań fenotypowych przed zakwalifikowaniem do grup eksperymentalnych. Chomiki kontrolne bez dystonii poddawane są tej samej procedurze, aby zapewnić porównywalne warunki eksperymentalne pomiędzy grupami. - W celu osiągnięcia działania przeciwbólowego leczono zwierzęta linii dtsz– Fikcyjne leczenie i dtsz- grupy DBS z 100 mg·kg-1 metamizol doustnie (p.o.). Zaimplantuj obie grupy zgodnie z poniższym opisem procedury chirurgicznej.
2. Enkapsulacja systemu stymulacji STELLA
- Systemy stymulacji STELLA są hermetyzowane za pomocą biokompatybilnego podejścia w celu ochrony urządzeń przed przedostawaniem się cieczy podczas długotrwałego wszczepienia. Elektronika umieszczona jest w niestandardowej, drukowanej w 3D kapsule z PETG.
- Zapieczętuj przestrzeń między pokrywką a kapsułką za pomocą silikonu.
- Dodatkowo uszczelnij obudowę silikonem w miejscu wychodu kabla.
- Jeśli po wyschnięciu widoczne są szczeliny w silikonie, powtórz kroki 1 i 2.
- Po pełnym stwardnieniu silikonu, przygotuj żywicę epoksydową w stosunku mieszania 100:35 (wagowo).
- Usuń pęcherzyki powietrza z żywicy pod próżnią (Vevor RS-1.5).
- Przed złożeniem formy nałóż cienką warstwę wazeliny na powierzchnię stykową samodzielnej formy silikonowej, aby poprawić uszczelnienie i ułatwić wyjmowanie po utwardzeniu żywicy epoksydowej. Umieść kapsułkę stymulatora w formie silikonowej i powoli wypełnij formę żywicą epoksydową, aż do całkowitego przykrycia stymulatora oraz połączeń kablowych. Unikaj powstawania pęcherzyków powietrza podczas wypełniania.
- Gdy żywica stwardnieje, wyjmij kapsułkę z formy i wygładź powierzchnię epoksydową za pomocą drobnoziarnistego pilnika lub narzędzia do polerowania, aby usunąć ostre krawędzie.
- Nałóż końcową, cienką warstwę silikonu na utwardzoną kapsułkę epoksydową, zanurzając kapsułkę w ciekłym silikonie. Za pomocą plastikowej pipety nałóż dodatkowy silikon wokół kabla w pobliżu strefy połączenia. Nadmiar skupiającego się silikonu należy usunąć patyczkiem przed utwardzeniem, aby uniknąć zbyt dużej grubości powłoki.
- Na końcu przeprowadź test funkcjonalności po inkapsułowaniu, aby zweryfikować poprawne wyjście sygnału stymulującego przed wszczepieniem lub użyciem eksperymentalnym. Umieść system stymulacji STELLA w roztworze Ringera’roztwór i aktywuj funkcję magnetyczną BIST. Potwierdź poprawny wzór migania diody LED (2 × 2), co wskazuje na prawidłowe wyprowadzenie sygnału stymulującego oraz brak zwarcia, przerwania obwodu lub niskiego poziomu naładowania baterii34.
3. Procedura chirurgiczna wszczepienia systemu stymulacji
- Przygotuj instrumenty chirurgiczne (Rycina 1oraz system stymulacji STELLA (modułowa platforma implantowalna zdefiniowana oprogramowaniowo)34.
- Zdezenfekuj przyrządy metalowe z Ryc. 1 na około 5 min przy 200 °C, np. za pomocą sterylizatora FST 250. Należy pamiętać, że przyrządy są gorące podczas ich wyjmowania.
- Zdezynfekuj system stymulacji STELLA z dwoma elektrodami DBS za pomocą 70 % etanolu. Umieść wysuszoną sondę stymulacyjną w probówce Falcon (50 mL, stożkowa) wypełnionej roztworem Ringera’roztwór przez noc
- Przygotuj zwierzę (w wieku 25 dni) –32 dni)
- Umieść komorę do znieczulenia (wykonaną samodzielnie) w klatce chomika. Po krótkim czasie chomik wchodzi do rurki dobrowolnie (Rycina 2A).
- Gdy chomik znajduje się w rurze, zamknij rurę z jednej strony i podłącz ją do wyjścia lotnego izofluranu na 1-2 minuty. min (indukcja narkozy z użyciem 4 % izoflurany) (Ryc. 2B).
- Delikatnie wyjmij zwierzę z cylindra. Umieść zwierzę na platformie o kontrolowanej temperaturze
powierzchnia (około 38) °C) i dopasować z maska do oddychania (GM-4; utrzymywanie narkozy za pomocą 3 % izofluran; sprawdź głębokość narkozy za pomocą odruchu międzypalcowego) - Ogolno obszar operacyjny na głowie odpowiednim nożyczkami do włosów (Rycina 2C). Oczyścić obszar za pomocą wilgotnego tamponu i wstrzyknąć 500 µL 0,25 % bupiwakainę podskórnie (s.c.) na skórę głowy w celu dodatkowej lokalnej anestezji nadkostnej. Odczekać co najmniej 5 min przed otwarciem skóry głowy.
- Przenieś ostrożnie zwierzę do ramy stereotaksycznej i zamocuj je za pomocą sztyftów do uszu w taki sposób, aby bregma i lambda znajdowały się na tym samym poziomie (zmniejsz stężenie izoflurany do 1,5%)–2.5 % na utrzymanie znieczulenia).
- Ochronić oczy za pomocą substytutu łez (TVM Ocry-Gel).
4. Zaimplantuj system stymulacji STELLA
- Przygotuj 2 nacięcie skóry dł. 1 cm w kierunku środkowym na skórze głowy. Retraktor (Ryc. 1, nr 14 oraz Ryc. 2D) odciąga skórę. Przygotuj czaszkę, lokalnie usuwając nadkostnicę za pomocą ostrza przez zadrapanie. Zatrzymaj ewentualne krwawienie za pomocą tamponów.
- Zastosuj 3 % H2O2 za pomocą patyczka z watą do szorstkowania
- Wyjmij system stymulacyjny z roztworu Ringera’s roztworu i zabezpiecz elektrody DBS folią parafinową.
- Wprowadź tępe nożyczki przez wykonane przed chwilą nacięcie skóry na głowie i utwórz 5 kieszonkę skórną o długości cm podskórnie w kierunku szyi i boku.
- Wprowadź stymulator, który został usunięty z Falcona i zanurzony w środku do dezynfekcji skóry.
- Zaaplikuj około 500 µL antybiotyku (10 mg·g-1 kwas fusydowy) do kieszonki skórnej za pomocą aplikatora z waty.
- Wywiert dwóch 7 otwory o średnicy mm (za pomocą FST#19007-07) w czaszce na elektrody DBS przy AP: −0.6 mm i ML: ± 2.2 mm według bregmy
- Wykonaj jeszcze dwa otwory (9 mm; FST#19007-09) na bokach każdego otworu elektrodowego. Wkręć cztery śruby (DIN 84 A2 M1x2) w przygotowane otwory (Rycina 2D).
- Zaimplantuj dwa elektrody DBS (SNEX-100) z DV: 6,0 mm według bregmy. Należy pamiętać, że uchwyt elektrody w danej ramie stereotaksycznej decyduje o tym, z której strony elektroda jest wszczepiana jako pierwsza (odległość między elektrodami wynosi 4,4 mm).
- Umocuj elektrodę za pomocą światłoutwardzalnego lepiszcza (Heliobond) do dwóch śrub. Gdy obie elektrody zostaną wszczepione, nałożono końcową warstwę światłoutwardzalnego lepiszcza pomiędzy nimi. Na końcu elektrody są zacementowane Compoglass Flow (Rycina 2E).
- Aktywuj stymulator grupy DBS magnetycznie po co najmniej trzech dniach okresu wypoczynku, przez ciągłe 11 dni stymulacji DBS. W tym badaniu wykorzystano parametry stymulacji podobne do stosowanych w praktyce klinicznej (130 Hz, 50 μA oraz 60 μs).
- Sprawdź wzór światła stymulatora, przesuwając nad szczerbakiem’bocznej części ciała za pomocą magnesu codziennie (Rycina 2F).
5. Przygotowanie ostrych przekrojów móżdżku
- Przygotuj 1 l sztucznej płyny mózgowej (ACSF) i 0,5 l roztworu sacharozy na jedno zwierzę (patrz Table 1 i Table 2 szczegóły).
- Użyj roztworu sacharozy w temperaturze około 4 °C podczas ekstrakcji mózgu i sekcji, z ciągłym nasycaniem karbogenem. Dodatkowo, przygotuj lodowaty, półpłynny roztwór sacharozy, aby utrzymać niską temperaturę tkanki podczas szybkiego preparowania.
- Przygotuj stanowisko pracy z narzędziami do sekcji, roztworem sacharozy, szalkami Petriego i zestawem do wibratomu (zobacz Rycina 3A).
- Zwierzęta' sacrificium musi mieć miejsce w ciągu około 15 minut po wyłączeniu DBS, a ekstrakcja móżdżku powinna zostać natychmiast rozpoczęta. Uśmiercić zwierzę w głębokiej narkozie wywołanej lotnym izofluranem. Umieścić głowę w większym naczyniu Petriego wypełnionym lodowatą, mokrą sacharozą
- Wykonaj sekcję mózgu, unikając cięć w kierunku środkowym przez kanał kręgowy, aby nie uszkodzić tkanki móżdżku.
- Przenieś mózg do nowej płytki Petriego wypełnionej lodowatym, półpłynnym roztworem sacharozy, z umieszczonym na dnie arkuszem bibuły filtracyjnej w celu zapobiegania poślizgowi móżdżku podczas krojenia.
- Najpierw usuń móżdżek, wykonując cięcie koronalne przez mostek za pomocą skalpela (Ryc. 3B). Następnie usuń półkule móżdżku za pomocą cięć pozabiegowych nożem (Ryc. 3C).
- Przygotuj płytkę wibratomu, kładąc na nią kroplę silikonowego kleju. Ostrożnie usuń zatokę móżdżku z płytki Petriego. Przyłóż płaszczyznę przekroju paramedianowego do bibuły, aby wysuszyć, zanim przykleisz tę stronęRycina 3D).
- Umieść płytkę wibratomu do tacki i wypełnij ją wystarczającą ilością sacharozy (pół ciekłej, pół w postaci roztworu), aby całkowicie zanurzyć wermis. Nie zapomnij nasycić roztworu karbogenem (CB).
- Wytnij przekroje móżdżku w płaszczyźnie paramedianowej o grubości 200 μm ze stałą prędkością 0,08 mm·s-1 (Rycina 3E). Przechowuj przekroje w ACSF w zlewkę ciągle nasycaną CB w temperaturze pokojowej (Rycina 3F).
- Pozwól plasterkom na regenerację w natlenionym ACSF w temperaturze pokojowej przez około 40 minut przed przeniesieniem do HD-MEA, co stanowi okres ponownego ogrzania i stabilizacji przed rozpoczęciem rejestracji. W tym czasie utrzymuj ACSF w temperaturze pokojowej.
6. Przygotowanie płytki rdzeniowejTM Pojedyncze dołko systemu BioCAM DupleX MEA do rejestracji
- Włącz system rejestrujący BioCAM DupleX za pomocą oprogramowania Brainwave 5 oprogramowanie (BW5) co najmniej 30 min przed rozpoczęciem eksperymentów.
- Przed umieszczeniem skrawka tkanki na płytce CorePlateTM Pojedyncza studzienka do rejestrowania, ocena poziomu szumów tła poprzez umieszczenie pojedynczej studzienki w układzie rejestrującym. Optymalny poziom szumów dla rejestracji wysokiej jakości powinien wynosić 9–20 µV.
- Oczyść płytki pokryte złotem za pomocą 100 % etanolu (Ryc. 4A-1), matryca elektrod z 70 % etanolu i miękką szczotkę (Ryc. 4A-2Na koniec przepłucz elektrodę matrycową wodą MilliQ.
- Podłącz HD-MEA/CorePlateTM Pojedyncza studzienka do systemu rejestracji (Rycina 4D-1).
- Pipetuj około 2 mL roztworu ACSF do dołka. Upewnij się, że na elektrodach ani na uziemieniu nie ma pęcherzyków powietrzaRycina 4D-2).
- Rozpocznij akwizycję w czasie rzeczywistym i rejestruj przez co najmniej 30 sekund z użyciem BW5.
7. Przeanalizuj amplitudę międzyszczytową
- Aby przeanalizować interfejs szumowy, otwórz zapisany plik *.bxr, który zawiera 30 sekundy rejestrowania szumu wewnętrznego (powstałego w wyniku rezystywnych składowych elektrod i obwodów wzmacniacza).
- Wybierz “Mapa aktywności” i, pod “Metryka,” wybierz Amplituda międzyszczytowa. Skala jest ustawiona na 500 µV, umożliwiając wizualizację zmienności sygnału wzdłuż matrycy elektrodRycina 5A).
- W "Mapa aktywności" okno, umieść kursor myszy nad zarejestrowaną elektrodą, aby wyświetlić "Szerokie średnie" wartość amplitudy
- Alternatywnie można określić średnią wartość amplitudy, tworząc plik Excela (*.xlsx) pod "Eksport wykresu" Następnie otwórz ten plik w programie Excel i oblicz średnią wartość amplitudy [=ŚREDNIA(Liczba1;Liczba2;...)].
8. Przeanalizuj szum podstawowy (odchylenie standardowe sygnału))
- Przeanalizuj szum podstawowy, klikając "Odtwarzanie" aby wygenerować plik *.brw. Następnie wybierz "Mapa aktywności" i pod "Metryka" wybierz "Odchylenie standardowe"Skala jest automatycznie ustawiana na 30 µV, umożliwiając wizualizację zmienności sygnału wzdłuż matrycy elektrodRycina 5B).
- W "Mapa aktywności" okno, najedź kursorem na zarejestrowany elektrodę, aby wyświetlić "Szerokie średnie" odchylenie standardowe
- Alternatywnie można określić średni odchylenie standardowe, używając "Eksport wykresu" i utwórz plik Excel o rozszerzeniu *.xlsx. Następnie otwórz plik Excel i oblicz średnią odchylenie standardowe [=ŚREDNIA(Liczba1; Liczba2;...)].
9. W celu oceny jakości sygnału:
- Oblicz stosunek sygnału do szumu (SNR)
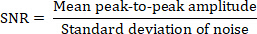
SNR ≥ 5: Dobra jakość
SNR pomiędzy 2 a 5: Jakość średnia
SNR < 2: Niska jakość
10. Pozycjonowanie wycinka w jednodobowej płytce CorePlate w celu pozyskiwania danych
- Za pomocą pipety Pastewra umieść przekrój na matrycy elektrod tak, aby obszar zainteresowania był pokryty elektrodami rejestrującymi (Ryc. 4 B-1). Usuń roztwór z dołka (Ryc. 4 B-2). Wykonaj zdjęcie za pomocą mikroskopu pionowego.
- Utrwal tkankę za pomocą kotwicy do przekrojów (Rycina 4C).
- Korzystanie z 3 mL pipety Pastera, dodaj jedną kroplę ACSF do przekroju.
- Usuń ciecz za pomocą pipety Pastoura o mniejszej objętości. Pozostałą ciecz usuń za pomocą skręconego kawałka papieru (powtarzaj 7–10 razy) razy) (Rycina 4C-2).
- Do perfuzji podczas rejestracji użyj ACSF w temperaturze pokojowej i ustaw szybkość na 2 mL·min-1Pozycja dopływu znajduje się nad przekrojem tkankowym, a odpływ – przy dołku'ściana sRycina 4D).
- Dodatkowe uziemienie dopływu i odpływu jest zalecane w celu zminimalizowania szumów wywołanych perfuzją, co można osiągnąć poprzez połączenie ich z systemem rejestracji za pomocą przewodu (Rycina 4D-1).
- Aby zmniejszyć zakłócenia, wyłącz mikroskop i światło w pomieszczeniu's światłami.
11. Rejestracja aktywności sieci za pomocą płytki CorePlateTM Pojedyncza studzienka
- Ustaw parametry nagrywania na częstotliwość próbkowania 20 000 Hz z filtrem górnoprzepustowym o częstotliwości 100 Hz.
- W oprogramowaniu BrainWave 5 przejdź do pliku i otwórz nową sesję nagrywania.
- Kliknij “Źródło”.
- Otwórz: pilot chipai wybierz następujące korekty:
Rejestracja samoistnej aktywności neuronalnej z częstotliwością próbkowania: 20 000 Hz/elektroda.
Częstotliwość graniczna górnoprzepustowego filtru sprzętowego: 100 Hz
Szybkość kompensacji światła: krótka (bezpośrednie naświetlanie).
- Aby wybrać kanał kalibracji chipu oraz typ surowego przebiegu.
- Otwórz: Sygnał sterującyi wybierz: Wewnętrzna kalibracja chipu, wybierz kanał wyjściowy: 1.1.
- Kliknij “+” i “Tworzenie wykresów”.
- Otwórz: Ustawienia wykresu.
- Wybierz surowe przebiegi: surowe i wyładowania.
12. Wstaw i wyrównaj obraz z mikroskopu na mapie aktywności
- Kliknij na “+”.
- “Warstwy i adnotacje” aby wstawić obraz z mikroskopu do mapy aktywności na BW5:
- Przejdź do Warstwy:
- Wybierz zarządzaj warstwami oraz obraz móżdżku.
- Wyrównaj wybraną warstwę obrazu: kliknij rozpocznij.
- Kliknij w cztery rogi obrazu zgodnie z sekwencją numeryczną i zatwierdź.
13. Konfiguracja kompresji danych przed nagrywaniem
- Aby skompresować dane, przejdź do pierwszej strony RECORDER:
- Tryb kokpitu: zaawansowany
- Zapisz surowe skompresowane dane: kompresja falkowa + zdarzenia: potencjały.
- Odtwarzaj przez 10 minut przed rozpoczęciem nagrywania.
- Oczyść płytki pokryte złotem za pomocą 100 % etanolu po zakończeniu rejestracji. Następnie napełnij studzienkę czystą wodą i szczotkuj przez 30 s.
- Następnie wypełnij studzienkę 70-procentowym etanolem i delikatnie szczotkuj matrycę elektrod około 30 sekund. Na końcu wypełnij studzienkę czystą wodą i delikatnie szczotkuj przez 30 s (powtórz ten krok 2 lub 3 razy).
- Zachowaj płytę podstawowąTM Wysuszyć pojedynczą dołkę w odpowiednim pojemniku.
14. Analiza w trybie offline zarejestrowanych danych
- Otwórz żądany plik za pomocą BW5.
- Podziel korę móżdżku na trzy grupy, wybierając elektrody zgodnie z przypisaniem do warstw anatomicznych (warstwa molekularna, warstwa komórek Purkinjego, warstwa komórek ziarnistych).
UWAGA: Liczba elektrod w obrębie obszarów zainteresowania (ROI) w poszczególnych warstwach zależała od aktywności spoczynkowej wykrytej w każdej warstwie i w związku z tym różniła się w zależności od nagrania. Zazwyczaj analizowano 25–250 elektrod na ROI z pojedynczego plasterka. Wykluczono elektrody położone w obszarach obejmujących dwie warstwy anatomiczne, aby uniknąć niejednoznaczności przypisania warstwy. Do dalszej analizy uwzględniono wyłącznie elektrody jednoznacznie przypisane do jednej konkretnej warstwy móżdżku.- Wybór i grupowanie: Przejdź do Grupy jednostek.
- W obszarze Zarządzanie grupami jednostek kliknij “+” utworzyć jedną grupę i nadać jej nazwę.
- Aby dołączyć więcej elektrod do grupy, zaznacz elektrody i kliknij “dodaj lub usuń wybrane jednostki”.
- Analizuj surowe sygnały za pomocą metody wykrywania potencjałów czynnościowych, znanej jako precyzyjna metoda wykrywania potencjałów czynnościowych (PTSD). Metoda ta koncentruje się na wykrywaniu maksimów i minimów lokalnych o amplitudach międzyszczytowych przekraczających ustalony próg, zapewniając precyzyjną i dokładną identyfikację potencjałów czynnościowych.
- Przetwarzanie danych: przejdź do Wykrywanie potencjałów czynnościowych i ustaw tryb na zaawansowany.
- Użyj danych z: Raw.
- Algorytm: PTSD (dokładne wykrywanie potencjałów czynnościowych w określonym czasie).
- Czynnik odchylenia standardowego: 8,0.
- Okres maksymalnego czasu życia: 2,0 ms
- Okres refrakcyjny: 1,0 ms.
- Przypisanie sygnału: pik ujemny.
- Czas trwania fali przed szczytem: 1,0 ms.
- Czas trwania fali po osiągnięciu szczytu: 1,5 ms
- Przejdź do Sortowanie sygnałów neuronalnych i ustaw tryb na zaawansowany. Dostosuj następujący parametr:
- Czas trwania fali przed szczytem: 0,5 ms.
- Czas trwania fali po szczytowej: 1,0 ms
- Algorytm ekstrakcji cech: momenty Legendre'a.
- Liczba cech: 3.
- Algorytm grupowania: K-średnich & Sylweta
- Minimalna liczba pików na klastrze: 20.
- Maksymalna liczba klastrów: 3.
- Próg konturu: 2.
- Eksportowanie danych do Excela.
- Kliknij “Tworzenie wykresów”.
- Przejdź do Eksport wykresu.
- Wybierz arkusz kalkulacyjny i wyeksportuj.
Wyniki
DBS obszaru pallidum zwiększył liczbę impulsów (spike'ów) do poziomów prawidłowych w warstwach korowych pomiędzy grupami.
Przeanalizowano całkowitą liczbę impulsów (spikes) w trzech warstwach kory móżdżku — warstwie molekularnej (ML), warstwie komórek Purkinjego (PL) i warstwie ziarnistej (GL) — w czterech grupach doświadczalnych: dzikiej (WT, N = 8), dtsz (N = 8), dtsz-Sham (N = 7) oraz dtsz-DBS (N = 7), przy czym analizy przeprowadzono na skrawkach uzyskanych od tych zwierząt.
Podczas gdy tkanka dystoniczna (dtsz) generowała znacznie mniej impulsów (spikes), pallidalna DBS zwiększyła ich liczbę do poziomów porównywalnych z grupą kontrolną zdrowych osobników (Tabela 3). Test H Kruskala-Wallisa potwierdził to dodatkowo, wykazując statystycznie istotny wzrost liczby impulsów w ML dla grupy dtsz DBS w porównaniu z grupami dtsz oraz dtsz-Sham (χ2(3) = 20.728, p = 0.001; Rycina 6A). Grupa dtsz-DBS wykazała również podobny wzrost liczby impulsów w PL (χ2(3) = 16.855, p = 0.001; Rycina 6B) oraz GL (χ2(3) = 13.164, p. = 0.004; Rycina 6C), osiągając wartości porównywalne z grupą WT (Tabela 3).
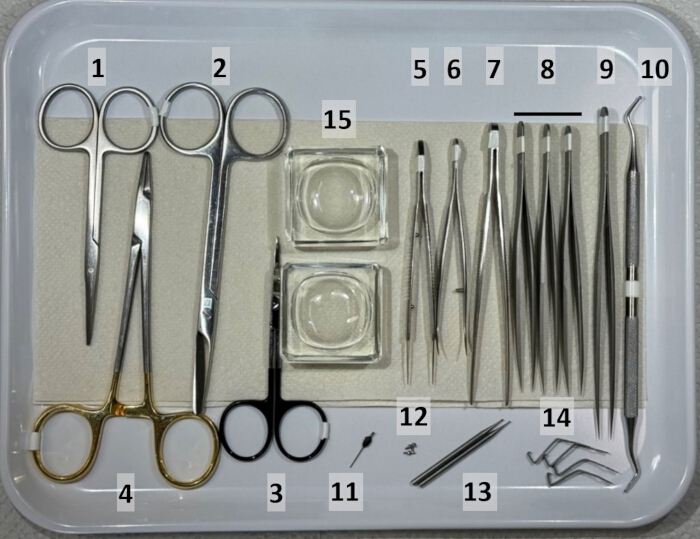
Rycina 1. Przegląd instrumentów chirurgicznych. Na obrazie przedstawiono ułożoną tacę zawierającą zestaw instrumentów chirurgicznych i mikrochirurgicznych zaprojektowanych specjalnie do zabiegów obejmujących implantację głębokich elektrod i stymulatorów. Instrumenty są zorganizowane w kolejności użycia, co zwiększa wydajność procedury. Są one umieszczone na tkaninie w celu zachowania czystości i zapewnienia łatwego dostępu podczas zabiegu. Taki układ koncentruje się na precyzji, sterylności i gotowości do złożonego przebiegu operacji. (1) Nożyczki tępe/tępe, (2) Nożyczki do szwów, (3) Nożyczki ostre/ostre, (4) Igłotrzymacz, (5) Pinceta do wiązania szwów, (6) Pinceta do drzazg/zakrzywiona, (7) Pinceta ząbkowana, (8) Pinceta standardowa krótka, (9) Pinceta standardowa długa, (10) Mikrołopatka, (11) Elektroda wielokrotnego użytku, (12) Śruby, (13) Akcesoria do wiertarki, (14) Końcówka retraktora/zacisk, (15) Szklany blok jamowy do napełnienia 0.9 % NaCl i ksylokainą. Więcej informacji znajduje się w liście materiałów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
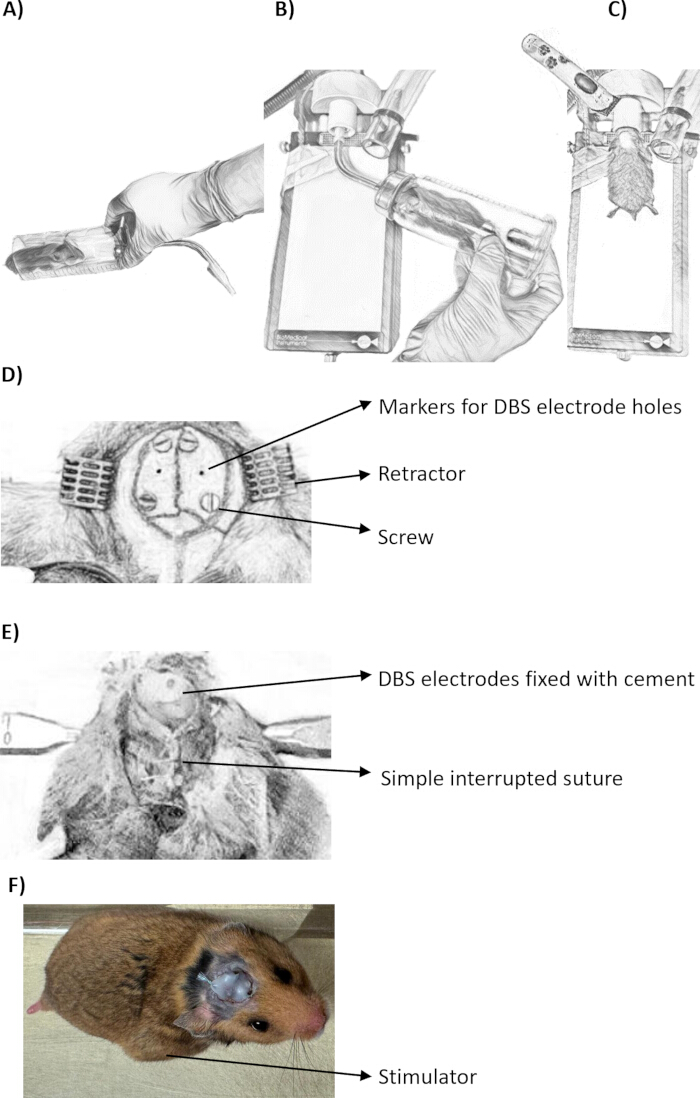
Rysunek 2. Układ eksperymentalny do znieczulania i pozycjonowania zwierzęcia w aparacie stereotaksycznym w celu implantacji elektrod DBS i stymulatora. (A) Zwierzę jest delikatnie umieszczane w specjalnie wykonanej komorze indukcyjnej w celu rozpoczęcia znieczulenia. (B) Komora indukcyjna jest połączona z maską oddechową, aby zapewnić prawidłowe podanie znieczulenia (indukcja izofluranem w stężeniu 4%) przy jednoczesnym zachowaniu bezpieczeństwa podczas manipulacji. (C) Po znieczuleniu zwierzę zostaje przeniesione na płytkę grzewczą z podłączoną maską oddechową (podtrzymanie izofluranem w stężeniu 3%), aby zapobiec hipotermii i zapewnić ciągłe znieczulenie podczas golenia. (D) Zwierzę jest ostrożnie pozycjonowane w ramie stereotaksycznej. Wykonuje się cięcie podłużne, a następnie używa kleszczyków do odciągnięcia skóry. Cztery kropki wskazują miejsca umieszczenia śrub. Śruby są wkręcane w zaznaczone obszary, a dwie dodatkowe kropki są zaznaczone w celu umieszczenia elektrod. (E) Elektrodę wprowadza się do GPi i mocuje klejem przed usunięciem uchwytu stereotaksycznego. Dla lepszej stabilizacji wokół elektrod nakłada się cement. Do zamknięcia miejsca operacyjnego stosuje się przerywane szwy podłużne, a (F) stymulator jest umieszczany w podskórnej okolicy boku zwierzęcia. Zwierzę pozostaje żywe po operacji, a strzałka wskazuje lokalizację stymulatora. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
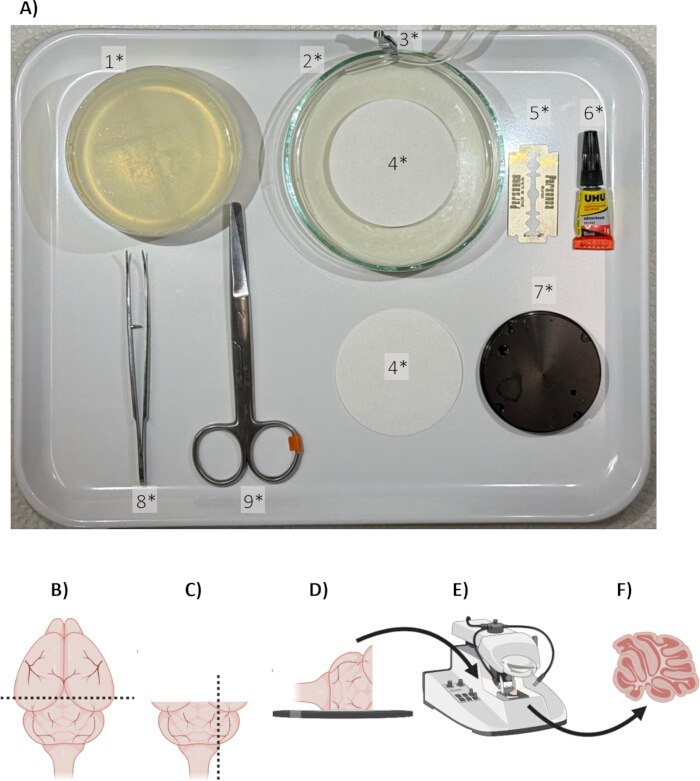
Rysunek 3. Ilustracja sekcjonowania i krojenia mózgu. (A) narzędzia chirurgiczne do procedury wycinania. (1*) domowej roboty szalka Petri z agarem, (2*) szalka Petri z agarem, (3*) zacisk mocujący rurkę z karbogenem, (4*) filtr papierowy, (5*) ostrze, (6*) superglue, (7*) płytka/uchwyt do wibratomu, (8*) pęseta zakrzywiona, (9*) nożyczki, ostre/tępe. (B) przygotowanie próbki mózgu: po wycięciu mózg zostaje przecięty, a linie przerywane wskazują orientację sekcjonowania w płaszczyźnie wieńcowej. (C) sekcjonowanie parasagitalne: mózg jest przecinany wzdłuż określonej płaszczyzny parasagitalnej. (D) fiksacja tkanki: otrzymana tkanka mózgowa jest przyklejana do płytki/uchwytu za pomocą kleju, aby zabezpieczyć ją przed precyzyjnym sekcjonowaniem. (E) sekcjonowanie wibratomem: płytka z przytwierdzoną tkanką zostaje przeniesiona do wibratomu, gdzie uzyskuje się ultrascienkie plastry (200 µm). (F) końcowe plastry: uzyskano precyzyjne parasagitalne plastry móżdżku, gotowe do rejestracji elektrofizjologicznej35. Aby uzyskać więcej informacji, zapoznaj się z listą materiałów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
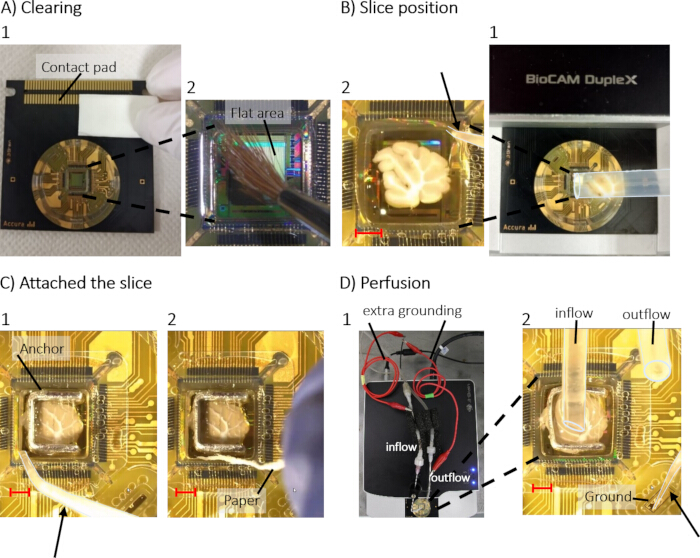
Rysunek 4Ilustracja kroków prowadzących do uzyskania dobrej aktywności komórek. (A) Czyszczenie: Ten etap polega na przygotowaniu HD-MEA poprzez oczyszczenie jego powierzchni, aby mieć pewność, że żadne zanieczyszczenia nie będą zakłócać przywierania (pad kontaktowy, A-1) lub proces rejestracji (obszar płaski, A-2). (B) Pozycja skrawka: Skrawka tkanki ostrożnie umieszcza się na HD-MEA (B-1), zapewniając odpowiednie ustawienie w celu uzyskania efektywnego kontaktu z elektrodą (B-2). Do usunięcia pozostałego ACSF (strzałka) używa się cienkiej końcówki pipety, co umożliwia wprowadzenie kotwicy. (C) Mocowanie skrawka: skrawek zostaje stabilnie umieszczony na HD-MEA za pomocą kotwicy. Na tym etapie kluczowe jest naniesienie kropli ACSF, a następnie ostrożne usunięcie nadmiaru cieczy za pomocą pipety (C-1; strzałka) i skręcony kawałek precyzyjnej chusteczki do przecierania (C-2). Zapewnia to stabilność skrawka oraz jego dobre połączenie z elektrodami w celu uzyskania dokładnego zapisu. (D) Perfuzja: Na koniec podłącza się i uruchamia system perfuzyjny w celu utrzymania żywotności skrawka tkanki podczas eksperymentu, przy czym dopływ musi znajdować się nad skrawkiem, a odpływ blisko ścianki (D-2). Niezbędne jest również usunięcie wszystkich pęcherzyków powietrza z uziemienia, aby zminimalizować szumy podczas rejestracji (wskazane strzałką). Dodatkowe uziemienie jest przymocowane zarówno do rurki dopływowej, jak i odpływowej (D-1). Czerwone paski skali odpowiadają 1,5 mm długości. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
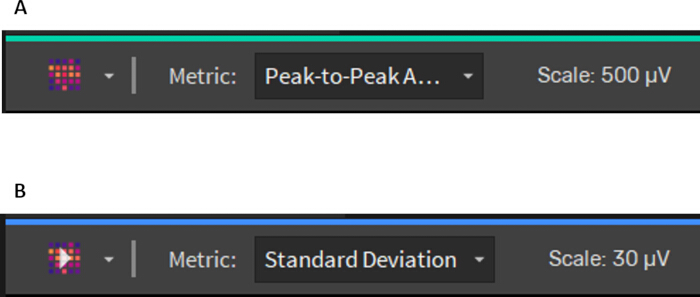
Rysunek 5. Metryki amplitudy i odchylenia standardowego w rejestracjach HD-MEA z wykorzystaniem oprogramowania Brain Wave 5 (BW5) do oceny jakości sygnału. (A) Wybrana metryka amplitudy szczyt-szczyt (Peak-to-Peak Amplitude) w celu wyodrębnienia wewnętrznych wartości amplitudy elektrod (skala: 500 µV). (B) Wybrana metryka odchylenia standardowego (Standard Deviation) w celu ilościowego określenia szumu tła we wszystkich elektrodach (skala: 30 µV). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
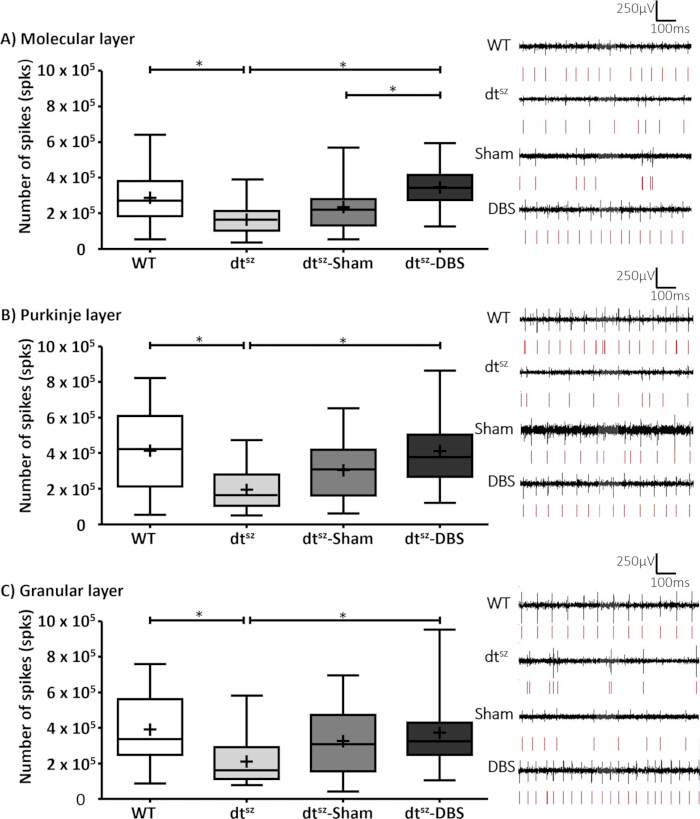
Rysunek 6: Wpływ pallidalnej DBS na aktywność kolców w warstwach kory móżdżku: (A) warstwa molekularna (ML), (B) warstwa komórek Purkinjego (PL) oraz (C) warstwa ziarnista (GL). Wykresy pudełkowe przedstawiają odpowiednio średnią i medianę (oznaczone krzyżykiem i linią poziomą) wraz z 25. i 75. percentylem. Poszczególne grupy to: typ dziki (WT, n = 22 skrawków), dtsz bez operacji (n = 20 skrawków), dtsz z nieaktywną DBS (Sham, n = 20 skrawków) oraz dtsz z aktywną DBS (n = 20 skrawków). Istotność statystyczną określono za pomocą testu Kruskala-Wallisa, a następnie przeprowadzono porównania parowe testem Dunna (*p .< 0.05). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Nazwa | Masa cząsteczkowa [g/mol] | Stężenie końcowe [mol/l] |
| NaCl | 58.44 | 0.124 |
| KCl | 74.55 | 0.003 |
| Glukoza | 180.16 | 0.01 |
| CaCl₂2 (bezwodny) | 110.98 | 0.0025 |
| NaHCO₃3 | 84,007 | 0.026 |
| NaH2PO4 | 119.98 | 0.00125 |
| pH | 7,35 do 7,40 (regulowane za pomocą HCl) | |
| Osmolalność [mosmol/kg] | od 290 do 300 | |
Tabela 1: Roztwór sztucznego płynu mózgowo-rdzeniowego (ACSF): Skład i końcowe stężenia molowe składników wykorzystanych do przygotowania ACSF do eksperymentów na skrawkach móżdżku. pH skorygowano do poziomu 7,35–7,40 za pomocą HCl, a osmolalność utrzymano w zakresie 290–300 mOsm·kg-1.
| Nazwa | Masa molowa [g/mol] | Stężenie końcowe [mol/L] |
| Sacharoza | 342.30 | 0.075 |
| KCl | 74.55 | 0.0025 |
| NaCl | 58.44 | 0.087 |
| CaCl2 (bezwodny) | 110.98 | 0.0005 |
| MgCl2 | 95.21 | 0.007 |
| Glukoza | 180.16 | 0.01 |
| NaHCO3 | 84.01 | 0.025 |
| NaH2PO4 | 119.98 | 0.00125 |
| pH | 7.35 do 7.40 (regulowane za pomocą HCl) | |
| Osmolalność [mosmol/ kg] | 320 do 330 | |
Tabela 2: Roztwór sacharozy.Skład i końcowe stężenia molowe roztworu sacharozy wykorzystywanego podczas przygotowywania przekrojów móżdżku. pH dostosowano do przedziału 7,35–7,40, a osmolalność utrzymano na poziomie 320–330 mOsm·kg-1.
| Grupy: | typ dziki | dtProszę podać tekst źródłowy do tłumaczenia. | dtProszę podać tekst źródłowy w języku angielskim, który ma zostać przetłumaczony na język polski.-Pozorne (grupa kontrolna) | dtProszę podać tekst źródłowy do tłumaczenia.-DBS |
| n | 22 | 20 | 20 | 20 |
| Współczynnik zmienności | ||||
| Uczenie maszynowe | 0.53 | 0.55 | 0.6 | 0.35 |
| Proszę podać tekst źródłowy w języku angielskim, który należy przetłumaczyć na język polski. | 0.57 | 0.57 | 0.52 | 0.46 |
| GL | 0.48 | 0.66 | 0.61 | 0.51 |
| Liczba kolców | ||||
| Uczeniem maszynowe | 287240±32605 | 163434±19998 | 234209±31284 | 345915±27113 |
| Proszę podać tekst źródłowy do tłumaczenia. | 413223±50171 | 194277±24786 | 304568±35692 | 412707±42509 |
| GL | 390817±40139 | 211274±31193 | 325533±44318 | 373208±42220 |
Tabela 3: Podsumowanie parametrów impulsów (spike metrics) w poszczególnych warstwach móżdżku i grupach eksperymentalnych. WT – chomiki typu dzikiego, grupa kontrolna niedystoniczna; dtsz - chomiki natywne dtsz; dtsz-DBS - chomiki dtsz stymulowane w sposób ciągły przez 11 dni; dtsz-Sham - chomiki dtsz poddane operacji, lecz bez aktywnej stymulacji DBS; ML – warstwa molekularna; PL – warstwa komórek Purkinjego; GL. – warstwa ziarnista.
Dyskusja
Opisaliśmy metodologiczne podejście do badania mechanizmów stymulacji głębokiej mózgu (DBS) w patofizjologicznej dystonicznej sieci neuronowej u chomika dtsz. Krytyczne kroki obejmują precyzyjne wszczepienie elektrod, szybkie przygotowanie przekrojów móżdżku oraz stabilne warunki rejestracji HD-MEA, aby zapewnić niezawodne pozyskiwanie danych. Przedstawiamy procedurę chirurgiczną, przygotowanie przekrojów móżdżku, techniki rejestracji i analizy, aby zbadać ex vivo aktywność móżdżku i jego modulacja przez DBS. Pomiary elektrofizjologiczne za pomocą HD-MEA zapewniają rejestrację aktywności samoistnej móżdżku w czasie rzeczywistym z wysoką rozdzielczością czasową i przestrzenną36, które uważamy za konieczne do zbadania mechanizmów stymulacji głębokiej mózgu w leczeniu dystonii.
Dystonię obecnie zna się jako zaburzenie sieciowe charakteryzujące się nieprawidłową aktywnością motoryczną wynikającą z dysfunkcyjnych interakcji między zwojami bazalnymi, móżdżkiem i korą37,38. Zaburzenia móżdżku okazały się odgrywać istotną rolę w dystonii, co potwierdzają zarówno badania kliniczne jak i eksperymentalne15,22,39. Ponadto anatomiczne badanie z wykorzystaniem wstrzyknięcia wirusa wścieklizny (RV) do kory móżdżku u małp Cebus pokazuje, że jądro podwzgórzowe zwojów bazalnych ma znaczne projekcje do kory móżdżku40. Te odkrycia podkreślają znaczenie badania obwodów móżdżku obok sieci zwojów bazalnych podczas badania mechanizmów terapeutycznych DBS40,41,42. Ta metoda jest szczególnie odpowiednia do badań nad interakcjami neuronów i efektami neuromodulacji w zaburzeniach ruchowych.
Jeśli chodzi o mechanizmy DBS na poziomie sieci, badania wykazały, że DBS wewnętrznego segmentu jądra blaszki środkowej (GPi) wywołuje rozległe zmiany w aktywności mózgu, nie tylko w obrębie zwojów bazalnych, ale także w rejonach połączonych, takich jak sieć kortyko-wzgórze43, wzgórze44 i móżdżek15. Te obserwacje potwierdzają hipotezę, że DBS jądra blaszki środkowej może modulować aktywność w całej sieci zwojów bazalnych i móżdżku, co przyczynia się do jego terapeutycznej skuteczności w leczeniu dystonii. To pokazuje potrzebę badań przedklinicznych w celu zbadania mechanizmów DBS i zalety rejestracji HD-MEA w rejestrowaniu zmian elektrofizjologicznych na poziomie sieci. Ponadto badanie Kotyry i wsp. (2025) potwierdza obecność długotrwałej remodelacji neuroplastycznej wywołanej dłuższym DBS jądra blaszki środkowej w obrębie dystonicznej sieci ruchowej45. Wyniki in vivo pokazały, że stymulacja jądra blaszki środkowej stopniowo zmniejszała nasilenie dystonii u chomika dtsz i że korzystny efekt utrzymywał się po zaprzestaniu stymulacji, co sugeruje, że efekty wywołane przez DBS nie ograniczają się tylko do ostrej stymulacji45. Ponadto ostatnie badania elektrofizjologiczne wykazały rozległą modulacje plastyczności synaptycznej i wzorców wyładowań po dłuższym DBS, w tym zwiększoną aktywność móżdżku15, wzmożone pobudzeniowe wejścia do neuronów wzgórzowych i bardziej zgrupowane pobudzeniowe wejście do kory M146.
Reprezentatywne wyniki wskazują na wpływ stymulacji głębokiej mózgu (DBS) na całej sieci, co potwierdza normalizacja aktywności wyładowań w warstwach molekularnych, Purkinje'a i granulowanych komórek kory móżdżku u chomika dystonicznego (Rysunek 6). Zwiększona aktywność wyładowań obserwowana w grupie dtsz DBS osiągnęła poziomy porównywalne z kontrolami typu dzikiego. Ta normalizacja aktywności wyładowań potwierdza potencjał terapeutyczny DBS w leczeniu dystonii. Warto zauważyć, że grupa dtsz-Sham wykazała wartości wyładowań pośrednie w porównaniu z grupą WT na wszystkich warstwach kory móżdżku, co sugeruje, że samo wszczepienie elektrod może wpływać na aktywność sieci móżdżku. Ta interpretacja jest zgodna z klinicznie opisanym efektem mikrolezji w dystonii, gdzie samo wszczepienie elektrod może przejściowo poprawić objawy przed rozpoczęciem stymulacji47. Chociaż chomik dtsz odtwarza kluczowe cechy paroksysmalnej ogólnej dystonii, nie odzwierciedla w pełni klinicznej heterogeniczności obserwowanej w zespołach dystonii u ludzi. Dlatego należy zachować ostrożność przy translacji tych wyników na dystonię u ludzi.
Niniejsza praca dotyczy wyzwań technicznych związanych z enkapsulacją stymulatora, operacją DBS, przygotowaniem przekrojów i analizą danych elektrofizjologicznych na dużą skal
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie jest wspierane przez Fundację Badań Niemieckich (DFG) w ramach Wspólnego Centrum Badań Naukowych (SFB 1270/1,2 ELAINE 299150580).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 3% H2O2 | Caelo | 15301730 | |
| 50 ml conical tube | Greiner Bio-One | Falcon-type conical tube | |
| Agar Petri dish | Handmade | ||
| Anaesthesia Unit | BioMedical Instruments | Univentor 1200 | |
| BioCam DupleX | 3Brain | BioCAM DupleX | CMOS-HD-MEA platform |
| Blade (5*) | Apollo Herkenrath | 09-025-056 | |
| Brainwave Software 5 | 3Brain | Version 5 | CMOS-HD-MEA platform |
| Breathing mask | Narishige | GM-4 | |
| Bulk Fill Flowable: Compula Refill | Dentsply Sirona | 267-0195 | For cement |
| Capsule Dispenser Gun | Dentsply Sirona | 296-0003 | For cement |
| Carbogen | Air Liquide | Air Liqiuide (House system) | |
| Cavity Block Glass | AIM | AIM | 40 mm x 40 mm |
| Clamp (3*) | DIEFFENBACH | 12-1003-04 | stainless steel 4cm |
| Computer | Dell | Precission 3431 | |
| CorePlateTM 1W 38/60 | 3Brain | Accura HD-MEA | CMOS-HD-MEA chip |
| Drill accessory (13) | FST | 19007-07 | Tip: 7mm |
| Drill accessory (13) | FST | 19007-09 | Tip: 9mm |
| Eco wipes - wipe dispenser | Dr Schumacher | 00-915SE001 (1x1) | |
| Eco wipes - wipe rolls | Dr Schumacher | 00-915SE001 (6x1) | |
| ELASTOSIL | Wacker | RT 601 A/B | |
| Electrode | Microprobes | SNEX-100 | |
| Ethanol | Carl Roth GmbH + Co. KG | Art-Nr. T913.3 | |
| Excavator (10) | HLW Dental-Instruments Germany | S-10.28-6 | |
| Forceps (5) | FST | 18025-10 | Stainless Steel 10cm |
| Forceps (6) | Aesculap | BD311R | 9cm |
| Forceps (7) | FST | 91100-12 | Stainless Steel 12cm |
| Forceps (8) | FST | 11231-20 | Stainless Steel 11cm |
| Forceps (8*) | Karl Hammacher | 9.160 160 | Wironit 10,5cm |
| Forceps (9) | FST | 11200-33 | Dumoxel 13,5cm |
| Forceps (9) | FST | 11200-33 | Dumoxel 13,5cm |
| Heated surgical table+integrated gas exhaust | BioMedical Instruments | BioMedical Instruments | |
| heliobond | Ivoclar Vivadent | 42040 | |
| Ice Machine | Scotsman | AF 80 AS / WS | |
| Inflow and outflow needles | BD Microlance | 1,25 x70mm | |
| Isathal 10mg/g | Dechra | Zul.-Nr. 400216.00.00 | Fucidin |
| Isoflurane | Sedana medical | N001254 | |
| Mili-Q Water Filter | Elga | PURELAB flex 3 | |
| Needle Holder (4) | FST | 12501-13 | Tungsten Carbide 13cm |
| Octenisept | Schülke & Mayr | Antiseptic solution | |
| Paper Filter (4*) | Carl Roth GmbH + Co. KG | AP75.1 | |
| Parafilm | Sigma Aldrich | HS234526C | |
| Platinum anchor | 3Brain | 3Brain | |
| Retractor Tip (14) | FST | 18200-10 | 2.5mm |
| Reused Electrode (11) | Microprobes | SNEX-100 | For Coordinates |
| Ringer | B. Braun | 3570030 | |
| Scissor (1) | FST | 14078-10 | Stainless Steel 10cm |
| Scissor (2) | Aesculap | BC144R | |
| Scissor (3) | FST | 14058-09 | Stainless Steel 9cm |
| Scissor (9*) | FST | 91401-12 | Stainless Steel 12cm |
| Screw (12) | Online-Schrauben.de | DIN 84 A2 M 1x2 | |
| Shaver | Exacta | GT415 | |
| STELLA (software defined implantable modular platform) stimulation system | non-commercial; developement of the University of Rostock | open source (https://github.com/SFB-ELAINE/STELLA) | battery-driven DBS stimulator |
| Sterelizer 250 | FST | 18000-45 | |
| Stereotaxic | Narishige | Model SR-AR | |
| Super glue | UHU | 64212 | |
| Tear cream (Panthenol Nose Cream) | Jenapharm | 5541249 | |
| Vibratome | Laica | VT12005 | |
| Xylocain Gel 2% | Aspen Pharma | 1138060 | |
| Weigh Boat | Carl Roth GmbH + Co. KG | HYT9.1 | |
| Weigher | Voltcraft | TS-5000/1 | |
| Compounds used for solutions preparation | |||
| Calcium chloride (CaCl2) | Sigma-Aldrich | 10043-52-4 | |
| D-Glucose(C6H12O6) | Sigma-Aldrich | 50-99-7 | |
| Magnesium Chloride (MgCl2) | Sigma-Aldrich | 7786-30-3 | |
| Potassium Chloride(KCl) | Sigma-Aldrich | 7447-40-7 | |
| Sodium Bicarbonate (NaHCO3) | Sigma-Aldrich | 144-55-8 | |
| Sodium Chloride (NaCl) | Sigma-Aldrich | 7647-14-5 | |
| Sodium phosphate monobasic (NaH2PO4) | Sigma-Aldrich | 7558-80-7 | |
| Sucrose | Sigma-Aldrich | 57-50-1 |
Bibliografia
- Beylergil, S. B., et al. Tremor in cervical dystonia. Dystonia. , (2024).
- Stephen, C. D., et al. Dystonias: Clinical recognition and the role of additional diagnostic testing. Semin Neurol. , (2023).
- Fung, V. S. C., Jinnah, H. A., Bhatia, K., Vidailhet, M. Assessment of the patient with isolated or combined dystonia: An update on dystonia syndromes. Mov Disord. , (2013).
- Klepitskaya, O., Neuwelt, A. J., Nguyen, T., Leehey, M. Primary dystonia misinterpreted as Parkinson disease. Neurol Clin Pract. , (2013).
- Drivenes, B., et al. A child with myoclonus-dystonia (DYT11) misdiagnosed as atypical opsoclonus myoclonus syndrome. Eur J Paediatr Neurol. , (2015).
- Valeriani, D., Simonyan, K. A. Microstructural neural network biomarker for dystonia diagnosis identified by a DystoniaNet deep learning platform. Proc Natl Acad Sci U S A, , (2020).
- Albanese, A., et al. Definition and classification of dystonia. Mov Disord. , (2025).
- Balint, B., et al. Dystonia. Nat Rev Dis Primers. , (2018).
- Bohne, P., et al. Cerebellar α1D-adrenergic receptors mediate stress-induced dystonia in totteringtg/tg mice. Cell Mol Life Sci. , (2025).
- Gwinn-Hardy, K. A., et al. Effect of hormone variations and other factors on symptom severity in women with dystonia. Mayo Clin Proc, , (2000).
- Kim, J. E., et al. Cerebellar 5HT-2A receptor mediates stress-induced onset of dystonia. Sci Adv. , (2021).
- Vitek, J. L. Pathophysiology of dystonia: A neuronal model. Mov Disord. , (2002).
- Rissardo, J. P., et al. Neurobiology of dystonia: Review of genetics, animal models, and neuroimaging. Brain Sci. , (2025).
- Bologna, M., Berardelli, A. The cerebellum and dystonia. Handb Clin Neurol. , (2018).
- Kragelund, F. S., et al. Network-wide effects of pallidal deep brain stimulation normalised abnormal cerebellar cortical activity in the dystonic animal model. Neurobiol Dis. , (2025).
- Löscher, W., Hörstermann, D. Abnormalities in amino acid neurotransmitters in discrete brain regions of genetically dystonic hamsters. J Neurochem. , (1992).
- Lüttig, A., et al. Short-term stimulations of the entopeduncular nucleus induce cerebellar changes of c-Fos expression in an animal model of paroxysmal dystonia. Brain Res. , (2024).
- Yousef, O., et al. Subthalamic nucleus versus globus pallidus internus deep brain stimulation in the treatment of dystonia: A systematic review and meta-analysis of safety and efficacy. J Clin Neurosci. , (2025).
- Lin, S., et al. Globus pallidus internus versus subthalamic nucleus deep brain stimulation for isolated dystonia: A 3-year follow-up. Eur J Neurol. , (2023).
- Liker, M. A., et al. Stereotactic awake basal ganglia electrophysiological recording and stimulation (SABERS): A novel staged procedure for personalized targeting of deep brain stimulation in pediatric movement and neuropsychiatric disorders. J Child Neurol. , (2024).
- Hock, A. N., et al. A randomised double-blind controlled study of deep brain stimulation for dystonia in STN or GPi: A long-term follow-up after up to 15 years. Parkinsonism Relat Disord. , (2022).
- Shakkottai, V. G., et al. Current opinions and areas of consensus on the role of the cerebellum in dystonia. Cerebellum. , (2017).
- Neychev, V. K., et al. The basal ganglia and cerebellum interact in the expression of dystonic movement. Brain. , (2008).
- Fredow, G., Löscher, W. Effects of pharmacological manipulation of GABAergic neurotransmission in a new mutant hamster model of paroxysmal dystonia. Eur J Pharmacol. , (1991).
- Löscher, W., et al. The sz mutant hamster: A genetic model of epilepsy or of paroxysmal dystonia? Mov Disord. , (1989).
- Richter, A., Löscher, W. Pathophysiology of idiopathic dystonia: Findings from genetic animal models. Prog Neurobiol. , (1998).
- Hull, C., Regehr, W. G. The cerebellar cortex. Annu Rev Neurosci. , (2022).
- van der Heijden, M. E., Sillitoe, R. V. Interactions between Purkinje cells and granule cells coordinate the development of functional cerebellar circuits. Neuroscience. , (2021).
- Emery, B. A., et al. High-resolution CMOS-based biosensor for assessing hippocampal circuit dynamics in experience-dependent plasticity. Biosens Bioelectron. , (2023).
- Viswam, V., et al. Impedance spectroscopy and electrophysiological imaging of cells with a high-density CMOS microelectrode array system. IEEE Trans Biomed Circuits Syst. , (2018).
- Imfeld, K., et al. Large-scale, high-resolution data acquisition system for extracellular recording of electrophysiological activity. IEEE Trans Biomed Eng. , (2008).
- Berdondini, L., et al. Extracellular recordings from locally dense microelectrode arrays coupled to dissociated cortical cultures. J Neurosci Methods. , (2009).
- Busch, M., et al. Species-appropriate housing of laboratory rats. , GV-SOLAS Committee for Laboratory Animal Husbandry. (2019).
- Plocksties, F., et al. The software defined implantable modular platform (STELLA) for preclinical deep brain stimulation research in rodents. J Neural Eng. , (2021).
- Kragelund, F. S. Illustration of brain sectioning and slicing. , BioRender. (2026).
- Schröter, M., et al. Advances in large-scale electrophysiology with high-density microelectrode arrays. Lab Chip. , (2025).
- Paap, M., et al. Deep brain stimulation by optimized stimulators in a phenotypic model of dystonia: Effects of different frequencies. Neurobiol Dis. , (2021).
- Takada, M., et al. Two separate neuronal populations of the rat subthalamic nucleus project to the basal ganglia and pedunculopontine tegmental region. Brain Res. , (1988).
- Filip, P., Lungu, O. V., Bareš, M. Dystonia and the cerebellum: A new field of interest in movement disorders? Clin Neurophysiol. , (2013).
- Bostan, A. C., Strick, P. L. The basal ganglia and the cerebellum: Nodes in an integrated network. Nat Rev Neurosci. , (2018).
- Bostan, A. C., Dum, R. P., Strick, P. L. The basal ganglia communicate with the cerebellum. Proc Natl Acad Sci U S A, , (2010).
- Middleton, F. A., Strick, P. L. Basal ganglia and cerebellar loops: Motor and cognitive circuits. Brain Res Rev. , (2000).
- Heerdegen, M., et al. Mechanisms of pallidal deep brain stimulation: Alteration of cortico-striatal synaptic communication in a dystonia animal model. Neurobiol Dis. , (2021).
- Pralong, E., et al. Effect of deep brain stimulation of GPI on neuronal activity of the thalamic nucleus ventralis oralis in a dystonic patient. Neurophysiol Clin. , (2003).
- Kotyra, M., et al. Effects of longer-term pallidal stimulation on the severity of dystonia in a phenotypic animal model. Exp Neurol. , (2026).
- Franz, D., et al. Network-wide modulation of synaptic plasticity and spike patterns in motor circuits after pallidal deep brain stimulation in a dystonia model. Neurobiol Dis. , (2025).
- Cersosimo, M. G., et al. Micro lesion effect of the globus pallidus internus and outcome with deep brain stimulation in patients with Parkinson disease and dystonia. Mov Disord. , (2009).
- Blotter, M. L., et al. High-quality seizure-like activity from acute brain slices using a complementary metal-oxide-semiconductor high-density microelectrode array system. J Vis Exp. (211), e67065(2024).
Przedruki i uprawnienia
