Przepływ pracy z mikroiniekcją CRISPR/Cas9 do endogennego fluorescencyjnego oznaczania w linii komórkowej Caenorhabditis elegans w celu uzyskania homozygotycznych linii knock-in do analizy lokalizacji białka in vivo lokalizacji białka.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Endogenouszne fluorescencyjne oznaczanie genów specyficznych dla komórek germinalnych za pośrednictwem CRISPR/Cas9 u Caenorhabditis elegans
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Lokalizacja białka w linii zarodkowej Caenorhabditis elegans (C. elegans) jest kluczowa dla interpretacji funkcji genu podczas gametogenezy, jednak konwencjonalne podejścia transgenne często dają różnorodne ekspresje i mogą być wyciszone w komórkach germinalnych. Przedstawiono tu praktyczne przepływy pracy CRISPR/Cas9 wstawiające fluorescujący tag do endogennego locus, umożliwiające wygenerowanie stabilnych alleli knock-in, które raportują dystrybucję białka pod natywną regulacją. Protokół obejmuje kluczowe etapy procedury: wybór strategii tagowania odpowiedniej dla docelowego białka, dostarczanie reagentów CRISPR przez mikroiniekcję gonadalną do młodych dorosłych hermafrodytów i odzyskiwanie wstrzykniętych zwierząt do przesiewania. Kandydaci do knock-in są identyfikowani poprzez genotypowanie oparte na PCR przez dwie generacje, aby odizolować homozygotyczne robaki i zweryfikować edytowany allel. Wreszcie, mikroskopia konfokalna jest używana do zweryfikowania fluorescencji linii germinalnej i oceny lokalizacji subkomórkowej in vivo. Przepływ pracy jest zaprojektowany tak, aby był powtarzalny i szeroko stosowany dla genów wzbogaconych w linii germinalnej, zapewniając prostą drogę do ustanowienia homozygotycznych szczepów z tagami dla analiz rozwojowych i komórkowych.
Wprowadzenie
Caenorhabditis elegans (C. elegans) jest dobrze ugruntowanym modelem do badań nad rozwojem rozrodczym i gametogenezą, ze względu na krótki cykl życia, przezroczyste ciało i wysoką łatwość manipulacji genetycznych1. C. elegans istnieje głównie jako samorodka hermafrodytyczny, którego gonada najpierw przechodzi spermatogenezę, a następnie przełącza się na oogenezę. Ten tryb rozmnażania upraszcza utrzymanie szczepów i ułatwia uzyskanie homozygotycznych linii2. Ostatnie badania transkryptomiczne przestrzenne znacznie rozszerzyły listę genów bogaty w gonadzie i ujawniły wyraźne seksowo specyficzne wzorce ekspresji w całym układzie rozrodczym C. elegans3. Bardziej niedawno, sekwencjonowanie RNA z pojedynczych komórek umożliwiło rekonstrukcję trajektorii rozwojowych komórek germinalnych i wywnioskowanie sieci regulacji genów rządzących spermatogenezą4. Razem, te zbiory danych generują bogate listy kandydatów, ale interpretacja funkcjonalna często wymaga obserwacji zachowania białek in vivo—konkretnie, określenia, kiedy i gdzie lokalizują się odpowiednie białka i jak ich wzorce zmieniają się w trakcie rozwoju linii germinalnej.
Konwencjonalna transgeneza w C. elegans często opiera się na mikroiniekcji gonadowej DNA plazmidowego, która łatwo generuje wielokopiane pozachromosomowe skupienia5. Jednakże w linii germinalnej, te skupienia są często mocno wyciszone, co jest uważane za mechanizm pomagający utrzymać integralność linii germinalnej poprzez ograniczenie ekspresji z DNA powtarzającego się, zachowując w ten sposób funkcję linii germinalnej i stabilność informacji genetycznej przez pokolenia6,7. W rezultacie, konstrukty ekspresji transgenów, które są łatwo ekspresowane w tkankach somatycznych, mogą być słabe lub niekonsekwentne w linii germinalnej. Nawet gdy ekspresja jest wykrywalna, efekty liczby kopii i skonstruowane elementy regulacyjne mogą przesunąć dawkowanie i czas białka, potencjalnie komplikując wnioski o natywnej lokalizacji i dynamice. Aby przeciwdziałać tym ograniczeniom, bombardowanie mikroczęściami i Mos1-pośredniczona Jednokopijna Wstawianie (MosSCI) są szeroko stosowane do generowania zintegrowanych linii transgennych o niskiej/jednokopiowej ekspresji8,9,10. Te podejścia mogą poprawić ekspresję w linii germinalnej, ale różnią się pod względem kosztów, wydajności i tego, jak dobrze odtwarzają endogenną regulację. Edycja genomu CRISPR/Cas9 oferuje bardziej bezpośrednią drogę poprzez wstawienie fluoryzującego znacznika w miejsce endogennego poprzez naprawę kierowaną homologią, generując stabilne allele knock-in, które raportują lokalizację i dynamikę białka pod natywną kontrolą regulacji11,12,13,14.
Tutaj opisano praktyczny przepływ pracy dla CRISPR/Cas9-pośredniczonego endogennego fluoryzującego znacznikowania w C. elegans, zastosowany do genów wybranych na podstawie zgłoszonych wzorców ekspresji bogaty w linię germinalną. Protokół opisuje selekcję docelów, projektowanie szablonu donora i RNA przewodniczącego, mikroiniekcję gonadalną i przesiewowe badania poniżej w celu izolowaniu homozygotycznych linii knock-in, po których następuje walidacja za pomocą genotypowania. To podejście jest szeroko stosowane do genów ekspresowanych w linii germinalnej na różnych etapach rozwojowych i umożliwia ilościowe analizy lokalizacji i dynamiki białka in vivo. Ten przepływ pracy zapewnia praktyczną strategię do znacznikowania genów ekspresowanych w linii germinalnej i do analizy lokalizacji i dynamiki białka in vivo pod natywną kontrolą regulacji.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty z wykorzystaniem Caenorhabditis elegans były prowadzone zgodnie z wytycznymi instytucjonalnymi dotyczącymi opieki i wykorzystania organizmów laboratoryjnych na Uniwersytecie Normalnym w Pekinie.
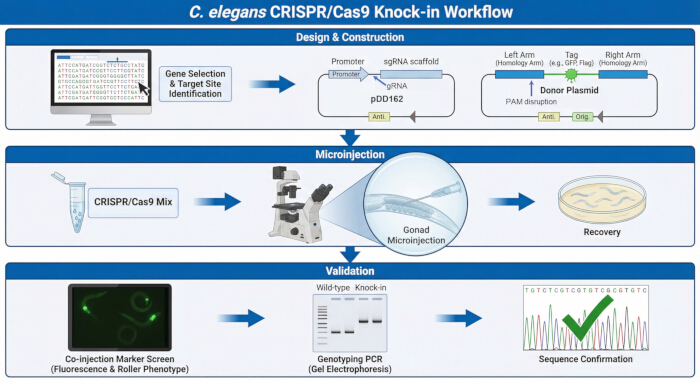
Rycina 1: Przegląd endogennego znakowania fluorescencyjnego za pomocą CRISPR/Cas9 u C. elegans. Schematyczny przebieg procesu ilustrujący główne etapy generowania i walidacji endogennego wstawienia (knock-in) znacznika fluorescencyjnego. Na etapie projektowania i konstrukcji wybierany jest gen docelowy oraz miejsce insercji wzbogacone w linii zarodkowej, pDD162 służy jako plazmid CRISPR/Cas9 do ekspresji Cas9 i gRNA, a pPD95.75 jako szkielet donora, do którego subklonowany jest znacznik fluorescencyjny (np. GFP) oraz lewe i prawe ramiona homologii. Na etapie mikroiniekcji mieszanina wtryskowa CRISPR/Cas9 (zawierająca plazmid gRNA/Cas9, matrycę donora i markery współiniekcyjne) jest podawana do gonad młodych dorosłych hermafrodyt, po czym następuje rekonwalescencja na wysianych płytkach. Na etapie walidacji potomstwo pozytywne pod kątem markerów jest wybierane do dalszego genotypowania, w tym identyfikacji zdarzeń knock-in metodą PCR oraz potwierdzenia sekwencjonowaniem DNA; linie z sukcesywnie wykonanym knock-in są następnie badane za pomocą mikroskopii fluorescencyjnej w celu oceny ekspresji w linii zarodkowej i lokalizacji subkomórkowej znakowanego białka. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
1. Wybór genu docelowego wzbogaconego w linii zarodkowej
- Zidentyfikuj geny kandydackie wykazujące dominującą ekspresję w gonadach lub komórkach zarodkowych, korzystając z publicznych baz danych oraz opublikowanej literatury.
- Wybierz odpowiednie miejsce wprowadzenia znacznika w oparciu o cechy białka. Zapisz wybraną izoformę oraz pozycję insercji znacznika do późniejszego projektu gRNA i matrycy donora (Rysunek 1).
2. Projektowanie gRNA i matrycy donorowej
- Zidentyfikuj 20 nt sekwencję przewodniego RNA (gRNA) powyżej motywu PAM (protospacer adjacent motif; NGG), który jest niezbędny do rozpoznania przez Cas9, i umieść ją jak najbliżej zamierzonego miejsca wstawienia znacznika.
- Oceń potencjalne gRNA za pomocą narzędzia do projektowania online (np. narzędzia IDT CRISPR design tool) z wybranym genomem C. elegans. Wybierz przewodnik o wysokiej przewidywanej wydajności cięcia docelowego i braku wysokoryzykownych przewidywanych miejsc off-target.
- Sklonuj sekwencję gRNA w regionie pomiędzy promotorem U6 a rusztowaniem gRNA w obrębie plazmidowego wektora ekspresyjnego CRISPR.
UWAGA: Zaprojektuj primery zawierające sekwencję gRNA jako nawisy. Przeprowadź amplifikację PCR, a następnie montaż oparty na rekombinacji homologicznej – metodę klonowania niezależnego od ligacji, która eliminuje trawienie enzymami restrykcyjnymi i umożliwia jednokrokowy klonowanie bezpośrednio do wektora ekspresyjnego15. - Potwierdź poprawność wstawienia sekwencji za pomocą sekwencjonowania metodą Sangera.
- Zbuduj plazmid donorowy, wykorzystując znacznik fluorescencyjny flankowany przez lewe i prawe ramiona homologii o długości około 1 000 bp każde, pochodzące z locus docelowego.
UWAGA: Amplifikuj ramiona homologii z genomicznego DNA szczepu N2 przygotowanego jako lizat nicieni przy użyciu trawienia proteinazą K. Zaprojektuj primery z 15–20 bp nakładkami na zlinearyzowany wektor i znacznik fluorescencyjny. Zmontuj ramiona homologii i znacznik w szkielecie wektora via rekombinację homologiczną w jednej reakcji. Wstaw znacznik fluorescencyjny bezpośrednio po kodonie startowym ATG dla znakowania N-końcowego lub przed kodonem stop dla znakowania C-końcowego. Uwzględnij sekwencję łącznika (linkera) pomiędzy genem docelowym a znacznikiem fluorescencyjnym, aby zachować prawidłowe fałdowanie i funkcję białka. Użyj łącznika w celu zmniejszenia zawady sterycznej pomiędzy partnerami fuzji i upewnij się, że zarówno łącznik, jak i znacznik są wstawione w ramce odczytu sekwencji kodującej. Starannie wybierz miejsce wstawienia, aby uniknąć zaburzenia znanych lub przewidywanych domen funkcjonalnych, peptydów sygnałowych lub regionów transbłonowych (Supplementary File 1). - Wprowadź substytucje ciche do sekwencji matrycy homologicznej donora, aby uszkodzić PAM lub sekwencję wiązania przewodnika bez zmiany sekwencji białka, co zapobiegnie ponownemu cięciu przez Cas9 po integracji.
UWAGA: Wprowadź synonimiczne mutacje punktowe do primerów używanych do amplifikacji ramion homologii, celując w kodony w obrębie regionu PAM. - Potwierdź integralność sekwencji donora w obu ramionach homologii i w miejscach łączenia ze znacznikiem za pomocą sekwencjonowania metodą Sangera.
UWAGA: Przechowuj zweryfikowane plazmidy w temperaturze −20 °C w przypadku przechowywania krótkoterminowego lub −80 °C w przypadku przechowywania długoterminowego.
3. Przygotowanie mieszaniny do iniekcji
- Przygotować mieszaninę do iniekcji, łącząc plazmid ekspresyjny CRISPR, plazmid donora (skonstruowany na podstawie pPD95.75) oraz markery współiniekcyjne w sterylnym ddH₂O do końcowej objętości 10 µL, zachowując stężenia wymienione w Tabeli 1.
UWAGA: Stężenia należy optymalizować empirycznie, aby zrównoważyć czytelność markerów, odzysk kandydatów oraz przeżywalność po iniekcji. - Odwirować mieszaninę do iniekcji przy 10 000 × g przez 10–20 min w celu osadzenia materiału cząsteczkowego i zapobiegania zapychaniu się kapilary do mikroiniekcji.
| Komponent | Funkcja | Stężenie robocze (ng/μL) |
| pDD162 | Plazmid CRISPR/Cas9 (ekspresja Cas9 i gRNA) | 50-100 |
| Plazmid donorowy (szkielet pPD95.75) | Matryca donorowa HDR zawierająca znacznik fluorescencyjny flankowany ramionami homologii o długości ~1 kb | 50-100 |
| pRF4 | Marker ko-iniekcji (fenotyp Roller) | 50-100 |
| pPD122.11 | Marker ko-iniekcji (ekspresja GFP) | 5-10 |
| Sterylna ddH2O | Uzupełnienie do objętości końcowej | – |
Tabela 1: Skład mieszaniny do iniekcji i funkcje plazmidów.Mieszanina do iniekcji zawiera plazmid ekspresyjny CRISPR, plazmid donorowy, pRF4 oraz pPD122.11 w indicated stężeniach, przy całkowitej objętości 10 µL.
4. Napełnianie i przygotowanie igły do iniekcji
- Wytwarzaj igły do mikroiniekcji z kapilar szklanych, używając wyciągacza do igieł skonfigurowanego tak, aby uzyskać długi stożek z ostrym końcem odpowiednim do iniekcji w gonady.
UWAGA: Parametry wyciągacza należy zoptymalizować empirycznie. Przykładowe parametry początkowe: heat = 540, pull = 20, velocity = 100.
OSTROŻNIE: Należy ostrożnie obchodzić się z wyciągniętymi igłami, aby uniknąć obrażeń wskutek nakłucia. Do manipulowania igłami należy używać pęsety, a zużyte igły utylizować w pojemniku na odpady ostre. - Podgrzej pipetę mikrokapilarną i przełam ją na dwa kawałki, aby stworzyć narzędzie do ładowania.
UWAGA: Jako alternatywę można zastosować komercyjne końcówki do ładowania. - Do szerokiego końca skróconej pipety mikrokapilarnej przymocuj gumową gruszkę aspiracyjną.
- Naciągnij do ładowarki około 1 µL klarownego supernatantu mieszaniny do iniekcji.
UWAGA: Dokładna objętość nie jest krytyczna. Należy upewnić się, że roztwór wypełnia końcówkę igły. - Wprowadź ładowarkę do tylnego końca igły iniekcyjnej i delikatnie podaj mieszaninę do iniekcji.
- Umieść załadowaną igłę poziomo na 10 min, aby roztwór osiadł w stronę końcówki i potwierdzić obecność ciągłej kolumny cieczy.
- Zamocuj igłę w mikroskopie do iniekcji i ustaw końcówkę w ognisku, korzystając z optyki w jasnym polu.
- Otwórz końcówkę igły, delikatnie dotykając jej krawędzią szkiełka nakrywkowego w oleju halokarbonowym, a następnie sprawdź przepływ.
UWAGA: Dostosuj ciśnienie iniekcji (30–80 psi) tak, aby w ciągu 1 s16 wytworzyć pęcherzyk o średnicy w przybliżeniu równej średnicy gonady.
5. Przygotowanie nicieni do wstrzykiwania
UWAGA: Przygotować płytki z podłożem do wzrostu nicieni (NGM) oraz bufor M9 zgodnie z wcześniejszym opisem17. Hodować nicienie na płytkach zaszczepionych szczepem Escherichia coli OP50 (dalej określanym jako OP50) i wykonywać iniekcje w linii N2.
- Wybierz hermafrodyty w stadium L4 z wyprawionej płytki i inkubuj w temperaturze 20 °C przez 10 h, aby uzyskać młode dorosłe osobniki z dobrze rozwiniętą linią zarodkową.
- Przenieś nicienie na pustą płytkę, aby ograniczyć przenoszenie bakterii.
- Przygotuj suchą podkładkę z 2% agarozy na szkiełku przedmiotowym i nanieś kroplę oleju halokarbonowego.
- Przenieś nicienia na podkładkę agarową za pomocą pędzelka z rzęsy.
- Unieruchom nicienia i ustaw gonadę w pozycji odpowiedniej do wstrzyknięcia.
OSTRZEŻENIE: Iniekcje należy przeprowadzić w ciągu 20–30 min, aby zapobiec wysuszeniu.
6. Wykonaj mikroiniekcję gonadalną
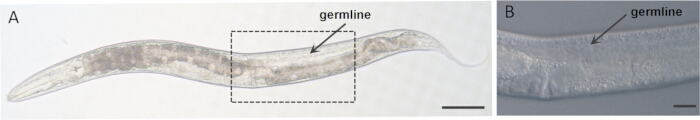
Rysunek 2: Lokalizacja dystalnego syncytium gonady dla mikroiniekcji u młodych dorosłych C. elegans hermafrodytów. (A) Obraz w jasnym polu przy niskim powiększeniu zamontowanego młodej dorosłego hermafrodyty. Widoczne są oba ramiona gonady; dla jednego ramienia zaznaczono miejsce iniekcji (strzałka) jako przykład reprezentatywny. Obszar w ramce oznacza obszar pokazany przy większym powiększeniu na panelu B. (B) Widok w DIC przy większym powiększeniu dystalnej gonady odpowiadający obszarowi w ramce na panelu A. Strzałka wskazuje pozycję iniekcji w obrębie dystalnego syncytium gonady, gdzie podawana jest mieszanina iniekcyjna. Paski skali: 100 µm (A) i 20 µm (B). Proszę kliknąć tutaj, aby wyświetlić większą wersję tego rysunku.
- Zlokalizuj unieruchomionego nicienia i zidentyfikuj gonadę, korzystając z obiektywu o niskim powiększeniu.
- Ustaw igłę za pomocą sterowników mikromanipulatora.
- Uorientuj nicienia pod kątem 20–40° względem igły.
- Ustaw ostrość na dystalną część linii zarodkowej, korzystając z większego powiększenia.
- Przesuń nicienia w stronę igły i umieść jej końcówkę w obrębie syncytium gonadalnego (Rysunek 2).
- Wstrzyknij roztwór i potwierdź podanie preparatu poprzez widoczne obrzęknięcie gonady.
UWAGA: Zoptymalizuj ciśnienie wtrysku (30–80 psi), ciśnienie kompensacyjne (0,1–0,5 psi) oraz czas trwania wtrysku (0,1–0,3 s).
OSTROŻEŻNIE: Nadmierne ciśnienie lub objętość mogą spowodować rozerwanie organizmu nicienia. - Wycofaj igłę i ustaw ją ponownie do kolejnych wtrysków.
UWAGA: Wykonaj wtrysk jednostronny, aby zmaksymalizować przeżywalność, lub wtrysk obustronny, aby zwiększyć wydajność edycji. - Dodaj bufor M9, aby uwolnić nicienie, a następnie przenieś każdego z nich na oddzielną płytkę regeneracyjną.
- Powtórz wtryski dla 20–25 nicieni.
UWAGA: Wymień igłę, jeśli ulegnie zapchaniu lub uszkodzeniu. - Inkubuj wstrzyknięte nicienie w temperaturze 20 °C przez 2–3 dni w celu regeneracji.
7. Przesiewanie kandydatów F1 w celu zidentyfikowania linii z pozytywnym knock-in
- Przesiewowo sprawdź potomstwo F1 pod kątem markerów współwstrzyknięcia i wybierz zwierzęta wykazujące obecność markerów.
UWAGA: Przykłady alternatywnych fluorescencyjnych markerów współwstrzyknięcia o różnej specyficzności tkankowej i właściwościach widmowych znajdują się w Uzupełniającej tabeli 1.
UWAGA: W celu zwiększenia niezawodności wybierz zwierzęta wykazujące oba markery. Priorytetowo traktuj lęgi o wysokiej częstotliwości występowania markerów („lęgi jackpot”). - Przenieś każdego nicienia F1 na oddzielną płytkę i pozwól na składanie jaj przez 1–2 dni.
- Zlizuj każdego nicienia F1 w buforze z proteinazą K, aby przygotować matryce do PCR.
UWAGA: Jeśli lizaty nie zostaną przetworzone natychmiast, przechowuj je w temperaturze −80 °C. - Przeprowadź PCR złączeniowy (junction PCR), używając jednego primera genomicznego poza ramieniem homologii oraz jednego wewnętrznego primera znacznika.
UWAGA: Zachowaj odpowiednie płytki od zwierząt F1, które dały wynik dodatni w teście PCR.
8. Przesiewanie potomstwa F2 w celu wyizolowania homozygotycznych linii knock-in i potwierdzenia integracji
- Wyizoluj potomstwo F2 z linii F1 pozytywnych w testach PCR na oddzielne płytki.
- Pozwól nicieniom F2 na wyprodukowanie potomstwa, a następnie poddaj dorosłe osobniki lizie w celu genotypowania.
UWAGA: W razie potrzeby przechowuj lizaty w temperaturze −20 °C. - Przeprowadź PCR z użyciem starterów flankujących ramiona homologii, aby odróżnić allele typu dzikiego od alleli knock-in na podstawie wielkości produktu.
- Potwierdź prawidłową integrację za pomocą sekwencjonowania metodą Sangera na obu złączach insercyjnych.
- Zweryfikuj ekspresję i lokalizację fluorescencji w linii zarodkowej za pomocą mikroskopii fluorescencyjnej.
- Rozmnażaj potwierdzone linie homozygotyczne i prowadź ich zasoby.
UWAGA: Zwalidowane linie poddaj krio konserwacji w celu długoterminowego przechowywania.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Zgodnie z protokołem, młode dorosłe hermafrodyty poddano mikroiniekcji do gonad z wykorzystaniem plazmidu CRISPR/Cas9 (pDD162), plazmidu donora kodującego tag knock-in GFP flankowany ramionami homologii o długości około 1 kb (pPD95.75) oraz markerów współiniekcyjnych (pRF4 i pPD122.11). W качестве reprezentatywnego przykładu wykorzystano gen docelowy wzbogacony w linii zarodkowej, aby wygenerować stabilny, homozygotyczny allel knock-in raportujący lokalizację białka pod natywną kontrolą regulacyjną.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Ten przepływ pracy jest zaprojektowany, aby wygenerować stabilne, homozygotyczne linie knock-in, w których etykieta fluorescencyjna jest wstawiana w endogennym locus, aby zgłaszać lokalizację białka pod natywną kontrolą regulacyjną5,6,7,8,9,10. W praktyce, sukces jest najlepiej oceniany poprzez sekwencyjny łańcuch walidacji n...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnięcia.
Podziękowania
Praca ta była wspierana przez granty z Narodowego Kluczowego Programu Badań i Rozwoju Chin (2023YFA1801100 dla L.M.), Narodowego Funduszu Nauk Przyrodniczych Chin (32400698 dla P.W., 32270774 dla L.M.).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agar | Beijing Lablead Biotech Co., Ltd. | QZ02 | Składnik do przygotowania płytek agar NGM |
| Agaroza | NOVON | ZZ14011 | Przygotowanie 2% podkładek agarozy |
| Caenorhabditis elegans szczep N2 | Caenorhabditis Genetics Center (CGC) | Szczep tła do wstrzykiwań | |
| Centryfuga | Eppendorf | 5425 | Wyjaśnienie mieszanki do wstrzykiwań |
| Cholesterol | Beijing Chemical Reagents Company | 57-88-5 | Składnik do przygotowania płytek agar NGM |
| Plazmid markera współwstrzykiwania rol-6 (su1006) (pRF4) | Guangshuo Ou Lab | Marker toczenia do wzbogacania kandydatów | |
| Mikroskop konfokalny | ZEISS | LSM880 + Airyscan | Walidowanie ekspresji/lokalizacji GFP |
| Di-Potasowy wodorowfosforan (K2HPO4) | Sinapharm | CAS: 7758-11-4 | Składnik do przygotowania płytek agar NGM |
| Di-Sodowy wodorowfosforan (Na2HPO4) | Sinapharm | CAS: 7558-79-4 | Składnik do przygotowania bufora M9 |
| Ladder DNA | Mei5 Biotechnology, Co., Ltd. | MF288-01 | Odniesienie rozmiarów do żeli agarozy |
| Podstawa plazmidu donorskiego (pPD95.75) | Addgene | 1494 | Podstawa konstrukcji donora HDR |
| System elektroforetyczny | Beijing Liuyi Biotechnology Co., Ltd. | 112-0630 | Oddzielenie amplikonów PCR na żelach agarozy dla badania złącz i genotypowania zygotyczności |
| Szczep Escherichia coli OP50 | Caenorhabditis Genetics Center (CGC) | Źródło pokarmu dla robaków | |
| Plazmid markera współwstrzykiwania fluorescencyjnego (pPD122.11) | Fire Lab | Fluorescencyjny współmarker GFP do wzbogacania kandydatów | |
| Stereoskop fluorescencyjny | SOPTOP | SZX12-HT | Selekcja żywych robaków pod kątem fluorescencyjnych markerów współwstrzykiwań |
| Barwnik GelRed do żeli kwasów nukleinowych | Mei5 Biotechnology, Co., Ltd. | MF079-plus-01 | Wizualizacja pasm DNA |
| Mikrokapilary | World Precision Instruments | 1B100F-4 | Używane z wciągarką do wytwarzania igieł wstrzykiwań |
| Olej halokarbonowy 700 | Sigma-Aldrich | H8898-50ML | Zapobieganie wysychaniu podczas wstrzykiwań |
| Inkubator | Wuhan Ruihua Instrument & Equipment Co., Ltd. | HP400S | Utrzymywanie robaków w standardowej temperaturze |
| Siarczan magnezu (MgSO4) | Sinapharm | CAS: 7487-88-9 | Składnik do przygotowania płytek agar NGM i bufora M9 |
| Mikropipety kapilarne | KIMBLE | 71900-50 | Podgrzane i ścięte, aby stworzyć narzędzie do ładowania |
| Jednostka mikroiniekcyjna | Eppendorf | FemtoJet 4i | Dostarczanie kontrolowanych impulsów ciśnienia mieszanki wstrzykiwania do dalszej części gonad przez mikroigiełkę wstrzykiwania (uruchamiane pedałem stopy) |
| Szklane kryształki do mikroskopu | Fisherbrand | 12545A 22×30-1 | Przygotowanie 2% podkładek agarozy do montażu i unieruchamiania robaków podczas mikroiniekcji; Otwarte końcówki igieł wstrzykiwań na krawędzi szkiełka |
| Mikroskop do mikroiniekcji | ZEISS | Axio Observer.A1 | Mikroskop do wstrzykiwań |
| Wciągarka do igieł | Sutter Instrument Company | Model P97 | Wciąganie mikrokapilary do igieł wstrzykiwań |
| Termocykler PCR | Bio-Rad | C1000 Touch Thermal Cycler | Amplifikowanie PCR |
| pDD162 (Peft-3::Cas9 + Empty sgRNA) | Addgene | 47549 | Ekspresja Cas9 + sgRNA |
| Pepton | Gibco | 308723 | Składnik do przygotowania płytek agar NGM |
| Diwodoryfosforan potasu (KH2PO4) | Sinapharm | CAS: 7778-77-0 | Składnik do przygotowania płytek agar NGM i bufora M9 |
| Chlorku sodu (NaCl) | Sinapharm | CAS: 7647-14-5 | Składnik do przygotowania płytek agar NGM i bufora M9 |
| Stereoskop | Motic | K400L | Zbieranie i montaż robaków na podkładkach agarozy oraz wykonywanie etapów po wstrzyknięciu |
Bibliografia
- Corsi, A. K., Wightman, B., Chalfie, M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 200 (2), 387-407 (2015).
- Pazdernik, N., Schedl, T. Introduction to germ cell development in Caenorhabditis elegans. Adv Exp Med Biol. 757, 1-16 (2013).
- Ebbing, A., et al. Spatial transcriptomics of C. elegans males and hermaphrodites identifies sex-specific differences in gene expression patterns. Dev Cell. 47 (6), 801-813.e6 (2018).
- Li, L., et al. Spatiotemporal single-cell architecture of gene expression in Caenorhabditis elegans germ cells. Cell Discov. 11 (1), 26 (2025).
- Mello, C. C., Kramer, J. M., Stinchcomb, D., Ambros, V. Efficient gene transfer in C. elegans: extrachromosomal maintenance and integration of transforming sequences. EMBO J. 10 (12), 3959-3970 (1991).
- Kelly, W. G., Fire, A. Chromatin silencing and the maintenance of a functional germline in Caenorhabditis elegans. Development. 125 (13), 2451-2456 (1998).
- Robert, V. J., Sijen, T., van Wolfswinkel, J., Plasterk, R. H. A. Chromatin and RNAi factors protect the C. elegans germline against repetitive sequences. Genes Dev. 19 (7), 782-787 (2005).
- Merritt, C., Seydoux, G. Transgenic solutions for the germline. WormBook. , 1-21 (2010).
- Frøkjær-Jensen, C., et al. Single-copy insertion of transgenes in Caenorhabditis elegans. Nat Genet. 40 (11), 1375-1383 (2008).
- Vallin, E., et al. A genome-wide collection of Mos1 transposon insertion mutants for the C. elegans research community. PLoS One. 7 (2), e30482 (2012).
- Dickinson, D. J., Ward, J. D., Reiner, D. J., Goldstein, B. Engineering the Caenorhabditis elegans genome using Cas9-triggered homologous recombination. Nat Methods. 10 (10), 1028-1034 (2013).
- Friedland, A. E., et al. Heritable genome editing in C. elegans via a CRISPR-Cas9 system. Nat Methods. 10 (8), 741-743 (2013).
- Nance, J., Frøkjær-Jensen, C. The Caenorhabditis elegans transgenic toolbox. Genetics. 212 (4), 959-990 (2019).
- Wang, P., et al. Protocol for CRISPR-Cas9-mediated genome editing to study spermatogenesis in Caenorhabditis elegans. STAR Protoc. 4 (4), 102720 (2023).
- Khan, A. A., et al. A highly efficient ligation-independent cloning system for CRISPR/Cas9-based genome editing in plants. Plant Methods. 13, 86 (2017).
- Ghanta, K. S., Ishidate, T., Mello, C. C. Microinjection for precision genome editing in Caenorhabditis elegans. STAR Protoc. 2 (3), 100748 (2021).
- Rieckher, M., Tavernarakis, N. Caenorhabditis elegans microinjection. Bio Protoc. 7 (19), e2584 (2017).
- Medley, J. C., Hebbar, S., Sydzyik, J. T., Zinovyeva, A. Y. Single nucleotide substitutions effectively block Cas9 and allow for scarless genome editing in Caenorhabditis elegans. Genetics. 220 (1), iyab199 (2022).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of stable transgenic C. elegans using microinjection. J Vis Exp. (18), e833 (2008).
- Shaner, N. C., et al. A bright monomeric green fluorescent protein derived from Branchiostoma lanceolatum. Nat Methods. 10 (5), 407-409 (2013).
- Bajar, B. T., et al. Improving brightness and photostability of green and red fluorescent proteins for live cell imaging and FRET reporting. Sci Rep. 6, 20889 (2016).
- Bindels, D. S., et al. mScarlet: a bright monomeric red fluorescent protein for cellular imaging. Nat Methods. 14 (1), 53-56 (2017).
- He, S., Cuentas-Condori, A., Miller, D. M. NATF (native and tissue-specific fluorescence): a strategy for bright, tissue-specific GFP labeling of native proteins in Caenorhabditis elegans. Genetics. 212 (2), 387-395 (2019).
- Paix, A., Folkmann, A., Seydoux, G. Precision genome editing using CRISPR-Cas9 and linear repair templates in C. elegans. Methods. 121-122, 86-93 (2017).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
