Badanie to badało potencjalną rolę sygnalizacji JNK1/2 w uszkodzeniach mięśnia sercowych wywołanych akonytyną u szczurów. Zwiększona fosforylacja JNK1/2 była związana z uszkodzeniem mięśnia sercowego, podczas gdy farmakologiczne hamowanie szlaku JNK częściowo złagodziło uszkodzenie mięśnia sercowego, co sugeruje, że sygnalizacja JNK może uczestniczyć w kardiotoksyczności indukowanej przez akonytynę.
Artykuł badawczy
Akonytyna indukuje uszkodzenie mięśnia sercowego u szczurów związane z aktywacją szlaku sygnalizacyjnego JNK1/2
W tym artykule
Podsumowanie
Streszczenie
Ostre zatrucie akonytyną (Acon) może powodować arytmię i uszkodzenie mięśnia sercowego; jednak mechanizmy leżące u podstaw pozostają niejasne. Badanie to badało mechanizm uszkodzenia mięśnia sercowego wywołanego ostrym zatruciem Acon. Model szczura (n = 51) ostrego zatrucia Aconem został opracowany przez podanie dobrzuszkowe. Do rejestrowania zmian rytmu serca użyto elektrokardiograficznych śladów. Wykonano barwienie hematoksyliną i eozyną (HE) oraz barwienie Massonem, aby ocenić patologiczne uszkodzenia mięśnia sercowego i depozycji kolagenu. Poziomy ekspresji enzymów i białek sercowych we krwi żylnej wykryto za pomocą zestawów testów immunosorbentnych powiązanych z enzymami (ELISA). Związek struktura–aktywność między Aconem a szlakiem JNK został zbadany poprzez dokowanie molekularne. Poziomy ekspresji fosforylowanych białek kinazy N-2 (JNK1/2) wykryto za pomocą Western blotting. W tym badaniu zaobserwowano arytmie komorowe u szczurów po podaniu Aconu wewnątrzżołądkowego. Tkanka mięśnia sercowego wykazywała nieuporządkowany układ włókien i komórek mięśnia sercowego, któremu towarzyszyło nieprawidłowe osadzanie kolagenu. Wyniki dokowania molekularnego wskazywały na potencjalne interakcje między Aconem a JNK1/2. Tymczasem poziomy ekspresji enzymów i białek sercowych oraz fosforylowanego JNK1/2 zostały istotnie zwiększone. Dalsze badania wykazały, że leczenie inhibitorem JNK SP600125 częściowo odwróciło uszkodzenie mięśnia sercowego wywołane przez akon u szczurów. Wyniki te wskazują, że fosforylacja JNK1/2 bierze udział w rozwoju uszkodzenia mięśnia sercowego wywołanego ostrym zatruciem akonytyną. Wyniki sugerują, że aktywacja szlaku sygnalizacyjnego JNK1/2 przyczynia się do uszkodzenia mięśnia sercowego wywołanego przez akonytynę, a hamowanie szlaku JNK1/2 może łagodzić uszkodzenie mięśnia sercowego spowodowane ostrym zatruciem akonytyną.
Wprowadzenie
Acon to naturalny ekstrakt diterpenowy alkaloidowy pochodzący z rośliny Aconitum z rodziny jaskrowatych. Ma przeciwzapalne 1,2, przeciwbólowe, przeciwnowotworowe, przeciwreumatyczne, układ odpornościowy oraz efekty wspomagające krążenie krwi 3,4,5. Jednak nieodpowiednie lub nadmierne stosowanie preparatów zawierających Acon może prowadzić do poważnych zatruć. Objawy spowodowane zatruciem akorytyną obejmują objawy sercowe6, neurologiczne7 oraz objawy żołądkowo-jelitowe8. W ostatnich latach na całym świecie pojawiły się częste doniesienia o przypadkach zatrucia lub śmierci tojadą9, 10, 11. Zatrucie akonem objawia się głównie w układzie sercowo-naczyniowym, nerwowym i trawiennym. Wśród nich główną przyczyną śmierci z powodu zatrucia jest kardiotoksyczność. Uszkodzenia serca spowodowane przez Acon są bardzo poważne; Szczególnie krótki początek działania zespołu utrudnia terminowe przeprowadzenie leczenia klinicznego. Zazwyczaj ostre zatrucie Aconem powoduje nudności, biegunkę, zawroty głowy, ból w klatce piersiowej, duszność i inne pierwsze objawy wciągu kilku godzin. Obecnie szczegółowy mechanizm uszkodzenia mięśnia sercowego spowodowanego ostrym zatruciem Aconem pozostaje niejasny, a nie istnieją klinicznie skuteczne leki, które mogłyby skutecznie złagodzić uszkodzenia mięśnia sercowego spowodowane zatruciem Acon12,13.
Uszkodzenia w ostrym zatruciu Aconem, które mogą umożliwić zbadanie mechanizmu uszkodzenia mięśnia sercowego, mogą stanowić istotny sposób na śledztwo zależne od czasu. Taki model mógłby mieć potencjał do przyszłego leczenia pacjentów z ostrymi schorzeniami Acona i może zapobiegać wczesnemu rozwojowi zespołu. Badania spekulują o roli szlaku sygnalizacyjnego kinazy n-końcowej c-Jun (JNK) w odpowiedzi immunologicznej na trucizny. Szlak sygnalizacyjny JNK jest jednym ze szlaków sygnalizacyjnych kinaz białkowych aktywowanych przez mitogen (MAPK). Rodzina JNK składa się z trzech genów (JNK1/MAPK8, JNK2/MAPK9 oraz JNK3/MAPK10). JNK1 i JNK2 mogą być wyrażane w większości tkanek, w tym w sercu, natomiast JNK3 występuje głównie w mózgu14 i jest głównie związany ze stresem oksydacyjnym oraz odpowiedzią zapalną komórek15. Badania wykazały, że szlak sygnalizacyjny pośredniczony przez JNK odgrywa ważną rolę w uszkodzeniach niedokrwienia/reperfuzji mózgu i mięśnia sercowego16,17. Podawanie C66 łagodzi zapalenie mięśnia sercowego wywołane dietą wysokotłuszczową poprzez hamowanie aktywacji JNK w sercach myszy18. Kwas chlorogenowy łagodzi uszkodzenia kardiomiocytów wywołane przez TNF α, hamując sygnalizację JNK19. Pinokembrin łagodzi uszkodzenia mięśnia sercowego i odpowiedź zapalną wywołaną przez LPS poprzez hamowanie szlaku sygnalizacyjnego p38/JNK MAPK oraz łagodzi dysfunkcje serca i arytmię20. Badania te wskazują, że zmiany w sygnalizacji JNK, głównie JNK1/2, są ściśle powiązane z uszkodzeniem mięśnia sercowego. Tymczasem JNK jest również celem Acon w serii działań. Jedno z badań wykazało, że wysokie dawki ekspozycji na Acon mogą pośredniczyć w szlaku aktywacji enzymu JNK, powodując toksyczność rozwojową w zarodkach danio pręgowanego (młodocianych), taką jak skrócona długość ciała, zakrzywiony kształt ciała oraz wady rozwojowe mózgu21. Badanie to sugeruje, że Acon może aktywować szlak sygnalizacyjny JNK. Jednak rola szlaku sygnalizacyjnego JNK w uszkodzeniu mięśnia sercowego spowodowanym ostrym zatruciem akonytyną pozostaje niejasna.
Badanie to ustanowiło model szczura ostrego zatrucia Aconem uszkodzenia mięśnia sercowego poprzez ustalanie różnych dawek i interwałów czasowych wewnątrzżołądkowych. Ponadto badaliśmy wpływ Aconu na poziom fosforylacji JNK1/2 w mięśniu sercowym oraz aktywację szlaku sygnalizacyjnego JNK w tym modelu. Badanie roli fosforylacji JNK1/2 w uszkodzeniu mięśnia sercowego u szczurów wywołanych ostrym zatruciem Aconem stanowi teoretyczną podstawę do badania uszkodzeń mięśnia sercowych spowodowanych ostrym zatruciem Acon.
Protokół
Projekt i plan wdrożenia eksperymentu zostały zatwierdzone przez Komitet Eksperymentów na Zwierzętach Uniwersytetu Medycznego w Kunming do zatwierdzenia (numer zatwierdzenia: Kmmu20220652) w dniu 06/2022. Wszystkie plany eksperymentalne były realizowane zgodnie z "Wytycznymi dotyczącymi eksperymentów na zwierzętach Uniwersytetu Medycznego w Kunming". Lista wszystkich materiałów użytych w tym badaniu znajduje się w Tabeli Materiałów.
UWAGA: Ze względu na wysoką toksyczność Acon wszystkie procedury przygotowawcze i podawania były przeprowadzane zgodnie z instytucjonalnymi przepisami bezpieczeństwa laboratoryjnego. Personel zajmujący się Acon nosił odpowiedni sprzęt ochronny, w tym rękawice, fartuchy laboratoryjne i maski, a procedury związane z przygotowaniem Acon były wykonywane z odpowiednimi środkami ostrożności, aby zminimalizować ryzyko narażenia. Zwierzęta były ściśle monitorowane podczas i po podaniu Acon pod kątem oznak ciężkiej toksyczności i stresu, a w razie potrzeby stosowano metody humanitarne w celu minimalizacji cierpienia. Odpady biologiczne oraz materiały skażone akonem były utylizowane zgodnie z instytucjonalnymi przepisami dotyczącymi biobezpieczeństwa.
Leczenie zwierząt
Dorosłe samce szczurów Sprague-Dawley (SD) (2 miesiące, 230 g) były hodowane w budynku eksperymentów na zwierzętach SPF, centrum zwierząt eksperymentalnych na Uniwersytecie Medycznym w Kunming. Warunki żywienia wszystkich szczurów SD były traktowane zgodnie z wymaganiami żywieniowymi szczurów z SPF. Były adaptacyjne wychowywane przez tydzień i pościły przez 12 godzin przed eksperymentem. Acon rozpuszczono w buforze octanowym 0,05 M (Acet), a szczury SD podzielono na 4 grupy zgodnie z zasadą kontroli losowej: Grupa 1 (Acon-1 mg) podana 1 mg/kg Acon przez gavage; Grupa 2 (Acon-2 mg) podawana 2 mg/kg Acon dobrzuszkowo; Grupa 3 (Acet), podana 2 mL 0,05 M octana buforowanego dożłocznie; oraz Grupa 4 (Kontrola, bez stosowania leczenia). Próbki pobierano po 1, 3 i 6 godzinach po podaniu dolotnie. Łącznie zbadano 36 szczurów, po 3 w każdej grupie po 1, 3 godziny i 6 godzin. W każdym wyznaczonym momencie początkowo wykonywano nagrania EKG. Następnie szczury zostały znieczulone, a próbki krwi pobrano do analizy biochemicznej surowicy. Po zebraniu krwi szczury zostały złożone w ofierze, a tkanka serca szybko usunięta. Fragmenty tkanki mięśnia sercowego zostały ustalone do analizy histologicznej (barwienie HE i Masson), natomiast pozostałe tkanki przechowywano do analizy ekspresji białek metodą Western blotting. W eksperymentach testujących aktywatory i inhibitory JNK1/2, szczury SD zostaną podzielone na 5 grup zgodnie z zasadą kontroli losowej: grupa modelowa otrzymała 2 mg/kg dobrzuchającego Acon, a grupa inhibitorowa otrzymała początkowo zastrzyk dootrzewnowy 6 mg/kg SP60012522 godziny, a następnie 2 mg/kg Acon po 2 godzinach. Grupa agonista otrzymała początkowo intraperitonealną iniekcję 0,1 mg/kg anisomycyny (Anis)23,24, a następnie 2 mg/kg Aconu po dawce 2 godziny później. Grupa DMSO otrzymała podanie wewnątrzotrzewnowej zastrzyku 2 mL 0,8% roztworu mieszanego z korozpuszczalnym DMSO. Grupa kontrolna nie otrzymała leczenia. Łącznie zbadano 15 szczurów. Wszystkie wyniki barwienia zostały przeanalizowane w sposób zaślepiony, aby zminimalizować błędy obserwacyjne. W okresie eksperymentalnym szczury były nieustannie monitorowane pod kątem przeżywalności oraz oznak ciężkiej toksyczności po podaniu akonityny. Śmiertelność rejestrowano w każdym wyznaczonym punkcie obserwacji (1 godzina, 3 godziny i 6 godzin). Śmierć definiowano jako całkowite zatrzymanie oddechu i bicia serca. Zwierzęta wykazujące silny stres, w tym utrzymującą się duszność, utratę odruchu prostowania, niemożność poruszania się lub stan umierania, uznano za osiągające humanitarne punkty końcowe i natychmiast uśpione pod głęboką anestezją, aby zminimalizować cierpienie. Liczba zgonów dla każdej grupy szczurów (tabela 1–4).
Śledzenie elektrokardiogramem szczura (EKG)
Szczury w każdej grupie były poddawane śledzeniom EKG. Metoda była następująca: po znieczuleniu przez dootrzewnowe podanie pentobarbitalu sodu w dawce 30 mg/kg. Szczury były przymocowane do pozycji leżącej na konsoli eksperymentów na zwierzętach. Komputer był podłączony do biologicznego systemu akwizycji i analizy sygnału BL-420N, a wtyczka przewodu EKG była wstawiona do portu wejściowego 3-kanałowego systemu BL-420N. Szpilki były podskórnie wprowadzane w wewnętrzną stronę prawej kończyny przedniej, prawej tylnej i lewej tylnej kończyny szczurów. Przed operacją były moczone i sterylizowane w alkoholu w 75%, a także zachowano ostrożność, by nie włożyć ich w mięśnie. Elektrody przewodu EKG były następnie podłączane do pinów każdej kończyny. Przełącznik zasilania oraz oprogramowanie systemowe systemu BL-420N do pozyskiwania i analizy sygnałów biologicznych zostały włączone. Kanał 3 został wybrany do akwizycji sygnału, a typ sygnału ustawiono jako rat EKG. Parametry ustalono: częstotliwość próbkowania, 1 kHz; zasięg, 2,0 mV; stała czasowa (filtrowanie górnoprzepustowe), 200 ms (0,80 Hz); filtrowanie dolnoprzepustowe, 100 Hz; prędkość skanowania: 200,0 ms/div; a filtr z nacięciami 50 Hz był wyłączony. Zarejestrowano EKG typu Lead II i zaobserwowano zmiany EKG. Po ustabilizowaniu się EKG monitorowano i rejestrowano przez 3 minuty, a dane były zapisywane przez grupy do dalszej analizy. Po nagraniu EKG klipsy i piny elektrod zostały usunięte, a szczury odesłane do klatek. Szczury były ogrzewane, a ich oddychanie monitorowano do pełnej rekonwalescencji po znieczuleniu, aby zapobiec śmierci spowodowanej uduszeniem. Podstawowe nagrania EKG wykonano pierwszego dnia przed jakimkolwiek leczeniem. Drugiego dnia szczurom podano Acon za pomocą dolotnej gavage, a następnie wykonywano nagrania EKG po 1, 3 godzinach i 6 godzinach po podaniu tym samym zabiegiem.
Barwienie hematoksyliny i eozyny (HE) oraz barwienia Massona
Serce były przecięte w poziomej płaszczyźnie krótkiej osi, a tkanka serca z wierzchołka serca szczurów SD była pobierana i utrwalona w 4% poliformaldehydzie w temperaturze pokojowej przez 24 godziny. Unieruchomione tkanki zostały odwodnione, oczyszczone ksylenem i osadzone w wosku parafinowym. Następnie przekroje (o grubości 4 μm) były barwione barwieniem HE i Masson, zgodnie ze standardową procedurą. W barwieniu HE barwienie hematoksyliną wykonywano przez 2 minuty, następnie próbki moczono w ciepłej wodzie przez 1 minutę, a następnie barwienie eozyną przez 30 sekund. W barwieniu Massona barwi się roztworem hematoksyliny Weigerta przez 5 minut, następnie roztworem błękitu Massona przez 3–5 minut, a na końcu roztworem błękitu anilinowego przez 1–2 minuty. Preparaty obserwowano pod zwykłym mikroskopem optycznym. Dla każdej sekcji losowo wybrano pięć nienakładających się mikroskopowych pól przy tym samym powiększeniu, unikając dużych naczyń i widocznych artefaktów. Frakcja objętościowa kolagenu (CVF) została obliczona na podstawie ImageJ, zgodnie z równaniem (1):
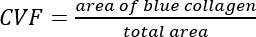 (1)
Test immunosorbentny związany z enzymami (ELISA)
Po nagraniu EKG szczury zostały znieczulone pentobarbitalem sodu, a następnie wykonano laparotomię środkową w celu pobrania krwi żylnej. Próbki krwi pobierano przez nakłucie dolnej żyły głównej za pomocą jednorazowej igły do pobierania krwi żylnej. Krew była inkubowana w temperaturze 4 °C przez noc, a supernatant pobierano po wirowaniu w 1000 × g przez 20 minut. Stężenia CK-MB, AST, LDH, cTn-1 i h-FABP zostały określone za pomocą zestawu do testów ELISA. ELISA przeprowadzono zgodnie z instrukcjami producenta. Wartości gęstości optycznej (OD) każdej studni określano przy 450 nm, za pomocą czytnika mikropłytek.
Analiza Western blottingu
Całkowite białko zostało wyekstrahowane z tkanek serca za pomocą zestawu do ekstrakcji białka. Do określenia stężenia białka użyto zestawu BCA Protein Astest. Całkowite białko (objętość próbki białka do testu wynosiła 10 μL) zostało rozdzielone elektroforezą żelową 10% sodu dodecylosiarczan-poliakrylamidową elektroforezą i przeniesione do błony PVDF, blokując 5% odtłuszczonego mleka na 30 minut. Następnie błona była inkubowana przez noc z pierwotnym przeciwciałem JNK1/2 (1:500), p-JNK1/2 (1:1000) i GAPDH (1:4000). Następnego dnia wszystkie błony były myte PBST trzykrotnie, a następnie inkubowane odpowiednim przeciwciałem wtórnym (1:5000) przez 1 godzinę. Na koniec zastosowano odczynniki o zwiększonej chemiluminescencji do wykrywania sygnałów; roztwór wywoływczy był równomiernie nakładany kropelo na paski membrany PVDF i pozostawiany do inkubacji przez 10 sekund, po czym następowała ekspozycja, wywoływanie i obrazowanie. Intensywności pasma zachodniego blot były mierzone za pomocą oprogramowania ImageJ.
Walidacja dokowania molekularnego
Trójwymiarowa struktura molekularna Akonityny SDF została pobrana z bazy danych PubChem, a struktura SDF przekształcona w strukturę mol2 za pomocą oprogramowania OpenBabel. Struktury białek o najwyższej rozdzielczości i najdłuższych strukturach PDB JNK1 i JNK2 zostały pobrane z baz danych Uniprot i Protein Data Bank. Uwodornianie, usuwanie ligandów i pełne dodawanie wodoru wykonywano na białkach makrocząsteczkowych, natomiast pełne dodawanie wodoru i ładowanie elektronami na związkach małych cząsteczek, a wiązania skrętne były ustanawiane. Eksperymenty dokowania molekularnego przeprowadzono za pomocą AutoDock Vina, gdzie powiązania wiązań ≤ -7,0 kcal/mol zostały zdefiniowane jako wskazujące na silne interakcje ligand-białko. PyMol został użyty do wizualizacji trójwymiarowej struktury kompleksu dokowania, a Discovery Studio do wizualizacji dwuwymiarowej struktury kompleksu dokowania.
Analiza statystyczna
Wszystkie eksperymenty powtarzano trzy razy niezależnie. GraphPad Prism 8 został użyty do analizy i wykresów wszystkich danych statystycznie. Wszystkie dane były przedstawione jako średnie ± odchylenia standardowe (SD). Test t ucznia był używany do porównań między dwiema grupami. Do porównań między wieloma grupami w tych samych analizach punktowych lub przebiegów czasowych w obrębie tej samej grupy zastosowano jednokierunkową metodę ANOVA. P < 0,05 uznano za statystycznieistotne 25.
Wyniki
Wyniki EKG szczurów po gavage Acon
Poprzednie badania wykazały, że toksyczne efekty akonytyny występują we wczesnej fazie, zazwyczaj w ciągu kilku godzin po podaniu26,27. Aby uchwycić wczesne wystąpienie i postęp ostrej kardiotoksyczności w tym oknie czasowym, wybraliśmy trzy punkty czasowe: 1 godzinę, 3 godziny i 6 godzin dla eksperymentów. Wyniki elektrokardiogramu wykazały, że po 1 godzinie, 3 godzinie i 6 godzinach działania Aconu nie wystąpiły arytmie w grupie kontrolnej ani w grupie Acet, a zmiany EKG nie były widoczne. Szczury z grupy Acon-1mg miały przedwczesne skurcze komorowe i przedwczesną bigeminię komorową, odpowiednio, przedwczesne potrójne uszkodzenie komorowe, krótkotrwałą tachykardię komorową, monomorficzną tachykardię komorową, dwukierunkową tachykardię komorową oraz jedną lub więcej arytmii komorowych. Szczury z grupy Acon-2 mg rozwinęły przedwczesne skurcze komorowe, jedną lub więcej arytmii komorowych, w tym przedwczesną bigeminię komorową, krótkotrwałą tachykardię komorową oraz dwukierunkową tachykardię komorową (Rysunek 1, Ilustracje uzupełniające 1–2). Acon sprzyja patologicznym uszkodzeniom mięśnia sercowego i zwiększa barwienie kolagenu w tkance mięśnia sercowego szczura.
Tkanka mięśnia sercowego została oceniona barwieniem HE. Wyniki wykazały, że w porównaniu z grupą kontrolną i Acet, po 1 godzinie, 3 godzinach i 6 godzinach leczenia Acon, tkanka mięśnia sercowego szczurów SD w grupie z Acon-1 mg wykazywała częściowe pęknięcie włókien mięśniowych mięśnia sercowego, nieuporządkowane układanie komórek mięśnia sercowego, poszerzenie śródmiążosza mięśnia sercowego, obrzęk występuje w śródmiążuszu mięśnia sercowego, Większość komórek mięśnia sercowego jest powiększona, jądra są głęboko zabarwione i skondensowane, wiele komórek mięśnia sercowego ulega degeneracji, a w cytoplazmie włókna mięśnia sercowego tworzą się okrągłe wakuole (oznaczone strzałkami). Prążki włókien mięśniowych w tkance mięśniowej u szczurów SD z grupy Acon-2 mg były niejasne lub zniknęły; Układ pęczek mięśniowych był luźny i nieuporządkowany, przestrzenie międzymięśniowe poszerzone, duża liczba jąder komórkowych głęboko zabarwiona, jądrowa pignoza, obrzęk międzykomórkowy, a komórki mięśnia sercowego były obrzęknięte i zwyrodnione. Cytoplazma włókien mięśnia sercowego wykazywała okrągłe wakuole (pokazane strzałkami) (Rysunek 2A, Ilustracja uzupełniająca 3A, Rysunek Uzupełniający 4A).
Wykonano barwienie masonowe w celu oceny depozycji kolagenu w tkance mięśnia sercowego. W grupach kontrolnych i acet kardiomiocyty wykazywały prawidłową morfologię, z minimalnym osadzeniem kolagenu w śródmiążuszu mięśnia sercowego. W grupie z Acon-1 mg zaobserwowano niewielki wzrost niebiesko-barwionego kolagenu w niektórych obszarach śródmiąższowych. W grupie Acon-2 mg rozległe, niebiesko zabarwione obszary były rozproszone w tkance mięśnia sercowego, czemu towarzyszyło nieuporządkowane ułożenie miofilamentów i zaburzenie prawidłowej struktury mięśnia sercowego. Zakres barwienia kolagenu w grupie Acon-2 mg był większy niż w grupie Acon-1 mg. Analiza ilościowa wykazała, że frakcja objętościowa kolagenu (CVF) była istotnie zwiększona zarówno w grupach Acon-1 mg, jak i Acon-2 mg w porównaniu z grupami kontrolną i Acet (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05). Warto zauważyć, że wartość CVF osiągnęła najwyższy poziom w grupie Acon-2 mg po 6 godzinach po podaniu dolotnym (Rysunek 2B, Rysunek Uzupełniający 3B, Rysunek Uzupełniający 4B). Biorąc pod uwagę krótki okres obserwacji (1–6 godzin), wyniki te częściej odzwierciedlają ostre zmiany śródmiąższowe, takie jak obrzęk lub zmiany w wzorcach barwienia kolagenu, niż ustaloną fibrozę mięśnia sercowego. Ponadto nie stwierdzono istotnej różnicy w masie serca między grupami po 1 godzinie, 3 godzinie i 6 godzinach po leczeniu Acon-1 mg lub Acon-2 mg (Tabela 5).
Acon wspiera enzymy sercowe i poziom białka sercowego we krwi żylnej szczurów
Aby ocenić uszkodzenia mięśnia sercowego wywołanego przez akon, zmierzyliśmy poziomy markerów urazów serca w surowicy, w tym CK-MB, AST, LDH, cTn-I i h-FABP. W porównaniu z grupami kontrolną i acet, grupy Acon-1 mg i Acon-2 mg wykazały istotnie podwyższone poziomy CK-MB, AST, LDH, cTn-I i h-FABP po 1, 3 godzinach i 6 godzinach (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05). Co więcej, w tych samych momentach wzrosty tych markerów były bardziej widoczne w grupie Acon-2 mg niż w grupie Acon-1 mg (p < 0,05) (Rysunek 3).
Wyniki dokowania molekularnego
Aby dokładniej zbadać wpływ Aconu na szlak sygnalizacyjny uszkodzenia mięśnia sercowego u szczurów, zastosowaliśmy dokowanie molekularne do identyfikacji białek szlaków związanych z Aconem. Wyniki dokowania wykazały, że Acon może stabilnie wiązać się z aktywnymi kieszeniami zarówno JNK1, jak i JNK2 poprzez liczne niekowalencyjne interakcje. W JNK1 akytyna utworzyła dwa konwencjonalne wiązania wodorowe z ALA267 i SER299, o odległościach wiązań odpowiednio 2,0 Å i 2,1 Å, co wskazuje na silne oddziaływania kierunkowe przyczyniające się do zakotwiczenia ligandów. Ponadto zaobserwowano rozległe interakcje van der Waalsa między akonytyną a otaczającymi resztami, co ułatwiło bliską komplementarność przestrzenną w kieszeni wiązania. Interakcje hydrofobowe, w tym interakcje alkil/π-alkil z ILE304, dodatkowo ustabilizowały ligand w mikrośrodowisku hydrofobowym. Zidentyfikowano także wiązania węgiel-wodor, tworząc sieć interakcji kooperacyjnych wspierającą wiązanie ligandów (rysunek 4A–C). W JNK2 aketyna utworzyła jedno konwencjonalne wiązanie wodorowe z LEU302 (2,1 Å), pełniąc rolę kluczowej interakcji kotwiczącej. Podobnie jak JNK1, interakcje van der Waalsa, oddziaływania hydrofobowe oraz wiązania węgiel-wodór wspólnie przyczyniły się do stabilizacji kompleksu ligand–białko (rysunek 4D–F). Wyniki dokowania dla testowanych związków są podawane jako wskaźniki wiązania (kcal/mol) i przedstawione w Tabeli 6. Ogólnie rzecz biorąc, wiązania wodorowe zapewniały swoistość i kotwicenie, interakcje hydrofobowe zwiększały osadzanie ligandów i wiążęcie, a oddziaływania van der Waalsa przyczyniały się do ogólnej stabilności złożonej. Wyniki te wskazują, że akonytyna może tworzyć stabilne kompleksy zarówno z JNK1, jak i JNK2, co wspiera jej potencjał jako czynnika celujących.
Acon zwiększa poziom fosforylacji JNK
Aby dalej zbadać wpływ Aconu na szlak sygnalizacyjny JNK w tkance mięśnia sercowego, oceniono ekspresję fosforylacji JNK1/2 metodą Western blotting. W porównaniu z grupami kontrolną i acet, grupy Acon-1 mg i Acon-2 mg wykazały istotnie podwyższone poziomy p-JNK1/2 (n = 3 szczury w grupie, jednokierunkowa ANOVA, p < 0,05). Ponadto poziom fosforylacji JNK1/2 był istotnie wyższy w grupie Acon-2 mg niż w grupie Acon-1 mg (p < 0,05) (Rysunek 5A). W grupie Acon-2 mg porównania między różnymi punktami czasowymi wykazały, że poziomy p-JNK1/2 były istotnie zwiększone po 1, 3 godzinach i 6 godzinach, z najwyższym poziomem obserwowanym po 6 godzinach (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05) (Rysunek 5B). Na podstawie tych wyników grupa Acon-2 mg po 6 godzinach została wybrana do kolejnych eksperymentów.
Inhibitor JNK łagodzi patologiczne uszkodzenia mięśnia sercowego oraz zabarwienia kolagenowe w tkance mięśnia sercowego szczurów
Aby dalej ocenić rolę regulacyjną szlaku sygnalizacyjnego JNK, poziomy ekspresji p-JNK1 i p-JNK2 w tkance mięśnia sercowego oceniono za pomocą Western blotting. W porównaniu z grupami kontrolną i DMSO, grupa Acon wykazała istotnie podwyższony poziom ekspresji p-JNK1 i p-JNK2 (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05). W porównaniu z grupą Acon, grupa Acon+SP600125 wykazała istotnie obniżone poziomy p-JNK1 i p-JNK2 (n = 3 szczury w grupie, jednokierunkowa ANOVA, p < 0,05). W przeciwieństwie do grupy Acon+SP600125, grupa Acon + Anis wykazała istotnie podwyższone poziomy ekspresji p-JNK1 i p-JNK2 (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05) (Rysunek 6).
Dalsze badania zostały zbadane skutki Anis i SP600125 na uszkodzenie mięśnia sercowego. Wyniki barwienia HE wykazały, że w porównaniu z grupą Acon, obrzęk śródmiąższowy tkanki sercowej w grupie Acon+SP600125 był zmniejszony, obrzęk niektórych kardiomiocytów zniknął, a cytoplazma komórkowa była jednolita. Przestrzeń mięśniowa jest pełna, przestrzeń międzymięśniowa staje się cieńsza, niektóre włókna mięśniowe są ułożone ściśle i uporządkowane, niewielka liczba jąder komórkowych jest głęboko zabarwiona, a cytoplazma włókien sercowych wykazuje małe, okrągłe wakuole, co ulega patologicznemu uszkodzeniu mięśnia sercowego. W porównaniu z grupą Acon+SP600125, grupa Acon + Anis miała złamane włókna mięśniowe, poszerzenie się między mięśniami, luźno i nieuporządkowane włókna mięśnia sercowego, obrzęk i zwyrodnienie komórek mięśnia sercowego, głębokie zabarwienie chromatyny jądrowej oraz obrzęk międzykomórkowy (Rysunek 7A).
Wykonano barwienie masonowe w celu oceny barwienia kolagenu w tkance mięśnia sercowego. W grupie Acon+SP600125 zaobserwowano umiarkowanie niebieskie obszary w śródmiąższu sercowym. W porównaniu z grupą Acon, frakcja objętościowa kolagenu (CVF) w grupie Acon+SP600125 była istotnie zmniejszona, co wskazuje na osłabienie zmian śródmiąższowych wywołanych przez Akonytynę. Dla porównania, w grupie Acon + Anis zaobserwowano bardziej rozległe obszary kolagenu zabarwionego na niebiesko w śródmiążuszu mięśnia sercowego w porównaniu z grupą Acon+SP600125, wraz ze znaczącym wzrostem CVF (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05) (Rysunek 7B). Ponadto nie stwierdzono istotnej różnicy w masie serca między grupami (Tabela 5). Biorąc pod uwagę krótki okres obserwacji (1–6 godzin), zmiany te częściej odzwierciedlają ostre zmiany śródmiąższowe, takie jak obrzęk czy zmiany wzorców barwienia kolagenu, niż ugruntowaną fibrozę mięśnia sercowego. Wyniki te sugerują, że SP600125 łagodzi uszkodzenie mięśnia sercowego wywołane przez akonytynę, podczas gdy anisomycyna dodatkowo pogarsza uszkodzenia mięśnia sercowego w tych warunkach eksperymentalnych.
Inhibitor JNK łagodzi ekspresję enzymów sercowych i białek sercowych w surowicy szczurów
Wyniki ELISA wykazały, że w porównaniu z grupą Acon, ekspresje CK-MB, AST i LDH były istotnie zmniejszone w grupie Acon + SP600125, podczas gdy ekspresje CK-MB, AST i LDH wzrosły po działaniu Anis (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05). Ponadto, w porównaniu z grupą Acon, ekspresja cTn-I i h-FABP była istotnie zmniejszona w grupie Acon + SP600125 (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05). W porównaniu z grupą Acon + SP600125, ekspresja cTn-I i h-FABP była istotnie zwiększona w grupie Acon + Anis (n = 3 szczury na grupę, jednokierunkowa ANOVA, p < 0,05) (Rysunek 8A–8B).
DOSTĘPNOŚĆ DANYCH:
Wszystkie surowe dane użyte w tym badaniu są dostępne w uzupełniających plikach załączonych do manuskryptu.
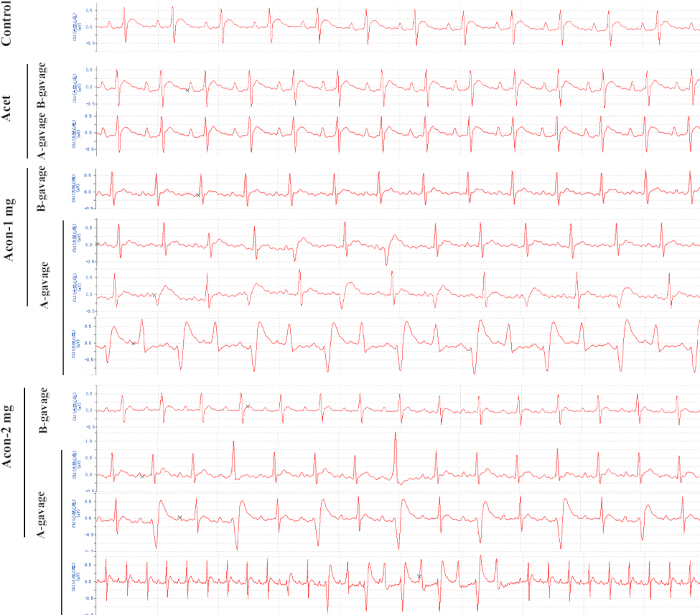
Rysunek 1: Elektrokardiogram ilustrujący arytmię u szczurów (po 6 godzinach działania Acon). Od góry do dołu: grupa kontrolna, grupa acet, grupa Acon-1 mg oraz grupa Acon-2 mg. Rodzaje arytmii w Acon-1mg-A-gavage oraz Acon-2mg-A-gavage (w kolejności występowania arytmii od góry do dołu): Acon-1mg-A-gavage: przedwczesne skurcze komorowe; przedwczesna bigemina komorowa; Tachykardia komorowa dwukierunkowa. Akon-2 mg-A-gavage: przedwczesne skurcze komór; przedwczesna bigemina komorowa; krótki wybuch tachykardii komorowej. Skróty; B-gavage = Przed gavage Acon; A-gavage = Po Acon gavage. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
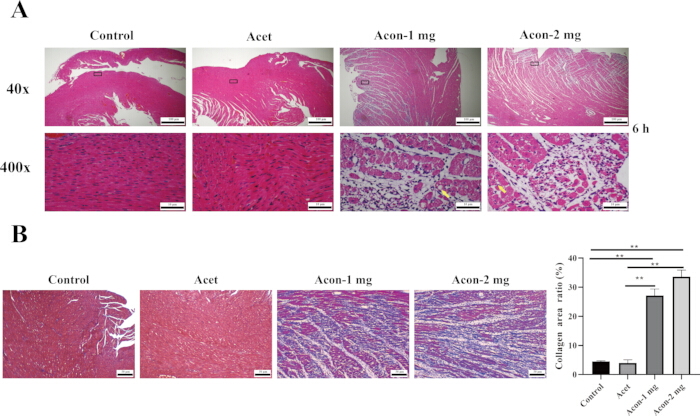
Rysunek 2: Uszkodzenie mięśnia sercowego i barwienie kolagenowe w tkance mięśnia sercowego szczura wskazane przez barwienia HE i Masson. (A) Zmiany patologiczne w tkance mięśnia sercowego szczura wykryto przez barwienie HE (żółta strzałka wskazuje okrągłe wakuole powstałe przez uszkodzone kardiomiocyty); skala = 100 μm. (B) Barwienie kolagenowe w tkance mięśnia sercowego szczura wykryto przez barwienie Masson; skala = 50 μm. Średnia ± SD, n = 3. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. *p < 0,05, **p < 0,01. 40x i 400x. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
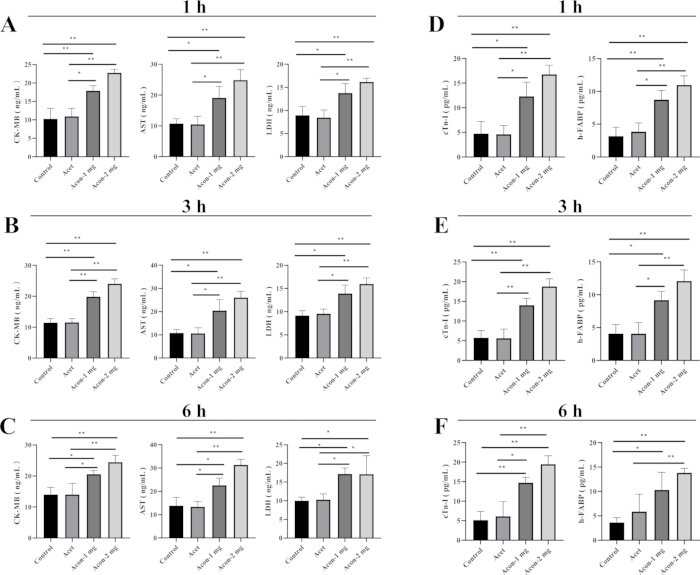
Rysunek 3: Poziomy CK-MB, AST, LDH, cTn-I i h-FABP w surowicy szczurów wskazywały na uszkodzenie mięśnia sercowego. (A–F). Poziomy CK-MB, AST, LDH, cTn-I i h-FABP były mierzone za pomocą zestawów ELISA. Średni±SD, n = 3. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. *p < 0,05, **p < 0,01. Skróty; CK-MB = kinaza kreatynowa – MB; AST = aminotransferaza asparagianowa; LDH = dehydrogenaza mleczanowa; cTn-I = Troponina sercowa I; h-FABP = białko wiążące kwasy tłuszczowe typu serca. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
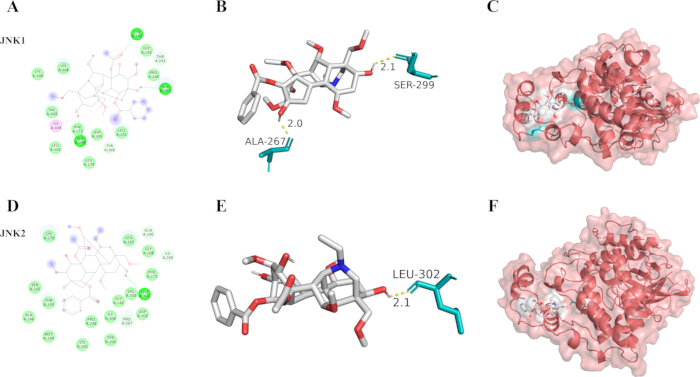
Rysunek 4: Wyniki molekularnego dokowania Acon szlakiem JNK. (A–B) oraz (D–E) Dwuwymiarowe diagramy interakcji Acona z białkiem JNK1/2. (C) i (F) Diagramy interakcji 3D Acon z białkiem JNK1/2. Skróty; JNK = c-Jun N-końcowa kinaza. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
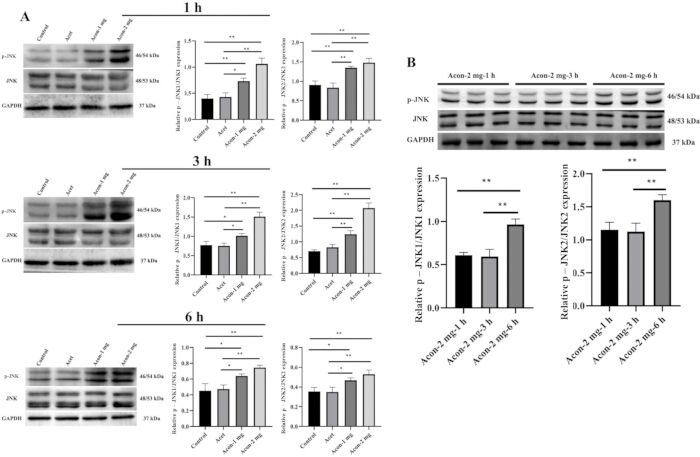
Rysunek 5: Acon podnosi poziom fosforylacji JNK. (A–B) Poziomy ekspresji p-JNK1/2 i JNK1/2 w tkankach mięśnia sercowego szczurów zostały wykryte metodą Western blotting. Średnia ± SD, n = 3. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. *p < 0,05, *p < 0,01. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
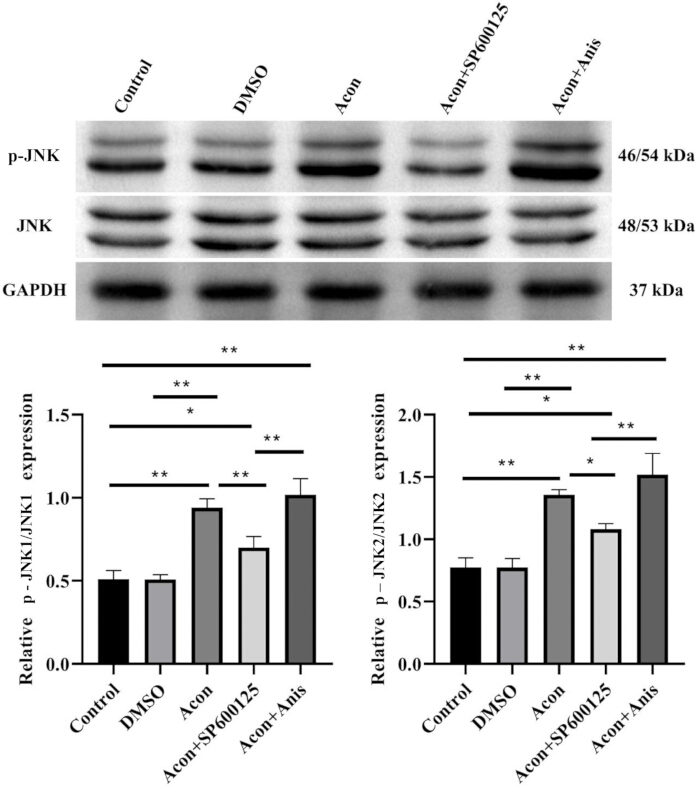
Rysunek 6: Inhibitor JNK hamuje fosforylację JNK indukowaną przez akon. Poziomy ekspresji p-JNK1/2 i JNK1/2 w tkankach mięśnia sercowego szczurów zostały wykryte metodą Western blotting. Średnia ± SD, n = 3. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. *p < 0,05, **p < 0,01. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
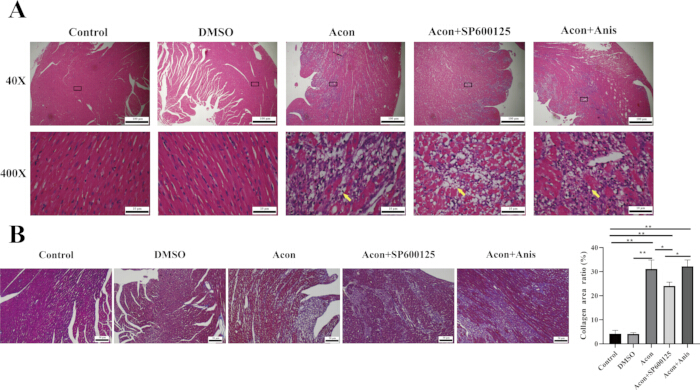
Rysunek 7: Inhibitor JNK łagodzi patologiczne uszkodzenia mięśnia sercowego i barwienia kolagenowe u szczurów. (A) Zmiany patologiczne w tkankach mięśnia sercowego szczurów wykryto za pomocą barwienia HE (żółta strzałka pokazuje okrągłe wakuole utworzone przez uszkodzone kardiomiocyty); skala = 100 μm. (B) Barwienie kolagenu w tkance mięśnia sercowego szczura wykryto przez barwienie Masson; skala = 50 μm. Średni±SD, n = 3. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. *p < 0,05, **p < 0,01. 40 i 400x. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
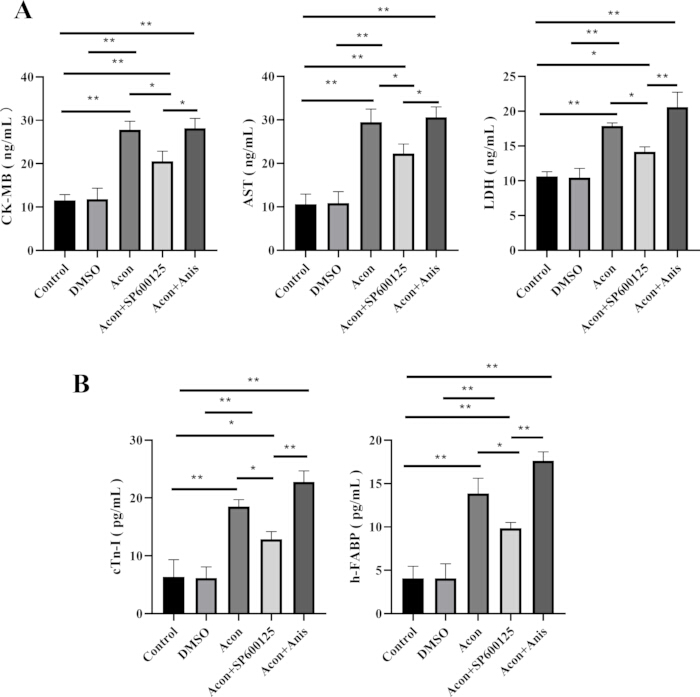
Rysunek 8: Inhibitor JNK obniża poziomy CK-MB, AST, LDH, cTn-I i h-FABP w surowicy szczurów. (A–B) Poziomy ekspresji CK-MB, AST, LDH, cTn-I i h-FABP zostały wykryte przez zestawy testowe ELISA. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. Średni±SD, n = 3. *p < 0,05, **p < 0,01. Skróty; CK-MB = kinaza kreatyna-MB; AST = aminotransferaza asparagianowa; LDH = dehydrogenaza mleczanowa; cTn-I = troponina sercowa I; h-FABP = białko wiążące kwasy tłuszczowe typu serca. Proszę kliknąć tutaj, aby zobaczyć większą wersję tej figurki.
| Kontrola | Acet | Acon-1 mg | Acon-2 mg | |
| Szczury | 9 | 9 | 9 | 9 |
| Liczba zgonów szczurów | 0 | 0 | 0 | 0 |
Tabela 1: Liczba śmierci szczurów po 1 godzinie akcji Acon. 1 godzinę po podaniu Acon żaden szczur nie zmarł w grupie kontrolnej, grupie Acet, Acon-1 mg i Acon-2 mg. (Liczba zwierząt ostatecznie uwzględnionych w analizie na grupę wynosiła 3, a martwe szczury nie zostały wymienione).
| Kontrola | Acet | Acon-1 mg | Acon-2 mg | |
| Szczury | 9 | 9 | 9 | 9 |
| Liczba zgonów szczurów | 0 | 0 | 0 | 0 |
Tabela 2: Liczba zgonów szczurów po 3 godzinach akcji Acon. 3 godziny po podaniu Aconu nie zginęły żadne szczury w grupach kontrolnych, Acet, Acon-1 mg i Acon-2 mg. (Liczba zwierząt ostatecznie uwzględnionych w analizie na grupę wynosiła 3, a martwe szczury nie zostały wymienione).
| Kontrola | Acet | Acon-1 mg | Acon-2 mg | |
| Szczury | 9 | 9 | 9 | 9 |
| Liczba zgonów szczurów | 0 | 0 | 4 | 4 |
Tabela 3: Liczba zgonów szczurów po 6 godzinach akcji Aconów. 6 godzin po podaniu Acona 4 z 9 szczurów zmarło w grupie Acon-1 mg, a 4 z 9 szczurów w grupie Acon-2 mg. (Liczba zwierząt ostatecznie uwzględnionych w analizie na grupę wynosiła 3, a martwe szczury nie zostały wymienione).
| Kontrola | DMSO | Acon | Acon + SP600125 | Acon + Anis | |
| Szczury | 9 | 9 | 9 | 9 | 9 |
| Liczba zgonów szczurów | 0 | 0 | 3 | 1 | 3 |
Tabela 4: Liczba zgonów szczurów po Anis i SP600125 akcji. Liczba zgonów szczurów różniła się w zależności od grupy leczonej: w grupie z Acon-2 mg zmarło 3 na 9 szczurów; w grupie Acon+SP600125 zmarł 1 na 9 szczurów; a w grupie Acon + Anis zginęły 3 na 9 szczurów. (Liczba zwierząt ostatecznie uwzględnionych w analizie na grupę wynosiła 3, a martwe szczury nie zostały wymienione).
| Grupa | Masa serca (g) |
| Kontrola | 0.71 ± 0.03 |
| Acet | 0.73 ± 0.02 |
| Acon-1mg (1 godzina) | 0.73 ± 0.06 |
| Acon-2mg (1 godzina) | 0.75 ± 0.02 |
| Acon-1mg (3 godziny) | 0.71 ± 0.04 |
| Acon-2mg (3 godziny) | 0.77 ± 0.03 |
| Acon-1mg (6 h) | 0.72 ± 0.03 |
| Acon-2mg (6 godzin) | 0.77 ± 0.02 |
| DMSO | 0.70 ± 0.03 |
| Acon + SP600125 | 0.74 ± 0.03 |
| Acon + Anis | 0.75 ± 0.04 |
Tabela 5: Ciężar serca szczurów. Nie stwierdzono istotnej różnicy w masie serca między grupami.
| Ligand | JNK1 | JNK2 |
| Acon | -7,8 Kcal/mol | -8,41 Kcal/mol |
Tabela 6: Wyniki badań dokowania molekularnego. Wyniki dokowania między Acon a JNK1 to -7,8 Kcal/mol, a wyniki dokowania między Acon a JNK2 to -8,41 Kcal/mol.
Ilustracja arytmii u szczurów wykonana elektrokardiogramem (po 1 godzinie działania Acon). Od góry do dołu: grupa kontrolna, grupa acet, grupa Acon-1 mg oraz grupa Acon-2 mg. Rodzaje arytmii w Acon-1mg-A-gavage i Acon-2mg-A-gavage (w kolejności występowania arytmii od góry do dołu): przedwczesne skurcze komorowe; przedwczesna bigemina komorowa; przedwczesny trójkąt komorowy; tachykardia komorowa o krótkim wybuchu; monomorficzną tętnicę komorową tachykardią; Tachykardia komorowa dwukierunkowa. Acon-2 mg-A-gavage: Tachykardia komorowa dwukierunkowa. Skróty; B-gavage = Przed gavage Acon; A-gavage = Po Acon gavage. Kliknij tutaj, aby pobrać ten plik.
Ilustracja arytmii u szczurów wykonana elektrokardiogramem (po 3 godzinach działania Acon). Od góry do dołu: grupa kontrolna, grupa acet, grupa Acon-1 mg oraz grupa Acon-2 mg. Rodzaje arytmii w Acon-1mg-A-gavage i Acon-2mg-A-gavage (w kolejności występowania arytmii od góry do dołu): Przedwczesne skurcze komory; krótkie epizody tachykardii komorowej; Tachykardia komorowa dwukierunkowa. Akon-2 mg-A-gavage: Przedwczesne skurcze komór; Tachykardia komorowa dwukierunkowa. Skróty; B-gavage = Przed gavage Acon; A-gavage = Po Acon gavage. Kliknij tutaj, aby pobrać ten plik.
Ilustracja uzupełniająca 3: Acon sprzyja uszkodzeniu mięśnia sercowego i barwieniu kolagenu po 1 godzinie działania Acon. (A) Zmiany patologiczne w tkankach mięśnia sercowego szczurów wykryto przez barwienie HE (Uwaga: żółta strzałka pokazuje okrągłe wakuole utworzone przez uszkodzone kardiomiocyty); skala = 100 μm. (B) Włóknienie tkanki mięśnia sercowego szczura wykryto przez barwienie Masson; skala = 50 μm. Średnia ± SD, n = 3. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. *p < 0,05, **p < 0,01, 40x i 400x. Proszę kliknąć tutaj, aby pobrać ten plik.
Ilustracja uzupełniająca 4: Acon sprzyja uszkodzeniu mięśnia sercowego i barwieniu kolagenu po 3 godzinach działania Acon. (A) Zmiany patologiczne w tkankach mięśnia sercowego szczurów wykryto przez barwienie HE (żółta strzałka pokazuje okrągłe wakuole powstałe przez uszkodzone kardiomiocyty); skala = 100 μm. (B) Barwienie kolagenu w tkance mięśnia sercowego szczura wykryto przez barwienie Masson; skala = 50 μm. Średnia ± SD, n = 3. Wszystkie wartości p zostały obliczone za pomocą niezależnej jednokierunkowej analizy wariancji. *p < 0,05, **p < 0,01. 40x i 400x. Proszę kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Acon może wywoływać arytmie i uszkodzenia mięśnia sercowego; jednak mechanizmy ukryte u podstaw uszkodzenia mięśnia sercowego wywołanego przez akon pozostają niejasne. W tym badaniu udało się stworzyć model szczura ostrego zatrucia Aconem z uszkodzeniem mięśnia sercowego. Wyniki te wykazały, że aktywacja szlaku sygnalizacyjnego JNK może stanowić kluczowy mechanizm w dalszej fazie uszkodzenia mięśnia sercowego wywołanego ostrym zatruciem Acon. Konkretnie, poziomy fosforylacji JNK1/2 były istotnie podwyższone u szczurów z arytmiami wywołanymi przez akon oraz uszkodzeniem mięśnia sercowego. Ponadto hamowanie szlaku JNK częściowo odwróciło uszkodzenia mięśnia sercowego spowodowane ostrym zatruciem Acon. Wyniki te sugerują, że aktywacja szlaku JNK odgrywa ważną rolę w patogenezie uszkodzenia mięśnia sercowego wywołanego przez akonytynę.
Główną przyczyną śmierci z powodu ostrego zatrucia Aconem jest kardiotoksyczność. Wcześniejsze badania wykazały, że po leczeniu Aconem włókna mięśnia sercowego u szczurów ulegały degeneracji i zaburzeniom, pogłębiało się barwienie jądrowe, doszło do infiltracji neutrofilów, a okrągłe wakuolepojawiły się 28. Jest to zgodne z wynikami badań. Barwienie HE wykazało, że tkanka mięśniowa sercowa w grupie leczonej Aconem wykazywała zmiany patologiczne, w tym nieuporządkowany układ pęczków mięśniowych, powiększanie szczelin mięśniowych oraz pęknięcie włókien mięśniowych. Ponadto, w normalnych warunkach, enzymy sercowe CK-MB, AST, LDH oraz białka sercowe cTn-I i h-FABP występują w bardzo małych ilościach w surowicy29. Gdy komórki mięśnia sercowego są uszkodzone, markery te są uwalniane do krwi w dużych ilościach 30,31,32,33.
Wyniki tego badania pokazują, że CK-MB, AST, LDH, cTn-I i h-FABP w surowicy żylnej szczurów w grupie dawczej Acon wzrastały w różnym stopniu w każdym punkcie obserwacji. Poziom ekspresji jest najwyższy po 6 godzinach podawania dobrzuszkowego. To odkrycie jest zgodne z wcześniejszymi badaniami34. Stwierdzili, że Acon uszkadzał kardiomiocyty H9C2 u szczurów oraz podnosił poziom AST. Tymczasem wcześniejsze badania wykorzystywały Acon do inwestowania uszkodzenia mięśnia sercowego u szczurów, aby zbadać wpływ antidotum na uszkodzenie mięśniasercowego 35. Stwierdzili, że poziomy LDH i CK-MB w surowicy szczurów z uszkodzeniem mięśnia sercowego były podwyższone. Krótko mówiąc, wyniki eksperymentalne wykrywania markerów uszkodzenia mięśnia sercowego pokazują, że model szczura uszkodzenia mięśnia sercowego wywołanego ostrym zatruciem Aconem można pomyślnie ustalić 1, 3 i 6 godzin po podaniu 1–2 mg/kg Acon w żołądku w żołądku. Efekt modelowania 2 mg/kg Aconu po podaniu dobrzuchaczkowym przez 6 godzin jest najlepszy i spełnia wymagania kolejnych eksperymentów.
Badania wykazały, że wpływ Aconu na kanały jonowe Na+ iCa 2+ prowadzi do wzrostu stężenia jonów wapnia wewnątrzkomórkowego, co dodatkowo aktywuje szlak sygnalizacyjny P38-MAPK i w konsekwencji wywołuje kaskadową reakcję JNK 36,37,38. Aktywacja JNK spowoduje uszkodzenie mięśnia sercowego39,40. Jest to zgodne z wynikami tego eksperymentu. W tym badaniu stwierdziliśmy, że Acon promował fosforylację JNK1/2 w kardiomiocytach i aktywował szlak sygnalizacyjny JNK. Sugeruje to, że aktywacja JNK może być odpowiedzią sygnalizacji w kolejnym stopniu, która przyczynia się do uszkodzenia mięśnia sercowego wywołanego przez akonytynę. Jednak molekularne i farmakokinetyczne mechanizmy leżące u podstaw stymulacji fosforylacji JNK1/2 przez Acon wymagają dalszych badań.
Badania wykazały, że gdy duża ilość JNK1/2 jest fosforylowana, aktywowany jest szlak sygnalizacyjny JNK, co z kolei pośredniczy w niekontrolowanej ekspresji genów w jądrze kardiomiocytów i zakłóca cykl komórkowy. Hamowanie szlaku sygnalizacyjnego JNK może złagodzić uszkodzenie mięśnia sercowego41,42. W wynikach HE inhibitor szlaku JNK SP600125 może znacząco zmniejszyć patologiczne zmiany w tkance mięśnia sercowego wywołane przez Acon. Tymczasem wcześniejsze badania wykazały, że w modelu szczura ostrego zawału mięśnia sercowego wywołanego podwiązaniem tętnic wieńcowych, włókna kolagenowe zabarwione na niebiesko oraz deponowanie kolagenu w tkance sercowej były wyraźnie zwiększone, a towarzyszyła im aktywacja szlaku sygnalizacyjnego JNK. Leczenie tradycyjnymi granulami medycyny chińskiej zmniejszyło odkładanie kolagenu mięśnia sercowego poprzez hamowanie szlaku sygnalizacyjnego JNK43,44.
U szczurów z cukrzycowym uszkodzeniem mięśnia sercowego zawartość błonnika kolagenowego (niebieskie zabarwienie) oraz frakcja objętościowa kolagenu (CVF) były istotnie zwiększone. Równocześnie aktywowano szlak sygnalizacyjny JNK. Niskie dawki etanolu hamują aktywację szlaku JNK, co zmniejsza wzrost odkładania włókien kolagenowych i CVF w tkance mięśnia sercowego szczura45. W niniejszym badaniu analiza dokowania molekularnego wskazała, że akonytyna może oddziaływać z JNK1 i JNK2 poprzez liczne niekowalencyjne interakcje; Jednak wyniki te powinny być traktowane jako dowód wspierający i nie stanowią bezpośredniego dowodu na wiązanie fizjologiczne. Ponadto eksperymenty in vivo wykazały, że Acon jako czynnik stresujący zwiększał fosforylację JNK1/2, aktywując tym samym szlak sygnalizacyjny JNK. Aktywacja ta wiązała się ze zwiększonym odkładaniem kolagenu (niebieskim barwieniem) oraz podwyższonym CVF w tkance mięśnia sercowego szczura, co ostatecznie prowadziło do uszkodzenia mięśnia sercowego. Jednak dodanie inhibitora JNK SP600125 znacząco hamowało toksyczne działanie Acon, zmniejszając wzrost wartości CVF tkanki mięśnia sercowego. Uszkodzenie mięśnia sercowego zaburza prawidłową integralność błony mięśnia serca oraz utratę zawartości wewnątrzkomórkowej do przestrzeni zewnątrzkomórkowej, co objawia się podwyższonym poziomem enzymów mięśnia sercowego we krwi46,47. Wyniki te wykazały, że wzrost poziomu enzymów mięśnia sercowego we krwi szczurów wskazuje również, że Acon powoduje uszkodzenie mięśnia sercowego. Jednocześnie inhibitory JNK hamowały wydzielanie enzymów mięśnia sercowego, co sugeruje, że inhibitory JNK mogą częściowo łagodzić uszkodzenia mięśnia sercowego spowodowane przez Acon.
Należy przyznać kilka ograniczeń tego badania. Po pierwsze, wielkość próby w każdym punkcie czasowym była stosunkowo mała (n = 3 na grupę), co może ograniczać moc statystyczną analiz, a formalna analiza mocy nie została przeprowadzona przed określeniem wielkości próby. Ponadto oceniano tylko pojedynczy zakres dawek akonytyny oraz stosunkowo krótkie okresy obserwacji (1–6 godzin), co ograniczało ocenę długoterminowych zmian patologicznych i zależności dawkowo-odpowiedzi. Po drugie, chociaż zwiększona fosforylacja JNK1/2 i interwencja farmakologiczna sugerowały udział szlaku sygnalizacyjnego JNK w uszkodzeniu mięśnia sercowego wywołanego przez akonytynę, mechanizmy powiązane z ekspozycją na akonytynę z aktywacją JNK nie zostały w pełni zbadane. Wiadomo, że akonytyna wpływa głównie na kanały Na⁺ zależne od napięcia oraz homeostazę Ca2⁺ wewnątrzkomórkową, co może przyczyniać się do dalszej aktywacji JNK. Jednak powiązane zdarzenia sygnalizacyjne, w tym stres oksydacyjny i szlaki przeciążenia wapnia, nie zostały bezpośrednio zbadane w niniejszym badaniu. Po trzecie, analiza dokowania molekularnego dostarczyła jedynie dowodów wspierających potencjalne interakcje między Akonytyną a JNK1/2 i nie wykazała bezpośredniego wiązania fizjologicznego. Nie przeprowadzono dodatkowych eksperymentalnych walidacji, takich jak rezonans plazmonów powierzchniowych czy testy pull-down. Ponadto badane były jedynie JNK1/2, podczas gdy potencjalna rola JNK3 w kardiotoksyczności wywołanej akonytyną pozostaje niejasna. Wreszcie, po interwencji SP600125 ani anizyny nie przeprowadzono oceny elektrokardiograficznej. Dlatego dalsze badania wymagają dalszych badań, czy regulacja szlaku JNK bezpośrednio wpływa na arytmie komorowe wywołane akonytyną.
Podsumowując, Acon aktywuje szlak sygnalizacyjny JNK, co potwierdza zwiększona fosforylacja JNK1/2, co może przyczyniać się do uszkodzenia mięśnia sercowego, co wskazuje zwiększone odkładanie kolagenu i zwiększone uwalnianie enzymów sercowych w tkance mięśnia sercowego szczura. Biorąc pod uwagę, że kardiotoksyczność wywołana akotyną wiąże się z wieloma zdarzeniami powyżej, w tym aktywacją kanału Na⁺, przeciążeniem Ca2⁺ oraz stresem oksydacyjnym, aktywacja szlaku JNK może stanowić kluczowe zdarzenie sygnalizacyjne w dalszej fazie przyczyniające się do uszkodzenia mięśnia sercowego.
Oświadczenia
Ten rękopis był wcześniej publikowany jako preprint na Research Square przed recenzją naukową i rozpatrzeniem publikacji. Preprint dostępny jest na:https://doi.org/10.21203/rs.3.rs-4218950/v1 48. Autorzy deklarują brak konkurencyjnych interesów.
Podziękowania
Prace te były wspierane przez Narodową Fundację Nauk Przyrodniczych Chin (82260387).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 4% paradehydu | Wuhan Service-bio Co., Ltd. | HJ203501 | Utrwalanie tkanek |
| Akonytyna (Acon) | Chengdu DeSiTe Biological Technology Co., Ltd. | DRK-0335-960330 | Toksyczny związek do modelu gavage |
| Roztwór Aniline Blue | Beijing Solarbio Co., Ltd. | G1350 | Barwienie Masona |
| Anisomycyna (Anis) | MedChemExpress Co., Ltd. | 153154 | Aktywator/kontrola szlaku JNK |
| AST ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E13023r | Wykrywanie enzymów sercowych |
| AutoDock Vina | Open-source | Nie ma | Dokowanie molekularne |
| Zestaw do testowania białek BCA | Sangon Biotech (Szanghaj, Chiny) | Nieokreślona | Ilościowa ilościowość białek |
| Wirówka | Dongguan cnzcn Co., Ltd. | TD5M-WS | 1000 i razy; Wirowanie g |
| Oprogramowanie Chem3D | PerkinElmer | Nie ma | Minimalizacja energii ligandów |
| CK-MB ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E14403r | Wykrywanie enzymów sercowych |
| cTn-I ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E08594r | Wykrywanie białek serca |
| Jednorazowa igła do pobierania krwi żylnej | KINDLY Co., Ltd. | https://www.kdlchina.cn/specimen-collection/220.html | Pobieranie krwi |
| Reagent o zwiększonej chemiluminescencji (ECL) | Millipore Co., Ltd. | 21302A4 | Wizualizacja zachodnich plam |
| Eosin | Beijing Solarbio Co., Ltd. | 20200905 | H& Barwienie E |
| GraphPad Prism 8 | GraphPad Software, Inc. | Nie ma | Analiza statystyczna |
| Hematoksylyna | Wuhan Service-bio Co., Ltd. | CR2203066 | H& Barwienie E |
| h-FABP ELISA Kit | Wuhan Huamei Biotechnology Co., Ltd. | CSB-E16184r | Wykrywanie białek serca |
| Oprogramowanie ImageJ | Narodowe Instytuty Zdrowia (NIH) | Nie ma | Kwantyfikacja zachodnich plam |
| Przeciwciało pierwotne JNK1/2 | HuaAn Biotechnology (Hangzhou, Chiny) | ET1609-42 | Przeciwciało Western blot |
| Zestaw LDH ELISA | Biotechnologia powiązana z enzymami w Szanghaju | ml003416 | Wykrywanie enzymów sercowych |
| Roztwór Masson Blue | Beijing Solarbio Co., Ltd. | 20220303 | Barwienie Masona |
| Czytnik mikropłyt | Thermo Fisher Scientific | ME001000C | Pomiar OD ELISA (450 nm) |
| Mikroskop optyczny (Olympus C33) | Olympus (Tokio, Japonia) | C33 | Obrazowanie histologiczne |
| Wosk parafinowy | Leica Co., Ltd. | 2110068 | Osadzanie tkanek |
| Bufor PBST | Meilunbio Co., Ltd. | MA0015-Apr-27G2 | Bufor do prania |
| przeciwciało pierwotne p-JNK1/2 | HuaAn Biotechnology (Hangzhou, Chiny) | ET1601-28 | Fosforylowane przeciwciało JNK |
| Bank Danych Białek (PDB) | RCSB | https://www.rcsb.org/ | Źródło struktury białka |
| Zestaw do ekstrakcji białek | Sangon Biotech (Szanghaj, Chiny) | C510003-0050 | Ekstrakcja białek tkanek |
| Baza danych PubChem | NIH | https://pubchem.ncbi.nlm.nih.gov | Źródło struktury ligandów |
| Membrana PVDF | Millipore Co., Ltd. | R1PB81493 | Zachodnia membrana transferowa blot |
| PyMOL | Schrö dinger, Inc. | https://pymol.org/ | Wizualizacja dokowania |
| SDS-PAGE Gel (10%) | Beijing Solarbio Co., Ltd. | 817X031 | Elektroforeza białkowa |
| Mleko odtłuszczone w proszku | Beijing Solarbio Co., Ltd. | http://www.solarbio-hd.com/solarbiohd-Products-23261665/ | Odczynnik blokujący (5%) |
| Pentobarbital sodu | Thermo Fisher Scientific Inc. | 57-33-0 | Znieczulenie do zabiegów na zwierzętach |
| SP600125 (Inhibitor JNK) | MedChemExpress Co., Ltd. | 112518 | Inhibitor szlaku JNK |
| Obiekt Mieszkalny SPF | Kunming Medical University | Nie ma | Warunki w osiedlach zwierząt |
| Szczury Sprague-Dawley (samiec, 2 miesiące, ~230 g) | Beijing Huafukang Biological Technology Co., Ltd. | http://www.hfkbio.com/ | Zwierzęta doświadczalne (n = 51) |
| Hematoksylyna Weigerta | Guangzhou Wexis Co., Ltd. | 18092001 | Barwienie Masona |
| Ksylen | Tianjin Tjhxsj Co., Ltd. | 20220208 | Oczyszczanie tkanek |