Ten protokół opisuje rekombinowaną produkcję i oczyszczanie hydrofobiny SC16 z Escherichia coli i zapewnia oparte na fluorescencji testy do monitorowania jej samozbierania.
Artykuł metodologiczny
Rekombinowana Produkcja I Oczyszczanie Hydrofobiny SC16 Z Escherichia coli I Monitorowanie Jej Samoukładania Za Pomocą Testów Fluorescencyjnych
W tym artykule
Podsumowanie
Streszczenie
Hydrofobiny to małe amfipatyczne białka, które samoistnie układają się na granicach hydrofobowo-hydrofilowych tworząc stabilne, wodoodporne powłoki na zarodnikach grzybów. Hydrofobiny klasy I tworzą szczególnie stabilne „włókna” zawierające uporządkowane struktury przypominające amyloid, które pokrywają powierzchnie. Ta niezwykła chemia powierzchni daje im potencjalne zastosowania w dostarczaniu leków, stabilizowaniu piany, emulsyfikacji i modyfikacji powierzchni. Aby wyprodukować hydrofobiny, potrzebne są kompleksowe, wysokowydajne protokoły z prostych systemów ekspresji. Ponadto konieczne jest zapewnienie łatwych metod charakteryzacji funkcji hydrofobiny po rekombinantnej produkcji i oczyszczeniu. Niniejszy artykuł opisuje protokoły do produkcji i charakteryzacji SC16, hydrofobiny klasy IB produkowanej przez grzyb Schizophyllum commune, która może być rekombinantnie ekspresowana w Escherichia coli i następnie oczyszczana w warunkach nieredukujących, natywnych. Obejmuje to transformację plazmidu ekspresyjnego kodującego SC16 związanego z białkiem fuzyjnym N-końcowym do E. coli, indukcję ekspresji białka, lizę komórek w warunkach natywnych, chromatografię powinowactwa i rozszczepienie proteazy w celu izolacji hydrofobiny w wydajnościach ≥5 mg. Samoistne układanie się SC16 można następnie monitorować za pomocą końcowych lub kinetycznych testów fluorometrycznych z wykorzystaniem tioflawiny T. Obie metody polegają na inkubacji SC16 z długotrwałym mieszaniem, aby promować samoistne układanie się na granicach powietrze-woda, i są monitorowane za pomocą pomiarów fluorescencji. Razem, te podejścia zapewniają uproszczone protokoły do czyszczenia SC16 i monitorowania jego samoistnego układania się i mogą być rozszerzone na inne systemy z podobnymi samoistnymi układaniami białek.
Wprowadzenie
Hydrofobiny to powierzchniowo czynne białka amfipatyczne wydzielane przez grzyby, które samorzutnie skupiają się na granicach hydrofobowo-hydrofilowych (np. na powierzchni powietrze-woda struktur grzybów). W naturze pełnią rolę powlekania zarodników i owocników1,2, czyniąc je odpornymi na wodę, zapobiegając zamuleniu kanałów powietrznych i ułatwiając rozsiewanie1. Ze względu na ich niezwykłą chemię powierzchniową, hydrofobiny mają wielorakie zastosowania przemysłowe, w tym powłoki zwiększające biokompatybilność implantów i protez3,4,5, biokompatybilne środki powierzchniowo czynne do wprowadzania leków i leczenie medyczne6,7,8,9,10 oraz kandydaci do uchwytywania nanoplastików11.
Hydrofobiny można podzielić na klasę I i klasę II, które obie samorzutnie skupiają się na granicach hydrofobowo-hydrofilowych, w tym powietrze-woda, olej-woda12,13,14, oraz plastik-woda15,16,17. Cechy charakterystyczne klasy I hydrofobin to tworzenie wysoce stabilnych struktur “pręcików” na granicach, zawierających uporządkowane amyloidopodobne (bogato zawierające arkusze β) cechy18, co sprawia, że są one szczególnie przydatne do zastosowań związanych z modyfikacją lub ochroną powierzchni. W przeciwieństwie do tego, hydrofobiny klasy II nie tworzą struktur amyloidopodobnych, ale zamiast tego tworzą warstwy, które można łatwo oddzielić1,18. Interesujące jest, że istnieje również trzecia klasa hydrofobin, której cechy strukturalne są zachowane z klasy I i II18,19. Ze względu na te różnice, monitorowanie samoskładania się hydrofobin jest ważne dla klasyfikacji i oceny prawidłowego fałdowania i funkcji rekombinantnie wytwarzanych hydrofobin.
Samoskładanie się hydrofobin można łatwo monitorować metodami fluorometrycznymi z użyciem barwników wiążących amyloid, takich jak tioflawina T (ThT), która wiąże się z strukturami krzyżowymi β obecnymi w amyloidach20. ThT zawiera pojedynczy wiązanie kowalencyjne oddzielające dwa pierścienie aromatyczne, które normalnie obracają się swobodnie. Po związaniu się z strukturami krzyżowymi β, rotacja ta staje się ograniczona, co powoduje fluorescencje20. Ze względu na swoją selektywną fluorescencje, ThT jest szeroko stosowany do monitorowania samoskładania się hydrofobin na granicach powietrze-woda21,22,23,24,25,26,27,28. Testy ThT dostarczają zależnych od czasu informacji kinetycznych na temat samoskładania się hydrofobin23,27,28, oferując korzyści w porównaniu z technikami takimi jak mikroskopika sił atomowych (AFM) i pomiary kąta styku, które są mniej wydajne i mniej przystosowane do analizy zależnej od czasu. Ponadto, ThT wykazuje silne wzmocnienie fluorescencji po związaniu się z strukturami krzyżowymi β, z minimalną fluorescenją w swobodnej formie20. Te właściwości sprawiają, że testy ThT są prostymi i wrażliwymi metodami monitorowania samoskładania się hydrofobin, które mogą być uzupełnione bardziej intensywnymi technikami strukturalnymi.
Biorąc pod uwagę różnorodne zastosowania hydrofobin, istnieje potrzeba dostępnych protokołów do monitorowania ich samoskładania się. W szczególności, obecny protokół zapewnia ramy dla optymalizacji czyszczenia i charakterystyki funkcjonalnej rekombinantnych hydrofobin. Wcześniej Morris i Sunde (2013) opisali protokoły dla rekombinantnej ekspresji w Escherichia coli, czyszczenia i monitorowania samoskładania się hydrofobin na podstawie ThT21. Praca ta rozszerza te metody, opisując zmodyfikowaną procedurę czyszczenia hydrofobiny SC16. SC16 to hydrofobina klasy I (z Schizophyllum commune) którą można łatwo oczyścić z E. coli bez konieczności denaturacji, redukcji lub reoksydacji wiązań dwusiarczkowych. W wyniku tego białko SC16 jest funkcjonalne, jak wykazano za pomocą testów samoskładania się na podstawie ThT, które monitorują tworzenie się pręcików. Celem tego artykułu jest szczegółowe opisanie kompleksowego i usprawnione protokołu dla rekombinantnej produkcji, czyszczenia i funkcjonalnych testów ThT hydrofobiny klasy IB SC16.
Protokół
Niniejsze badanie nie obejmuje udziału ludzi, zwierząt kręgowych ani pobierania tkanek. Dlatego nie wymagano zgody etycznej.
1. Ekspresja hydrofobiny SC16 w E. coli
- Transformować komórki SHuffle T7 Express E. coli przez wstrząs termiczny w temperaturze 42°C przez 45 s przy użyciu plazmidu ekspresyjnego pET-21 kodującego domeny B1 białka G związaną z sześcioma resztkami histydyny, związaną z SC16 (H-GB1-SC16).
UWAGA: Komórki SHuffle T7 Express zostały wybrane ze względu na ich zdolność do promowania prawidłowego formowania wiązań disulfidowych29. Plazmid H-GB1-SC16 można wygenerować przez klonowanie enzymami restrykcyjnymi, zgodnie z wcześniejszym opisem30. - Zaszczepić 2 mL bulionu lizogenicznego (LB) zawierającego 100 µg mL−1 ampicyliny pojedynczą kolonią. Inkubować przez noc w temperaturze 37°C z mieszaniem.
- Zaszczepić 1 L LB (w 2,8 L kołbce z dnem okrągłym) 1 mL hodowli nocnej. Hodować kulturę w temperaturze 37°C z mieszaniem (~120–135 rpm, koło obiegu o średnicy 19 mm) do momentu osiągnięcia gęstości optycznej 0,6 ± 0,1 przy 600 nm.
- Dodać izopryl-β-D-1-tiogalaktopyranozyd do stężenia końcowego 0,5 mM w celu indukcji ekspresji H-GB1-SC16. Inkubować przez noc w temperaturze 20°C z mieszaniem.
UWAGA: Ta temperatura została wybrana, aby zmniejszyć ryzyko tworzenia ciałek inkluzji i niewłaściwego fałdowania31. - Zebrać komórki przez wirowanie w wirówce w temperaturze 4000 × g przez 20 min. Odebrać nadstan.
PAUZA: Przechowywać peletkę komórkową w temperaturze −20°C przez maksymalnie 3 tygodnie przed przystąpieniem do czyszczenia. Unikać wielokrotnych cykli zamrażania i rozmrażania.
2. Czyszczenie hydrofobiny SC16
- Ponownie zawiesić peletkę komórkową w 30 mL buforu lizującego (20 mM tris(hydroksymetylo)aminometan [Tris], pH 8, 250 mM NaCl).
- Lizysować komórki poprzez inkubację zawiesiny w łaźni wodnej o temperaturze 80°C przez 15 min. Łagodnie mieszać co 5 min podczas inkubacji.
UWAGA: Ten krok opiera się na stabilności cieplnej SC16 i może nie być odpowiedni dla innych białek.
OSTROŻNOŚĆ: Podczas obsługi probówek i łaźni wodnych w temperaturze 80°C używać rękawic odpornych na wysoką temperaturę. Unikać rozbryzgiwania gorącej cieczy podczas mieszania i usuwania probówek. - Wirować lizat komórkowy w wirówce w temperaturze 25 000 × g przez 20 min w temperaturze 4°C. Naładować nadstan na kolumnę ciążącą zawierającą 2–3 mL żelu Ni2+ związanego z chromatografią wiązań metali (IMAC).
- Przepłukać kolumnę buforem lizującym zawierającym 30 mM imidazolu. Eluować białko za pomocą 10 mL buforu lizującego zawierającego 300 mM imidazolu.
- Dializować eluowane frakcje przeciwko 1 L buforu zawierającego Tris (pH 8; 20 mM) i NaCl (50 mM) przez 3 h za pomocą rurek dializowych o przepuszczalności cząstek 3500 kDa, mieszając z prędkością 100 rpm.
UWAGA: Prędkość mieszania podczas dializy może się różnić w zależności od konfiguracji (na przykład objętość rurek i geometria becherka). Mieszaj z minimalną prędkością rpm niezbędną do wywołania łagodnego obrotu worka dializowego. - Dodać proteazę trombinową (20 U mg−1 białka fuzyjnego) bezpośrednio do worka dializowego (10 mL łącznej objętości reakcji) w celu rozcięcia białka fuzyjnego. Zastąpić bufor.
- Po dodaniu proteazy i zastąpieniu bufora kontynuować dializę przez noc w temperaturze 4°C. Następnego dnia wznowić czyszczenie. Zweryfikować zakończenie rozcięcia za pomocą SDS-PAGE (oczekiwanie na zniknięcie pasma o masie cząsteczkowej ~18 kDa i pojawienie się pasm o masach ~10 i ~8 kDa).
- Ponownie załadować dializowany próbekę na kolumnę IMAC związaną z Ni2+. Przepłukać i eluować za pomocą około 12 mL buforu zawierającego 30 mM i 300 mM imidazolu odpowiednio.
- Analizować zebrane frakcje za pomocą elektroforezy SDS-PAGE w warunkach redukujących (z użyciem β-merkaptoetanol w buforze ładunkowym). Zidentyfikować SC16 na podstawie obecności pasma w frakcji przepłukiwanej o oczekiwanej masie cząsteczkowej (~10 kDa). Dializować frakcję przepłukiwaną zawierającą SC16 w całości przeciwko 1 L buforu zawierającego Tris (pH 8; 20 mM) i NaCl (50 mM) przez 3 h w celu usunięcia resztkowego imidazolu.
Wyniki
Rysunek 1 przedstawia żel SDS-PAGE barwiony Coomassie'go, monitorujący oczyszczanie SC16. Kody reprezentują marker (M), przed indukcją (B), po indukcji (A), roztwór rozpuszczalny (S), przepływ (F), mycie (W), eluat (E) oraz dializowane (D). W pierwszym eluacie IMAC pasmo o szacowanej masie cząsteczkowej ~18 kDa odpowiada białku H-GB1-SC16 przed rozcięciem przez trombinę. Po rozcięciu trombiną, nie ma białka w drugiej frakcji przepływu IMAC, a pasmo o masie ~10 kDa odpowiadające SC16 w myciu. W drugim eluacie IMAC, istnieje nieco resztkowego SC16 i mniejsze białko o masie ~8 kDa odpowiadające H-GB1. Oczyszczone SC16 zostało następnie użyte do końcowych i kinetycznych badań samozbierania. Wyniki te potwierdzają pomyślne oczyszczenie SC16, jak wskazuje obecność pasma o spodziewanej masie cząsteczkowej i separacja partnera fuzyjnego H-GB1 po rozcięciu przez trombinę.
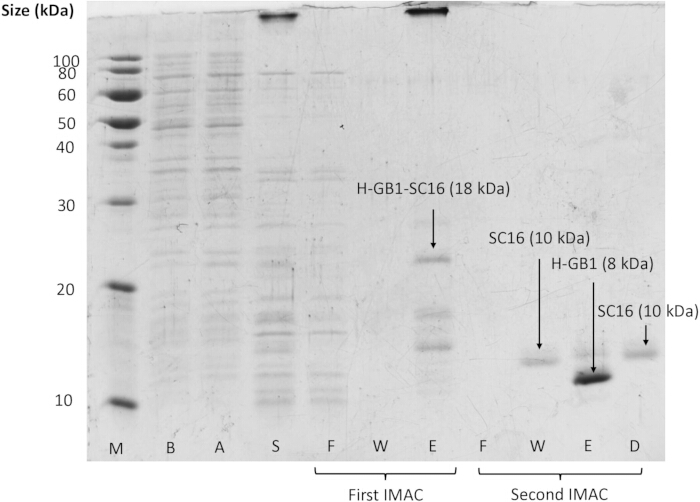
Rysunek 1. Analiza SDS-PAGE oczyszczania SC16 dla pierwszej (przed rozcięciem trombiną) i drugiej (po rozcięciu trombiną) separacji IMAC. Przedstawiono marker masy cząsteczkowej (M), wraz z próbkami pobrane przed indukcją (B), po indukcji (A), nadstanem po lizie komórek (S), przepływem (F), myciem (W) i eluatem (E) oraz próbką dializowaną (D). Prosimy kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
Końcowe badanie ThT samozbierania SC16 przedstawione w Tabeli 1 ujawnia 11-krotny wzrost intensywności fluorescencji ThT po 2 godzinach rotacji na blacie w porównaniu do kontroli zawierających białko, które nie były obracane. Podobnie nie obserwujemy znaczącej zmiany intensywności fluorescencji po obracaniu próbek buforu. Ten wzrost fluorescencji ThT po agitowaniu SC16 reprezentuje tworzenie amyloidopodobnych łańcuchów β, które są wskaźnikiem samozbierania SC1624,25. Te wyniki pokazują, że opisany test oparty na fluorescencji skutecznie monitoruje samozbieranie SC16 w warunkach testowanych.
| Próbka | Fluorescencja ThT (liczba ± SD) |
| SC16 bez obrotu | 2679 ± 177 |
| SC16 po obrocie | 30315 ± 2141 |
| Bufor po obrocie | 665 ± 888 |
Tabela 1. Pomiary fluorescencji ThT zebrane po obrocie próbek SC16. Próbki SC16 (50 µg mL-1) były albo inkubowane bez agitowania albo poddane obrotowi przez 2 godziny. ThT (20 µM) dodawano przed pomiarami fluorescencji. Fluorescencja była mierzona przy długościach fal wzbudzenia i emisji 438 i 494 nm, odpowiednio, i jest raportowana jako surowe liczby. Wartości są prezentowane jako średnia ± odchylenie standardowe (SD).
Kinetyczne badanie samozbierania SC16, gdy jest agitowane w różnych buforach przez kilka godzin, jest przedstawione w Rysunku 2. Typowe S-kształtne krzywe kinetyczne samozbierania dla fibryl amyloidowych obejmują charakterystyczne okresy opóźnienia, wzrostu i plateau38. W przypadku SC16 nie obserwuje się znaczącego okresu opóźnienia podczas początkowych odczytów, chociaż to zachowanie zostało udokumentowane dla innych hydrofobów, takich jak EAS21,23. Krzywe samozbierania dla każdego pH są porównywalne, ze mocnymi, dodatnimi stokami odpowiadającymi formowaniu się rurek. Po około 20 minutach agitowania, intensywność fluorescencji osiąga plateau, a następnie powoli maleje. W próbkach kontrolnych bez SC16, nie ma znaczących zmian w fluorescencji przez cały eksperyment.
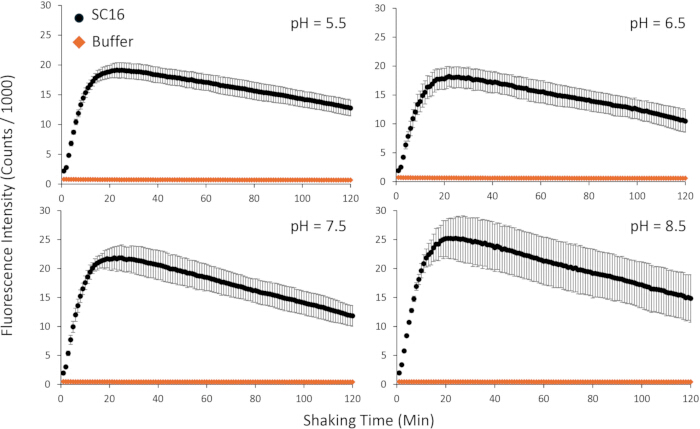
Rysunek 2. Krzywe samozbierania SC16 mierzone za pomocą kinetycznego testu fluorescencji ThT. SC16 został przygotowany w stężeniu 50 µg mL-1 w buforze wieloskładnikowym zawierającym 20 µM ThT, 50 mM NaCl, 20 mM fosforanu sodu, 20 mM MES i 20 mM Tris. Pomiary były wykonywane po 60 sekundach mieszania orbitalnego i 10 sekundowej przerwie. Oś x reprezentuje czas mieszania (łącznie 2 godziny). Fluorescencja była mierzona przy długościach fal wzbudzenia i emisji 438 nm i 494 nm, odpowiednio, i jest raportowana jako liczby × 10-3. Paski błędu reprezentują odchylenie standardowe (n = 3). Panele odpowiadają pH 5,5 (góra lewa), 6,5 (góra prawa), 7,5 (dół lewa) i 8,5 (dół prawa).
Dyskusja
Tu streszczamy protokoły dotyczące ekspresji i oczyszczania hydrofobiny SC16, jak również nisko- i wysoko przepustowe testy fluorescencyjne samoagregacji SC16, każdy z charakterystycznymi zaletami i wadami. Te metody mogą być zastosowane do powiązanych systemów w celu monitorowania samoagregacji białek. W tym protokole do lizatu komórek przed oczyszczaniem SC16 stosuje się ciepło, w przeciwieństwie do większości protokołów, które wykorzystują bardziej tradycyjne metody lizatu E. coli. Stwierdziliśmy, że H-GB1-SC16 jest rozpuszczalny i stabilny w wysokiej temperaturze do 80°C, a lizat ciepłowy służy jako początkowy krok oczyszczania próbki poprzez wytrącanie niestabilnych termicznie proteaz i innych białek zanieczyszczających w lizacie komórkowym39. Jednak SC16 reprezentuje specjalny przypadek, ponieważ hydrofobiny są często eksponowane nierozpuszczalnie w ciałach wtrąceniowych12,21,40. Kiedy są wyrażane jako ciała wtrąceniowe, warunki denaturujące są zazwyczaj wymagane, po których następuje refoldowanie za pomocą ustalonych protokołów21,40,41.
W tym protokole stosuje się SDS-PAGE do oceny oczyszczania SC16 na każdym etapie, w tym na osiadku komórkowym przed i po indukcji, ułamku rozpuszczalnym po lizie komórkowej i wszystkich kolejnych ułamkach kolumny. Jest to zilustrowane na Rysunku 1; jednak w porównaniu z H-GB1, pasmo odpowiadające SC16 jest stosunkowo słabe. Stwierdziliśmy, że dla wielu hydrofobin, w tym SC16, osiągnięcie jednolitego i intensywnego barwienia Coomassie jest wyzwaniem. SC16 zazwyczaj pojawia się jako pasmo o średniej intensywności, gdy β-merkaptoetanol jest stosowany jako środek redukujący (Rysunek 1). W niektórych przypadkach, srebrne barwienie może być wymagane, aby bardziej wyraźnie wizualizować hydrofobiny.
Testy fluorescencyjne końcowe i kinetyka mogą być użyte do monitorowania samoagregacji SC16. Test końcowy ThT jest korzystny, ponieważ zapewnia szybki, prosty ocenę samoagregacji. Oprócz wzrostu fluorescencji po 2h rotacyjnego obracania, samoagregacja jest często towarzyszona widocznej białej chmurności w probówce reakcji. Ten test wykorzystuje prosty obracacz stołowy do mieszania, co minimalizuje zużycie komponentów czytnika mikroplatek. Z naszego doświadczenia, ten test jest stosunkowo mało wrażliwy na parametry instrumentalne, takie jak ustawienia mieszania w czytniku mikroplatek.
Kinetyczny test ThT zapewnia bardziej szczegółowe informacje na temat samoagregacji. Na przykład, samoagregacja SC16 nie zależy znacząco od warunków buforowych24, choć większa różnorodność między powtórzeniami jest obserwowana przy wyższych wartościach pH. Jednak ta zachowanie nie jest uniwersalne wśród hydrofobin, a czynniki takie jak stężenie soli, pH24,27,42 i dodatki (np. detergenty lub alkohole) są znane jako wpływające na samoagregację hydrofobin27,28. Na przykład, hydrofobina SLH4 wykazuje bardziej wydajną samoagregację przy niskiej sile jonowej i niskim pH24, podczas gdy samoagregacja HFBII została zgłoszona jako niezależna od pH i stężenia elektrolitów42, podobnie jak SC16. Inne badania powiązały wpływ dodatków na tworzenie się włókien z zmianami napięcia powierzchniowego27,28. Biorąc pod uwagę te różnice, ważne jest uwzględnienie składu buforu i pH dla każdego systemu oraz monitorowanie ich wpływu na krzywą samoagregacji, w tym fazy opóźnienia, wzrostu i płaskiego dna.
Ważnym ograniczeniem jest to, że kinetyczny test ThT jest bardzo wrażliwy na parametry instrumentalne czytnika mikroplatek i może się różnić między instrumentami. Na przykład, znaczna różnica w samoagregacji SC16 jest obserwowana między ustawieniami mieszania orbitalnego (ruch kołowy) a liniowym (tam i z powrotem) (Rysunek 2 i Rysunek 3 odpowiednio). Podczas gdy testy oparte na ThT zapewniają efektywną metodę modelowania samoagregacji hydrofobin, mają one wrodzone ograniczenia z powodu zmiennej selektywności, co może prowadzić do fałszywie dodatnich lub fałszywie ujemnych sygnałów43. Dodatkowo, rozpraszanie światła z agregatów hydrofobin może wpływać na mierzoną intensywność fluorescencji44, zmniejszając dokładność pomiaru. Rozcieńczanie próbki i zmniejszona długość ścieżki może pomóc złagodzić te efekty.
Podsumowane tutaj protokoły zapewniają efektywne metody do oczyszczania i monitorowania samoagregacji SC16. Test końcowy jest prosty i mniej zależny od instrumentacji, podczas gdy test kinetyczny zapewnia szczegółowe informacje czasowe, choć z więks
Oświadczenia
Autorzy deklarują, że nie mają żadnych konkurencyjnych interesów finansowych ani niefinansowych.
Podziękowania
Autorzy uznają wsparcie finansowe z New Frontiers in Research Fund (Exploration Stream; NFRFE-2023-00322) oraz Natural Sciences and Engineering Research Council of Canada (NSERC; Discovery Grant; RGPIN-2024-06440). IED jest wspierany przez stypendium Canada Graduate Scholarship – Master’s Program (NSERC). RH jest wspierany przez darczyńców Molly Appeal poprzez Program Stypendialny dla Absolwentów 2024 Wydziału Medycznego Dalhousie oraz Nova Scotia Graduate Scholarship (poziom doktorancki).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2-(N-morpholino)ethanesulfonic acid (MES) | Sigma-Aldrich | 145224-94-8 | Składnik bufru do testów samoodczepiania |
| 5 mL round bottom polystyrene tube | Falcon | 352054 | Używany do testów samoodczepiania o niskiej wydajności |
| 96-well black polystyrene microplate | Grenier | 655076 | Używany do pomiarów fluorescencji w czytniku płytek mikro |
| Acrylamide/Bis-acrylamide (29:1) solution (40%) | BioShop | ACR004.500 | Używany do przygotowywania żeli SDS-PAGE |
| Agar | BioShop | AGR002.1 | Agar używany do przygotowania płytek LB odpornych na ampicylinę |
| Ampicillin | IBI Scientific | IB02040 | Antybiotyk używany na płytkach LB-agar |
| Baffled 2.8 L Fernbach flasks | Fisher Scientific | 955239 | Używany do hodowli dużych objętości kultur bakteryjnych |
| β-mercaptoethanol | TCI Chemicals | 60-24-2 | Środek redukujący używany w przygotowaniu próbek do SDS-PAGE |
| Column (1.5 cm diameter gravity column) | Bio-Rad | 7371522 | Używany do niklowej czystości afinicyjnej |
| Dialysis tubing (3500 kDa MWCO) | BioDesign | D302 | Używany do wymiany bufru podczas czyszczenia |
| Emission filter | Edmund Optics | 84080 | Używany do testów ThT (494 nm, pasmo przenoszenia 20 nm) |
| Excitation filter | Edmund Optics | 67012 | Używany do testów ThT (438 nm, pasmo przenoszenia 24 nm) |
| Fluorescence microplate reader | Tecan | Infinite F200 Pro | Używany do pomiaru intensywności fluorescencji ThT |
| Hotplate | Lab Fish | HS5C | Używany do ustawienia kąpieli wodnej z monitorowaniem temperatury |
| Hydrochloric acid (HCl) | Fisher Chemical | A144-212 | Używany do regulacji pH buforów |
| Imidazole | TCI Chemicals | 288-32-4 | Używany w czyszczeniu IMAC (bufry do płukania i elucji) |
| Isopropyl β-D-1-thiogalactopyranoside (IPTG) | Sigma-Aldrich | 367-93-1 | Indukuje ekspresję białek w E. coli |
| LB broth (Lennox) | BioShop | LBL405.5 | Ścięgno wzrostu do hodowli bakterii |
| Low-speed refrigerated centrifuge | Beckman Coulter | 360291 | Używany do osadzania komórek przed przechowywaniem |
| Nickel NTA agarose beads | GoldBio | H-350-50 | Żywica używana do afinicyjnej czystości białek z tagiem His |
| SC16 plasmid | BioBasic | N/A | Niestandardowa konstrukcja DNA kodująca białko fuzyjne H-GB1-SC16 |
| SHuffle T7 Express competent E. coli | New England Biolabs | C3029J | Odmiany szczepu żywiciela używane do ekspresji białek rekombinowanych |
| Sodium chloride (NaCl) | BioShop | SOD001.5 | Składnik bufru i regulator siły jonowej |
| Sodium hydroxide (NaOH) | Fisher Chemical | SS255-1 | Używany do regulacji pH buforów |
| Sodium phosphate | BioShop | SPD579.1 | Składnik bufru do utrzymania pH |
| Spectrophotometer | Pharmacia Biotech | 5096 | Używany do ilościowego oznaczania SC16 |
| Thioflavin T (ThT) | Acros Organics | 2390-54-7 | Fluorescencyjny barwnik używany do monitorowania samoodczepiania białek |
| Thrombin protease | Sigma-Aldrich | 04-04-9002 | Używany do rozszczepienia białka fuzyjnego H-GB1-SC16 |
| Tris(hydroxymethyl)aminomethane (Tris) | BioShop | TRS001.5 | Bufer używany w roztworach do czyszczenia i testów |
| High-speed refrigerated centrifuge | Sorvall | 46915 | Używany do klarowania lizatu po lizie komórek |
| SDS-PAGE setup | Bio-Rad | 1658000EDU | Używany do przygotowywania i uruchomienia żeli SDS-PAGE |
Przedruki i uprawnienia
