Oporność na antybiotyki wśród szczepów Escherichia coli adhezywno-inwazyjnych stanowi wyzwanie dla oceny inwazji bakteryjnej przy użyciu tradycyjnego testu ochrony gentamycyną. Opisano ulepszoną metodę oceny ilościowej inwazji bakteryjnej poprzez liczenie jednostek tworzących kolonie i oceny jakościowej poprzez wizualizację zakażonych komórek za pomocą konfokalnej mikroskopii immunofluorescencyjnej.
Artykuł metodologiczny
Test ochrony amikacyny do ilościowego i wizualnego określenia Escherichia coli inwazji komórkowej
W tym artykule
Podsumowanie
Streszczenie
Inwazja na komórki nabłonkowe jest kluczowym fenotypem dla wielu patogenów jelitowych, w tym Salmonella, Shigella i Vibrio. Wśród nowo pojawiających się patogenów inwazyjnych jest szczep Escherichia coli (AIEC), który jest zaangażowany w patogenezę choroby zapalnej jelit (IBD). Szczepy AIEC nie posiadają czynników wirulencji zwykle kojarzonych z innymi patogenami inwazyjnymi, co sprawia, że ich genetyczne identyfikowanie jest trudne. W rezultacie szczepy AIEC są klasyfikowane fenotypowo na podstawie ich zdolności do inwazji na komórki nabłonkowe za pomocą testu ochrony przez gentamycynę, który jest standardem w danej dziedzinie. Jednakże, ponieważ szczepy AIEC są często izolowane od pacjentów z IBD, którzy otrzymują różne antybiotyki jako część ich schematu leczenia, wzrost szczepów odpornych na gentamycynę sprawił, że ten test jest mniej wiarygodny w klasyfikacji AIEC. Aby obejść ten problem, opracowano alternatywny test ochronny oparty na amikacynie do ilościowego i wizualnego określenia inwazji AIEC. Test ten wykorzystuje amikacynę, szeroko działający półsyntetyczny aminoglikozyd, który skutecznie atakuje szczepy odporne na inne aminoglikozydy, pozostając jednocześnie poza komórkami eukariotycznymi gospodarza. W ten sposób bakterie pozakomórkowe są zabijane podczas infekcji, podczas gdy bakterie wewnątrzkomórkowe są "chronione". Stanowi to podstawę ilościowego testu do porównywania inwazyjności szczepów, mierzonej jako procentowa liczba inwazji przy użyciu jednostek tworzących kolonie (CFU) odzyskanych po infekcji. Test ten może być również stosowany jako jakościowa miara inwazji poprzez immunobarwienie zainfekowanych komórek nabłonkowych i wizualizacji tych komórek za pomocą mikroskopii konfokalnej. Ta metoda służy jako narzędzie diagnostyczne do przesiewania pacjentów z IBD pod kątem AIEC, które można również zastosować do innych wielolekowych patogenów opornych na leki w celu oceny inwazji komórkowej, która jest zastępczą miarą wirulencji i patogenności.
Wprowadzenie
Choroba zapalna jelit (IBD), która obejmuje chorobę Crohna (CD) i wrzodziejące zapalenie jelita grubego, jest przewlekłym stanem zapalnym przewodu pokarmowego, który dotyka miliony ludzi na całym świecie1. Mimo rosnącej globalnej częstości występowania IBD, jej dokładna etiologia pozostaje niejasna, ze względu na skomplikowany układ czynników genetycznych, środowiskowych, mikrobiologicznych i immunologicznych2,3. Charakterystyczną cechą IBD jest zmieniony skład mikrobioty jelitowej, która jest często napędzana przez czynniki środowiskowe, takie jak wysokokaloryczna, wysoko tłuszczowa dieta, powszechna w krajach uprzemysłowionych4,5. Mikrobiota pacjentów z IBD jest często charakteryzowana przez zmniejszoną różnorodność mikrobioty, wzbogacenie patogennych Gammaproteobakterii i wyczerpanie ochronnych Firmicutes6,7. U pacjentów z CD, Escherichia coli (E. coli) jest wzbogacona w mikrobiocie jelitowej, kojarzy się i inwazyjnie wnika w błonę śluzową jelit, i pozytywnie koreluje z aktywną i ciężką postacią choroby8,9. Ten nowo pojawiający się patotypus E. coli związany z CD nazywany jest adhezywno-inwazyjnym Escherichia coli (AIEC).
AIEC to gram-ujemne patogeny oportunistyczne, które kolonizują błonę śluzową jelita krętego pacjentów z CD z większą skłonnością niż zdrowi kontrolni10. Szczepy AIEC izolowane od pacjentów z CD są genetycznie zróżnicowane, często obejmując wszystkie fylogenyE. coli, które zawierają zarówno komensalne jak i patogenneE. coli11. W przeciwieństwie do patogenów takich jak Shigella i Salmonella, które opierają się na użyciu systemów sekrecji typu III w celu ułatwienia inwazji komórek gospodarza, AIEC nie posiadają tych zachowanych systemów wirulencji12. Dlatego nasze rozumienie wirulencji AIEC w dużej mierze opiera się na jej in vitro fenotypie, który charakteryzuje się zdolnością do adhezji do i inwazji na komórki nabłonkowe oraz przetrwania wewnątrz makrofagów10.
Inwazja komórek nabłonkowych przez AIEC jest pośredniczona przez wiele czynników wirulencji, w tym pilus typu 1 i długie polarne fimbrie. FimH, zlokalizowany na końcu pilus typu 1, pośredniczy w adhezji do reszty mannozowych na silnie glikozylowanym receptorze gospodarza CEACAM613. To powiązanie promuje wejście AIEC do enterocytów i wspiera jego replikację wewnątrzkomórkową14. AIEC również adhezuje do mikrofal (M) komórek, specjalizowanych komórek nabłonkowych zlokalizowanych nad łatkami Peyera poprzez interakcje między jej długimi polarnymi fimbriami a białkiem powierzchniowym komórki M glikoproteiną 215,16. Ta adhezja umożliwia AIEC translokację przez komórki M, osiągnięcie położonych pod nimi makrofagów i wywołanie ekspresji cytokin prozapalnych takich jak TNF-α, które nie tylko promują stan zapalny, ale także wspierają replikację bakterii wewnątrz makrofagów17,18. Te patogenne mechanizmy są hipotetyzowane jako utrzymujące przewlekłe zapalenie w gospodarzu, jak obserwowano w CD.
AIEC są zdefiniowane przez swój in vitro fenotyp, co sprawia, że test ochrony gentamycyną jest niezbędny do klasyfikacji szczepów i odkrywania czynników wirulencji8. Podejście to może być skomplikowane przez szczepy odporne na gentamycynę, które mogą prowadzić do ich niewłaściwej klasyfikacji jako inwazyjnych11. Aby obejść ten problem, przetestowano alternatywne antybiotyki, które skutecznie zabijają szczepy odporne na gentamycynę bez penetrowania błon komórek gospodarza. Dzięki temu podejściu amikacyna została zidentyfikowana jako odpowiednia alternatywa dla gentamycyny, oferująca porównywalną skuteczność i zgodność ze standardowymi testami inwazji, a także minimalną cytotoksyczność, jak wykazano przez barwienie trypanowym niebieskim w poprzednich badaniach i dalsze potwierdzenie tutaj za pomocą testu uwalniania dehydrogenazy mleczanowej (Dodatkowa Figura 1)11. Amikacyna jest półsyntetycznym aminoglikozydem pochodnym kanamacyny, który hamuje wzrost bakterii poprzez zakłócanie syntezy białek19. Amikacyna jest szczególnie skuteczna przeciwko wielolekoodpornym bakteriom Gram-ujemnym, w tym gatunkomPseudomonas, Acinetobacter iEscherichia19. Warto zauważyć, że modyfikacje strukturalne rdzenia kanamacyny sprawiają, że amikacyna jest mniej podatna na bakteryjne enzymy inaktywujące aminoglikozydy
Protokół
UWAGA: Protokół ten opisuje metodę oceny zdolności do inwazji szczepów AIEC na komórki epitelialne Caco-2. Stężenie amikacyny użyte w tym protokole (240 µg/mL) odpowiada 10× minimalnemu stężeniu hamującemu (MIC), jak określono za pomocą pasków testowych na amikacynę MIC na panelu 32 reprezentatywnych klinicznych szczepów AIEC u 13 pacjentów z chorobą zapalną jelit11. Badacze powinni wyznaczyć MIC dla własnych szczepów AIEC przed wykonaniem testu (patrz Tabela Materiałów), ponieważ wrażliwość na antybiotyki może się różnić między szczepami. Sekcja 1 szczegółowo opisuje test ochrony amikacyną w celu ilościowego określenia procentowej inwazji, a Sekcja 2 opisuje test ochrony amikacyną na potrzeby mikroskopii konfokalnej.
1. Test ochrony amikacyną w celu ilościowego określenia procentowej inwazji
- Powłoka kolagenowa 24-dołkowych płytek
- Rozcieńczyć 35,29 µL sterylnego kwasu octowego (patrz Tabela Materiałów) w 30 mL 1× PBS (patrz Tabela Materiałów) w 50 mL stożkowym probówce.
- Pipętować 300 µL kolagenu (patrz Tabela Materiałów) do 1× PBS z roztworem kwasu octowego.
- Wirować roztwór przez 10 s aby dobrze go wymieszać.
- Podzielić 250 µL rozcieńczonego roztworu kolagenu na każdy dołek sterylnej 24-dołkowej płytki tkankowej.
UWAGA: 30 mL roztworu kolagenu wystarczy na powłokę około pięciu 24-dołkowych płytek. - Przechylać płytkę we wszystkich kierunkach, aby upewnić się, że roztwór jednolicie pokrył dno każdego dołka.
- Inkubować płytki w temperaturze 37 °C przez 2 h aby umożliwić kolagenowi przyleganie do powierzchni plastikowej.
- Po zakończeniu inkubacji aspirować roztwór kolagenu z każdego dołka.
- Pipętować 1 mL 1× PBS do każdego dołka, aby zmyć pozostałości kolagenu, a następnie aspirować z każdego dołka. Powtórzyć ten krok jeszcze 2 razy (łącznie 3 płukania).
- Wysuszyć płytki wewnątrz szafki biologicznej, aby upewnić się, że cała widoczna wilgoć zaparowała.
UWAGA: Płytki można natychmiast wykorzystać do wysiewu komórek lub można je przechowywać w temperaturze pokojowej. Podczas przechowywania płytek należy uszczelnić zewnętrzny obwód sterylnym parafilmem lub umieścić je w sterylnej torbie z zamkiem błyskawicznym.
- Przygotowanie roztworów macierzystych amikacyny
- Waż 240 mg disulfatu amikacyny (patrz Tabela Materiałów) i przenieś do 1,5 mL mikroprobówki.
- Pipętować 1 mL sterylnej wody i rozpuścić amikacynę wirując, uzyskując końcowe stężenie 240 mg/mL (stężenie macierzyste 1000×).
- Zrobić 20 µL alikwotów roztworu amikacyny i przechowywać w temperaturze -20 °C.
UWAGA: Amikacyna jest stabilna w temperaturze -20 °C przez 6–12 miesięcy. Przygotowywać jednorazowe alikwoty, aby zminimalizować wielokrotne cykle zamrażania i rozmrażania.
- Przygotowanie komórek Caco-2
- Rozblokowanie komórek Caco-2 z zamrożonego zapasu
- Przygotować pełny medium wzrostowe, uzupełniając high-glucose Dulbecco's Modified Eagle Medium (DMEM, patrz Tabela Materiałów) o 10% surowicy wołowej (FBS, patrz Tabela Materiałów) i 1% antybiotyczno-antymikotycznego roztworu (patrz Tabela Materiałów).
- Podgrzać medium w kąpieli wodnej o temperaturze 37 °C przez 30 min.
- Umieścić zamrożoną fiolkę z komórkami Caco-2 w kąpieli wodnej o temperaturze 37 °C i inkubować przez 1–2 min, aż komórki się całkowicie rozmrozą.
- Wyjąć fiolkę z kąpieli wodnej i spryskać zewnętrzną część fiolki 70% etanolem.
- Wewnątrz szafki biologicznej pipętować komórki do 15 mL stożkowej probówki zawierającej 9 mL pełnego medium wzrostowego.
- Wyśrodkować komórki w temp. 500 × g przez 5 min w temperaturze pokojowej.
- Aspirerować nadstan i ponownie zawiesić pelętkę komórkową w 5 mL pełnego medium wzrostowego.
- Przenieść komórki do 75 cm2 kolby tkankowej (T75) zawierającej 10 mL ciepłego pełnego medium wzrostowego.
- Przesuwać kolbę 3 razy, aby upewnić się, że komórki są równomiernie rozmieszczone na dnie kolby.
- Inkubować komórki w temperaturze 37 °C z
- Rozblokowanie komórek Caco-2 z zamrożonego zapasu
Wyniki
Aby ocenić skuteczność leczenia amikacyną w eliminowaniu bakterii zewnątrzkomórkowych oraz zwizualizować inwazję wewnątrzkomórkową, przeprowadzono eksperymenty zakażeniowe z użyciem monowarstw komórek Caco-2. Jak pokazano na Ryc. 1, zastosowanie gentamycyny lub amikacyny po zakażeniu szczepem E. coli NRG857c (kontrola pozytywna) lub E. coli DH5α (kontrola negatywna) doprowadziło do uzyskania podobnych profili inwazji. Wyniki te wskazują, że amikacyna jest tak samo skuteczna jak gentamycyna w eliminowaniu bakterii zewnątrzkomórkowych i dokładnie odzwierciedla wewnątrzkomórkowe obciążenie bakteryjne, co potwierdza możliwość jej stosowania jako alternatywnego antybiotyku w testach inwazyjności. Zakres odzysku na poziomie ~4-10% dla NRG857c oraz <1% dla E. coli DH5α jest uznawany za akceptowalny dla dokładnej interpretacji fenotypów inwazyjnych w odniesieniu do szczepów mutantów lub innych izolatów klinicznych, co jest zgodne z wcześniejszymi obserwacjami11. Jeśli wartości procentowe inwazji dla kontroli pozytywnej i negatywnej wykraczają poza ten oczekiwany zakres odzysku, wyniki należy interpretować z ostrożnością, a test należy powtórzyć.
Aby wykazać, że amikacyna może skutecznie celować w kliniczne izolaty E. coli oporne na gentamycynę, równolegle przeprowadzono testy ochrony z użyciem gentamycyny oraz amikacyny, a następnie zbadano profile inwazyjności izolatów. Jak pokazano na Rysunku 2, traktowanie izolatów opornych na gentamycynę tą substancją doprowadziło do bardzo zróżnicowanych wartości odzysku, mieszczących się w zakresie od 21,52% do 2788,50%. W przeciwieństwie do tego, traktowanie amikacyną drastycznie zmniejszyło odzysk we wszystkich izolatach, co podkreśla jej skuteczność i umożliwia bardziej dokładny oraz wiarygodny pomiar inwazyjności.
Wreszcie, aby ocenić fenotyp wewnątrzkomórkowy AIEC podczas inwazji, komórki Caco-2 zainfekowano szczepem E. coli NRG857c. Rycina 3 przedstawia reprezentatywny obraz zainfekowanej komórki Caco-2 z bakteriami (kolor zielony) barwionymi metodą immunofluorescencji, aktyną gospodarza (kolor czerwony) oraz DNA (kolor niebieski), wizualizowanymi odpowiednio poprzez przeciwbarwienie rodaminą-falloidyną i Hoechstem. W 4 h po infekcji obserwuje się replikację NRG857c w cytoplazmie, lokalizującą się w pobliżu jądra oraz w obrębie granic aktynowych, co potwierdza wewnątrzkomórkowy charakter tych bakterii.
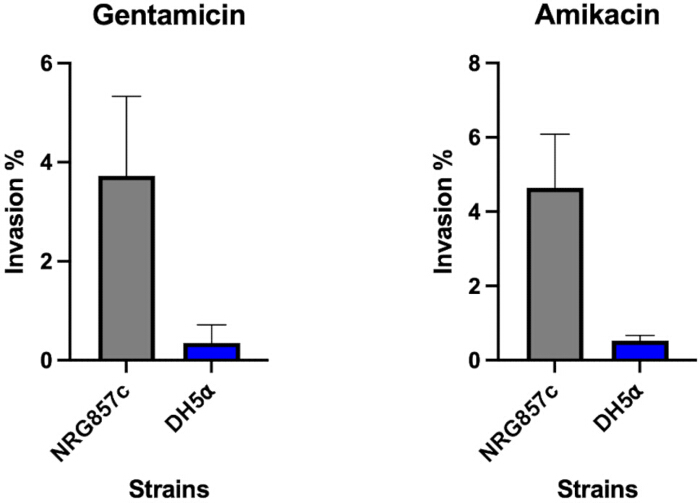
Rycina 1: Dodanie gentamycyny lub amikacyny do komórek Caco-2 zainfekowanych szczepem AIEC NRG857c skutkuje porównywalnymi profilami inwazji. Monowarstwy komórek Caco-2 zainfekowano szczepem AIEC NRG857c oraz E. coli DH5α z MOI równym 10. Po 3 godzinach infekcji komórki traktowano przez 1 h gentamycyną (100 µg/mL) lub amikacyną (240 µg/mL) w celu wyeliminowania bakterii zewnątrzkomórkowych. Następnie komórki lizoowano za pomocą 1% Triton-X-100, a homogenaty rozcieńczano szeregowo i wysiewano na agar LB w celu wyliczenia CFU. Inwazję wyrażono jako procent odzyskanych bakterii w stosunku do początkowego inokulum. Dane reprezentują trzy niezależne eksperymenty (n = 3); słupki błędów wskazują odchylenie standardowe średniej. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
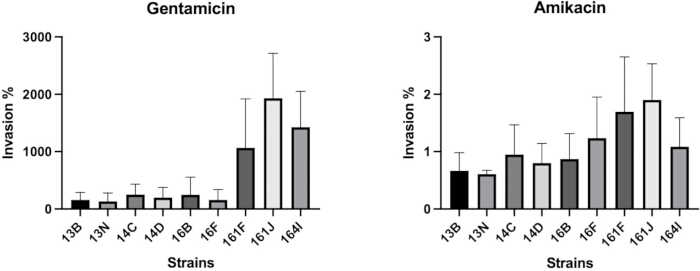
Rysunek 2: Amikacyna skutecznie zwalcza szczepy E. coli oporne na gentamycynę. Monowarstwy komórek Caco-2 zainfekowano szczepami E. coli wyizolowanymi od pacjentów z IBD przy MOI wynoszącym 10. Po 3 h infekcji komórki traktowano przez 1 h gentamycyną (100 µg/mL) lub amikacyną (240 µg/mL) w celu wyeliminowania bakterii zewnątrzkomórkowych. Następnie komórki poddano lizie przy użyciu 1% Triton-X-100, a homogenaty rozcieńczano seryjnie i wysiewano na agar LB w celu oznaczenia CFU. Inwazję wyrażono jako procent odzyskanych bakterii w stosunku do początkowego inokulum. Dane reprezentują trzy niezależne eksperymenty (n = 3); słupki błędów wskazują odchylenie standardowe średniej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
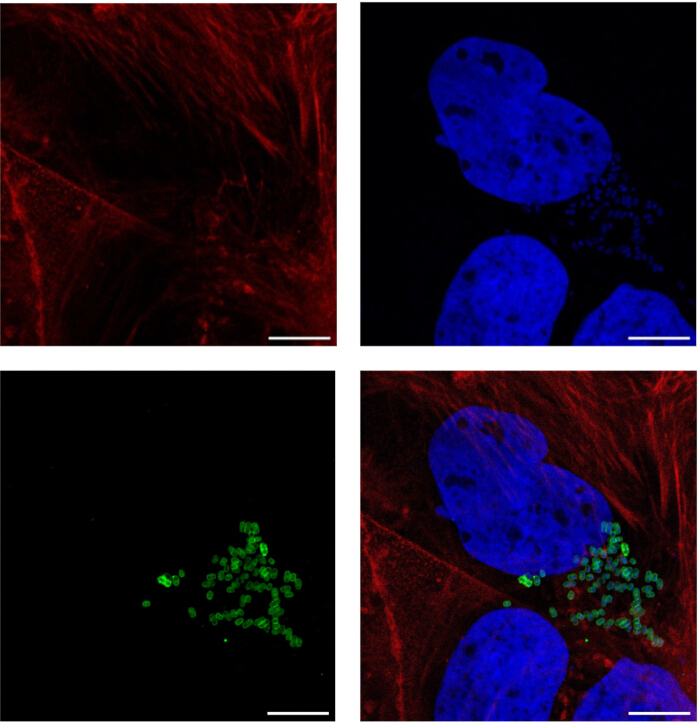
Rysunek 3: Wizualizacja inwazji komórek nabłonkowych przez E. coli. Reprezentatywne mikrografie konfokalne komórek Caco-2 zainfekowanych E. coli NRG857c. Komórki Caco-2 były infekowane przez 3 h, a następnie inkubowane przez 1 h z amikacyną (240 µg/mL). Aktynę gospodarza barwiono rodaminą-faloidyną (czerwony), a DNA gospodarza i bakterii barwiono Hoechst (niebieski). E. coli (zielony) wykrywano przy użyciu przeciwkrólika przeciwciała pierwotnego przeciwko E. coli oraz koziego przeciwkrólika przeciwciała wtórnego Alexa Fluor 488. Obrazy zarejestrowano przy użyciu obiektywu 63× z 3-krotnym powiększeniem (zoom) za pomocą konfokalnego mikroskopu Leica. Paski skali = 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
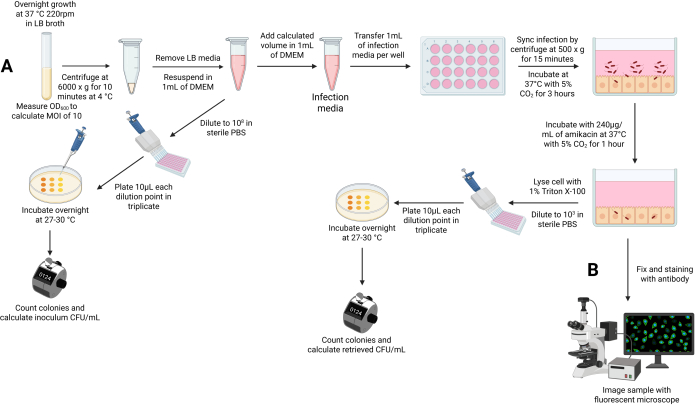
Rysunek 4: Schemat przebiegu badania. (A) Szczepy AIEC hodowano przez noc, przemyto i dodano do monowarstw Caco-2 przy MOI wynoszącym 10. Po 3 h infekcji i 1 h leczenia amikacyną odzyskano bakterie wewnątrzkomórkowe i określono ich liczbę poprzez wysiewanie rozcieńczeń seryjnych w trzech powtórzeniach. (B) Zainfekowane monowarstwy utrwalono, zabarwiono przeciwciałami i obrazowano za pomocą mikroskopii fluorescencyjnej. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Rycina uzupełniająca 1: Traktowanie amikacyną powoduje minimalną cytotoksyczność w komórkach nabłonkowych. Komórki Caco-2 poddano działaniu gentamycyny (100 µg/mL) lub amikacyny (240 µg/mL) przez 1 h. Cytotoksyczność określono poprzez pomiar dehydrogenazy mleczanowej uwalnianej do pożywki hodowlanej. Słupki błędów wskazują odchylenie standardowe średniej (n = 3).Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Test ochrony amikacyny jest zmodyfikowanym podejściem do oceny E. coli najazdu na komórki nabłonkowe. Kilka kroków jest kluczowych dla sukcesu tego testu, w tym powlekanie płytek kolagenem, utrzymanie integralności monowarstwy i efektywne lizysowanie komórek. Komórki Caco-2 są liniami komórek adhezywnych, które mogą przylegać do plastyku przeznaczonego do hodowli tkankowej i tworzyć monowarstwy20. Jednak podczas infekcji, stosowanie mediów bez surowicy i wielokrotne płukanie może wpływać na oderwanie komórek, prowadząc do niedoreprezentacji najazdu bakteryjnego21. Aby rozwiązać ten problem, powlekanie płytek składnikami macierzy pozakomórkowej, takimi jak kolagen typu IV, może promować przyleganie komórek i tworzenie stabilnej, skupione monowarstwy podczas infekcji21. Jest to ważne, ponieważ szczep AIEC LF82 wykazuje zdolność do zakłócania szczelnych połączeń podczas najazdu, a niekompletne uformowanie monowarstwy może ominąć ten krok, prowadząc do zakrzywionych wyników22. Ostatecznie, efektywna lizysowanie komórek jest kolejnym kluczowym etapem, który wpływa na odzyskiwanie bakterii, ponieważ niekompletna lizysowanie mogłoby zamaskować zdolności najazdowe, komplikując wyniki testu23. Aby temu zapobiec, ważne jest dokładne resuspendowanie lizatu komórkowego po inkubacji z Tritonem-X-100.
Oprócz wyzwań technicznych, które mogą przyczyniać się do zmienności testu najazdu, odsetek inokulum odzyskanego po infekcji dla szczepu AIEC LF82 wykazuje się zakresem od 0,61 do 17,25%8. Ta zmienność może być wpłynięta przez brak pewnych wskazówek środowiskowych, takich jak sole żółciowe, mucyna i inne przemiany jelitowe w tym in vitro eksperymencie, które są znane z przyczyniania się do wirulencji AIEC24,25,26. Szczególnie sole żółciowe wykazują indukowanie ekspresji długich, polarnych włosków, które zwiększają przyleganie i przemieszczanie AIEC przez komórki M27. Inne patogeny przewodu pokarmowego, takie jak Vibrio i Shigella, są znane z regulacji ich systemów wydzielania typu III w odpowiedzi na żółć, aby pośredniczyć w najaździe na komórki nabłonkowe28,29. Przeszczepianie z solami żółciowymi w celu indukcji ekspresji czynników wirulencji jest standardem w protokołach ochrony gentamycyny dla innych patogenów, a hodowla AIEC z tymi wskaźnikami środowiskowymi może stabilizować najazd i przynieść bardziej spójne profile30,31.
Inną ograniczeniem tego testu jest to, że najazd bakteryjny ocenia się w jednym punkcie czasowym, co, choć standardowe w tej dziedzinie, prawdopodobnie upraszcza proces inwazji12. Najazd bakteryjny to dynamiczny proces obejmujący przyleganie, internalizację, replikację wewnątrzkomórkową i ucieczkę z komórki gospodarza32. Ponieważ nowe geny przyczyniające się do najazdu AIEC były trudne do zidentyfikowania, użycie testu z jednym punktem czasowym mogłoby niedoreprezentować liczby genów przyczyniających się do tego procesu12. Dlatego testy najazdu z przebiegiem czasowym były wykorzystywane do oceny, jak określone geny przyczyniają się do najazdu i do badania replikacji AIEC w komórkach I-407 i Hep-28,33. Podczas gdy użycie testu najazdu z przebiegiem czasowym jest wartościowe dla charakteryzacji wkładu pojedynczych genów w najazd, jest to pracotrębne, szczególnie podczas badania wielu izolowanych klinicznie. Z tego powodu jeden punkt czasowy jest używany do oceny najazdu.
Dodatkowo, wewnątrzkomórkowy tryb życia AIEC nie został bardzo dobrze scharakteryzowany. Większość badań używa odsetka najazdu jako głównej wskaźki do wykrywania zmian w liczbie kolonii wirulencji różnych mutantów z delecją czynników wirulencji14,34. Wizualizowanie zakażonych komórek gospodarza może zapewnić unikalne wgląd w biologię AIEC, które są pomijane podczas używania tylko liczenia kolonii35. Dlatego, aby kompleksowo ocenić rolę różnych genów w najaździe na komórki, wykonywanie mikroskopii immunofluorescencyjnej zakażonych komórek powinno być wykonywane w tandem z liczeniem kolonii. Jest to ważne, ponieważ może prowadzić do identyfikacji genów, które funkcjonują w przetrwaniu i ucieczce z endosomu, kierują się na cytoszkielet gospodarza lub wykazują różnice w obciążeniu bakteryjnym na komórkę, które mogłyby zostać pominięte przy użyciu tylko odzyskiwania kolonii. Ważne jest, aby zauważyć, że użycie opisanej tutaj procedury barwienia immunofluorescencyjnego do wykrywania bakterii wewnątrzkomórkowych nie rozróżnia między prawdziwie zinternalizowanymi bakteriami a tymi przyczepionymi do powierzchni komórki
Oświadczenia
Autorzy deklarują brak konfliktów interesów.
Podziękowania
Praca ta była wspierana przez Howard Hughes Medical Institute Emerging Pathogens Initiative (K.O., J.N.), grant fundacji Welch I-1561 (K.O.), Once Upon a Time Foundation (K.O.), grant NIH R35 GM134945 (K.O.), grant NIH NIDDK K08-DK-123316 (J.N.), Burroughs Wellcome Fund Career Awards for Medical Scientists - 1020904 (J.N.) oraz NIH T32 AI007520 (S.F.).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 75 cm2 Tissue culture flask | Fisher Scientific | FB012937 | |
| Amikacin disulfate | Research Products International | A20540-25.0 | |
| Antibiotic-Antimycotic (100x) | Gibco | 15240062 | |
| Anti-E.coli antibody | Abcam | ab137967 | |
| BioLite microwell plates - 6 well | Fisher Scientific | 12-556-004 | |
| Bovine serum albumin | Sigma-Aldrich | A7906 | |
| Collagen I, Rat tail, 100 mg | Corning | 354236 | |
| Countess cell counting chamber slide | Invitrogen | C10312 | |
| DMEM, high glucose | Gibco | 11965118 | |
| Fetal bovine serum | Corning | 35-011-CV | |
| Glacial acetic acid | Sigma-Aldrich | A6283 | |
| Glycine ultrapure | USBiological | G8165 | |
| Goat anti-Rabbit IgG (H + L) cross-adsorbed secondary antibody, Alexa Fluor 488 | Invitrogen | A-11008 | |
| Hoechst 33342, trihydrochloride trihydrate | Invitrogen | H3570 | |
| Liofilchem MTS amikacin [AK] 0.016-256 μg/mL | Fisher Scientific | 22-777-704 | Amikacin MIC Test Strips |
| Paraformaldehyde solution, 4% in PBS | Fisher Scientific | J19943.K2 | |
| PBS, 1x | Corning | 21-040-CV | |
| Poly-L-lysine coated sterile German glass coverslips for cell culture | Neuvitro | NC1327375 | |
| ProLong gold antifade mountant | Invitrogen | P36934 | |
| Rhodamine-Phalloidin | Invitrogen | R415 | Red-orange 540/565 nm |
| Surface treated sterile tissue culture plates | Fisher Scientific | FB012929 | 24-well plates |
| Triton X-100 (Electrophoresis) | Fisher Scientific | BP151-100 | |
| Trypan blue | Invitrogen | T10282 | |
| Trypsin-EDTA (0.25%), phenol red | Gibco | 25200056 | |
| Tween-20 | Fisher Scientific | BP337-100 |
Bibliografia
- Bruner, L. P., White, A. M., Proksell, S. Inflammatory bowel disease. Prim Care. 50 (3), 411-427 (2023).
- Richard, N., Savoye, G., Leboutte, M., Amamou, A., Ghosh, S., et al. Crohn's disease: Why the ileum?. World J Gastroenterol. 29 (21), 3222-3240 (2023).
- Hracs, L., et al. Global evolution of inflammatory bowel disease across epidemiologic stages. Nature. 642 (8067), 458-466 (2025).
- Lewis, J. D., Abreu, M. T. Diet as a trigger or therapy for inflammatory bowel diseases. Gastroenterology. 152 (2), 398-414.e6 (2017).
- Khan, S., et al. Dietary simple sugars alter microbial ecology in the gut and promote colitis in mice. Sci Transl Med. 12 (567), (2020).
- Ma, X., et al. Gut microbiota in the early stage of Crohn's disease has unique characteristics. Gut Pathog. 14 (1), 46 (2022).
- Vester-Andersen, M. K., et al. Increased abundance of proteobacteria in aggressive Crohn's disease seven years after diagnosis. Sci Rep. 9 (1), 13473 (2019).
- Boudeau, J., Glasser, A. L., Masseret, E., Joly, B., Darfeuille-Michaud, A. Invasive ability of an Escherichia coli strain isolated from the ileal mucosa of a patient with Crohn's disease. Infect Immun. 67 (9), 4499-4509 (1999).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Barnich, N., et al. Adherent-invasive Escherichia coli in Crohn's disease: the 25th anniversary. Gut. , (2025).
- Kim, J., et al. Genetic and microbial analysis of invasiveness for Escherichia coli strains associated with inflammatory bowel disease. Cell Mol Gastroenterol Hepatol. 19 (4), 101451 (2025).
- Camprubi-Font, C., Martinez-Medina, M. Why the discovery of adherent-invasive Escherichia coli molecular markers is so challenging?. World J Biol Chem. 11 (1), 1-13 (2020).
- Barnich, N., et al. CEACAM6 acts as a receptor for adherent-invasive E. coli, supporting ileal mucosa colonization in Crohn disease. J Clin Invest. 117 (6), 1566-1574 (2007).
- Boudeau, J., Barnich, N., Darfeuille-Michaud, A. Type 1 pili-mediated adherence of Escherichia coli strain LF82 isolated from Crohn's disease is involved in bacterial invasion of intestinal epithelial cells. Mol Microbiol. 39 (5), 1272-1284 (2001).
- Hase, K., et al. Uptake through glycoprotein 2 of FimH(+) bacteria by M cells initiates mucosal immune response. Nature. 462 (7270), 226-230 (2009).
- Chassaing, B., et al. Crohn disease--associated adherent-invasive E. coli bacteria target mouse and human Peyer's patches via long polar fimbriae. J Clin Invest. 121 (3), 966-975 (2011).
- Glasser, A. L., Boudeau, J., Barnich, N., Perruchot, M. H., Colombel, J. F., et al. Adherent invasive Escherichia coli strains from patients with Crohn's disease survive and replicate within macrophages without inducing host cell death. Infect Immun. 69 (9), 5529-5537 (2001).
- Bringer, M. A., Billard, E., Glasser, A. L., Colombel, J. F., Darfeuille-Michaud, A. Replication of Crohn's disease-associated AIEC within macrophages is dependent on TNF-alpha secretion. Lab Invest. 92 (3), 411-419 (2012).
- Ristuccia, A. M., Cunha, B. A. An overview of amikacin. Ther Drug Monit. 7 (1), 12-25 (1985).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., et al. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Vllasaliu, D., Falcone, F. H., Stolnik, S., Garnett, M. Basement membrane influences intestinal epithelial cell growth and presents a barrier to the movement of macromolecules. Exp Cell Res. 323 (1), 218-231 (2014).
- Wine, E., Ossa, J. C., Gray-Owen, S. D., Sherman, P. M. Adherent-invasive Escherichia coli, strain LF82 disrupts apical junctional complexes in polarized epithelia. BMC Microbiol. 9, 180 (2009).
- Jamur, M. C., Oliver, C. Permeabilization of cell membranes. Methods Mol Biol. 588, 63-66 (2010).
- Delmas, J., et al. Metabolic adaptation of adherent-invasive Escherichia coli to exposure to bile salts. Sci Rep. 9 (1), 2175 (2019).
- Zhang, S., et al. Mucosal metabolites fuel the growth and virulence of E. coli linked to Crohn's disease. JCI Insight. 7 (10), (2022).
- Viennois, E., et al. Dietary emulsifiers directly impact adherent-invasive E. coli gene expression to drive chronic intestinal inflammation. Cell Rep. 33 (1), 108229 (2020).
- Chassaing, B., Etienne-Mesmin, L., Bonnet, R., Darfeuille-Michaud, A. Bile salts induce long polar fimbriae expression favouring Crohn's disease-associated adherent-invasive Escherichia coli interaction with Peyer's patches. Environ Microbiol. 15 (2), 355-371 (2013).
- Gotoh, K., et al. Bile acid-induced virulence gene expression of Vibrio parahaemolyticus reveals a novel therapeutic potential for bile acid sequestrants. PLoS One. 5 (10), e13365 (2010).
- Bajunaid, W., et al. The T3SS of Shigella: Expression, structure, function, and role in vacuole escape. Microorganisms. 8 (12), (2020).
- Poore, K., Lenneman, B. R., Faherty, C. S. Epithelial cell infection analyses with Shigella. J Vis Exp. (204), e66426 (2024).
- Chimalapati, S., Lafrance, A. E., Chen, L., Orth, K. Vibrio parahaemolyticus: Basic techniques for growth, genetic manipulation, and analysis of virulence factors. Curr Protoc Microbiol. 59 (1), e131 (2020).
- Rodrigues, E., Marzook, N. B., Pallett, M. A., Sateriale, A. Convergent mechanisms of epithelial cell structure manipulation by intestinal pathogens. PLoS Pathog. 21 (7), e1013367 (2025).
- Jaishankar, J., et al. A critical role for Vibrio parahaemolyticus LPS to mediate evasion of host immune response during infection. Proc Natl Acad Sci U S A. 122 (33), e2426547122 (2025).
- Cieza, R. J., Hu, J., Ross, B. N., Sbrana, E., Torres, A. G. The IbeA invasin of adherent-invasive Escherichia coli mediates interaction with intestinal epithelia and macrophages. Infect Immun. 83 (5), 1904-1918 (2015).
- Liu, H., Semino-Mora, C., Dubois, A. Mechanism of H. pylori intracellular entry: an in vitro study. Front Cell Infect Microbiol. 2, 13 (2012).
- Heesemann, J., Laufs, R. Double immunofluorescence microscopic technique for accurate differentiation of extracellularly and intracellularly located bacteria in cell culture. J Clin Microbiol. 22 (2), 168-175 (1985).
- Lev-Tzion, R., Ledder, O., Shteyer, E., Tan, M. L. N., Uhlig, H. H., et al. Oral vancomycin and gentamicin for treatment of very early onset inflammatory bowel disease. Digestion. 95 (4), 310-313 (2017).
Przedruki i uprawnienia
