Niniejszy artykuł przedstawia szczegółowe protokoły utrzymywania laboratoryjnej kolonii Carausius morosus, w tym kluczowe procedury dotyczące hodowli zwierząt, postępowania z jajami, opieki nad nowo wyklutymi osobnikami, reprezentatywne wskaźniki wydajności oraz przegląd długości życia i charakterystyki biologicznej tego gatunku.
Artykuł metodologiczny
Ustandaryzowany protokół hodowli Carausius morosus (Phasmatodea, Insecta) w warunkach laboratoryjnych
W tym artykule
Podsumowanie
Streszczenie
Carausius morosus, patyczak indyjski, to smukły, przypominający gałązkę owad endemiczny dla Indii. Choć został on szeroko wprowadzony do hodowli na całym świecie i jest powszechnie wykorzystywany w laboratoriach lub trzymany jako zwierzę domowe, brakuje ustandaryzowanych laboratoryjnych protokołów hodowli tego gatunku. W niniejszej pracy przedstawiamy szczegółowe warunki hodowli laboratoryjnej C. morosus. Populacje utrzymujemy w temperaturze 23 °C, przy wilgotności względnej 70% i fotoperiodzie 12:12 h światła i ciemności. Hodowla ta była z sukcesem utrzymywana w tych warunkach przez ponad dwa lata, przy zastosowaniu ustandaryzowanych protokołów dotyczących diety oraz organizacji klatek. Przedstawiamy również metody opieki nad jajami i nowo wyklutymi osobnikami, aby wspierać prowadzone eksperymenty z C. morosus. W naszych warunkach hodowlanych 105 monitorowanych partii jaj złożonych w tym samym 24-godzinnym okresie wykluło się w stałym odstępie 12 dni, a 13,9% wyklutych osobników z powodzeniem osiągnęło wiek dorosły. Te ustandaryzowane metody poprawiają powtarzalność i dostępność, umożliwiając szersze wykorzystanie C. morosus jako laboratoryjnego systemu modelowego w szerokim zakresie badań, w tym w analizach rozwoju, zachowania i fizjologii.
Wprowadzenie
W związku z rosnącym zainteresowaniem alternatywnymi, niemammalnymi systemami modelowymi, owady stwarzają możliwość badania szerokiej różnorodności biologicznej, oferując jednocześnie tańsze modele badawcze, prostsze wymogi dotyczące opieki oraz mniej barier regulacyjnych niż w przypadku modeli ssaków1. Nowe systemy modelowe oparte na owadach umożliwiają badanie unikalnych zjawisk biologicznych, takich jak na przykład partenogeneza u patyczaków, m.in. u Carausius morosus (Sinéty, 1901)2. Choć muszka owocówka Drosophila melanogaster kształtowała nasze rozumienie procesów rozwojowych i genetycznych od początku XX wieku3, inne systemy modelowe owadów, takie jak C. morosus, stanowią wyjątkową okazję nie tylko dla biologii rozwoju, ale także dla badania kontroli motorycznej, lokomocji oraz układów regulowanych przez neurohormony4.
Dodatkowo, w dziedzinie biologii rozwoju ewolucyjnego owady hemimetabole (o rozwoju bezpośrednim) pozostają niedoreprezentowane, a najlepiej przebadanym owadem modelowym jest holometabole (o rozwoju pośrednim lub przechodzącym metamorfozę) D. melanogaster. Badanie gatunków owadów o rozwoju bezpośrednim, takich jak C. morosus, który przechodzi przez kilka stadiów larwalnych przed osiągnięciem dojrzałości płciowej5, pozwala na wypełnienie kluczowych luk filogenetycznych w badaniach nad biologią rozwoju ewolucyjnego. Umożliwia to porównanie owadów hemimetabolnych i holometabolnych, które rozdzieliły się wczesnym etapie ewolucji owadów, lecz nie są równomiernie reprezentowane w obecnych laboratoryjnych systemach modelowych. Szersze wykorzystanie C. morosus jako organizmu laboratoryjnego było ograniczone przez niespójne, niepowtarzalne warunki hodowlane oraz brak jasnych punktów odniesienia dla rozwoju i przeżywalności. W niniejszej pracy przedstawiamy szczegółowy protokół z określonymi warunkami hodowli i oczekiwanymi rezultatami, który może być stosowany w różnych laboratoriach, wspierając liczne zastosowania, w tym śledzenie embriogenezy, rozwój podłużny oraz eksperymenty nad wydajnością reprodukcyjną.
C. morosus są łatwe w hodowli w niewoli, co czyni je odpowiednimi zarówno do badań laboratoryjnych, jak i do celów dydaktycznych. Ich zdolność do partenogenezy6 eliminuje potrzebę tworzenia złożonych układów hodowlanych, co zmniejsza wymagania dotyczące utrzymania i upraszcza zarządzanie populacją. Choć skuteczna hodowla zyskuje dzięki kontrolowanym warunkom środowiskowym, opieka nad nimi pozostaje prosta i kosztowo efektywna w porównaniu z wieloma innymi modelami laboratoryjnymi. C. morosus chętnie żywi się pospolitym materiałem roślinnym, takim jak bluszcz (Hedera helix), jeżyna (Rubus fruticosus) lub liście róży (Rosa spp.). Inne zalety tego systemu obejmują autotomię, zdolność do regeneracji odnóży7, duże rozmiary ciała oraz możliwość żywienia się szerokim zakresem roślin żywicielskich. Gatunek ten posiada jednak również pewne ograniczenia, w tym brak publicznie dostępnej sekwencji genomu, stosunkowo długi czas rozwoju oraz twardy embrionalny exochorion, który może utrudniać iniekcje8. Pomimo tych ograniczeń, C. morosus stanowi praktyczny i skuteczny model zarówno w zastosowaniach badawczych, jak i dydaktycznych.
Znormalizowane protokoły hodowlane dla C. morosus są kluczowe dla uzyskania spójnych i powtarzalnych wyników w badaniach naukowych. Choć w literaturze opisano wiele badań laboratoryjnych nad C. morosus6,9,10,11,12, z naszej wiedzą do tej pory nie opublikowano szczegółowych protokołów hodowli C. morosus w warunkach laboratoryjnych. W niniejszym badaniu z sukcesem opracowaliśmy kompleksowy zestaw znormalizowanych protokołów dla kultur laboratoryjnych C. morosus, obejmujący hodowlę jaj, nowo wyklutych osobników oraz osobników dorosłych w wieku rozrodczym. Poprzez zastosowanie tych metod dążymy do zwiększenia dostępności tego owada dla szerszego grona społeczności badawczej zajmującej się biologią.
Protokół
1. Warunki hodowlane środowiska
- Utrzymuj hodowlę laboratoryjną w pomieszczeniu lub inkubatorze z kontrolowanym klimatem o następujących warunkach środowiskowych: 23 °C, wilgotność względna 70%, cykl światło-ciemność 12:12 h.
UWAGA: W tych warunkach, C. morosus spodowanie się jaj powinno nastąpić około 74–80 dni po ich złożeniu.
2. Ustanowienie i utrzymanie klatek siatkowych
UWAGA: Zaleca się używanie klatek siatkowych z wentylacją tkaninową po trzech stronach do trzymania owadów C. morosusOgród o wymiarach 61 x 61 x 91,5 cm nadaje się do utrzymywania do 50 dorosłych osobników lub, podczas zakładania nowej kolonii, do 500 młodych.
- Wybierz siatkowe zamknięcie odpowiedniego rozmiaru. Upewnij się, że pojemnik jest czysty i wolny od zanieczyszczeń przed wprowadzeniem zwierząt.
- W celu założenia nowej kolonii z wykorzystaniem dorosłych osobników, umieszczaj 25–50 dorosłych samic do czystego siatkowego klatkowania o wymiarach 61 cm x 61 cm x 91,5 cm.
UWAGA: Otwory siatki powinny mieć wielkość w zakresie 0,2–1,0 mm, aby zapobiec ucieczce małych larw pierwszego stadium. - W celu założenia nowej kolonii z wykorzystaniem młodych osobników przenieś do 500 sztuk młodych do czystego, siatkowego pojemnika o wymiarach 61 cm x 61 cm x 91,5 cm.
3. Żywienie i utrzymanie
- Podczas sprzątania klatki należy pozostawić owady w zamknięciu; delikatnie zdejmij je z roślinności i umieść na dnie siatkowanego terrarium, kontynuując sprzątanie wokół nich.
UWAGA: Oczekuj, że czyszczenie potrwa około 10–20 min na klatkę. - Dostarczaj świeżą zielenię, taką jak bluszcz, jeżyna lub róża, raz w tygodniu. Upewnij się, że cały materiał roślinny jest wolny od pestycydów. Omywaj zielenię wodą z kranu przed dodaniem do klatek, aby usunąć zanieczyszczenia powierzchniowe i pozostałe zanieczyszczenia.
- Obetnij łodygi tak, aby pasowały do naczyń (małych słoików lub butelek) wypełnionych wodą z kranu, aby utrzymać nawilżenie liści. Umieść przygotowaną roślinność wewnątrz zamkniętej przestrzeni, upewniając się, że liście są uniesione i dostępne dla owadów. Delikatnie zamknij przestrzeń po umieszczeniu.
- Podczas cotygodniowego sprzątania klatek usuwaj zwiędnięłe lub wyschnięte liście oraz wszelkie nagromadzone odchody ze dna hodowli.
UWAGA: Zastąp liście, gdy pojawią się objawy odwodnienia, takie jak sucha, krucha, więdnąca lub przebarwiona powierzchnia. Utrzymywanie czystego środowiska jest kluczowe dla zdrowia i dobrostanu kolonii. - Codziennie lekko opryskuj każde zamknięcie roztworem wodnym 1–2 spraye wody z kranu z butelki sprayowej o pojemności 250 mL w celu zapewnienia odpowiedniego nawilżenia.
UWAGA: Jest to szczególnie ważne w przypadku pierwszego dnia po wykluciu. Zmniejsz gęstość, jeśli wystąpi szybkie wyczerpywanie się pożywki.
4. Zbieranie i utrzymywanie Carausius morosus pisklęta
UWAGA: W tym badaniu używamy “pisklę” aby odnosić się do osobników bezpośrednio po wykluciu się z jajka (I stadium postembryonalne), podczas gdy “nymphę” odnosi się do stadiumy młodociane po wylęgu towarzyszące zmianom poprzez linienie
- Zbierz szalki Petriego o średnicy 6 cm z nowo wyklutymi larwami.
- Za pomocą tępych plastikowych szczypczyków ostrożnie przenieś nie więcej niż 500 młodych osobników do czystej siatkowej inkubatorki o wymiarach 61 cm x 61 cm x 91,5 cm.
UWAGA: Zbieraj wyłącznie pełni wyklute, rozciągnięte nimfy, które ukończyły rozwinięcie egzoszkieletu. Zakłócanie nimf przed pełnym wykluciem się z jajka może utrudnić rozciągnięcie ciała i prowadzić do przedwczesnej śmierci. Z podobnych powodów należy minimalizować bezpośrednie manipulowanie nimfami po przeniesieniu ich do siatkowanego pojemnika. - Dostarczaj świeżą ściółkę zgodnie z opisem w sekcji 3.
- Oznacz nowe pojemniki z koloniami, podając następujące informacje: daty(e) pobrania partii jaj, datę lub zakres dat wyklucia oraz liczbę dodanych piskląt.
UWAGA: To pozwala na śledzenie wieku osobnika i przewidywanie początku dojrzałości płciowej. - Lekko zraszaj każde pomieszczenie bezpośrednio po przeniesieniu piskląt, a następnie codziennie, za pomocą 1–2 spraye wody z kranu z butelki spreju o pojemności 250 mL w celu zapewnienia odpowiedniego nawilżenia.
UWAGA: Jest to szczególnie ważne w pierwszym dniu po wykluciu. Młode osobniki mogą pozostawać w tym samym pojemniku przez cały okres rozwoju aż do dorosłości. W warunkach laboratoryjnych opisanych w sekcji 1 około 13% młodych osobników przeżywa do stadium dorosłym w ciągu 4–5 miesięcyTabela 1). - Usuń martwe lub chore młode podczas cotygodniowego sprzątania klatek, aby zapobiec zanieczyszczeniu.
5. Zbieranie i utrzymanie C. morosus jaja
- Otwórz pojemnik zawierający dorosłe samice.
- Za pomocą rękawicy delikatnie zgarnij podłoże z dna klatki, zawierające zarówno jaja, jak i kał, w kierunku przedniego otworu.
- Za pomocą rękawicy ostrożnie przenieś materiał do szalki Petriego o średnicy 15 cm w celu pozyskania jaj.
6. Uśmiercanie owadów i utylizacja odpadów z hodowli
UWAGA: Gdy C. morosus nie są już potrzebne do eksperymentów, zdechły lub nie wymagane są ich jaja:
- Eutanazja/utylizacja owadów: Przenieś żywe lub martwe owady, które nie są już potrzebne do hodowli ani doświadczeń, do worka na odpady przeznaczone do sterylizacji w autoklawie, i przechowuj w temperaturze -20 °przechowywać w zamrażarce C przez co najmniej 72 godziny.
- Niszczenie jaj Aby zapobiec nadmiernemu zaludnieniu, usuń wszystkie jaja nie używane w eksperymentach organizmy z klatek lub szalek Petriego umieścić w worku na odpady przeznaczone do sterylizacji w autoklawie i przechowywać w temperaturze -20 °C °przez co najmniej 72 h
- Obsługa odpadów: Umieścić wszystkie skażone odpady z zamknięć lub materiałów używanych do zbierania jajek lub owadów w worku na odpady przeznaczonym do autoklawowania i przechowywać w temperaturze -20°C. °przez co najmniej 72 h.
- Po zamrożeniu materiałów przenieś workę do odpadów sterylizowanych do autoklawu do pojemnika na odpady biologicznie niebezpieczne w celu odpowiedniego usunięcia.
UWAGA: Jak C. morosus jest gatunkiem inwazyjnym poza Indiami, zasadnicze znaczenie ma prawidłowe usuwanie wszystkich materiałów zgodnie z powyższym opisem w celu zapobieżenia przypadkowemu wprowadzeniu ich do środowiska.
7. Pobieranie jajek
- Za pomocą tępych plastikowych szczypczyków ostrożnie podnieś każde jajo i umieść je w czystej szalce Petriego o średnicy 6 cm.
UWAGA: Dojrzałe jaja są chronione przez utwardzoną warstwę egzochorion i mają ciemnobrązową barwę, przypominającą nasiona roślin. Użycie białego tła może ułatwić odróżnienie odchodów od jaj podczas sortowania. - Oznacz szalkę datą i godziną pobrania w celach identyfikacyjnych. Podczas inkubacji nie zakrywaj szalki, aby umożliwić wentylację.
UWAGA: Płytkę Petriego o średnicy 6 cm wystarczy do przechowywania do 200 jaj. - Około 1 tydzień przed przewidywanym okresem wyklucia (74–80 dni po zniesieniu jaj; Kovacikova & Extavour, niepublikowane dane), zastąp pokrywkę szalki Petriego.
- Rozpocznij codzienne monitorowanie pojemników z jajami przed przewidywaną datą wyklucia, aby obserwować pojawiające się młode.
8. Przewidywana długość życia
- Po wykluciu obserwuj osobniki podczas przejścia przez pięć do sześciu linień, zanim osiągną dojrzałość płciową, co w warunkach laboratoryjnych opisanych w sekcji 1 zachodzi średnio po 139 dniach od wyklucia (Tabela 1).
- Aby postępować zgodnie z tym protokołem, należy określić czas rozwoju w tych warunkach hodowli w następujący sposób: czas trwania embriogenezy (od położenia jaj do wyklucia) wynosi 74–80 dni; czas od wyklucia się do dojrzałości płciowej (rozpoczęcia składania jaj) wynosi około 135 dni, co odpowiada około 200 dniom od położenia jaja do dojrzałości płciowej, a całkowita długość życia od położenia jaja do śmierci wynosi około 9,5 miesiąca.
Wyniki
W okresie od września 2024 do listopada 2025 roku zebraliśmy dane dokumentujące udaną hodowlę laboratoryjną C. morosus od stadium jaj do reprodukcyjnie dojrzałych osobników dorosłych. Przez ten 14-miesięczny okres utworzyliśmy, utrzymywaliśmy i monitorowaliśmy pięć klatek pod kątem jednego lub więcej z następujących parametrów: śmiertelności dorosłych osobników, liczby zniesionych jaj, czasu wykluwania się jaj oraz przeżywalności wylęgów do wieku dorosłego. Nasza metoda umożliwia długoterminowe utrzymanie kolonii bez wyraźnych oznak chorób wywołanych przez patogeny lub spadku możliwości reprodukcyjnych, co stanowiłoby wyniki suboptymalne. W ciągu ponad dwóch lat ciągłej hodowli nie zaobserwowano masowych śmierci związanych z obecnością patogenów, a produkcja jaj i wylęgów pozostała stabilna na przestrzeni kolejnych pokoleń.
Dane przedstawione w Rycina 1 i Rysunek 2 przedstawiono obserwacje z pięciu monitorowanych klatek, od etapu przygotowania aż do osiągnięcia przez wyklute osobniki dojrzałości płciowej, z uwzględnieniem liczby złożonych jaj oraz śmiertelności osobników dorosłych w każdej klatce. Po osiągnięciu dojrzałości płciowej przez osobniki założycielskie w każdej klatce i rozpoczęciu przez nie składania jaj, odnotowano liczbę osobników dorosłych w każdej klatce, aby ustalić populację początkową w momencie rozpoczęcia owulacji. Liczba osobników dorosłych w każdej klatce w czasie została przedstawiona w Rycina 1 i Tabela 1Stały spadek przeżywalności interpretujemy jako śmiertelność związaną z wiekiem.
Równolegle monitorowaliśmy produkcję jaj w tych samych pięciu klatkach, w których badano przeżywalność osobników dorosłych (Rycina 1 i Rycina 2). Dzienne liczby jaj na klatkę były najwyższe podczas pierwszych 30–50 dni znoszenia jaj, a następnie stopniowo spadały. Choć całkowita produkcja jaj różniła się między klatkami (Tabela 2), ten ogólny wzorzec był spójny dla wszystkich pięciu klatek powtórznych. Monitorowaliśmy dynamikę wykluwania jaj w okresie 50 dni dla łącznie 105 partii jaj, gdzie każda partia stanowi grupę jaj złożonych w tej samej klatce w ciągu 24 h. Dla analiz wielkości partii przedstawionych na Rycynie 3, 75 partii pogrupowano w kategorie małych, średnich i dużych. Stwierdzono, że po wykluciu się pierwszego jaja w partii, 90% stopnia wyklucia osiągnięto w ciągu 12 dni od pojawienia się pierwszego pisklęcia (Rycina 3D), niezależnie od wielkości partii (Rycina 3B). Stosując termin „stopień wyklucia” (hatch completion) do opisania proporcji jaj w partii, które wykluły się do określonego punktu czasowego po pojawieniu się pierwszego pisklęcia z partii, zauważono, że rozkład partii jaj według dnia osiągnięcia 90% stopnia wyklucia wskazuje, iż większość partii osiągnęła ten próg między 10. a 14. dniem wykluwania (Rycina 3C) po pojawieniu się pierwszego pisklęcia.
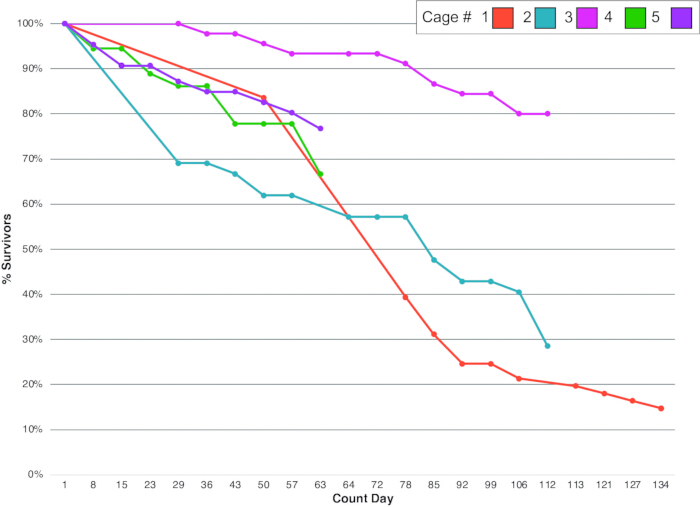
Rysunek 1. Dynamika śmiertelności osobników dorosłych. Trajektorie przeżywalności w czasie w pięciu powtórzonych klatkach doświadczalnych z C. morosus. Procent przeżywalności naniesiono w czasie dla osobników w każdej monitorowanej klatce. Patrz wskaźniki podsumowujące w Tabeli 1. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
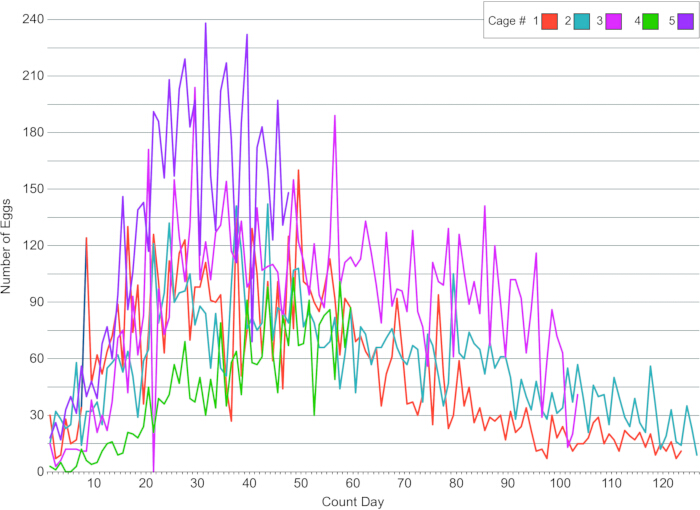
Rysunek 2. Dynamika produkcji jaj. Liczba jaj zebranych z tych samych pięciu klatek, które monitorowano na Rysunku 1. Klatki od 1 do 5 były monitorowane codziennie przez odpowiednio 47, 58, 106, 129 i 132 dni. Wykres przedstawia dane z pierwszych 126 dni znoszenia jaj. Podsumowanie parametrów znajduje się w Tabeli 2. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
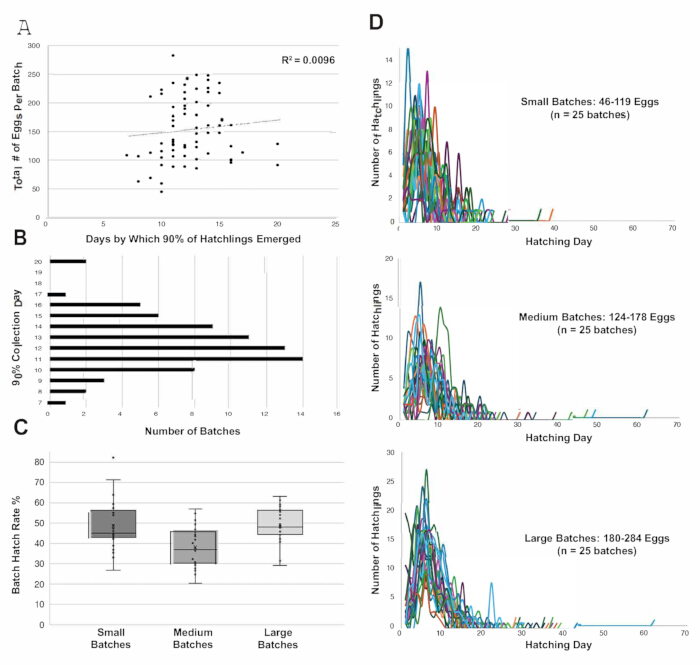
Rycina 3. Dynamika wykluwania jaj. (A) Zależność między całkowitą liczbą jaj w partii a liczbą dni potrzebnych do osiągnięcia 90% stopnia wyklucia. (B) Rozkład partii jaj według dnia, w którym osiągnęły 90% stopnia wyklucia, w dniach od 7 do 20. (C) Rozkład wskaźnika wyklucia partii w zależności od małej, średniej i dużej wielkości partii jaj. n = 25 partii na każdą kategorię wielkości partii. (D) Trajektorie wykluwania w 70-dniowym okresie zbierania dla 75 partii jaj wykorzystanych w analizie wielkości partii. Monitorowano łącznie 105 partii jaj; w analizach przedstawionych tutaj 75 partii pogrupowano według całkowitej liczby jaj przy użyciu podziału na tercyle. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
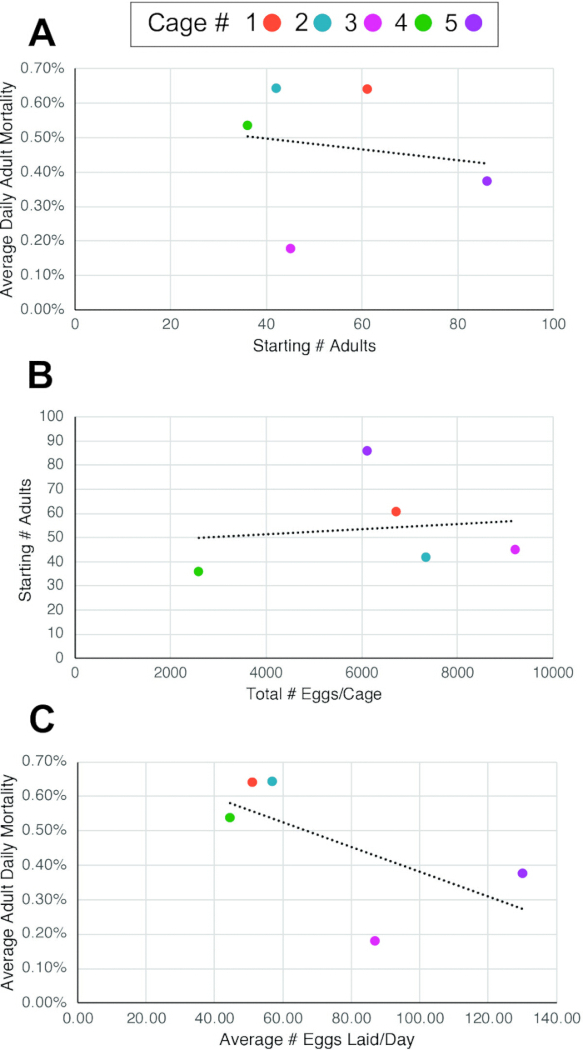
Rysunek 4. Zależności między liczbą osobników dorosłych, śmiertelnością osobników dorosłych a produkcją jaj na klatkę. (A) Brak istotnej zależności (R2 = 0.025) między średnią dzienną śmiertelnością osobników dorosłych a liczbą osobników dorosłych wprowadzonych do klatki. (B) Brak istotnej zależności (R2 = 0.017) między całkowitą produkcją jaj a liczbą osobników dorosłych wprowadzonych do klatki. (C) Stwierdzono umiarkowaną ujemną korelację (R2 = 0.411) między średnią dzienną produkcją jaj a średnią dzienną śmiertelnością osobników dorosłych. Średnia dzienna śmiertelność osobników dorosłych = (% całkowitej śmiertelności) / (całkowita liczba monitorowanych dni). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Klatka nr | stary numer klatki | Pierwszy dzień wylęgu mioty dodane do klatki z osobnikiem założycielskim | Ostatni dzień wyklucia mioty przeniesione do klatki matki | # Inkubacja młode przeniesione do klatki | Zakres dni wylęgu dodano sadzonki | Średni czas między rozpoczęciem klatkowania a liczeniem osobników dorosłych | Pierwszy dzień liczenia osobników dorosłych | Pierwszy dzień składania jaj przez osobniki dorosłe | Czas upływający między wykluciem a osiągnięciem stadium dorosłego | Czas, który upłynął między wykluciem a zniesieniem jaj | Początkowa liczba osobników dorosłych | Przeżywalność piskląt do wieku dorosłego dygestor | Ostatni dzień liczenia osobników dorosłych | Końcowa liczba osobników dorosłych | Czas monitorowania osób dorosłych (liczba osób) [dni] | Średnia śmiertelność osobników dorosłych w czasie monitorowania [%] | Średnia dzienna śmiertelność osobników dorosłych [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | ND | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | ND | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | ND | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | ND | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| Średnie | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
Tabela 1: Dynamika przeżywalności i śmiertelności osobników dorosłych w klatkach eksperymentalnych. Wyniki przeżywalności osobników dorosłych dla pięciu powielonych klatek eksperymentalnych. Dla każdej klatki podano zakres dat założenia klatki, liczbę piskląt wykorzystanych do założenia każdej klatki (dla 2 z 5 klatek), przeżywalność piskląt do wieku dorosłego (dla 2 z 5 klatek), czas pomiędzy założeniem klatki a rozpoczęciem liczenia osobników dorosłych i rozpoczęciem składania jaj, czas trwania monitorowania osobników dorosłych, początkową i końcową liczebność populacji dorosłych, śmiertelność osobników dorosłych w okresie monitorowania oraz średnią dzienną śmiertelność. Przeżywalność piskląt do wieku dorosłego obliczono tylko dla klatek o znanej początkowej liczbie piskląt.
| Nr klatki | Data rozpoczęcia zbioru jaj | Data zakończenia zbioru jaj | Czas trwania zbioru jaj [dni] | Całkowita liczba jaj na klatkę | Średnia liczba jaj zniesionych na dobę | Wyjściowa liczba osobników dorosłych | Całkowita liczba jaj/początkowa liczba osobników dorosłych | Średnia liczba jaj/dorosły osobnik na start/dzień |
| 1 | 5/29/2025 | 10/8/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 7/4/2025 | 11/10/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 7/27/2025 | 11/10/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 9/13/2025 | 11/10/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 9/24/2025 | 11/10/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| Średnie | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
Tabela 2: Produkcja jaj w klatkach doświadczalnych. Produkcja jaj z pięciu powtórzonych klatek doświadczalnych zawierających dorosłe osobniki. Dla każdej klatki podano daty rozpoczęcia i zakończenia zbierania jaj, całkowity czas trwania zbioru, skumulowaną produkcję jaj na klatkę oraz średnią liczbę jaj zniesionych dziennie.
Dyskusja
Opisane tutaj metody hodowlane stanowią prosty i powtarzalny schemat utrzymywania laboratoryjnych populacji C. morosus. Choć C. morosus od dawna jest utrzymywany w laboratoriach lub jako zwierzę domowe, protokoły hodowlane stosowane w badaniach laboratoryjnych różniły się w zależności od opracowania6,9,10,11,12. Zapewnienie spójnych warunków środowiskowych i praktyk żywieniowych jest istotne, aby C. morosus stał się wiarygodnym laboratoryjnym organizmem modelowym w badaniach rozwojowych, fizjologicznych i ewolucyjnych.
Czas rozwoju C. morosus w odniesieniu do innych owadów modelowych
W porównaniu do owadów holometabolicznych, takich jak muszka owocówka Drosophila melanogaster, C. morosus wykazuje wolniejsze tempo rozwoju i bardziej wydłużoną fazę młodzieńczą. Podczas gdy D. melanogaster kończy embriogenezę w ~24 h i osiąga dojrzałość rozrodczą w ciągu 10–12 dni w temperaturze 25 °C13, w naszych warunkach hodowli C. morosus wymaga 74–80 dni na embriogenezę i około 135–139 dni po wykluciu, aby osiągnąć dojrzałość rozrodczą, co odpowiada około 200 dniom od złożenia jaj do dojrzałości rozrodczej w temperaturze 23 °C (dane nie zostały przedstawione). Ten wydłużony harmonogram odzwierciedla fundamentalne różnice fizjologiczne i ewolucyjne między owadami hemimetabolicznymi a holometabolicznymi14,15 i jest wielokrotnie spotykany u przedstawicieli rzędu Phasmatodea16,17,18. Choć inne owady hemimetaboliczne, takie jak świerszcz Gryllus bimaculatus, kończą embriogenezę i osiągają dojrzałość płciową w krótszym czasie (odpowiednio dziesięciu dniach i sześciu tygodniach w temperaturze 29 °C19), wolniejszy rozwój C. morosus stwarza wyjątkową okazję do prowadzenia powtarzalnych badań oraz szczegółowych, podłużnych studiów nad embriogenezą i rozwojem młodzieńczym.
Źródło liści i praktyki karmienia
W niniejszym protokole opisujemy wykorzystanie bluszczu (Hedera helix) jako głównego źródła pożywienia dla naszej kolonii C. morosus, przy czym liście zbierano przez cały rok z jednej, stałej lokalizacji na terenie kampusu. Chociaż bluszcz może nie być dostępny dla wszystkich laboratoriów, zgłoszono kilka alternatywnych roślinnych źródeł pożywienia odpowiednich do utrzymania kolonii C. morosus, w tym jeżynę (Rubus spp), ligustr (Ligustrum spp.), ognik (Pyracantha spp.), różę (Rosa spp.), głóg jednoprzecinkowy (Crataegus monogyna), dąb (Quercus spp) oraz leszczynę (Corylus spp.)20. Ważną kwestią przy stosowaniu liści zbieranych z zewnętrznych źródeł jest fakt, że zawartość składników odżywczych jest mniej kontrolowana niż w systemach laboratoryjnych opartych na zestandaryzowanych dietach (np. Drosophila melanogaster), co może wprowadzać zmienność żywieniową. Aby ograniczyć to zjawisko, we wszystkich porach roku stosowaliśmy ten sam gatunek rośliny z tej samej lokalizacji i dostarczaliśmy liście do wszystkich klatek raz w tygodniu podczas rutynowej konserwacji klatek. Gałązki bluszczu używane do karmienia zazwyczaj zawierały mieszankę liści młodych i dojrzałych; nie wybieraliśmy gałązek na konkretnym etapie rozwoju liści. Wszystkie liście były myte przed umieszczeniem w klatkach. Nasz harmonogram tygodniowej wymiany, polegający na usunięciu wszystkich liści i zastąpieniu ich w tym samym dniu, został wprowadzony w celu zachowania spójności i zarządzania skalą kolonii. Odcięte liście bluszczu przechowywano w klatkach w naczyniach wypełnionych wodą, aby utrzymać ich nawodnienie w ciągu tygodnia. W większości przypadków liście pozostawały w dobrym stanie przez cały tydzień, choć sporadycznie mogło dojść do ich wyschnięcia lub wyczerpania, w takim przypadku wymienialiśmy liście wcześniej niż po 1 tygodniu.
Wielkość kolonii, wskaźniki przeżywalności i rozród osobników dorosłych
Właściwe założenie kolonii oraz staranne zarządzanie gęstością populacji były kluczowe dla zachowania zdrowia stad. Utrzymywanie maksymalnie około 500 nowonarodzonych osobników lub 50 osobników dorosłych na terrarium o wymiarach 61 cm x 61 cm x 91.5 cm zapewniało stabilne warunki, odpowiednie utrzymanie kolonii oraz powtarzalność obserwacji rozwojowych.
Porównanie średniej dziennej śmiertelności z liczbą dorosłych osobników założycieli w klatce (Rysunek 4A i Tabela 1) nie wykazało żadnej przewidywalnej zależności między tymi dwoma parametrami. Podobnie, nie stwierdzono silnej zależności prognostycznej między całkowitą liczbą dorosłych osobników założycieli a całkowitą produkcją jaj (Rycina 4B, Tabela 1, i Tabela 2). Zamiast tego, w klatkach z niższą średnią dzienną śmiertelnością osobników dorosłych zaobserwowano lekką tendencję do wyższej średniej dziennej produkcji jaj (Rysunek 4C). Jednakże różnice między klatkami sugerują, że produkcja jaj różniła się wśród osobników dorosłych (Tabela 1 i Tabela 2), co może oznaczać, że na wzorce płodności wpływają czynniki inne niż przeżywalność osobników dorosłych, a poszczególne samice mogą również różnić się liczbą składanych każdego dnia jaj.
Produkcja jaj we wszystkich monitorowanych klatkach zazwyczaj spadała w trakcie trwania eksperymentu (Rysunek 2). W większości klatek najwyższe dobowe wskaźniki znoszenia jaj odnotowano na początku okresu rozrodczego (pierwsze 50 dni), po czym produkcja stopniowo malała (Rysunek 2). Wzorzec ten jest zgodny z naszą obserwacją, że osobniki zazwyczaj osiągają dojrzałość płciową i zaczynają znosić jaja około 135 dni po wykluciu, a śmiertelność zaczyna się około 90 dni później (~225 dni po wykluciu; dane nie pokazano).
Czas i dynamika wykluwania
W monitorowanych partiach jaj większość wykluczeń nastąpiła w stałym 12-dniowym okresie po początku wykluwania się (Rysunek 3D). Podobnie, nie stwierdzono korelacji między wielkością partii a czasem osiągnięcia 90% stopnia wyklucia (Rysunek 3A), a większość partii osiągnęła 90% stopnia wyklucia między 10. a 14. dniem po wykluciu się pierwszej larwy (Rysunek 3B). Ten przewidywalny okres wykluwania jest użyteczną cechą w zarządzaniu kolonią C. morosus, ponieważ pozwala na grupowanie wyklutych osobników w kohorty o podobnym wieku, co usprawnia etapowanie rozwoju i zmniejsza zmienność eksperymentalną. Znajomość czasu masowego wykluwania pozwala również na lepsze planowanie rotacji w terrariach oraz alokacji zasobów, w tym terminowe przygotowanie wybiegów, roślinności i materiałów do śledzenia osobników, co jest szczególnie istotne w przypadku badań wielkoskalowych lub długoterminowych. Choć badano gatunki Phasmatodea rozmnażające się zarówno płciowo, jak i partenogenetycznie, nie znamy dowodów na to, aby sam sposób rozmnażania determinował różnice w czasie embriogenezy. Zamiast tego zgłaszano, że zmienność w rozwoju jest specyficzna dla danego gatunku i zależy od warunków środowiskowych2.
Obsługa jaj i kwestie dotyczące podłoża
Nasza metoda obsługi jaj polega na zbieraniu ich bezpośrednio z dna zbiornika i inkubowaniu w wentylowanych szalkach Petriego. Takie podejście sprawia, że jaja są łatwo obserwowalne, w przeciwieństwie do systemów hodowli świerszczów, w których jaja zbierane są w podłożach takich jak włókno kokosowe lub knoty bawełniane21. Twarde exochorium jaj C. morosus zapewnia ochronę podczas manipulacji oraz przed wysychaniem, co umożliwia bezpieczną inkubację w szalkach Petriego bez dodatkowego podłoża w naszych warunkach hodowlanych. Podsumowując, te ustandaryzowane procedury zapewniają ustrukturyzowane podejście do utrzymania zdrowych populacji C. morosus na potrzeby powtarzalnych badań rozwojowych, behawioralnych, genetycznych lub fizjologicznych. Spójna kontrola parametrów środowiskowych (23 °C, 70% RH, 12:12 LD), regularna konserwacja zbiorników oraz przewidywalne ramy czasowe rozwoju sprawiają, że C. morosus jest dostępnym i niskokosztowym systemem modelowym. Co istotne, w przeciwieństwie do niektórych systemów hodowli świerszczów, gdzie zagęszczenie, kanibalizm lub obciążenie patogenami mogą szybko zdestabilizować kolonie22, C. morosus są łatwe w utrzymaniu, co czyni je odpowiednimi do eksperymentów na dużą skalę oraz badań obejmujących wiele pokoleń. Wraz z coraz szerszym przyjmowaniem C. morosus jako hemimetabolicznego gatunku modelowego, stosowanie ustandaryzowanych metod powinno sprzyjać powtarzalności i porównywalności badań w wielu obszarach biologii owadów.
Przeżywalność od wyklucia do wieku dorosłego
Przeżywalność od momentu wyklucia do osiągnięcia wieku dorosłego w naszym badaniu (~13%) jest znacznie niższa niż ta raportowana w innym badaniu ilościowym dotyczącym *C. morosus* przeżywalność nimf w kontrolowanych warunkach laboratoryjnych, w których 68% osobników przeżyło do stadium dorosłego przy ograniczeniu kalorycznym i do 87% przy ad libitum karmienie23Przypuszczamy, że niższa przeżywalność zaobserwowana w naszej kolonii (~13%) w porównaniu z poprzednim raportem wynika z różnic w sposobie hodowli zwierząt, co z kolei odzwierciedla odmienne cele naszej hodowli i badania poprzedniego. Nasz protokół został opracowany w celu utrzymania dużych, stale rozmnażających się kolonii, a nie w celu maksymalizacji przeżywalności poszczególnych grup. W związku z tym utrzymywaliśmy zwierzęta przy stosunkowo wysokiej gęstości zaludnienia, w przeciwieństwie do poprzedniego badania, w którym izolowane osobniki hodowano od stadium jaja do wieku dorosłego w oddzielnych klatkach.23Przypuszczamy, że opisana tutaj metoda hodowli o wysokiej gęstości może zwiększać śmiertelność w porównaniu z hodowlą w izolacji, zwłaszcza w wczesnych stadiach nimfy, kiedy osobniki mogą być bardziej wrażliwe na zagęszczenie lub konkurencję. W przypadku większych klatek rolę mogły również odegrać różnice w jakości roślin, w przeciwieństwie do metody hodowli indywidualnej, w której osobniki karmiono krążkami wyciętymi z liści roślin o kontrolowanej wielkości.23Jednak mimo stosunkowo niższego wskaźnika przeżywalności, nasza kolonia konsekwentnie składała dużą liczbę jaj i pozostawała stabilna w czasie (Rycina 1, Rysunek 3, Tabela 1i Tabela 2). Sugeruje to, że opisana tutaj metoda jest skuteczna w utrzymaniu długoterminowej hodowli laboratoryjnej.
Czynniki wpływające na przeżywalność i ograniczenia protokołu
Kilka czynników w tym protokole może wpływać na przeżywalność i powinno być starannie kontrolowane. Gęstość populacji jest istotnym parametrem, ponieważ przeludnienie może obniżyć przeżywalność, szczególnie w wczesnych stadiach larwalnych. Innym parametrem wpływającym na przeżywalność jest odpowiednie nawodnienie, zwłaszcza w początkowych stadiach larwalnych. Wszystkie procedury i ramy czasowe opisane w protokole opierają się na konkretnych warunkach środowiskowych zastosowanych w niniejszym badaniu. Jednakże zmiany wilgotności, temperatury, przepływu powietrza lub rodzaju rośliny mogą wpływać na częstotliwość zraszania wodą, częstotliwość wymiany liści, czas wylęgu jaj oraz ogólną przeżywalność. Na przykład w suchszych warunkach hodowli może być konieczne częstsze zraszanie wodą i wymiana roślin w celu utrzymania nawodnienia. Różne gatunki roślin mogą również wpływać na żerowanie i rozwój. Czynniki te należy dostosować w zależności od warunków chowu i celów eksperymentalnych. W zastosowaniach wymagających wysokiej przeżywalności osobników młodzieńczych, śledzenia poszczególnych osobników lub testów behawioralnych, korzystniejsze mogą być niższe gęstości początkowe.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Projekt ten był wspierany przez National Science Foundation w ramach grantu IOS 22207477 przyznanego CGE, który jest badaczem w Howard Hughes Medical Institute. Przyznajemy, że uważa się, iż Carausius morosus pochodzi z Tamil Nadu w Indiach, a hodowle laboratoryjne tego gatunku są utrzymywane poza Indiami co najmniej od 1908 roku. Serdecznie dziękujemy Stanislavowi Gorbowi i Thiesowi Büscherowi (Uniwersytet w Kilonii) za dostarczenie początkowej grupy osobników dorosłych wykorzystanych do założenia naszej hodowli oraz wszystkim członkom laboratorium Extavour za wsparcie, w tym byłemu członkowi zespołu, dr Upendrze Bhattarai (obecna afiliacja: Brown University), który założył pierwotną kolonię.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Autoklawowalne worki polipropylenowe, 30,5 cm × 61 cm | VWR | 95042-554 | Do utylizacji owadów, jaj oraz odpadów z klatek/terariów |
| Pojemnik na odpady biologiczne | Brak danych | Dokument nie zawiera tekstu do przetłumaczenia. Proszę dostarczyć treść źródłową w języku angielskim. | Do utylizacji po zamrożeniu |
| Tępe pincety plastikowe | Amazon | B07YZ5FB27 | Do zbierania i obchodzenia się z jajami oraz wylęgniętymi osobnikami |
| Pomieszczenie z kontrolą klimatu lub inkubator | Nie dotyczy | Nie dotyczy | Do utrzymania 23 °C, 70% RH oraz fotoperiodem 12:12 h światła i ciemności |
| Rękawice jednorazowe | Nie dotyczy | Nie dotyczy | Do zbierania jaj i utylizacji odpadów |
| Jednorazowe szalki Petriego, 150 × 15 mm | VWR | 25384-326 | Do pobierania jajeczek |
| Jednorazowe szalki Petriego, 60 × 15 mm | VWR | 25384-092 | Do inkubacji jaj |
| Świeże liście (bluszczu, jeżyny lub róży) | Nie dotyczy | N/A | Źródło żywności wolnej od pestycydów |
| Zamrażarka, -20 °C | Nie dotyczy | N/A | Do eutanazji/utylizacji oraz mrożenia jaj lub odpadów przed utylizacją |
| Siatkowe klatki dla owadów | Amazon | B09GS2CH1G | Służy do hodowli owadów |
| Butelka z atomizerem, 250 ml | Amazon | B000H88PCU | Do siatkowych wygrodzeń z systemem zamgławiania |
| Wysokie naczynie szklane, 18–wysokość 23 cm | Nie dotyczy | N/D | Służy do utrzymywania wody i łodyg roślin |
| Woda z kranu | Brak danych | N/A | Do zraszania i utrzymywania nawodnienia liści |
| Biała powierzchnia sortowania lub taca | N/A | Nie dotyczy | W celu odróżnienia jaj od odchodów podczas sortowania |
Bibliografia
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Przedruki i uprawnienia
