Niniejszy protokół opisuje metodę obrazowania żywych komórek w technice time-lapse w celu wizualizacji zależnej od przeciwciał fagocytozy komórek raka piersi potrójnie ujemnego znakowanych zielonym białkiem fluorescencyjnym, z wykorzystaniem makrofagów pochodzących z monocytów krwi obwodowej oraz mikroskopu zautomatyzowanego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Obrazowanie time-lapse fagocytozy komórek trzykrotnie ujemnego raka piersi znakowanych zielonym białkiem fluorescencyjnym przez makrofagi indukowaną przeciwciałami
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Przeciwciałozależna fagocytoza komórkowa jest kluczowym mechanizmem, dzięki któremu makrofagi pochłaniają upropzonizowane przeciwciałami komórki nowotworowe. Niniejszy protokół opisuje metodę obrazowania żywych komórek w czasie (time-lapse), służącą do wizualizacji przeciwciałozależnej fagocytozy przez makrofagi komórek potrójnie ujemnego raka piersi wykazujących ekspresję CD24 i znakowanych zieloną białkiem fluorescencyjnym. Makrofagi są otrzymywane z mononuklearnych komórek krwi obwodowej człowieka, różnicowane przy użyciu czynnika stymulującego kolonie makrofagów oraz polaryzowane za pomocą interferonu gamma i lipopolisacharydu w celu uzyskania fenotypu prozapalnego. Komórki nowotworowe są upsonizowane przeciwciałem monoklonalnym anty-CD24 przed kokulturą z makrofagami w określonym stosunku efektor do celu. Zdarzenia fagocytarne są rejestrowane przez okres 16 h przy użyciu zautomatyzowanego mikroskopu wyposażonego w system kontroli środowiskowej w celu utrzymania warunków fizjologicznych. Obrazowanie przeprowadzane jest w kanałach jasnego pola i fluorescencji, co umożliwia identyfikację komórek nowotworowych oraz monitorowanie ich internalizacji przez makrofagi. Reprezentatywne obrazy time-lapse demonstrują postępujące pochłanianie fluorescencyjnych komórek nowotworowych w czasie. W celu umożliwienia oceny ilościowej przeprowadzany jest równolegle test końcowy w identycznych warunkach kokultury, w którym przed obrazowaniem usuwane są niezinternalizowane komórki nowotworowe, co pozwala na dokładny pomiar zdarzeń fagocytarnych. Metoda ta zapewnia standaryzowane i powtarzalne podejście do wizualizacji przeciwciałozależnej fagocytozy makrofagów in vitro. Co istotne, integracja obrazowania time-lapse z kwantyfikacją opartą na punkcie końcowym umożliwia komplementarną ocenę kinetyki i skali fagocytozy. Protokół ten wspomaga ocenę przeciwciał terapeutycznych oraz immunoterapii nowotworów skierowanych przeciwko makrofagom w kontrolowanych warunkach in vitro.
Wprowadzenie
Rak piersi jest najczęściej diagnozowanym nowotworem złośliwym u kobiet na całym świecie, odpowiadając za około 2,3 miliona nowych przypadków rocznie1. Choroba ta jest klinicznie heterogenna i klasyfikowana jest co najmniej na cztery główne podtypy molekularne w zależności od statusu receptorów hormonalnych — receptora estrogenowego (ER) i receptora progesteronowego (PR) — oraz ekspresji onkogenu ludzkiego receptora czynnika wzrostu naskórka 2 (HER2)2. Guzy luminalne typu A wykazują ekspresję ER i/lub PR bez nadekspresji HER2 (ER/PR+ i HER2−); guzy luminalne typu B koekspresują ER/PR oraz HER2 (ER/PR+ i HER2+); guzy HER2+ charakteryzują się wysoką ekspresją HER2 niezależnie od statusu receptorów hormonalnych; natomiast potrójnie ujemny rak piersi (TNBC) cechuje brak ekspresji wszystkich trzech markerów (ER−, PR− i HER2−)2,3. Wśród tych podtypów TNBC stanowi najbardziej problematyczną klinicznie formę i odpowiada za około 15%–20% wszystkich przypadków raka piersi. Pacjentki z TNBC wykazują najbardziej agresywny przebieg choroby, z najgorszym rokowaniem i najkrótszym 5-letnim przeżyciem całkowitym, co wynika ze słabej odpowiedzi na konwencjonalną chemioterapię oraz braku skutecznych terapii celowanych3,4. Ponadto TNBC wykazuje znacząco wysoką skłonność do przerzutów do narządów wewnętrznych, w szczególności do płuc w ciągu 5 lat od diagnozy, a pacjentki z zaawansowanym lub przerzutowym TNBC (mTNBC) mają medianę przeżycia, która rzadko przekracza 2 lata5,6. Statystyki te podkreślają krytyczną i niezaspokojoną potrzebę opracowania nowych strategii terapeutycznych dla TNBC.
Mikrośrodowisko guza (TME) odgrywa kluczową rolę w progresji raka piersi i unikaniu odpowiedzi immunologicznej. Makrofagi związane z guzem należą do najliczniejszych komórek odpornościowych w TME i zostały ostatnio uznane za krytyczne mediatory wrodzonej odporności przeciwnowotworowej7,8,9. Choć historycznie makrofagi związane z guzem dzielono na prozapalne stany „M1” i pronowotworowe „M2”, ten binarny model nie oddaje rzeczywistego zakresu heterogeniczności makrofagów. Zamiast tego makrofagi te zajmują dynamiczne spektrum funkcjonalne, ewoluując w odpowiedzi na różnorodne sygnały biochemiczne w TME. W tym złożonym krajobrazie komórki nowotworowe aktywnie neutralizują aktywność makrofagów poprzez różne strategie unikania odpowiedzi immunologicznej, w szczególności poprzez nadekspresję sygnałów typu „don’t eat me” (nie jedz mnie). Oś CD47/SIRPα była pierwszym zidentyfikowanym w tym kontekście wrodzonym punktem kontrolnym odporności6,10, a ostatnio CD24 wyłonił się jako nowy i potężny sygnał antyfagocytyczny11,12. CD24 jest małą i silnie glikozylowaną glikoproteiną mucynową zakotwiczoną w błonie komórkowej za pomocą wiązania glikozylofosfatydyloinozytoli13. Jest on ekspresowany w różnych liniach komórek odpornościowych w warunkach fizjologicznych, ale często wykazuje nadekspresję w guzach litych, w tym w raku piersi, jajnika, trzustki i raku jelita grubego14. W komórkach nowotworowych CD24 wiąże się z receptorami hamującymi lektyny wiążące kwas sjalowy z immunoglobuliny 10 (Siglec-10) ekspresowanymi na makrofagach. Interakcja ta wywołuje fosforylację domen motywu hamującego opartego na tyrozynie (ITIM) w ogonie cytoplazmatycznym Siglec-10, aktywując fosfatazy SHP-1 i SHP-2, które tłumią kaskadę sygnałową fagocytozy11. Wykazano, że blokowanie interakcji CD24/Siglec-10 za pomocą przeciwciała monoklonalnego znacząco zwiększa fagocytozę ludzkich guzów wykazujących ekspresję CD24 przez makrofagi. Nasze ostatnie badanie wykazało również, że nokaut CD24a w komórkach raka piersi zwiększa ich podatność na fagocytozę przez makrofagi w mysim modelu potrójnie ujemnego raka piersi9.
Przeciwciałozależna fagocytoza komórkowa (ADCP) jest kluczowym mechanizmem, dzięki któremu przeciwciała kierują makrofagi do fagocytowania komórek nowotworowych15,16. Po związaniu z antygenami wykazywanymi przez nowotwór, region Fc przeciwciała angażuje receptory Fcγ (FcγRs) na makrofagach, wyzwalając wewnątrzkomórkowe kaskady sygnałowe, które prowadzą do reorganizacji cytoszkieletu, tworzenia kubka fagocytowego i pochłonięcia komórki docelowej17.
W niniejszym badaniu opracowano i zwalidowano protokół obrazowania żywych komórek w trybie time-lapse do pomiaru fagocytozy komórek raka piersi przez makrofagi indukowanej przez przeciwciała. Metoda ta wykorzystuje makrofagi pochodzące z mononuklearnych komórek krwi obwodowej (PBMC) od zdrowych dawców ludzkich, różnicowane za pomocą czynnika stymulującego kolonie makrofagów (M-CSF), a następnie stymulowane lipopolisarydem (LPS) i interferonem gamma (IFN-γ). Analiza cytometryczna potwierdziła nadekspresję CD80 w populacji CD11b⁺ po stymulacji (Rysunek 1), co potwierdza klasycznie aktywowany fenotyp. Stan aktywacji ten nadaje silną zdolność do fagocytozy zapośredniczonej przez przeciwciała, co czyni tę metodę odpowiednią do oceny fagocytozy komórkowej zależnej od przeciwciał (ADCP). Jako komórki docelowe wykorzystano komórki raka piersi CD24-dodatnie znakowane GFP, które przed kokulturą zostały opsonizowane terapeutycznym monoklonalnym przeciwciałem anty-CD24. Zdarzenia fagocytarne rejestrowano przez okres 16 h za pomocą zautomatyzowanego mikroskopu w kontrolowanych warunkach środowiskowych. Aby umożliwić ilościową ocenę równolegle z dynamiczną wizualizacją, przeprowadzono oddzielny test końcowy w identycznych warunkach kokultury, co pozwoliło na rygorystyczny pomiar fagocytozy po usunięciu niezinternalizowanych komórek docelowych. Niniejszy protokół stanowi ustandaryzowaną, powtarzalną i wizualnie informatywną platformę do oceny ADCP zapośredniczonej przez przeciwciało anty-CD24. Co istotne, integracja obrazowania time-lapse z komplementarną strategią ilościową opartą na pomiarze końcowym umożliwia jednoczesną ocenę kinetyki i skali fagocytozy. Metodę tę można zaadaptować do badania innych celów immunoterapeutycznych skierowanych przeciwko makrofagom. Protokół ten jest najbardziej odpowiedni do oceny ADCP zapośredniczonej przez terapeutyczne przeciwciała monoklonalne przeciwko antygenom powierzchniowym komórek nowotworowych. Nadaje się on do porównawczego przesiewu kandydackich przeciwciał, charakterystyki zależności dawka-odpowiedź oraz badań mechanistycznych nad oddziaływaniem Fc–FcγR, w tym wpływu blokady sygnałów typu „don’t-eat-me” (np. CD47–SIRPα). Ponieważ test wykorzystuje pierwotne ludzkie makrofagi, jest on również odpowiedni do badań translacyjnych wymagających oceny zmienności międzyosobniczej dawców przed etapem rozwoju klinicznego.
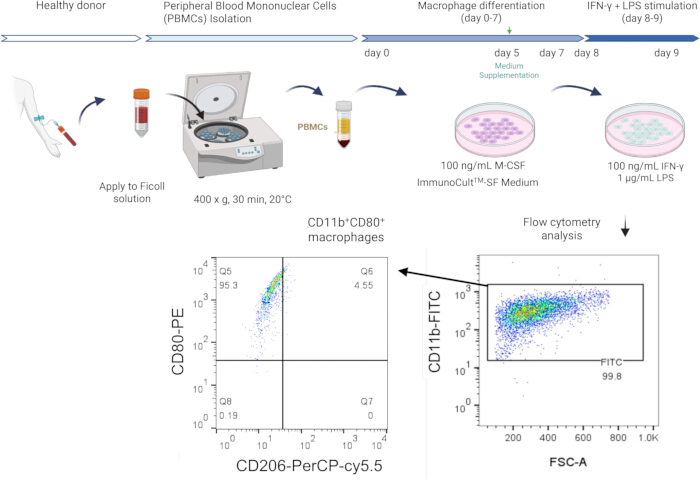
Rycina 1. Generowanie i walidacja za pomocą cytometrii przepływowej makrofagów stymulowanych IFN-γ/LPS pochodzących z mononuklearnych komórek krwi obwodowej. Panel górny: Mononuklearne komórki krwi obwodowej (PBMC) są izolowane od zdrowych dawców metodą wirowania w gradiencie gęstości z użyciem roztworu Ficoll przy 400 × g przez 30 min w 20°C, przy czym wszystkie odczynniki są uprzednio wyrównane do temperatury 20°C ± 2°C. Izolowane PBMC są hodowane w medium ImmunoCult-SF uzupełnionym o 100 ng/mL czynnika stymulującego kolonie makrofagów (M-CSF) przez 7 dni w celu indukcji różnicowania makrofagów (Dzień 0–7), z uzupełnieniem medium w Dniu 5. W Dniu 8 zróżnicowane makrofagi są stymulowane 100 ng/mL IFN-γ oraz 1 µg/mL LPS przez 48 h (Dzień 8–10). Następnie komórki są poddawane analizie cytometrycznej. Panel dolny: Analiza cytometrii przepływowej makrofagów. Komórki barwiono panelem powierzchniowym składającym się z CD11b-FITC, CD80-PE i CD206-PerCP-Cy5.5, a następnie dodano DAPI przed akwizycją w celu wykluczenia martwych komórek. Strategia bramkowania: W pierwszej kolejności wybrano bramkę dla komórek żywych (DAPI⁻), a następnie zidentyfikowano komórki CD11b⁺ na wykresie CD11b-FITC względem FSC-A, aby potwierdzić tożsamość makrofagów. Żywe zdarzenia CD11b⁺ analizowano następnie na wykresie kropkowym CD80 względem CD206, aby potwierdzić populację CD80⁺CD206⁻ indukowaną stymulacją IFN-γ/LPS. Po prawej: Reprezentatywny wykres kropkowy CD11b-FITC względem FSC-A wykazujący, że 99,8% bramkowanych komórek było CD11b⁺, co potwierdza tożsamość makrofagów. Po lewej: Większość komórek CD11b⁺ znalazła się w bramce CD80⁺CD206⁻ (Q1: 95,2%), co wskazuje na oczekiwany fenotyp prozapalny w zastosowanych warunkach stymulacji. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Użytkownicy powinni wziąć pod uwagę kilka ograniczeń podczas stosowania tej techniki. Po pierwsze, zmienność dawców w przypadku makrofagów pochodzących z PBMC może wprowadzać znaczące różnice w wynikach fagocytozy, dlatego zaleca się wykorzystanie wielu dawców (n ≥ 3) z raportowaniem danych poszczególnych dawców obok wyników zbiorczych. Po drugie, format kokultury 2D nie odtwarza mikrośrodowiska guza, a uzyskane wyniki powinny zostać zwalidowane w modelach 3D lub in vivo przed wyciągnięciem wniosków klinicznych. Po trzecie, 16-godzinne okno obrazowania rejestruje wczesne zdarzenia fagocytarne, ale nie odzwierciedla procesów długoterminowych, takich jak prezentacja antygenu czy wtórna aktywacja immunologiczna. Zatem połączone zastosowanie obrazowania w czasie rzeczywistym i kwantyfikacji końcowej zapewnia komplementarne ramy, które zwiększają zarówno interpretowalność, jak i powtarzalność pomiarów ADCP.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Niniejszy protokół zakłada wykorzystanie makrofagów pierwotnych pochodzących z próbek krwi zdrowych dawców. Pobieranie i przetwarzanie próbek przeprowadzono zgodnie z wytycznymi Komisji Bioetycznej (IRB) China Medical University.
1. Przygotowanie makrofagów pochodzących z PBMC
UWAGA: Wszystkie procedury z wykorzystaniem krwi ludzkiej należy przeprowadzać po uzyskaniu zgody instytucjonalnej komisji etycznej (np. CMUH IRB). Przed pobraniem krwi należy uzyskać świadomą zgodę od zdrowych dawców.
UWAGA: Wszystkie produkty krwi ludzkiej należy traktować w warunkach 2. poziomu bezpieczeństwa biologicznego (Biosafety Level 2), stosując środki ostrożności uniwersalne.
- Pobieranie krwi
- Pobrać krew pełną od zdrowego dawcy do probótek typu vacutainer z powłoką z kwasu etylenodiaminotetraoctowego (EDTA) o pojemności 10 mL.
- Rozcieńczanie krwi
- Rozcieńczyć krew pełną w stosunku 1:1 w lodowatym roztworze soli fosforanowej (PBS; wolny od Ca2⁺/Mg2⁺) (np. 10 mL krwi + 10 mL PBS).
- Wymieszać poprzez odwracanie probótki od trzech do pięciu razy.
UWAGA: Przechowywać PBS w lodzie przed użyciem. Niska temperatura pomaga zachować żywotność komórek podczas przetwarzania.
- Warstwowanie gradientu gęstości
- Ostrożnie nałożyć rozcieńczoną krew na warstwę Ficoll–Paque PLUS w stosunku objętości 2:1 (v/v) w probówce stożkowej (np. 8 mL krwi na 4 mL Ficollu w probówce 15 mL lub 30 mL na 15 mL w probówce 50 mL).
- Przed warstwowaniem doprowadzić zarówno rozcieńczoną krew, jak i Ficoll–Paque PLUS do temperatury 20°C ± 2°C.
- Wyjąć Ficoll–Paque PLUS z przechowywania w 4°C co najmniej 30 min przed użyciem lub krótko ogrzać w łaźni wodnej o temperaturze 20°C ± 2°C.
- Nie używać zimnych odczynników, ponieważ gęstość Ficollu jest skalibrowana dla temperatury 20°C ± 2°C, a odchylenia od niej obniżą wydajność separacji i uzysk PBMC.
UWAGA: Przechylić probówkę pod kątem 45° i powoli pipetować krew wzdłuż ścianki, aby zachować wyraźną granicę między warstwami. Nie zakłócać warstwy Ficollu.
- Wirowanie
- Wirować przy 400 × g przez 30 min w temperaturze 20°C z wyłączonym hamulcem (Rysunek 1).
UWAGA: Hamowanie zakłóci gradient gęstości i zmniejszy uzysk PBMC.
- Wirować przy 400 × g przez 30 min w temperaturze 20°C z wyłączonym hamulcem (Rysunek 1).
- Zbieranie PBMC
- Ostrożnie odessać za pomocą pipety serologicznej tylko warstwę białkową (białawy interfejs między warstwą osocza a warstwą Ficollu), nie zakłócając osocza powyżej ani warstwy Ficollu poniżej.
- Przenieść zebraną warstwę do nowej probówki stożkowej 50 mL.
- Przemywanie PBMC
- Dodać PBS, aby zwiększyć całkowitą objętość do 25 mL w probówce stożkowej 50 mL.
- Użyć probówki 50 mL, aby zapewnić prawidłowe wirowanie i wyważenie.
- Wirować przy 300 × g przez 10 min.
- Liza RBC
- Odlać nadsącz.
- Resuspendować osad w 5 mL buforze do lizy erytrocytów (RBC) poprzez delikatne pipetowanie w górę i w dół pipetą serologiczną, aż osad zostanie całkowicie rozproszony i nie będzie widocznych grudek.
- Inkubować w temperaturze pokojowej przez 5 min.
OSTROŻNIE: Całkowite rozproszenie jest niezbędne do zapewnienia jednorodnej lizy; należy jednak unikać energicznego pipetowania lub mieszania w vortexie, co może uszkodzić PBMC. Nie przekraczać 5 min inkubacji z buforem do lizy RBC, ponieważ przedłużona ekspozycja może pogorszyć żywotność PBMC.
- Osadzanie PBMC
- Wirować przy 500 × g przez 5 min, aby osadzić PBMC i usunąć szczątki zlizowanych RBC.
- Ostateczna resuspensja
- Odlać nadsącz.
- Resuspendować osad w 5 mL pożywki do makrofagów ImmunoCult-SF.
UWAGA: W standardowych warunkach 10 mL krwi pełnej zazwyczaj daje uzysk 1,5–2,0 × 10⁷ PBMC.
2. Różnicowanie makrofagów (dni 0–7)
UWAGA: Należy używać szalek Petriego nieprzetraktowanych dla hodowli tkankowych (TC), aby wyselekcjonować zróżnicowane makrofagi pochodzące z monocytów poprzez adhezję. Niezwiązane limfocyty zostaną wypłukane podczas kolejnych etapów hodowli.
- Dzień 0: Wysiew komórek
- Wykonać zliczenie komórek i wysiać 1 × 10⁷ PBMC do 10 cm szalki Petriego niepoddanej obróbce TC.
- Uzupełnić całkowitą objętość do 10 mL, używając pożywki do makrofagów ImmunoCult-SF uzupełnionej o 100 ng/mL M-CSF (przygotowanej poprzez dodanie zapasu M-CSF bezpośrednio do pełnej pożywki bezpośrednio przed użyciem i wymieszanie przez delikatne odwracanie).
UWAGA: Protokół można skalować proporcjonalnie, aby dostosować go do różnic w uzysku PBMC od dawcy, przyjmując gęstość wysiewu od 1 × 10⁶ komórek/mL jako bazę.
- Inkubacja i monitorowanie
- Inkubować w temperaturze 37°C z 5% CO₂ w inkubatorze z nawilżaniem.
- Codziennie monitorować tworzenie się pływających skupisk monocytów oraz pojawianie się komórek adherentnych.
UWAGA: Monocyty będą stopniowo zwiększać swoje rozmiary i tworzyć skupiska w miarę postępu różnicowania. Niektóre monocyty zaczną przytwierdzać się do płytki. Na tym etapie nie jest wymagana żadna interwencja.
- Dzień 5: Suplementacja pożywki
- Delikatnie dodać do szalki 5 mL świeżej pożywki do makrofagów ImmunoCult-SF uzupełnionej o 100 ng/mL M-CSF, dbając o to, aby nie naruszyć adherentnych makrofagów.
- Kontynuować hodowlę przez kolejne 2 dni (do Dnia 7).
OSTROŻNIE: Świeżą pożywkę należy dodawać delikatnie wzdłuż ścianki szalki, aby uniknąć naruszenia adherentnych makrofagów, ponieważ uszkodzenia mechaniczne mogą wpłynąć na wydajność różnicowania i uzysk komórek.
UWAGA: Należy unikać wymiany pożywki, aby zachować czynniki autokrynne/parakrynne wspierające różnicowanie makrofagów.
- Dzień 7: Ocena morfologiczna
- Ocenić wydajność różnicowania makrofagów pod mikroskopem odwróconym.
- Komórki adherentne wykazują charakterystyczną morfologię makrofagów: są duże, spłaszczone i mają nieregularny kształt z widocznymi pseudopodiami.
- W Dniu 7 powinny być widoczne dobrze zróżnicowane makrofagi.
OSTROŻNIE: Ocena morfologiczna w Dniu 7 stanowi kluczowy warunek wstępny dla późniejszej walidacji metodą cytometrii przepływowej. Dobrze zróżnicowane makrofagi powinny być wyraźnie widoczne pod mikroskopem, a wyższa proporcja komórek adherentnych o morfologii makrofagów odzwierciedla większą wydajność różnicowania (za wskaźnik udanego różnicowania uznaje się około 70% konfluencji adherentnych makrofagów o charakterystycznej morfologii). Hodowle wykazujące słabą adhezję, przewagę komórek okrągłych lub w inny sposób słabe różnicowanie morfologiczne prawdopodobnie nie dostarczą wiarygodnych wyników cytometrii przepływowej i nie powinny być poddawane stymulacji oraz barwieniu.
3. Polaryzacja makrofagów (dni 8–10)
- Zbiór i klarowanie medium warunkowanego
- W 8. dniu ostrożnie odessaj 15 mL medium z naczynia hodowlanego, nie naruszając przytwierdzonych makrofagów, i przenieś je do sterylnej probówki stożkowej o pojemności 50 mL.
- Odwiruj zebrane medium przy 400 × g przez 5 min, aby odwirować szczątki komórkowe.
- Zachowaj klarowny supernatant do kolejnego etapu.
- Stymulacja interferonem gamma (IFN-γ) i lipopolisacharydem (LPS)
- Przelej klarowny supernatant o objętości 15 mL do nowej sterylnej probówki i uzupełnij o 100 ng/mL IFN-γ oraz 1 µg/mL LPS.
- Wymieszaj dokładnie, delikatnie pipetując w górę i w dół (5–10 razy), aby zapewnić jednorodne rozmieszczenie cytokin bez wprowadzania pęcherzyków powietrza.
- Przenieś całe 15 mL medium uzupełnionego cytokinami z powrotem do oryginalnego naczynia hodowlanego, delikatnie pipetując wzdłuż wewnętrznej ścianki, aby nie naruszyć przytwierdzonych makrofagów.
- Inkubuj w temperaturze 37°C przy 5% CO₂ przez 48 h (od 8. do 10. dnia).
UWAGA: Należy użyć medium warunkowanego (starego), aby zachować czynniki autokrynne/parakrynne. Ta kombinacja IFN-γ i LPS jest stosowana w celu polaryzacji makrofagów do fenotypu prozapalnego. W warunkach stymulacji IFN-γ (100 ng/mL) i LPS (1 µg/mL) zastosowanych w tym protokole makrofagi wykazują charakterystyczne zmiany morfologiczne, w tym wydłużone lamelipodia zgodne z aktywnym stanem prozapalnym, a także ekspresję CD11b i CD80.
OSTRZEŻENIE: Z LPS należy obchodzić się zgodnie z odpowiednimi procedurami bezpieczeństwa laboratoryjnego, ponieważ jest to bioaktywna endotoksyna, która w przypadku ekspozycji może wywołać reakcje zapalne.
4. Potwierdzenie markerów fenotypu zapalnego makrofagów stymulowanych IFN-γ i LPS za pomocą cytometrii przepływowej
- Zbieranie komórek
- W 10. dniu zbierz podgrupę spolaryzowanych makrofagów w celu fenotypowania.
- Dodaj 10 mM EDTA w PBS i inkubuj przez 10–15 min w 37°C.
- Ododziel komórki, delikatnie pipetując.
UWAGA: Jeśli komórki pozostają przylegające, przedłuż inkubację w EDTA o dodatkowe 30 min w 37°C, a następnie ponownie delikatnie pipetuj. Unikaj energicznego pipetowania lub mechanicznego skrobania, aby zachować żywotność komórek i integralność markerów powierzchniowych.
- Przygotowanie do barwienia przeciwciałami
- Zbarw komórki przeciwciałami sprzężonymi z fluorochromami przeciwko CD11b (marker linii pan-makrofagicznej), CD80 (marker stanu zapalnego) oraz CD206 (marker przeciwzapalny stosowany jako marker wykluczający dla identyfikacji fenotypu zapalnego).
- Procedura barwienia
- Przenieś 5 × 10⁵ odseparowanych makrofagów do probówki do cytometrii przepływowej zawierającej 100 µL zimnego PBS.
- Dodaj przeciwciała CD11b-FITC, CD80-PE oraz CD206-PerCP-Cy5.5 do stężenia końcowego 1 µg/mL dla każdego z nich.
- Wymieszaj zawiesinę komórkową, delikatnie pipetując.
- Inkubuj próbki na lodzie przez 1 h, chroniąc je przed światłem.
- Odwiruj próbki przy 300 × g przez 1 min w 4°C.
- Ostrożnie odessij supernatant.
- Dodaj 0,5 mL zimnego PBS, aby wypłukać osad komórkowy.
- Odwiruj próbki przy 300 × g przez 1 min w 4°C.
- Odlej supernatant.
- Resuspenduj osad komórkowy w 200 µL zimnego PBS.
- Dodaj DAPI do stężenia końcowego 1 µg/mL.
UWAGA: Uwzględnij odpowiednie kontrole izotypowe oraz barwnik żywotności (np. DAPI lub wiążący barwnik Viobility 405/452).
- Analiza cytometrii przepływowej
- Analizuj zbarwione próbki za pomocą cytometru przepływowego.
- Potwierdź ekspresję CD11b i CD80 w populacji makrofagów.
- Przejdź do testu fagocytozy dopiero po potwierdzeniu ekspresji markerów zgodnej z fenotypem zapalnym.
- Akwizycja i konfiguracja cytometrii przepływowej
- Konfiguracja instrumentu
- Skonfiguruj cytometr przepływowy, korzystając z następujących kanałów: Pacific Blue/V450 (DAPI), FITC (CD11b), PE (CD80) oraz PerCP-Cy5.5 (CD206).
- Ustaw parametr akwizycji tak, aby zebrać 10 000 zdarzeń na próbkę w ramach zdefiniowanego bramowania nadrzędnego.
- Kalibracja progu i wzmocnienia
- Otwórz cztery wykresy kropkowe (dot plots) z FSC na osi x i jednym kanałem fluorochromu na osi y.
- Przygotuj komórki zbarwione odpowiadającymi im kontrolnymi przeciwciałami izotypowymi dopasowanymi do każdego fluorochromu.
- Zbierz dane z próbek kontroli izotypowej.
- Dostosuj wzmocnienie (gain) dla każdego kanału, aby zlokalizować populację kontroli izotypowej poniżej 101 w skali logarytmicznej.
- Użyj tego progu do określenia poziomów sygnału tła.
UWAGA: Użyj zakresu skali logarytmicznej od 101 do 101·5, aby uzyskać niezawodną separację między tłem a sygnałem specyficznym.
- Kompensacja
- Dodaj jedną kroplę kulek kompensacyjnych do probówki mikrowirówkowej 1,5 mL.
- Dodaj odpowiadające im przeciwciało sprzężone z fluorochromem do stężenia końcowego 1 µg/mL.
- Inkubuj przez 30 min na lodzie, chroniąc przed światłem.
- Odwiruj przy 400 × g przez 1 min.
- Odlej supernatant.
- Resuspenduj kulki w 200 µL zimnego PBS.
- Zbierz dane dla kontroli jednobarwnych.
- Zastosuj kompensację spektralną, aby skorygować nakładanie się sygnałów (spillover) fluorochromów.
- Strategia bramkowania (gating)
- Wybór żywych komórek
- Wyświetl Pacific Blue/V450 (DAPI) na osi y oraz FSC na osi x.
- Wyznacz bramkę dla zdarzeń DAPI-ujemnych (poniżej 101), aby wybrać żywe komórki.
- Identyfikacja makrofagów
- Ustaw populację żywych komórek jako bramkę nadrzędną.
- Wyświetl FITC (CD11b) na osi y oraz FSC na osi x.
- Wyznacz bramkę dla zdarzeń CD11b⁺ (powyżej 101).
- Identyfikacja fenotypu zapalnego
- Ustaw populację CD11b⁺ jako bramkę nadrzędną.
- Wyświetl PE (CD80) na osi y oraz PerCP-Cy5.5 (CD206) na osi x.
- Zastosuj bramkowanie kwadrantowe na poziomie 101.5 na obu osiach.
- Zidentyfikuj komórki CD80⁺CD206⁻ w lewym górnym kwadrancie (Q1).
- Wybór żywych komórek
- Konfiguracja instrumentu
- Kryteria akceptacji
- Potwierdź, że ≥90% komórek w bramce nadrzędnej CD11b⁺ to komórki CD80⁺CD206⁻.
- Przejdź do testu fagocytozy tylko po osiągnięciu tego progu.
- Powtórz izolację PBMC, różnicowanie w obecności M-CSF oraz stymulację IFN-γ/LPS, jeśli próbki nie spełniają tego kryterium.
5. Test fagocytozy zależnej od przeciwciał
UWAGA: Przed przygotowaniem testu należy zweryfikować stabilną ekspresję GFP w komórkach nowotworowych. Przed wykonaniem testu należy potwierdzić ekspresję CD24 na komórkach docelowych. W celu uzyskania optymalnych wyników należy użyć komórek nowotworowych z 50%–100% pozytywności na CD24. Komórki MDA-MB-468 wykorzystane w niniejszym protokole wykazują 100% pozytywności na CD24.
- Siew makrofagów
- Zasiej IFN-γ- oraz makrofagi stymulowane LPS, zgodnie z walidacją przeprowadzoną w kroku 4, przy 2 × 10⁵ liczba komórek na studnię w 24-dołkowej płytce do hodowli tkankowych.
- Inkubować płytkę w temperaturze 37°C w warunkach statycznych przy 5% CO₂ przez 12–16 h, aby umożliwić adhezję komórek (Rysunek 2A).
UWAGA: Przed przejściem do kolejnego etapu należy upewnić się, że makrofagi są trwale przytwierdzone do podłoża. Słabo przytwierdzone makrofagi mogą oderwać się podczas obrazowania, co może doprowadzić do błędnych wyników.
- Przygotowanie komórek nowotworowych
- Hodować komórki raka piersi MDA-MB-468 z markerem GFP, wykazujące ekspresję CD24, do uzyskania 70%–80% konfluencji.
- Odssać pożywkę hodowlaną.
- Przemyć monowarstwę komórek raz buforem PBS.
- Odrywanie komórek nowotworowych
- Do naczynia hodowlanego dodać 10 mM EDTA w PBS.
- Inkubować komórki w temperaturze 37°C przez 5–10 min.
- Oddzielić komórki poprzez delikatne pipetowanie, aby zapewnić ich całkowite uwolnienie.
UWAGA: Należy unikać stosowania trypsyny podczas odrywania komórek. Trawienie enzymatyczne może prowadzić do odszczepienia CD24 z powierzchni komórek i upośledzić wiązanie przeciwciał.
- Kolekcjonowanie i liczenie komórek nowotworowych
- Zebrać oddzielone komórki do probówki wirówkowej.
- Wiruj komórki przy 300 g × g przez 5 min.
- Odlej supernatant.
- Resuspenduj pellet komórkowy w pełnym medium RPMI pożywka
- Oznacz liczbę żywych komórek.
- Opsonizacja komórek nowotworowych przeciwciałami
- Resuspender komórki nowotworowe w zagęszczeniu 2 × 10⁵ komórek/ml w 0,5 ml kompletnego medium RPMI pożywka
- Dodaj przeciwciało monoklonalne anty-CD24 do stężenia końcowego wynoszącego 1 µg/mL.
- Wymieszaj zawiesinę komórkową, delikatnie pipetując, aby zapewnić równomierne rozmieszczenie przeciwciał.
- Inkubować komórki w temperaturze 37°C przez 30 min w warunkach statycznych.
UWAGA: Należy uwzględnić kontrolę IgG dopasowaną izotypowo w tym samym stężeniu jako kontrolę negatywną dla fagocytozy zależnej od przeciwciał.
- Przygotowanie do kokultury
- Nie należy płukać komórek po opsonizacji.
- Należy bezzwłocznie przejść do kokultury, aby zachować powłokę przeciwciał na powierzchni komórek.
- Konfiguracja kokultury
- Dodaj 1 × 10⁵ opsonizowane przeciwciałami komórki raka piersi znakowane GFP do każdej studzienki zawierającej makrofagi.
- Zachowaj stosunek efektorów do komórek docelowych na poziomie 2:1.
UWAGA: Dostosuj stosunek efektorów do komórek docelowych w zależności od projektu eksperymentalnego. Stosuj wyższe proporcje makrofagów do komórek nowotworowych niż opisany stosunek 2:1 (np. 3:1 lub 5:1), aby zwiększyć częstotliwość kontaktów międzykomórkowych i usprawnić detekcję zdarzeń fagocytarnych.
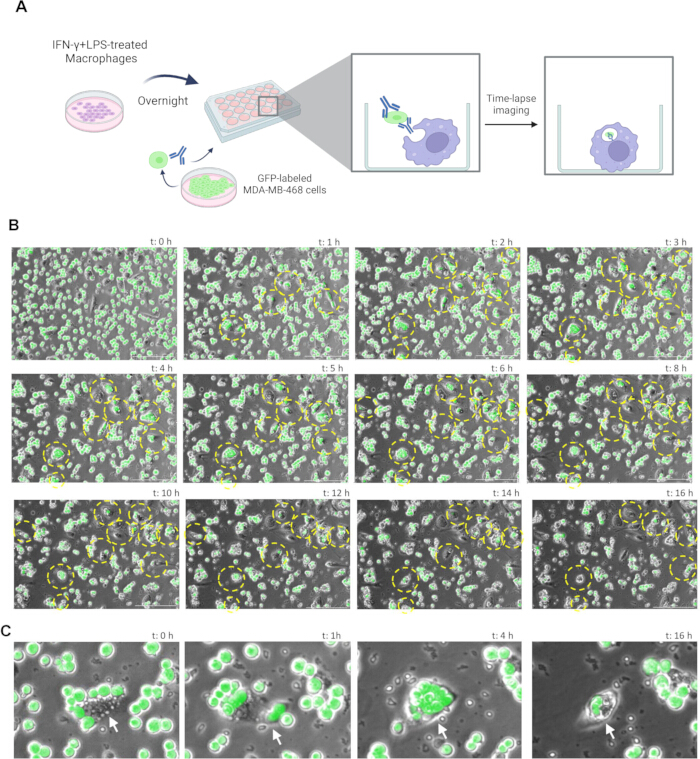
Rysunek 2Obrazowanie poklatkowe fagocytozy komórkowej zależnej od przeciwciał. (A) Schematyczny przegląd systemu kokultury i układu do obrazowania time-lapse. Parametry obrazowania obejmowały 10-minutowy odstęp w całkowitym czasie akwizycji wynoszącym 16 h (97 klatek), przy użyciu 10× obiektyw z kanałami kontrastu fazowego i GFP. (B) Reprezentatywne obrazy time-lapse z przedziału czasowego od 1 do 16 h, przedstawiające zdarzenia fagocytyczne charakteryzujące się internalizacją komórek nowotworowych wykazujących ekspresję GFP przez makrofagi w czasie. Żółte przerywane okręgi wyróżniają reprezentatywne zdarzenia fagocytyczne. W kanale kontrastu fazowego pochłonięte komórki nowotworowe widoczne są jako jasne w kontraście fazowym struktury wewnątrzkomórkowe w cytoplazmie makrofagów (białe strzałki). W kanale GFP fluorescencja zlokalizowana wewnątrz makrofagów potwierdza internalizację. (C) Powiększone widoki reprezentatywnych zdarzeń fagocytycznych w czasie 0, 1, 4 i 16 h, ilustrujące sekwencyjny proces pochłaniania oznakowanych GFP komórek nowotworowych przez makrofagi. Sekwencja obrazów została wybrana jako reprezentatywna na podstawie wyraźnej wizualizacji zdarzeń fagocytycznych pośredniczonych przez makrofagi. Białe strzałki wskazują makrofagi oddziałujące z komórkami docelowymi i internalizujące je. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
6. Obrazowanie time-lapse (Zautomatyzowany system obrazowania żywych komórek)
UWAGA: Przed przystąpieniem do analizy należy skonfigurować protokół obrazowania przy użyciu zautomatyzowanego systemu obrazowania żywych komórek Lionheart oraz zautomatyzowanego oprogramowania do obrazowania żywych komórek Gen5. Przed obsługą systemu obrazowania należy przejść odpowiednie szkolenie, aby zapewnić prawidłową konfigurację, optymalną wydajność oraz bezpieczne użytkowanie.
- Przygotowanie instrumentu
- Włącz system obrazowania, moduł kontroli środowiskowej oraz zasilanie gazem CO₂ co najmniej 1 h przed obrazowaniem.
- Otwórz panel Environment Control w oprogramowaniu do zautomatyzowanego obrazowania żywych komórek.
- Ustaw temperaturę na 37°C i poziom CO₂ na 5%.
- Przed załadowaniem płytki upewnij się, że temperatura w komorze ustabilizowała się w zakresie ± 0,2°C, a poziom CO₂ wynosi 5,0% ± 0,1%.
- Przygotowanie płytki
- Umieść płytkę 24-dołkową w komorze obrazującej systemu obrazowania.
- Konfiguracja wstępna
- Otwórz Task Manager w oprogramowaniu do zautomatyzowanego obrazowania żywych komórek.
- Wybierz [Imager manual mode].
- Kliknij [Capture now], aby zainicjować parametry obrazowania.
- Wybierz obiektyw 10×.
- W ustawieniach filtrów wybierz microplate.
- Z biblioteki płytek w oprogramowaniu do zautomatyzowanego obrazowania żywych komórek wybierz płytkę 24-dołkową.
- Ustawienie ostrości i obrazu
- Wybierz kanał Phase Contrast.
- Wybierz reprezentatywny dołek (np. A1).
- Przed rozpoczęciem akwizycji time-lapse aktywuj autofocus.
- Wykonaj zdjęcie, korzystając z ikony aparatu.
- Potwierdź morfologię komórek i jakość ostrości.
- Przejdź do [Process/Analyze].
- Wybierz [Create experiment from an image set], aby skonfigurować eksperyment.
- Parametry akwizycji time-lapse
- Otwórz panel ustawień [Procedure].
- Ustaw temperaturę na 37°C i poziom CO₂ na 5%.
- W sekcji [Start Kinetic] ustaw czas trwania pomiaru na 16:00:00.
- Ustaw interwał obrazowania na 0:10:00.
- Ustaw całkowitą liczbę odczytów na 97.
- Stosuj interwał obrazowania 10–15 min, aby zrównoważyć rozdzielczość czasową i fototoksyczność podczas rejestrowania wczesnych zdarzeń fagocytozy.
- Konfiguracja kanałów obrazowania
- Ustaw Kanał 1 na Phase Contrast.
- Ustaw Kanał 2 na GFP (Ex 469/35, Em 525/39).
- Wybierz obiektyw 10× dla optymalnego pola widzenia i rozdzielczości.
- Ustaw oświetlenie, czas integracji i wzmocnienie na [Auto] lub dostosuj je ręcznie.
- Stosuj typowy czas ekspozycji dla GFP wynoszący 100–300 ms, aby uniknąć nasycenia sygnału.
- Zastosuj identyczne ustawienia obrazowania we wszystkich dołkach.
- Ustawienie pozycji obrazowania
- Otwórz menu [Define beacons].
- Wyłącz akwizycję Z-stack.
- Wyłącz akwizycję montage.
- Wykonuj obrazowanie w jednej płaszczyźnie ogniskowej.
- Zdefiniuj pozycje obrazowania ręcznie, wybierając reprezentatywne, niezachodzące na siebie obszary w każdym dołku za pomocą ikony mikroskopu.
- Zachowaj identyczne pozycje obrazowania we wszystkich punktach czasowych.
- Wybierz co najmniej 4–6 pól widzenia na dołek.
- Akwizycja time-lapse
- Kliknij [Play], aby rozpocząć zautomatyzowane obrazowanie time-lapse.
- Eksport danych i wizualizacja
- Po zakończeniu akwizycji otwórz zapisany plik eksperymentu.
- Wybierz pozycje obrazowania.
- Eksportuj dane time-lapse w formacie MP4.
- Otwórz [Process Tool].
- W razie potrzeby zastosuj [Image Deconvolution], aby poprawić wizualizację i zidentyfikować reprezentatywne zdarzenia fagocytozy.
UWAGA: Stosuj obrazowanie time-lapse wyłącznie do wizualizacji jakościowej. Niefagocytowane komórki nowotworowe GFP-dodatnie mogą nakładać się na makrofagi lub przejściowo z nimi współistnieć, co prowadzi do sygnałów fałszywie dodatnich. Analizę ilościową przeprowadź za pomocą oddzielnego testu punktu końcowego.
7. Końcowa kwantyfikacja fagocytozy
- Usuwanie komórek niezinternalizowanych
- Przeprowadź analizę w identycznych warunkach kokultury.
- Zakończ eksperyment po 4 h.
- Usuń medium hodowlane.
- Dodaj 10 mM EDTA w PBS.
- Inkubuj w 37°C przez 5 min.
- Delikatnie przemyj PBS, aby usunąć niezinternalizowane komórki GFP-dodatnie.
- Dodaj świeże medium do makrofagów.
- Pozyskiwanie obrazów do ilościowego oznaczenia
- Pozyskaj obrazy, korzystając z kontrastu fazowego oraz kanału GFP.
- Przechwyć co najmniej 4–6 pól widzenia na studzienkę.
- Przeanalizuj minimum trzy studzienki dla każdego wariantu.
- Definicja zdarzeń fagocytycznych
- Zidentyfikuj makrofagi zawierające sygnały GFP-dodatnie całkowicie zamknięte w granicach komórki.
- Analiza obrazu
- Otwórz obrazy w oprogramowaniu ImageJ.
- Użyj wtyczki Cell Counter.
- Policz całkowitą liczbę makrofagów.
- Policz makrofagi zawierające zinternalizowane komórki GFP-dodatnie.
- Obliczanie indeksu fagocytozy
- Oblicz:
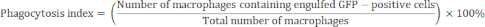
- Przeprowadź analizę metodą ślepej próby.
- Powtórz procedurę w co najmniej trzech niezależnych eksperymentach.
- Oblicz:
- Prezentacja danych
- Przedstaw reprezentatywne obrazy time-lapse chronologicznie (Rysunek 2B i Rysunek 2C).
- Przedstaw reprezentatywne obrazy końcowe (Rysunek 3A i Rysunek 3B).
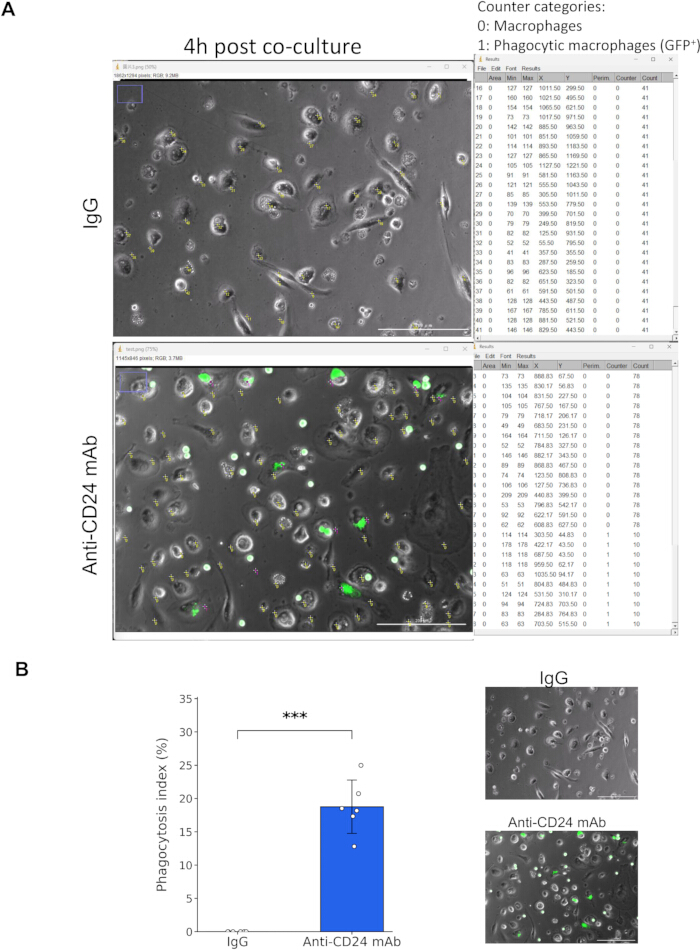
Rysunek 3. Ilościowe oznaczenie zależnej od przeciwciał fagocytozy makrofagów za pomocą analizy punktu końcowego. (A) Reprezentatywne obrazy w kontraście fazowym i fluorescencji GFP makrofagów współhodowanych z komórkami raka piersi znakowanymi GFP przez 4 h, po czym usunięto niepochłonięte komórki za pomocą traktowania EDTA. Kanały kontrastu fazowego i GFP zostały nałożone w celu identyfikacji makrofagów i zinternalizowanych celów dodatnich pod kątem GFP. Makrofagi (licznik 0) oraz fagocytujące makrofagi dodatnie pod kątem GFP (licznik 1) zostały policzone przy użyciu wtyczki Cell Counter w programie ImageJ. W warunkach kontrolnych z zastosowaniem IgG nie zaobserwowano zdarzeń fagocytycznych, podczas gdy traktowanie przeciwciałem monoklonalnym anty-CD24 doprowadziło do wyraźnych wewnątrzkomórkowych sygnałów GFP-dodatnich w makrofagach, co wskazuje na aktywną fagocytozę. Pasek skali = 200 µm. (B) Ilościowe oznaczenie indeksu fagocytozy, zdefiniowanego jako procent makrofagów zawierających zinternalizowane komórki GFP-dodatnie w stosunku do całkowitej populacji makrofagów. Przeciwciało monoklonalne anty-CD24 znacząco zwiększyło indeks fagocytozy w porównaniu z kontrolą IgG (0.00 ± 0.00% vs. 18.76 ± 4.01%, średnia ± SD; n = 6 pól na grupę; ***p < 0.001, nieparzysty test t Welcha). Dane są reprezentatywne dla co najmniej trzech niezależnych eksperymentów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Prawidłową generację i polaryzację makrofagów z PBMC potwierdzono za pomocą oceny morfologicznej oraz analizy cytometrycznej (Rycina 1). PBMC wyizolowane metodą wirowania w gradiencie gęstości hodowano w medium z dodatkiem M-CSF, co do 7. dnia doprowadziło do uzyskania komórek przylegających o charakterystycznej morfologii makrofagów. Po stymulacji IFN-γ oraz LPS komórki wykazały fenotyp zgodny z aktywacją w zastosowanych warunkach. Analiza cytometryczna wykazała, że 99,8% wybranych komórek ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Kilka etapów w niniejszym protokole ma kluczowe znaczenie dla uzyskania wiarygodnych i powtarzalnych wyników. Po pierwsze, jakość i czystość izolacji PBMC bezpośrednio wpływają na wydajność uzyskiwania makrofagów oraz efektywność ich różnicowania. Staranne warstwowanie rozcieńczonej krwi nad gradientem Ficoll oraz wirowanie z wyłączonym hamulcem są niezbędne dla zachowania interfejsu warstwy leukocytarnej (buffy coat). Niepełna liza RBC lub zbyt długa inkubacja z buforem lizującym obniży żywotność PBMC. Po drugie, polary...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie wykazują żadnego konfliktu interesów.
Podziękowania
Praca ta była wspierana przez Centrum Biologii Nowotworów i Terapii Precyzyjnej Uniwersytetu Medycznego w Chinach w ramach Programu Centra Badawczych Obszarów Priorytetowych w ramach Projektu Higher Education Sprout Ministerstwa Edukacji (MOE) na Tajwanie (CBPTC-PROJ-5-2).
Dziękujemy Centrum Biologii Nowotworów i Terapii Precyzyjnej za zapewnienie finansowania oraz wsparcia akademickiego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Roztwór stokowy kwasu etylenodiaminotetraoctowego (EDTA) 0,5 M | Sigma-Aldrich (lub odpowiednik) | E7889 (lub odpowiednik) | Stosowany do przygotowania 10 mM roboczego roztworu EDTA w PBS do odrywania komórek |
| płytki 24-dołkowe do hodowli tkanek (poddane obróbce TC) | Corning (lub odpowiednik) | 3524 | Stosowane do kokultury makrofagów i komórek nowotworowych podczas testu fagocytozy |
| Przeciwciało anty-CD206 przeciwko ludzkiemu antygenowi (cytometria przepływowa) | BioLegend (lub odpowiednik) | 321122 (lub odpowiednik) | Marker alternatywnego fenotypu makrofagów |
| Przeciwciało monoklonalne anty-CD24 przeciwko ludzkiemu antygenowi | Thermo Fisher Scientific (lub odpowiednik) | MA1-91384 (lub odpowiednik) | Stosowane do opsonizacji komórek nowotworowych w celu wywołania fagocytozy zależnej od przeciwciał |
| Zautomatyzowany system obrazowania żywych komórek z komorą kontroli parametrów środowiskowych (np. Lionheart FX) | Agilent Technologies (lub odpowiednik) | Automatyczny mikroskop BioTek Lionheart FX | Umożliwia długoterminowe obrazowanie time-lapse w kontrolowanej temperaturze i 2 warunki |
| Oprogramowanie do obrazowania służące do zautomatyzowanego obrazowania żywych komórek (np. Gen5) | Agilent Technologies (lub odpowiednik) | N/A | Służy do akwizycji i analizy danych obrazowania poklatkowego (time-lapse) |
| Wirówka (rotor z koszyczkami wahadłowymi) | Thermo Fisher Scientific (lub odpowiednik) | Wirówka Multifuge X4R Pro z rotorem TX-1000 (lub odpowiednikiem) | Stosowane do izolacji PBMC oraz w etapach płukania komórek |
| 2 inkubator (37°C, 5% 2) | Thermo Fisher Scientific (lub odpowiednik) | Forma Direct Heat 2 Inkubator (lub odpowiednik) | Zapewnia warunki fizjologiczne dla hodowli komórkowych |
| 2 zasilanie gazem z regulatorem | Agilent Technologies (lub odpowiednik) | Ze względu na brak treści źródłowej, nie mogę wykonać tłumaczenia. Proszę o dostarczenie tekstu do przetłumaczenia. | Materiały i odczynniki 2 do kontroli warunków środowiskowych inkubatora i systemu obrazowania |
| Probówki stożkowe (15 ml i 50 ml) | Corning (lub odpowiednik) | 352070 (lub odpowiednik) | Stosowane do izolacji, przemywania i odwirkowywania PBMC |
| probówki do pobierania krwi powlekane EDTA (vacutainery) | BD Biosciences (lub odpowiednik) | 367863 (lub odpowiednik) | Stosowane do pobierania próbek krwi pełnej od dawców |
| Ficoll-Paque PLUS | Cytiva (lub odpowiednik) | 17144003 (lub odpowiednik) | Medium do gradientowej wirowania w celu izolacji PBMC |
| Cytometr przepływowy (np. FACSCanto II) | BD Biosciences (lub odpowiednik) | BD FACSCanto II | Stosowane do analizy fenotypowej makrofagów |
| Kulek kompensacyjnych (cytometria przepływowa) | Biolegend (lub odpowiednik) | 424602 | Stosowane do kontroli kompensacji jednobarwnej |
| przeciwciało anty-CD11b przeciwko ludzkiemu białku znakowane FITC (cytometria przepływowa) | BioLegend (lub odpowiednik) | 101205 (lub odpowiednik) | Marker stosowany do identyfikacji makrofagów |
| przeciwciało przeciwko ludzkiemu CD80 znakowane PE (cytometria przepływowa) | BioLegend (lub odpowiednik) | 375410 (lub odpowiednik) | Marker związany z fenotypem aktywowanych makrofagów |
| linia komórkowa raka piersi (MDA-MB-468) wykazująca ekspresję GFP | ATCC (lub odpowiednik) | HTB-132 (lub odpowiednik) | Komórki docelowe użyte w teście fagocytozy; GFP umożliwia wizualizację |
| pożywka do makrofagów ImmunoCult-SF | STEMCELL Technologies (lub odpowiednik) | 10961 (lub ekwiwalent) | Pożywka bezsurowicza stosowana do różnicowania makrofagów |
| Dulbecco’podłoże DMEM (Dulbecco's Modified Eagle Medium) | Thermo Fisher Scientific (lub odpowiednik) | 12100046 | Stosowane do hodowli i resuspensji komórek nowotworowych |
| Przeciwciało kontrolne izotypowe (IgG) | Bio X Cell (lub odpowiednik) | BE0297 (lub odpowiednik) | Kontrola negatywna dla testu fagocytozy zależnej od przeciwciał |
| Lipopolisacharyd (LPS) | Sigma-Aldrich (lub odpowiednik) | L2630 (lub odpowiednik) | Bodziec stosowany do aktywacji makrofagów w połączeniu z IFN-γ |
| Rekombinowany ludzki interferon gamma (IFN-γ) | STEMCELL Technologies (lub odpowiednik) | 78020 (lub odpowiednik) | Cytokina stosowana do aktywacji makrofagów |
| Rekombinowany ludzki czynnik stymulujący wzrost kolonii makrofagów (M-CSF) | STEMCELL Technologies (lub odpowiednik) | 78057 (lub odpowiednik) | Czynnik wzrostu stosowany do różnicowania makrofagów |
| Pipety Pasteura lub pipety serologiczne | Jetbiofil (lub odpowiednik) | GSP010010 (lub odpowiednik) | Stosowane do manipulacji cieczami podczas izolacji PBMC oraz hodowli komórkowej |
| PBS (bez Ca2+)2+-/Mg2+-wolny) | Thermo Fisher Scientific (lub odpowiednik) | BP399-500 (lub odpowiednik) | Bufor stosowany do przemywania komórek i etapów rozcieńczania |
| szalki Petriego (100 mm, bez)–(przetraktowane w celu hodowli tkankowej) | Corning (lub odpowiednik) | 430591 | Stosowane do różnicowania makrofagów poprzez selekcję przez adhezję |
| Bufor do lizy czerwonych krwinek (erytrocytów) | BioLegend (lub odpowiednik) | 420301 (lub odpowiednik) | Stosowane do usuwania erytrocytów podczas izolacji PBMC |
| Barwnik do utrwalania Viability 405/452 | Miltenyi Biotec (lub odpowiednik) | 130-130-404 (lub odpowiednik) | Stosowane do oceny żywotności komórek podczas analizy cytometrycznej |
| DAPI | Sigma-Aldrich (lub odpowiednik) | D9542 (lub odpowiednik) | Stosowane do wykluczania martwych komórek w cytometrii przepływowej |
Bibliografia
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Perou, C. M., et al. Molecular portraits of human breast tumours. Nature. 406 (6797), 747-752 (2000).
- Foulkes, W. D., Smith, I. E., Reis-Filho, J. S. Triple-negative breast cancer. N Engl J Med. 363 (20), 1938-1948 (2010).
- Dent, R., et al. Triple-negative breast cancer: Clinical features and patterns of recurrence. Clin Cancer Res. 13 (15 Pt 1), 4429-4434 (2007).
- Lin, N. U., et al. Sites of distant recurrence and clinical outcomes in patients with metastatic triple-negative breast cancer: High incidence of central nervous system metastases. Cancer. 113 (10), 2638-2645 (2008).
- Bianchini, G., De Angelis, C., Licata, L., Gianni, L. Treatment landscape of triple-negative breast cancer - expanded options, evolving needs. Nat Rev Clin Oncol. 19 (2), 91-113 (2022).
- Lecoultre, M., Dutoit, V., Walker, P. R. Phagocytic function of tumor-associated macrophages as a key determinant of tumor progression control: A review. J Immunother Cancer. 8 (2), (2020).
- Mantovani, A., Allavena, P., Marchesi, F., Garlanda, C. Macrophages as tools and targets in cancer therapy. Nat Rev Drug Discov. 21 (11), 799-820 (2022).
- Chan, S. H., Lin, C. Y., Tseng, H. J., Wang, L. H. Cd24a knockout results in an enhanced macrophage- and cd8⁺ t cell-mediated anti-tumor immune responses in tumor microenvironment in a murine triple-negative breast cancer model. J Biomed Sci. 32 (1), 73 (2025).
- Majeti, R., et al. CD47 is an adverse prognostic factor and therapeutic antibody target on human acute myeloid leukemia stem cells. Cell. 138 (2), 286-299 (2009).
- Barkal, A. A., et al. CD24 signalling through macrophage siglec-10 is a target for cancer immunotherapy. Nature. 572 (7769), 392-396 (2019).
- Wang, X., et al. CD24-siglec axis is an innate immune checkpoint against metaflammation and metabolic disorder. Cell Metab. 34 (8), 1088-1103.e6 (2022).
- Chan, S. H., et al. Identification of the novel role of CD24 as an oncogenesis regulator and therapeutic target for triple-negative breast cancer. Mol Cancer Ther. 18 (1), 147-161 (2019).
- Huang, S., Zhang, X., Wei, Y., Xiao, Y. Checkpoint CD24 function on tumor and immunotherapy. Front Immunol. 15, 1367959 (2024).
- Weiskopf, K., Weissman, I. L. Macrophages are critical effectors of antibody therapies for cancer. MAbs. 7 (2), 303-310 (2015).
- Cao, X., et al. Promoting antibody-dependent cellular phagocytosis for effective macrophage-based cancer immunotherapy. Sci Adv. 8 (11), eabl9171 (2022).
- Aderem, A., Underhill, D. M. Mechanisms of phagocytosis in macrophages. Annu Rev Immunol. 17, 593-623 (1999).
- Flannagan, R. S., Jaumouille, V., Grinstein, S. The cell biology of phagocytosis. Annu Rev Pathol. 7, 61-98 (2012).
- Denardo, D. G., Ruffell, B. Macrophages as regulators of tumour immunity and immunotherapy. Nat Rev Immunol. 19 (6), 369-382 (2019).
- Horsthemke, M., Wilden, J., Bachg, A. C., Hanley, P. J. Time-lapse 3d imaging of phagocytosis by mouse macrophages. J Vis Exp. (140), e57566 (2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
