Niniejszy protokół przedstawia zestandaryzowane podejście do nacinania wewnątrz komory w celu określenia momentu rozpoczęcia, czasu wystąpienia szczytu oraz kinetyki emisji lotnych związków indukowanych zranieniem, wraz z jednoczesnymi pomiarami wymiany gazowej.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Metoda cięcia wewnątrzkomorowego do kwantyfikacji w czasie rzeczywistym lotnych związków uwalnianych podczas ranienia liści oraz wymiany gazowej
96 wyświetleń
⸱
11 września 2026
W tym artykule
Podsumowanie
Streszczenie
Lotne związki organiczne (VOCs) uwalniane przez liście roślin odgrywają kluczową rolę w sygnalizacji stresu, oddziaływaniach roślina–atmosfera oraz w obronie roślin. Wśród nich lotne związki organiczne indukowane uszkodzeniami (wVOCs) są emitowane w ciągu kilku sekund od wystąpienia uszkodzeń mechanicznych, żerowania roślinożerców lub zaburzeń środowiskowych. Dynamika ich emisji silnie zależy od czasu, nasilenia i metody uszkodzenia tkanki. Niemniej jednak, dokładna kwantyfikacja pozostaje wyzwaniem ze względu na artefakty mechaniczne, zmienne warunki ekspozycji oraz opóźnienia między uszkodzeniem a pomiarem. Niniejsze badanie przedstawia zestandaryzowany protokół wycinania liści wewnątrz komory do monitorowania w czasie rzeczywistym wVOCs oraz wymiany gazowej. Nożyk chirurgiczny został zintegrowany z przenośną komorą wymiany gazowej, aby umożliwić czyste i kontrolowane cięcia w zamkniętej komorze w stabilnych warunkach oświetlenia, wilgotności, CO2 i temperatury. Spektrometr mas czasu przelotu z reakcją przeniesienia protonu (PTR-TOF-MS) stale mierzył emisje lotnych związków na wylocie z komory, minimalizując opóźnienia i zniekształcenia sygnału. Układ ten pozwala na określenie momentu rozpoczęcia emisji, czasu wystąpienia szczytu, maksymalnej szybkości wzrostu oraz całkowitej ilości uwalnianych związków z wysoką rozdzielczością czasową. Zastosowanie tej metody do Quercus rubra, Acer platanoides oraz Gossypium hirsutum wykazało zdolność do rozróżnienia odmiennych wzorców emisji indukowanej uszkodzeniami u różnych typów liści. Poprzez wyeliminowanie opóźnień związanych z konwencjonalnym próbkowaniem, metoda ta pozwala na odtworzenie pełnej trajektorii kinetycznej emisji indukowanych uszkodzeniami i przełamuje główne ograniczenia poprzednich podejść. Stanowi ona solidną podstawę do badania szybkich odpowiedzi stresowych w fizjologii roślin, biochemii ekologicznej i oddziaływaniach roślina–atmosfera.
Wprowadzenie
Rośliny reagują na uszkodzenia poprzez uwalnianie szybkiego sygnału chemicznego, jednak precyzyjne uchwycenie tego sygnału pozostaje wyzwaniem technicznym. W ciągu kilku sekund po żerowaniu roślinożerców, uszkodzeniach przez wiatr lub zakłóceniach mechanicznych, rośliny uwalniają przejściowy wyrzut lotnych związków organicznych (VOCs), które aktywują wewnętrzne mechanizmy obronne i przygotowują sąsiednie rośliny do reakcji1,2,3,4. Te indukowane uszkodzeniami lotne związki organiczne (wVOCs) obejmują lotne związki zielonych liści (GLVs), metanol, krótkołańcuchowe alkohole i aldehydy, terpenoidy oraz pochodne oksylipin. Powstają one albo w wyniku syntezy de novo w komórkach mezofila, albo w wyniku przerwania struktur magazynujących, takich jak kanały żywiczne i trichomy. Jako bezpośrednie sygnały stresowe, wVOCs koordynują obronę fizjologiczną, pośredniczą w komunikacji między roślinami oraz oddziałują na chemię atmosfery1,5,6,7.
Ponieważ naturalna herbiworia łączy uszkodzenia mechaniczne z elicytorami ślinowymi i mikrobiologicznymi, w badaniach eksperymentalnych stosuje się symulowane ranienie, aby wyizolować odpowiedzi wyłącznie na uraz fizyczny8. Jednakże przejściowy charakter wVOC sprawia, że ich wychwycenie jest z natury trudne. Konwencjonalne metody, takie jak statyczne pobieranie próbek z przestrzeni nad próbką w połączeniu z chromatografią gazową sprzężoną z spektrometrią mas (GC-MS), często pomijają początkowy wyrzut emisji i zniekształcają jej profil kinetyczny9,10. Opóźnienia w osiągnięciu równowagi, podwyższone temperatury inkubacji oraz wydłużone linie pobierania próbek zwiększają czas przebywania i zniekształcają rejestrowany sygnał, szczególnie w przypadku związków reaktywnych, takich jak seskwiterpeny9,1,12. Wspólnie artefakty te zmniejszają amplitudę sygnału i zacierają dynamikę czasową emisji lotnych związków indukowanych ranieniem, co utrudnia interpretację reakcji roślin na stres.
W wielu badaniach pomiar jest przerywany w celu zranienia liści poza komorą. Przerwa ta destabilizuje przepływ gazów, zmienia czas powstania rany i zmniejsza kontrolę nad precyzją nacięcia13,14,15. W rezultacie pierwsze minuty po uszkodzeniu są często tracone lub zniekształcone13, czyli dokładnie wtedy, gdy szybkość emisji osiąga szczyt i pojawiają się charakterystyczne wzorce kinetyczne3,6,16,17. W niektórych podejściach wycinanie liści przeniesiono do wnętrza komór o dużej objętości, wykorzystując ostrza teflonowe lub wycinaki mechaniczne12,18,19. Jednakże takie układy często prowadziły do niestabilności uszczelnienia, niespójnej długości cięć i nierównych nacięć z powodu przesuwania się przecinaka lub różnic w twardości liści. Duża objętość komory dodatkowo opóźniała wymianę powietrza i poszerzała sygnał lotnych związków16. Wspólnie te ograniczenia eksperymentalne uniemożliwiają dokładną charakterystykę dynamiki czasowej emisji indukowanych zranieniem w stabilnych warunkach fizjologicznych.
Aby pokonać te trudności, niniejsze badanie przedstawia protokół ranienia wewnątrzkomorowego w czasie rzeczywistym, który integruje przecinak klasy chirurgicznej z systemem wymiany gazowej sprzężonym ze spektrometrią mas czasu przelotu z reakcją transferu protonu (PTR-TOF-MS). Protokół ten umożliwia jednoczesne ranienie liścia i detekcję substancji lotnych w kontrolowanych warunkach środowiskowych, przy jednoczesnym pomiarze strumieni substancji lotnych i wymiany gazowej z wysoką rozdzielczością czasową. Dzięki przeprowadzaniu wycinania liścia wewnątrz komory pomiarowej, protokół minimalizuje opóźnienia w pobieraniu próbek związane z konwencjonalnymi metodami, zachowuje dynamikę czasową szybko emitowanych lotnych związków indukowanych ranieniem oraz ilustruje zestandaryzowaną procedurę cięcia liści o różnych właściwościach mechanicznych. Taka rozdzielczość czasowa umożliwia bezpośrednią charakterystykę początku, czasu wystąpienia szczytu oraz specyficznej dla gatunku kinetyki emisji lotnych związków indukowanych ranieniem.
Protokół oceniono z wykorzystaniem trzech gatunków o kontrastujących cechach anatomicznych i fizjologicznych (Quercus rubra, Acer platanoides oraz Gossypium hirsutum), aby wykazać jego przydatność dla różnych typów liści. Zastosowanie identycznych warunków pomiarowych dla wszystkich gatunków dowodzi, że protokół pozwala na rozróżnienie dynamiki VOC indukowanych przez zranienie w szerokim zakresie wzorców emisji, przy jednoczesnym zminimalizowaniu zmienności eksperymentalnej. Podejście to znajduje szerokie zastosowanie w badaniach wymagających pomiarów VOC indukowanych przez zranienie z wysoką rozdzielczością czasową w kontrolowanych warunkach środowiskowych. Wspólnie cechy te zapewniają zestandaryzowane ramy do badania szybkich reakcji roślin na stres i ułatwiają stosowanie protokołu w różnych gatunkach i systemach eksperymentalnych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie rośliny były hodowane w warunkach kontrolowanego środowiska w komorach wzrostowych. Odczynniki i sprzęt wykorzystane w badaniu wymieniono w Tabeli materiałów.
1. Konstrukcja i instalacja przecinaka do liści wewnątrz komory
- Wykonaj obrotową wycinarkę do liści, dostosowaną do wymiarów wewnętrznych (4 cm × 2 cm) standardowej głowicy pomiarowej.
- Przymocuj żyletkę do pręta ze stali nierdzewnej (średnica 1 mm), używając lutu srebrowego w celu zapewnienia stabilności mechanicznej.
OSTROŻNIE: Żyletki są niezwykle ostre. Podczas pracy należy używać rękawic odpornych na przecięcia. Po użyciu żyletki należy zutylizować zgodnie z instytucjonalnymi procedurami bezpieczeństwa w laboratorium dotyczącymi ostrych przedmiotów. Lutowanie srebrowe należy przeprowadzać pod odpowiednią wentylacją i w okularach ochronnych. - Wsuń pręt utrzymujący ostrze do igły strzykawki ze stali nierdzewnej (średnica zewnętrzna 1,6 mm), aby umożliwić swobodną rotację osiową.
- Uszczelnij oba końce igły za pomocą stopera z politetrafluoroetylenu (PTFE) o niskiej emisji, aby utrzymać szczelność powietrzną przy jednoczesnym zachowaniu możliwości obrotu.
- Zamontuj pokrętło ręczne na proksymalnym końcu pręta, aby umożliwić kontrolowany obrót wewnętrznej wycinarki.
- Przymocuj dwa elastyczne wsporniki wykonane z blachy mosiężnej sprężynowej (grubość 0,2 mm) do zewnętrznej powierzchni igły, aby przymocować wycinarkę do dolnej części komory.
- Wykonaj trójkątne nacięcie w uszczelce dolnej komory, aby umożliwić wprowadzenie ostrza bez kontaktu z powierzchnią liścia.
- Uszczelnij miejsce wprowadzenia za pomocą niskoemisyjnej masy uszczelniającej, aby zapobiec wyciekowi gazu.
UWAGA: Przed kontynuacją sprawdź, czy montaż wycinarki nie naruszył szczelności komory. Potwierdź, że komora zamyka się całkowicie, termopara pozostaje w kontakcie z powierzchnią liścia, a system wymiany gazów wskazuje stabilny przepływ powietrza bez oznak nieszczelności. Kontynuuj pracę dopiero po potwierdzeniu stabilnych warunków w komorze. Dobierz długość ostrza tak, aby uzyskać nacięcie o długości około 10 mm. Zintegrowany mechanizm tnący oraz jego położenie w komorze liściowej przedstawiono na Rysunku 1B.
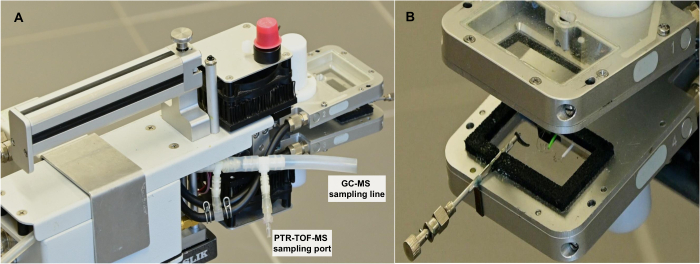
Rysunek 1Zmodyfikowany system wymiany gazowej zintegrowanym przecinaczem liści wewnątrz komory oraz liniami do pobierania próbek substancji lotnych. (A) Przegląd zmodyfikowanego układu wymiany gazowej, przedstawiający port pobierania próbek PTR-TOF-MS oraz linię pobierania próbek GC-MS umieszczoną w pobliżu wylotu komory w celu zbierania substancji lotnych. (B) Zbliżenie otwartej komory przedstawiające zintegrowany mechanizm cięcia oraz obszar, w którym liść jest umieszczony podczas ranienia. Nożyk jest hermetycznie wbudowany w komorę, co umożliwia ranienie liścia bez otwierania obudowy podczas pomiaru. Taka konfiguracja pozwala na monitorowanie w czasie rzeczywistym emisji substancji lotnych oraz wymiany gazowej w kontrolowanych warunkach środowiskowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ilustracji.
2. Konfiguracja ścieżek pobierania próbek lotnych
- Zainstaluj teflonowy trójnik (średnica wewnętrzna 1/16″ lub 1/8″) przy wylocie komory (Rycina 1A), aby zminimalizować długość rurki między komorą a analizatorem substancji lotnych.
- Podłącz wylot do systemu zbierania LZO za pomocą obojętnych rurek (np. FEP lub PTFE; średnica wewnętrzna 1,6 mm). Zainstaluj trójnik bezpośrednio przy wylocie komory, aby rurka między komorą a analizatorem substancji lotnych była tak krótka, jak to tylko możliwe, co zminimalizuje objętość wewnętrzną, czas przebywania oraz straty wynikające z adsorpcji.
- Utrzymuj przepływ powietrza w komorze na poziomie 750 µmol s-1.
UWAGA: Krótkie rurki obojętne ograniczają adsorpcję i czas przebywania związków reaktywnych.
3. Przygotowanie materiału roślinnego
- Uprawiać Quercus rubra, Acer platanoides oraz Gossypium hirsutum w komorze z kontrolowanymi warunkami środowiskowymi w temperaturze 25 °C w dzień / 20 °C w nocy, przy wilgotności względnej 60%, natężeniu światła 100 µmol m-2 s-1 oraz fotoperiodzie 16 h/ 8 h przez okres 4 miesięcy.
- Utrzymywać rośliny w atmosferycznym stężeniu CO2 (~430 ppm) przez cały czas trwania eksperymentu.
- Podlewać wszystkie rośliny co dwa dni, aż gleba osiągnie pojemność polową.
- Do eksperymentów wybrać w pełni rozwinięte, niesenescencyjne liście o porównywalnym stadium rozwojowym.
4. Eksperymenty z ranieniem liści i pobieraniem LZO
- Zamknij liść i ustaw warunki środowiskowe
- Umieść w pełni rozwinięty przyczepiony liść w kuwecie wyposażonej w wewnętrzny przecinacz.
- Ustaw temperaturę bloku na 25 °C, względną wilgotność powietrza do 60%, natężenie światła aktynicznego do 1000 µmol m-2 s-1 (90% czerwony, 10% niebieski) oraz przepływ powietrza do 750 µmol s-1.
- Pozostawić liść do aklimatyzacji w wybranych warunkach środowiskowych do momentu uzyskania wartości stanu ustalonego dla netto CO2 poziomy asymilacji, przewodności szparkowej oraz bazowe sygnały LZO zostają osiągnięte, zazwyczaj w ciągu 20–30 min po zamknięciu liścia.
- Przeprowadzenie monitorowania wymiany gazowej, fluorescencji i LZO
- Rozpocznij jednoczesne pomiary wymiany gazowej i LZO z rozdzielczością 1 Hz.
- Po zakończeniu pomiarów wymiany gazowej należy zapisać wydajność fluorescencji w stanie stacjonarnym (Fs) a następnie zastosować impuls nasycający (8000 µmol m-2 s-1, 0,6 s) poprzez fluorymetr komorowy (305-FL) do wyznaczania maksymalnej wydajności fluorescencji (Fm(′) w liściach zaadaptowanych do światła.
- Wyłącz światło aktyniczne i poddaj liść adaptacji do ciemności przez 20 min.
- Zarejestruj ciemne oddychanie liścia.
- Zmierz początkową fluorescencję (F₀) przy użyciu słabego modulowanego światła pomiarowego (0.03 µmol m-2 s-1), a następnie impuls nasycający w celu uzyskania maksymalnej fluorescencji w liściach zaadaptowanych do ciemności (Fm).
- Ponownie włącz światło aktyniczne.
- Kontynuuj pomiary LZO oraz wymiany gazowej w tych samych warunkach środowiskowych, aż do momentu stabilizacji wartości bazowych sprzed zranienia.
UWAGA: Przed zadaniem zranienia należy potwierdzić, że wybrane warunki środowiskowe pozostają stabilne, a netto asymilacja CO₂, transpiracja oraz sygnały bazowe LZO osiągnęły wartości stanu ustalonego. Należy kontynuować procedurę dopiero po utrzymaniu tych warunków przy wybranych ustawieniach pomiarowych.
- Ranienie liści i pobieranie LZO
- Wprowadź pierwszy wkład na LZO do linii wylotowej i podłącz go do przenośnej pompy do poboru próbek powietrza o stałym przepływie. Przepuść powietrze z komory przez wkład ze stałą prędkością przepływu 20 mL min⁻¹.-1Należy użyć wielowarstwowego adsorbera ze stali nierdzewnej (długość 10,5 cm, średnica wewnętrzna 3 mm) odpowiedniego do wychwytywania związków lotnych C3–C17, wypełnionego materiałami: Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) oraz Carbotrap X 20/40 mesh (0,1 g), rozmieszczonymi w kierunku pobierania próbki od najsłabszej do najsilniejszej zdolności adsorpcyjnej.
UWAGA: Przed pobraniem próbki należy przygotować wkłady, przepuszczając przez nie hel o wysokiej czystości z przepływem 20 mL min-1-1 przez 3 h w temperaturze 250 °CPróbkowanie na wkładach umożliwia późniejszą analizę GC-MS w trybie offline w celu identyfikacji związków, gdy wymagają tego cele eksperymentalne. Choć pobieranie próbek na wkłady stanowi część opisanego tutaj schematu postępowania, reprezentatywne wyniki przedstawione w niniejszym badaniu pochodzą z ciągłych pomiarów PTR-TOF-MS. Dobór adsorbentu należy dopasować do zakresu lotności i polarności docelowych LZO, a także do warunków próbkowania. - Zbierać LZO przed zranieniem przez 15 min przy przepływie 200 ml/min-1.
- Wymień wkład i zbieraj LZO przez 2 min.
- Obrócić wewnętrzny nożyk 360° aby wyciąć liść bez otwierania komory i przywrócić ostrze do pozycji początkowej.
UWAGA: Należy umieścić liść w komorze w taki sposób, aby nacięcie zostało wykonane w zamkniętej części blaszki liściowej, przy jednoczesnym zachowaniu pełnej szczelności komory. Jeśli pozwalają na to rozmiar i morfologia liścia, należy unikać przecinania żyłki głównej oraz dbać o jak najdokładniejszą powtarzalność miejsca nacięcia we wszystkich próbkach. Ponieważ uszkodzenie głównych żyłek może znacząco zwiększyć emisję lotnych związków indukowanych zranieniem, spójne rozmieszczenie ran poprawia odtwarzalność eksperymentu.5.
UWAGA: Przed rozpoczęciem cięcia należy upewnić się, że komora jest całkowicie szczelna. - Kontynuuj pobieranie LZO przy użyciu tego samego wkładu przez 13 min.
- Włóż trzeci wkład i zbieraj LZO przez 15 min.
- Uruchomić spektrometr PTR-TOF-MS w trybie ciągłym przez cały czas trwania pomiarów w celu detekcji w czasie rzeczywistym.
UWAGA: Przed i po każdym pomiarze rośliny należy pobrać próbkę tła z pustej komory w tych samych warunkach środowiskowych. Pomiary tła te należy wykorzystać do korekty linii bazowej danych dotyczących emisji LZO podczas analizy danych.
- Wprowadź pierwszy wkład na LZO do linii wylotowej i podłącz go do przenośnej pompy do poboru próbek powietrza o stałym przepływie. Przepuść powietrze z komory przez wkład ze stałą prędkością przepływu 20 mL min⁻¹.-1Należy użyć wielowarstwowego adsorbera ze stali nierdzewnej (długość 10,5 cm, średnica wewnętrzna 3 mm) odpowiedniego do wychwytywania związków lotnych C3–C17, wypełnionego materiałami: Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) oraz Carbotrap X 20/40 mesh (0,1 g), rozmieszczonymi w kierunku pobierania próbki od najsłabszej do najsilniejszej zdolności adsorpcyjnej.
5. Detekcja związków lotnych i obsługa instrumentu
- Ustaw temperaturę wlotu i rury dryfu PTR-TOF-MS na 80 °C, przepływ wlotowy na 10 mL min-1, przepływ pary wodnej na 4,0 mL min-1, prąd jonowy na 4,0 mA, ciśnienie w komorze dryfu na 2,1 mbar, stosunek gęstości pola rury dryfu na 15 Td oraz ciśnienie modułu TOF-MS na 1,2 × 10⁻⁷ mbar.
- Rejestruj sygnały lotnych związków z rozdzielczością czasową 1 Hz i odstępem próbkowania 40 ps.
- Przed każdym eksperymentem skalibruj PTR-TOF-MS, używając certyfikowanej mieszaniny gazów wzorcowych zawierającej reprezentatywne LZO z głównych klas lotnych związków roślinnych. Przetwórz dane kalibracyjne i oblicz stężenia LZO za pomocą oprogramowania PTR-MS Viewer zgodnie z opisanymi procedurami13,16.
6. Analiza próbek z wkładów metodą offline GC-MS
UWAGA: Poniższa procedura opisuje analizę offline próbek z kartridży pobranych podczas powyższego procesu. Analiza GC-MS zapewnia uzupełniającą identyfikację związków, podczas gdy reprezentatywne wyniki przedstawione w niniejszym badaniu opierają się na ciągłych pomiarach PTR-TOF-MS.
- Przeprowadzić desorpcję termiczną z wkładów przy użyciu zautomatyzowanej jednostki desorpcji termicznej sprzężonej z systemem GC-MS, zgodnie z procedurą opisaną przez Kännaste i wsp.20.
- Zidentyfikować związki poprzez porównanie z autentycznymi standardami oraz biblioteką widm masowych NIST. Wykonać detekcję spektrometryczną z wykorzystaniem jonizacji uderzeniem elektronów (70 eV) i potwierdzić tożsamość związków poprzez dopasowanie zarówno czasów retencji, jak i widm masowych do autentycznych standardów, jeżeli są one dostępne.
UWAGA: Pobieranie próbek do wkładów odbywa się zgodnie z zmodyfikowanym protokołem Kännaste i wsp.20 w celu wychwytywania substancji lotnych C3–C17.
7. Analiza danych
- Przed analizą odjąć tło z pustej komory od wszystkich śladów emisji. Linię bazową przed zranieniem dla każdej monitorowanej masy zdefiniować jako średni sygnał w stałym odstępie czasu bezpośrednio przed cięciem.
- Czas cięcia przyjąć jako wspólny punkt odniesienia dla wszystkich monitorowanych mas. Początek emisji określić jako pierwszy wykrywalny wzrost sygnału LZO skorygowanego o linię bazową po przecięciu liścia.
UWAGA: Początek emisji zdefiniowano jako pierwszy następujący po sobie wzrost powyżej linii bazowej przed zranieniem, który trwał w fazie wzrostowej wyrzutu emisji, co pozwoliło wykluczyć odosobnione fluktuacje przypisywane szumowi instrumentalnemu. - Czas do osiągnięcia szczytu obliczyć jako odstęp między czasem cięcia a maksymalnym sygnałem emisji. Maksymalne nachylenie wyrzutu emisji obliczyć z pierwszej pochodnej sygnału skorygowanego o linię bazową, stosując średnią z nachyleń przednich i tylnych między sąsiednimi punktami danych13. Amplitudę szczytu zdefiniować jako maksymalną obserwowaną wartość emisji podczas wyrzutu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Aby ocenić, czy pozycja pobierania substancji lotnych wpływa na detekcję sygnału, porównaliśmy dwie konfiguracje, wykorzystując kontrolowane wstrzyknięcia gazu do komory liściowej. W jednej konfiguracji substancje lotne były pobierane bezpośrednio z wylotu zmodyfikowanej komory wymiany gazowej (Rycina 1). W drugiej natomiast powietrze przechodziło przez przewody analizatora wymiany gazowej przed dotarciem do detektora. Jednoczesne rejestrowanie obu sygnałów umożliwiło bezpośrednie porównanie...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiony tutaj protokół umożliwia analizę emisji substancji lotnych indukowanych zranieniem z wysoką rozdzielczością czasową w kontrolowanych warunkach eksperymentalnych. Dzięki zintegrowaniu procesu nacinania bezpośrednio w komorze liściowej i ciągłemu monitorowaniu sygnałów lotnych (Rycina 1), system rejestruje odpowiedź emisyjną bez zniekształceń wprowadzanych przez opóźnione próbkowanie, otwieranie komory lub manipulację liściem poza układem pomiarowym. Zakłócenia te mogą zmieniać z...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak konfliktów interesów.
Podziękowania
Potwierdzamy otrzymanie finansowania z Estońskiej Rady Badawczej (PRG2207) oraz Ministerstwa Edukacji i Badań Estonii (Centrum Doskonałości Agro-CropFuture, „Agroekologia i nowe uprawy w przyszłym klimacie”, TK20U1).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| System GC-MS z desorberem termicznym TD-20 | Shimadzu | GCMS-QP2010 Plus; TD-20 | System GC-MS z desorberem termicznym TD-20. www.shimadzu.com |
| System wymiany gazowej GFS-300 | Walz GmbH | GFS-30 | Pomiary wymiany gazowej liści. www.walz.com |
| Hel wysokiej czystości (9.9%) | Lokalny dostawca | N/A | Używany do kondycjonowania wkładów adsorbentów i desorpcji termicznej w GC-MS. www.airliquide.com (lub równoważny dostawca). |
| Wzorzec kalibracyjny izoprenu | Sigma-Aldrich Chemie GmbH | Custom | Wzorzec kalibracyjny izoprenu przygotowany na zamówienie (3.43 ppm). www.sigmaaldrich.com |
| Szpachla uszczelniająca o niskiej emisji | Lokalny dostawca | N/A | Służy do uszczelnienia punktu wprowadzenia wycinaka do komory. |
| Wielowarstwowy wkład adsorbentny ze stali nierdzewnej | Supelco | Custom | Długość 10.5 cm × 3 mm i.d.; wypełniony materiałami Carbotrap C (0.2 g, 20–40 mesh), Carbopack B (0.1 g, 40–60 mesh) oraz Carbotrap X (0.1 g, 20–40 mesh). Stosowany do opcjonalnej offline'owej identyfikacji LZO metodą GC-MS. www.sigmaaldrich.com |
| Przenośna pompa do pobierania próbek powietrza o stałym przepływie | SKC Inc. | 210-103MTX | Przenośna pompa do pobierania próbek powietrza o stałym przepływie. |
| Spektrometr mas PTR-TOF 80 | Ionicon Analytik GmbH | PTR-TOF 80 | Detekcja LZO. www.ionicon.com |
| Srebrny drut lutowniczy | Lokalny dostawca | N/A | Używany do przymocowania żyletki do pręta ze stali nierdzewnej. |
| Sprężysta blacha mosiężna (grubość 0.2 mm) | Lokalny dostawca | N/A | Elastyczne podpory służące do mocowania wycinaka. |
| Pręt ze stali nierdzewnej (średnica 1 mm) | Lokalny dostawca | N/A | Pręt wsporczy wycinaka. |
| Igła strzykawki ze stali nierdzewnej (średnica zewnętrzna 1.6 mm) | Lokalny dostawca | N/A | Obudowa dla obrotowego ostrza wycinaka. |
| Zatworki teflonowe | Lokalny dostawca | N/A | Służą do uszczelnienia obudowy wycinaka przy jednoczesnym umożliwieniu obrotu. |
| Złącze teflonowe w kształcie litery T | Lokalny dostawca | N/A | Zainstalowane w pobliżu wylotu komory w celu skrócenia długości przewodów. |
| Przewody teflonowe (FEP lub PTFE) | Lokalny dostawca | N/A | Linia poboru próbek LZO pomiędzy komorą a detektorami. |
| Mieszanina gazów kalibracyjnych LZO | Ionimed GmbH | Custom | 1 ppm każdego związku w N2; stosowana do kalibracji PTR-TOF-MS. www.ionimed.com |
Bibliografia
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny