Niniejszy artykuł przedstawia zoptymalizowany protokół transfekcji odwrotnej w celu wydajnego dostarczenia mRNA ludzkiej odwrotnej transkryptazy telomerazy (hTERT mRNA) z modyfikowanymi nukleozydami do starzejących się ludzkich fibroblastów. Wstępne pokrycie powierzchni hodowlanych kompleksami hTERT mRNA-lipid zwiększa pobór, umożliwiając aktywację telomerazy, wydłużenie telomerów i częściowe odmłodzenie. Hodowle ostatecznie ponownie wchodzą w stan starzenia lub kryzysu bez uniezależnienia się od sygnałów proliferacyjnych (immortalizacji).
Artykuł metodologiczny
Zoptymalizowany protokół odwrotnej transfekcji w celu dostarczenia mRNA telomerazy do wczesno-senescencyjnych fibroblastów ludzkich
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Starzenie się komórek wiąże się z głębokimi zmianami w fizjologii komórkowej, w tym ze zmniejszoną płynnością błon, zaburzeniami transportu endosomalnego, obniżoną zdolnością endocytarną oraz zwiększoną aktywnością zewnątrzkomórkowej RNazy, co w połączeniu utrudnia efektywne dostarczanie mRNA. Bariery te ograniczały zastosowanie metod opartych na RNA w komórkach starzejących się, szczególnie w przypadku dostarczania dużych transkryptów terapeutycznych. Niniejszy protokół opisuje zoptymalizowaną metodę odwrotnej transfekcji w celu wydajnego wprowadzania zmodyfikowanego mRNA (mRNA) do starzejących się ludzkich fibroblastów. Choć jako transkrypt modelowy wykorzystano mRNA ludzkiej odwrotnej transkryptazy telomerazy (hTERT), opisany schemat postępowania ma szerokie zastosowanie w przypadku innych mRNA. W przeciwieństwie do konwencjonalnych metod transfekcji, w których kompleksy RNA-lipid dodaje się do pożywki po przytwierdzeniu komórek, odwrotna transfekcja polega na naniesieniu kompleksów na powierzchnię hodowlaną przed wysianiem komórek, co umożliwia bezpośrednią interakcję między przytwierdzającymi się komórkami a kompleksami transfekcyjnymi. Aby zmaksymalizować wydajność transfekcji, protokół obejmuje zastosowanie mRNA z modyfikacjami nukleozydowymi zawierającymi pseudourydynę i 5-metylocytydynę, wydłużone ogony poli(A), zoptymalizowany czas tworzenia kompleksów, inhibicję RNazy, przejściowe podniesienie pH endosomów za pomocą chlorochiny, zwiększoną gęstość wysiewu komórek oraz wydłużone okresy inkubacji. Stosując to podejście, osiągnięto wydajność transfekcji na poziomie około 50%–80% w starzejących się fibroblastach po dostarczeniu transkryptu mRNA hTERT o długości 5 kb. Szczyt aktywności telomerazy odnotowano 24–48 h po transfekcji. Pojedynczy cykl transfekcji spowodował mierzalne wydłużenie telomerów, natomiast trzy sekwencyjne transfekcje doprowadziły do znacznego, lecz ograniczonego wydłużenia telomerów. Częściowe odwrócenie fenotypów związanych ze starzeniem było zauważalne w ciągu 72–96 h, w tym zmniejszona aktywność β-galaktozydazy związanej ze starzeniem, obniżona ekspresja p16 i p21, przywrócenie morfologii komórek oraz wydłużenie czasu życia replikacyjnego. Dostarczone mRNA hTERT uległo degradacji w ciągu 72–96 h, a nie zaobserwowano unieśmiertelnienia. Niniejszy protokół stanowi praktyczne podejście do przejściowego dostarczania mRNA do komórek starzejących się i może być dostosowany do szerokiej gamy typów komórek i gatunków.
Wprowadzenie
Metoda transfekcji odwrotnej stanowi kluczową adaptację metodologiczną dla komórek starzejących się, która pozwala pokonać fundamentalne bariery, jakie komórki te stawiają standardowym metodom transfekcji. W przeciwieństwie do transfekcji bezpośredniej, w której komórki są najpierw wysiewane i poddawane adhezji przed dodaniem kompleksów transfekcyjnych, transfekcja odwrotna polega na dodaniu komórek w zawiesinie bezpośrednio na uprzednio sformowane kompleksy mRNA hTERT-lipidy. Technika ta drastycznie zwiększa wydajność transfekcji w komórkach starzejących się poprzez maksymalizację ekspozycji na kompleksy transfekcyjne podczas krytycznej fazy przywierania, kiedy przebudowa błony jest najintensywniejsza.
Kluczowa zmiana koncepcyjna w niniejszym protokole polega na potraktowaniu komórek senescencyjnych jako odrębnego problemu w kontekście dostarczania substancji, a nie jedynie jako trudniej transfekowalnych wersji komórek młodych. W procesie senescencji globalne zmiany w składzie lipidów błonowych, obejmujące fosfolipidy, sfingolipidy i cholesterol, zmieniają płynność błony, jej krzywiznę oraz oddziaływania białko-lipid, przyczyniając się jednocześnie do powstania fenotypu wydzielniczego związanego z senescencją1,2,3. Komórki senescencyjne wykazują również zmniejszoną endocytozę receptorową zależną od klatryny i kaweol oraz zmieniony szlak endocytyczny, co jest częściowo spowodowane obniżeniem poziomu amfifizyny-1 i kompensacyjnymi zmianami w ekspresji kaweolin, które osłabiają pobieranie zapośredniczone przez receptory i sygnalizację4,5,6. Równocześnie dochodzi do dysregulacji osi późny endosom-lizosom regulowanej przez Rab7 oraz szerszej sieci endosomalno-autofagiczno-lizosomalnej (EAL), przy czym Rab7 pełni rolę głównego regulatora dojrzewania endolizosomów i fuzji autofagosomów z lizosomami, które ulegają zaburzeniom w procesach starzenia i neurodegeneracji7.
Komórki senescentne powszechnie zwiększają ekspresję wielu komponentów systemu przetwarzania i adaptacji lizosomalnej (LYPAS), w tym napędzaną przez TFEB/TFE3 biogenezę lizosomów oraz autofagię pośredniczoną przez białka opiekuńcze, co prowadzi do zwiększenia masy lizosomalnej. Jednakże pojedyncze lizosomy często wykazują podwyższone pH wewnątrzświetlne, uszkodzenia błon oraz zmienną zdolność proteolityczną, co przyczynia się do dysfunkcji lizosomów pomimo ich zwiększonej liczebności8,9,10,11. Wspólnie zmiany te mogą bardziej efektywnie kierować zinternalizowany materiał do degradacyjnych przedziałów endolizosomalnych, zwiększając prawdopodobieństwo, że dostarczone RNA lub białko zostanie zdegradowane przed produktywnym uwolnieniem do cytozolu9,10,11. Transfekcja odwrotna bezpośrednio celuje w najwcześniejszy etap przebudowy błon podczas adhezji, wymuszając trwały, wysokowartościowy kontakt między komórkami a kompleksami mRNA-lipid i przynajmniej częściowo omijając upośledzoną endocytozę w stanie stacjonarnym w w pełni adherentnych komórkach senescentnych4,5,6,12.
W kwestii projektowania RNA protokół zakłada, że w kontekście starzenia się organizmu prosta baza składająca się z czapeczki i ogona jest niewystarczająca: pełna modyfikacja nukleozydowa (na przykład pseudourydyna lub N1‑metylopseudourydyna oraz 5‑metylocytydyna) jest traktowana jako niezbędna, aby oddzielić translację od wykrywania przez endosomalne receptory Toll-podobne i indukcji interferonu typu I. Prace fundamentalne wykazały, że włączenie zmodyfikowanych nukleozydów do RNA hamuje aktywację TLR3, TLR7 oraz TLR8 i znacząco redukuje produkcję cytokin przez komórki dendrytyczne, co stanowi podstawę mechanistyczną dla obniżonej wrodzonej immunogenności obecnych platform mRNA z modyfikowanymi nukleozydami13. Nowsze przeglądy dotyczące szczepionek mRNA–LNP oraz leków opartych na mRNA podkreślają skoordynowaną inżynierię czapeczki 5′, regionów UTR, sekwencji kodującej i ogona poly(A) w celu zwiększenia stabilności i translacji in vivo przy jednoczesnym minimalizowaniu aktywacji wrodzonej odpowiedzi immunologicznej14. W szczególności długość i architektura ogona poly(A) okazały się kluczowymi czynnikami determinującymi stabilność mRNA transkrybowanego in vitro oraz wydajność translacji, co skłania do stosowania wydłużonych lub zmodyfikowanych konstrukcji poly(A) w terapeutycznym mRNA15.
Dodatkowo protokół ten w sposób jawny zapewnia ochronę przed zewnątrzkomórkowymi i endosomalnymi RNazami podczas tworzenia kompleksów i ich pobierania, wraz z określonym oknem ucieczki endosomalnej przy użyciu przejściowego czynnika lysosomotropowego, takiego jak chlorochina16,17. Chlorochina od dawna jest stosowana jako funkcjonalna sonda barier endosomalnych i może znacząco zwiększyć stopień oddziaływania z celem oraz wyciszanie przez siRNA lub oligonukleotydy antysensowne poprzez promowanie rozpadu błony endosomalnej i ucieczki kwasów nukleinowych do cytozolu18. Jednocześnie obrazowanie żywych komórek oraz obrazowanie superrozdzielcze mRNA dostarczanego przez LNP wykazały, że efektywne dostarczenie jest silnie ograniczone przez rzadkie zdarzenia ucieczki z endosomów wczesnych/recyklingujących, a nie przez samo początkowe pobieranie, co podkreśla znaczenie celowego zaprojektowania etapu ucieczki endosomalnej w terapiach opartych na mRNA19.
Wspólnie te związane ze starzeniem się zmiany w dynamice błon, transporcie endocytycznym, przetwarzaniu lizosomalnym oraz aktywacji odporności wrodzonej tworzą znaczne bariery dla efektywnego dostarczania mRNA. Opisana tutaj strategia transfekcji odwróconej została opracowana w celu przezwyciężenia tych ograniczeń poprzez połączenie zoptymalizowanej inżynierii mRNA, ochrony przed RNazami, zwiększonego ucieczki z endosomów oraz bezpośredniej ekspozycji przywierających komórek na preformowane kompleksy mRNA-lipid. Chociaż jako modelowy ładunek wykorzystano mRNA hTERT, opisany schemat postępowania ma szerokie zastosowanie w dostarczaniu innych dużych terapeutycznych transkryptów mRNA do starzejących się i trudnych do transfekcji populacji komórek20,21,22.
Protokół
1. Transkrypcja in vitro mRNA hTERT
- In vitro transkrypcja (IVT) z użyciem ARCA i ΨUTP
- Przygotować 20 µL reakcji IVT zgodnie z Tabelą 1. W przypadku potrzeby uzyskania większej wydajności należy skalować reakcję liniowo.
- Połączyć wszystkie składniki reakcji, z wyjątkiem polimerazy RNA T7, w probówce wolnej od RNaz. Na końcu dodać polimerazę RNA T7, delikatnie wymieszać i krótko odwirować probówkę.
- Inkubować reakcję w temperaturze 37 °C przez 0,5–4 h.
UWAGA: Czas inkubacji należy dostosować do długości matrycy. Reakcje zawierające krótsze matryce (około 500 bp) inkubować przez około 30 min, a reakcje zawierające dłuższe matryce (około 4 kb) przez 3–4 h.
- Obróbka DNazą
- Dodać 1 µL wolnej od RNaz DNazy I bezpośrednio do mieszaniny reakcyjnej IVT.
- Inkubować reakcję w temperaturze 37 °C przez 15 min.
UWAGA: Obróbkę DNazą należy przeprowadzić bezpośrednio w mieszaninie reakcyjnej IVT, bez uprzedniego oczyszczania syntetyzowanego mRNA.
- Oczyszczanie mRNA
- Dodać 115 µL wolnej od nukleaz H₂O w celu rozcieńczenia mieszaniny reakcyjnej.
- Oczyścić mRNA za pomocą zestawu do oczyszczania RNA zgodnie z instrukcjami producenta.
- Eluować oczyszczone mRNA w 20–30 µL wolnej od nukleaz H₂O.
- Zmierzyć czystość mRNA za pomocą spektrofotometrii i zweryfikować integralność RNA poprzez elektroforezę na 1,0–1,5% denaturującym żelu agarozowym lub niskoprocentowym żelu poliakryloamidowym.
- Dodawanie ogona poli(A)
- Przygotować 50 µL reakcji dodawania ogona poli(A) zgodnie z Tabelą 2. Delikatnie wymieszać składniki reakcji i inkubować w temperaturze 37 °C przez 30–60 min.
UWAGA: Czas inkubacji należy dostosować do ilości wprowadzonego RNA. - Zatrzymać reakcję poprzez dodanie 2 µL 0,5 M EDTA (pH 8,0).
- Przygotować 50 µL reakcji dodawania ogona poli(A) zgodnie z Tabelą 2. Delikatnie wymieszać składniki reakcji i inkubować w temperaturze 37 °C przez 30–60 min.
- Ostateczne oczyszczanie i kontrola jakości
- Oczyścić mRNA z ogonem poli(A) za pomocą zestawu do oczyszczania RNA zgodnie z instrukcjami producenta.
- Eluować oczyszczone mRNA w 20–30 µL wolnej od nukleaz H₂O.
- Ocenić jakość mRNA przed przystąpieniem do transfekcji
- Zmierzyć stężenie mRNA przy 260 nm i określić czystość za pomocą stosunków A260/A280 oraz A260/A230. Należy używać preparatów mRNA o wartościach A260/A280 około 2,0 i wartościach A260/A230 większych niż 2,0.
- Ocenić integralność mRNA za pomocą elektroforezy żelowej lub systemu analizy RNA zgodnie z instrukcjami producenta.
- Potwierdzić długość ogona poli(A) za pomocą RT-PCR lub analizy Bioanalyzer. Zweryfikować, czy długość ogona poli(A) mieści się w przedziale od 120 do 200 nukleotydów.
- Rozdzielić oczyszczone mRNA na alikwoty i przechowywać je w temperaturze −80 °C, aby zminimalizować liczbę cykli zamrażania i rozmrażania.
2. Transfekcja odwrócona
- Dzień −1: Przygotowanie przed transfekcją
- Weryfikacja fenotypu starzenia
- Wykonanie barwienia na β-galaktozydazę związaną ze starzeniem (SA-β-gal) na reprezentatywnej próbce komórek. Należy zweryfikować, czy ponad 70% komórek jest pozytywnych.
- Potwierdzenie ekspresji markerów starzenia (p16 i p21) za pomocą qRT-PCR lub immunofluorescencji.
- Określenie żywotności komórek i weryfikacja, czy żywotność przekracza 90%.
- Przygotowanie odczynników
- Podgrzanie pełnej pożywki hodowlanej do 37 °C.
- Podgrzanie soli fizjologicznej z buforem fosforanowym (PBS) do 37 °C.
- Przygotowanie świeżej pożywki Opti-MEM I.
UWAGA: Przed użyciem nie dodawać inhibitora RNazy do Opti-MEM I.
- Weryfikacja fenotypu starzenia
- Dzień 0: Dzień transfekcji
UWAGA: Należy zachować odstęp około 3 h od przygotowania odczynników do inkubacji transfekowanych komórek.- Przygotowanie mRNA hTERT
- Rozmrożenie mRNA hTERT na lodzie. Pomiar stężenia mRNA i użycie preparatów o stężeniu od 0,5 do 1,0 µg/µL.
- Rozcieńczenie odpowiedniej ilości mRNA hTERT w Opti-MEM I zgodnie z zastosowanym formatem hodowli (Tabela 3). Dodanie inhibitora RNazy do stężenia końcowego 0,5–1,0 U/µL i delikatne wymieszanie.
- Przechowywanie rozcieńczonego mRNA na lodzie do czasu tworzenia kompleksów.
UWAGA: Inhibitor RNazy należy dodać bezpośrednio przed użyciem. Nie przechowywać mRNA z inhibitorem RNazy, ponieważ jego aktywność spada po zamrożeniu.
- Przygotowanie odczynnika do transfekcji
- Połączenie 6,0 µL odczynnika do transfekcji z 100 µL Opti-MEM I w sterylnej probówce wolnej od RNaz. Delikatne wymieszanie poprzez pipetowanie.
- Inkubacja mieszaniny w temperaturze pokojowej przez 5 min.
UWAGA: W przypadku dużych konstruktów mRNA hTERT (~5 kb) należy zoptymalizować stosunek odczynnika do mRNA w zakresie od 0,4 do 0,6 µL odczynnika na 100 ng mRNA.
- Tworzenie kompleksów mRNA-lipid
- Dodanie rozcieńczonego roztworu mRNA hTERT (100 µL) do rozcieńczonego roztworu odczynnika do transfekcji (106 µL). Delikatne wymieszanie poprzez 5–6 krotne pipetowanie.
- Inkubacja mieszaniny w temperaturze pokojowej przez 15–20 min.
- Czas tworzenia kompleksów nie może przekroczyć 30 min.
- Weryfikacja pomyślnego utworzenia kompleksów poprzez pojawienie się lekko mętnego roztworu.
UWAGA: Przygotowanie komórek należy przeprowadzić w czasie tworzenia kompleksów.
- Przygotowanie komórek do transfekcji odwróconej
- Odsanie pożywki hodowlanej z kultur komórek starzejących się.
- Jednorazowe przemycie komórek podgrzanym PBS (2 mL na studzienkę płytki 6-dołkowej).
- Dodanie 500 µL 0,05% trypsyny-EDTA na studzienkę.
- Inkubacja komórek w temperaturze 37 °C przez 3–5 min.
- Neutralizacja trypsyny za pomocą 3 mL pełnej pożywki zawierającej surowicę.
- Delikatna tryturacja komórek w celu uzyskania zawiesiny pojedynczych komórek.
- Określenie liczby komórek przy użyciu hemocytometru lub automatycznego licznika komórek.
- Przygotowanie zawiesiny zawierającej 2,0–2,5 × 10⁵ komórek na studzienkę w pełnej pożywce.
UWAGA: Należy unikać przedłużonej trypsynizacji, ponieważ komórki starzejące się są bardzo podatne na stres mechaniczny. Komórki należy utrzymać w zawiesinie; nie wysiewać ich przed transfekcją odwróconą.
- Transfekcja odwrócona
- Przygotowanie płytki hodowlanej
- Dodanie 500 µL 0,01% poli-L-lizyny do każdej studzienki płytki 6-dołkowej i inkubacja przez 30 min w temperaturze pokojowej.
- Odsanie roztworu powlekającego bezpośrednio przed użyciem.
- Dodanie 200 µL kompleksu mRNA hTERT-lipid do środka każdej studzienki.
- Inkubacja płytki w temperaturze 37 °C i 5% CO₂ przez 30 min.
UWAGA: Powlekanie płytki należy przeprowadzić równolegle z tworzeniem kompleksów i przygotowaniem komórek.
- Przygotowanie zawiesiny komórek
- Zawieszenie 2,0–2,5 × 10⁵ komórek w 1800 µL pełnej pożywki bez antybiotyków.
- Delikatne resuspensowanie komórek w celu uzyskania jednorodnej zawiesiny pojedynczych komórek.
UWAGA: Podczas transfekcji należy stosować pożywkę bez antybiotyków.
- Wysiew komórek na kompleksy
- Dodanie 1800 µL zawiesiny komórek bezpośrednio na wcześniej utworzone kompleksy mRNA hTERT-lipid.
- Delikatne przechylenie płytki 2–3 razy w każdym kierunku, aby równomiernie rozłożyć komórki.
UWAGA: Po dodaniu komórek nie należy pipetować zawiesiny, ponieważ może to zniszczyć kompleksy mRNA-lipid.
- Inkubacja komórek
- Inkubacja komórek w temperaturze 37 °C w wilgotnym inkubatorze z 5% CO₂ przez 6–8 h.
- Monitorowanie przylegania komórek za pomocą mikroskopii świetlnej 2–3 h po transfekcji.
- Weryfikacja, czy komórki są równomiernie rozłożone i zaczynają przylegać do powierzchni hodowlanej.
UWAGA: Nadmierna liczba pływających komórek lub resztek komórkowych może wskazywać na cytotoksyczność związaną z transfekcją.
- Przygotowanie płytki hodowlanej
- Przygotowanie mRNA hTERT
3. Łagodzenie cytotoksyczności
- Skrócić czas ekspozycji na transfekcję do 48 h, jeśli ubytek komórek przekracza 20%.
- Uzupełnić hodowle o 10 µM inhibitora ROCK Y-27632 podczas okresu transfekcji, aby poprawić przeżywalność komórek.
- Po 6–8 h od transfekcji ostrożnie odessać medium do transfekcji, minimalizując zaburzenia częściowo przytwierdzonych komórek. Pozostawić około 100 µL resztkowego medium w każdej studni.
- Do każdej studni dodać 1 mL świeżego, uprzednio ogrzanego pełnego medium wzrostowego uzupełnionego o 15% FBS.
- Bezpośrednio po wymianie medium dodać chlorochinę do stężenia końcowego 10–20 µM.
- Inkubować hodowle przez dodatkowe 2 h w temperaturze 37 °C w wilgotnym inkubatorze z zawartością 5% CO₂.
- Wymienić medium zawierające chlorochinę na świeże pełne medium wzrostowe.
- Przenieść hodowle z powrotem do inkubatora w celu dalszego wzrostu.
UWAGA: Monitorować morfologię i żywotność komórek przez cały okres rekonwalescencji. Nadmierne odrywanie się komórek lub obecność debris mogą wskazywać na cytotoksyczność związaną z transfekcją.
4. Analiza po transfekcji
- Oceń ekspresję białka TERT 24–48 h po transfekcji.
- Zmierz poziom białka TERT metodą western blotting lub barwienia immunofluorescencyjnego zgodnie ze standardowymi procedurami laboratoryjnymi.
- Zmierz aktywność telomerazy w tym samym przedziale czasowym, stosując odpowiedni test aktywności telomerazy.
UWAGA: Aktywność telomerazy zazwyczaj spada po 48 h z powodu degradacji przejściowo dostarczonego mRNA hTERT. - Oceń długość telomerów 48–72 h po transfekcji, stosując monochromatyczną multipleksową ilościową PCR (MMqPCR) lub równoważną metodę analizy długości telomerów.
UWAGA: Po pomyślnym dostarczeniu mRNA hTERT można zaobserwować wykrywalne wydłużenie telomerów. - Oceń fenotypy związane ze starzeniem oraz odmłodzeniem 7 dni po transfekcji
- Zmierz aktywność β-galaktozydazy związanej ze starzeniem (SA-β-gal).
- Zmierz poziomy ekspresji p16 i p21.
- Oceń ekspresję Ki67.
- Zbadaj morfologię komórkową za pomocą mikroskopii świetlnej.
UWAGA: Porównaj hodowle traktowane z nieleczonymi lub mock-transfekowanymi kontrolami starzejącymi się, aby ocenić zmiany w fenotypach związanych ze starzeniem oraz w charakterystyce proliferacyjnej.
5. Protokół wielokrotnego dawkowania (opcjonalnie)
- Przeprowadź wstępną transfekcję zgodnie z opisem w sekcjach 2–4.
- Powtórz transfekcje według następującego harmonogramu: dzień 0: pierwsza transfekcja; dzień 5: druga transfekcja; dzień 10–12: trzecia transfekcja.
- Hoduj komórki jako kultury adherentne i nie stosuj trypsynizacji przed kolejnymi transfekcjami.
- Przygotuj świeże kompleksy hTERT mRNA–lipid zgodnie z opisem w sekcjach 2.2.1–2.2.3.
- Odsiąknij pożywkę hodowlaną z każdego dołka.
- Dodaj 200 µL kompleksów hTERT mRNA–lipid bezpośrednio do każdego dołka.
- Bezpośrednio po dodaniu kompleksów dodaj 800 µL świeżej pełnej pożywki F-10.
- Inkubuj komórki przez 4–6 h w temperaturze 37 °C w inkubatorze z nawilżaniem i zawartością 5% CO₂.
- Zastąp pożywkę do transfekcji świeżą pełną pożywką.
UWAGA: Ogranicz proces do maksymalnie trzech cykli transfekcji, aby zminimalizować skumulowaną cytotoksyczność związaną z transfekcją.
6. Protokół transfekcji bezpośredniej (2 µg/mL, format 6-dołkowy)
- Dzień −1: Wysiew komórek
- Odczepić fibroblasty senescencyjne lub we wczesnej fazie senescencji, używając 0,05% trypsyny-EDTA.
- Zneutralizować trypsynę za pomocą pełnej pożywki hodowlanej.
- Określić liczbę i żywotność komórek.
- Wysiać komórki do płytek 6-dołkowych z gęstością 2,0–2,5 × 10⁵ komórek na dołek.
- Inkubować komórki przez noc w temperaturze 37 °C w wilgotnym inkubatorze z zawartością 5% CO₂ do momentu osiągnięcia konfluencji na poziomie około 60–80%.
- Dzień 0: Przygotowanie kompleksów mRNA hTERT–odczynnik
- Rozmrozić alikwot zmodyfikowanego nukleozydowo mRNA hTERT na lodzie.
- Rozcieńczyć mRNA hTERT w Opti-MEM do stężenia końcowego 2 µg/mL w sterylnej probówce wolnej od RNaz (Probówka A).
- Dodać inhibitor RNazy do Probówki A do stężenia końcowego 0,5–1,0 U/µL i delikatnie wymieszać.
- Rozcieńczyć odczynnik do transfekcji w Opti-MEM w drugiej probówce wolnej od RNaz (Probówka B), używając 0,4–0,6 µL odczynnika na 100 ng mRNA.
- Dodać zawartość Probówki B kroplami do Probówki A, delikatnie mieszając.
- Inkubować mieszaninę w temperaturze pokojowej przez 15–20 min.
- Dzień 0: Transfekcja w przód (Forward transfection)
- Potwierdzić, że komórki osiągnęły 60–80% konfluencji i wykazują prawidłową morfologię.
- Odssać pożywkę hodowlaną.
- Przemyć komórki raz 1–2 mL uprzednio ogrzanego PBS.
- Dodać 0,5 mL uprzednio ogrzanej pełnej pożywki lub pożywki o zredukowanej zawartości surowicy do każdego dołka.
- Opcjonalnie dodać chlorochinę do stężenia końcowego 10–20 µM.
- Dodać 0,5 mL kompleksów mRNA hTERT–odczynnik przygotowanych w kroku 6.2.6 do każdego dołka.
- Delikatnie kołysać płytką, aby równomiernie rozprowadzić kompleksy.
- Inkubować komórki przez 4–6 h w temperaturze 37 °C w wilgotnym inkubatorze z zawartością 5% CO₂.
UWAGA: W razie potrzeby wydłużyć czas inkubacji do 6–8 h dla komórek senescencyjnych. - Odssać pożywkę do transfekcji.
- Dodać 2,0 mL świeżej pełnej pożywki do każdego dołka.
- Przeprowadzić analizy potretransfekcyjne zgodnie z opisem w sekcji 4.
UWAGA: Podczas porównywania warunków transfekcji w przód i w tył należy używać tej samej partii mRNA hTERT, tego samego odczynnika do transfekcji oraz tej samej dawki nominalnej.
Wyniki
ModRNA d2EGFP-T2A-hTERT została zaprojektowana jako hybrydowa otwarta ramka odczytu, w której reporter d2EGFP (destabilizowane EGFP) został połączony z ludzkim TERT za pomocą samoprzecinającego się peptydu T2A. Pełne sekwencje nukleotydowe i białkowe wszystkich konstruktów znajdują się w Pliku uzupełniającym 1. Sekwencja kodująca została otoczona syntetycznym 5′ niekodującym regionem (UTR) oraz 3′ UTR ludzkiej β-globiny w celu zwiększenia wydajności translacji i stabilności mRNA (Rysunek 1A). Kaseta ekspresyjna zawierała również syntetyczną sekwencję stabilizatora enzymu (Es) oraz syntetyczną sekwencję wzmacniającą transkrypcję (TEs), zaprojektowane w celu poprawy procesywności polimerazy T7 i ograniczenia przedwczesnej terminacji transkrypcji. Po klonowaniu za promotorem T7 przeprowadzono transkrypcję in vitro z użyciem analogu czapeczki anty-rewersyjnego (ARCA) oraz zmodyfikowanych nukleotydów (m5CTP i ΨUTP), a następnie enzymatyczne dodanie ogona poli(A) (około 120–200 nt), aby otrzymać czapeczkowane, poliadenylowane modRNA d2EGFP-T2A-hTERT o wysokiej integralności (Rysunek 1A).
Automatyczna elektroforetyczna analiza RNA potwierdziła wydajną syntezę transkryptu, wykazując przewagę frakcji RNA o oczekiwanym rozmiarze przy minimalnej ilości produktów degradacji dla wielu ilości materiału wyjściowego, co jest zgodne z pomyślnym otrzymaniem pełnowymiarowego modRNA (Rysunek 1B). Po transfekcji wczesnych starzejących się fibroblastów LF1 za pomocą 2 µg/mL modRNA d2EGFP-T2A-hTERT, białko hTERT stało się wykrywalne w ciągu 24 h i utrzymywało się na wysokim poziomie przez 48–96 h, co wskazuje na trwałą translację syntetycznego transkryptu (Rysunek 1C). Analiza połączonego reportera d2EGFP wykazała silną fluorescencję po transfekcji odwrotnej, podczas gdy znacznie słabszą fluorescencję zaobserwowano po transfekcji bezpośredniej (Rysunek 1D,E). Wyniki te wskazują na zwiększoną wydajność dostarczania i ekspresji modRNA hTERT z zastosowaniem metody transfekcji odwrotnej w wczesnych starzejących się fibroblastach LF1.
Powtarzana transfekcja w kierunku zwiększenia długości telomerów (FT) wczesno-senescencyjnych fibroblastów LF1 za pomocą modRNA d2EGFP-T2A-hTERT w odstępach 5-dniowych doprowadziła do stopniowego wzrostu średniej długości telomerów (rT/S) w stosunku do kontroli poddanych transfekcji pozornej, co zmierzono za pomocą monochromatycznej multipleksowej ilościowej reakcji PCR (MMqPCR) (Rysunek 2A). Stosunek rT/S wzrastał po każdym cyklu FT, a istotność statystyczna poprawiła się z *P < 0.05 do **P < 0.01.
Zastosowanie tego samego schematu dawkowania z wykorzystaniem transfekcji odwróconej (RT) doprowadziło do bardziej wyraźnego zwiększenia długości telomerów. Stosunek rT/S wzrastał po każdym cyklu RT, osiągając wysoce istotne różnice w porównaniu z kontrolami poddanymi transfekcji pozornej (*P < 0,05 do ****P < 0,0001) (Rysunek 2B). Bezpośrednie porównanie FT i RT po trzech cyklach traktowania wykazało, że oba podejścia znacząco zwiększyły wartości rT/S w stosunku do kontroli z transfekcją pozorną; jednakże RT spowodowała większy wzrost niż FT przy identycznych warunkach dawkowania i czasu trwania (*P < 0,05, ***P < 0,001, ****P < 0,0001) (Rysunek 2C).
Długoterminowa analiza wzrostu wykazała ponadto, że powtarzalne podawanie modRNA hTERT wydłużyło czas życia replikacyjnego (Rysunek 2D). Komórki poddane jednemu, dwóm lub trzem cyklom terapeutycznym wykazały progresywnie większą skumulowaną liczbę podwojeń populacji w porównaniu z kontrolami poddanymi transfekcji pozorowanej. Hodowle, które otrzymały trzy rundy leczenia modRNA hTERT, szczególnie w drodze RT, wykazały największą rozbieżność względem krzywych wzrostu kontrolnego w okresie około 250 dni (aż do ****P < 0.0001). Obliczenia podwojeń populacji przedstawiono w Pliku uzupełniającym 2.
Wczesne starzejące się fibroblasty LF1 przetransfekowane modRNA d2EGFP-T2A-hTERT wykazywały silne drabinowanie w teście TRAP 48 h po transfekcji, podczas gdy komórki kontrolne (mock) oraz traktowane eGFP-modRNA wykazywały jedynie sygnał tła, co wskazuje, że aktywność telomerazy wynikała z egzogennej ekspresji hTERT (Rycyna 3A). Obróbka cieplna zniosła wzór drabinowania, potwierdzając swoistość analizy (Rycina 3B).
Analiza przebiegu czasowego wykazała, że aktywność telomerazy osiągnęła szczyt między 24 a 48 h po transfekcji, a następnie spadła, powracając do poziomów zbliżonych do wyjściowych w ciągu 72–96 h (Rysunek 3C). Zwiększenie stężenia modRNA hTERT z 50 do 3 000 ng/mL spowodowało odpowiedni wzrost intensywności sygnału TRAP, co świadczy o zależnej od dawki aktywacji telomerazy (Rysunek 3D).
Analiza funkcjonalna z wykorzystaniem konstruktów hTERT typu dzikiego, katalitycznie nieaktywnych (CI) oraz z defektem sygnału lokalizacji jądrowej (ΔNLS) wykazała, że tylko hTERT typu dzikiego generował silną aktywność telomerazy. Oba warianty, CI i ΔNLS, nie wywołały porównywalnej aktywności pomimo podobnych warunków dostarczenia (Rysunek 3E). Zgodnie z tymi wynikami, analiza MMqPCR ujawniła wyraźny wzrost średniej długości telomerów (rT/S ≈ 1,4) wyłącznie w komórkach otrzymujących modRNA hTERT typu dzikiego. Komórki otrzymujące CI-hTERT, ΔNLS-hTERT lub traktowane kontrolnie (mock) pozostały na poziomach bliskich wartości bazowej (rT/S ≈ 0,3; ****P < 0,0001) (Rysunek 3F).
Trzy sekwencyjne rundy odwrotnej transfekcji modRNA hTERT w odstępach 5-dniowych znacząco zmniejszyły odsetek komórek wykazujących aktywność β-galaktozydazy związanej ze starzeniem. Procent komórek dodatnich spadł z około 85% w kulturach traktowanych kontrolnie do około 40% w kulturach traktowanych hTERT 15 dni po ostatniej transfekcji (***P < 0.001) (Rysunek 4A).
Konfokalne barwienie immunocytochemiczne wykazało zwiększoną ekspresję Ki67 w komórkach poddanych trzem rundom odwrotnej transfekcji hTERT w porównaniu z kontrolami mock, co wskazuje na zwiększoną aktywność proliferacyjną (Rycina 4B). Analiza RT-qPCR dodatkowo wykazała obniżoną ekspresję markerów związanych z senescencją, p16 i p21, po zastosowaniu hTERT. W stosunku do wczesnosenescentnych komórek mock, ekspresja p16 spadła z około 2,3-krotnej do 0,7-krotnej, a ekspresja p21 spadła z około 11-krotnej do 6-krotnej (**P < 0,01; ****P < 0,0001) (Rycina 4C,D). Rycina uzupełniająca 1 dodatkowo pokazuje, że leczenie samą chlorochiną (CQ) lub Y-27632 nie zmieniło istotnie ekspresji p16 lub p21 w komórkach mock. W przeciwieństwie do tego, połączenie CQ i Y-27632 podczas trzech rund odwrotnej transfekcji hTERT spowodowało największą redukcję ekspresji zarówno p16, jak i p21 w porównaniu z samą odwrotną transfekcją hTERT lub pojedynczymi czynnikami, podczas gdy leczenie jednym czynnikiem wywołało efekty pośrednie. Wyniki te wskazują, że połączone zastosowanie CQ i Y-27632 nasiliło redukcję ekspresji markerów związanych z senescencją po odwrotnej transfekcji mRNA hTERT. Wspólnie odkrycia te dowodzą, że powtarzana odwrotna transfekcja mRNA hTERT promuje elongację telomerów, redukuje markery związane z senescencją i nasila cechy proliferacyjne we wczesnosenescentnych fibroblastach LF1.
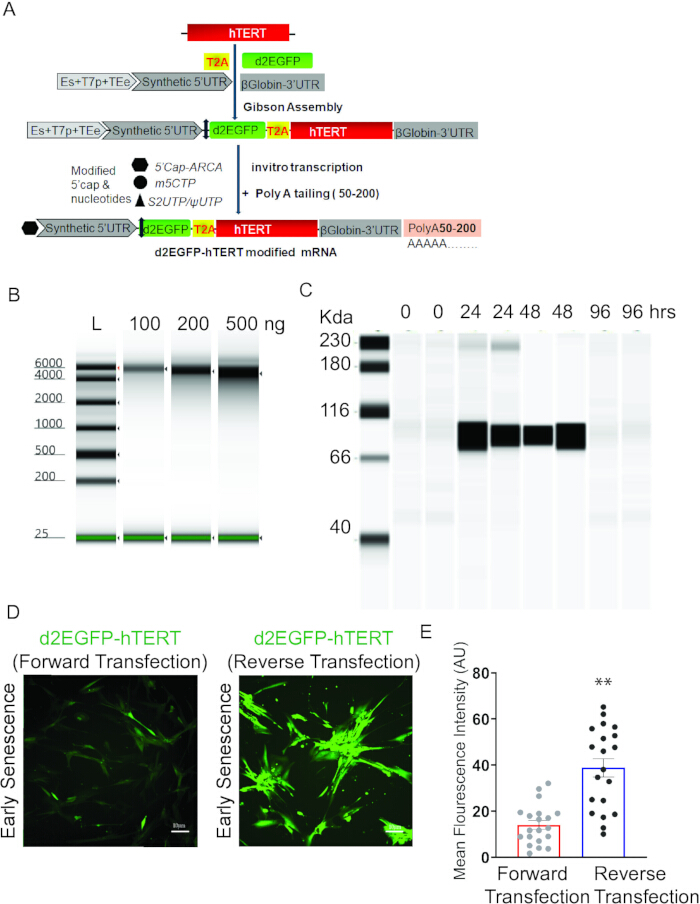
Rycina 1: Projekt, synteza i walidacja funkcjonalna mRNA d2EGFP‑T2A‑hTERT w fibroblastach LF1 we wczesnej fazie starzenia. (A) Schemat konstrukcji hybrydowego mRNA hTERT zawierającego kasetę d2EGFP połączoną peptydem T2A dla jednoczesnej ekspresji hTERT i destabilizowanego EGFP. ORF d2EGFP-T2A-hTERT jest flankowany przez 3’ UTR ludzkiego genu β-globiny (HBB) oraz syntetyczny 5’ UTR. mRNA zostało zsyntetyzowane z użyciem modyfikowanych nukleotydów, a na koniec dodano ogon poli(A). (B) Efektywna synteza wysokiej jakości mRNA d2EGFP-T2A-hTERT przy użyciu transkrypcji in vitro, przeanalizowana za pomocą zautomatyzowanej elektroforetycznej analizy RNA. (C) Analiza przebiegu czasowego ekspresji białka hTERT z wykorzystaniem zautomatyzowanego immunoanalizy kapilarnej po transfekcji 2 µg/mL mRNA d2EGFP-T2A-hTERT. (D) Skuteczność i ekspresja transfekcji mRNA d2EGFP-T2A-hTERT, oceniane na podstawie ekspresji EGFP pomiędzy transfekcją bezpośrednią (FT) a transfekcją odwróconą (RT), zbadane w pierwotnych diploidalnych fibroblastach (LF1) we wczesnej fazie starzenia. Pasek skali = 10 µm. (E) Ilościowe oznaczenie średniej intensywności fluorescencji (MFI) sygnału eGFP po transfekcji bezpośredniej lub odwróconej. Dla każdego warunku przeanalizowano łącznie 20 pojedynczych obrazów, obejmujących 4 oddzielne obszary z 5 powtórzeń biologicznych. Dane przedstawiają średnie ± SD. **P < 0.01; ocenione za pomocą nieparzystego testu t z korektą Welcha. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
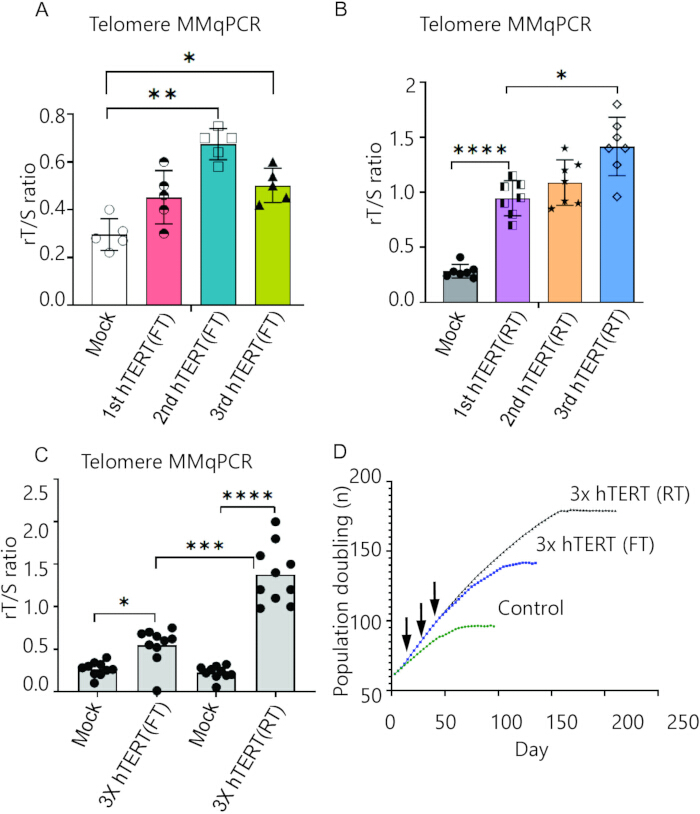
Rycina 2: Dynamika długości telomerów i czas życia proliferacyjnego po powtarzającej się transfekcji mRNA hTERT w kierunku w przód (forward) w porównaniu do kierunku wstecznego (reverse) we wczesno-senescentnych fibroblastach LF1. (A) Średnie długości telomerów (rT/S) określono za pomocą Telomere MMqPCR. Wczesno-senescentne fibroblasty poddano transfekcji w kierunku w przód (FT) mRNA d2EGFP-T2A-hTERT trzykrotnie z rzędu w odstępach 5-dniowych, zaczynając od podwojenia populacji (PD) nr 76. Słupek błędu oznacza SEM; n = 5 powtórzeń biologicznych; *P < 0,05, **P < 0,01 w porównaniu z komórkami traktowanymi wyłącznie mock. (B) Podobnie jak w (A), rT/S oceniono, gdy wczesno-senescentne komórki były poddawane powtarzającej się transfekcji (RT) mRNA d2EGFP-T2A-hTERT trzykrotnie z rzędu w odstępach 5-dniowych, zaczynając od podwojenia populacji (PD) nr 76. Słupek błędu reprezentuje SEM; n = 7 powtórzeń biologicznych; *P < 0,05, ****P < 0,0001 w porównaniu z komórkami traktowanymi wyłącznie mock. (C) Porównanie średniej długości telomerów (rT/S) po 3 kolejnych transfekcjach w kierunku w przód i wstecznym w odstępach 5-dniowych lub wyłącznie mock. Słupek błędu reprezentuje SEM; n = 10 powtórzeń biologicznych; *P < 0,05, ***P < 0,001, ****P < 0,0001. (D) Krzywe wzrostu fibroblastów LF1 transfekowanych 2 µg/ml mRNA d2EGFP-T2A-hTERT lub wyłącznie mock, raz, dwa lub trzy razy z rzędu w odstępach 5-dniowych, zaczynając od PD# 76. Czarne strzałki wskazują terminy zabiegów. Krzywe wzrostu powtórzono trzykrotnie, przy czym każda populacja była hodowana w trzech powtórzeniach. 3 powtórzenia techniczne na próbkę biologiczną, dane reprezentują średnie ± SD. *P < 0,05, **P < 0,01; ****P < 0,0001, ocenione za pomocą testu ANOVA Browna-Forsythe'a i Welcha Prosimy kliknąć tutaj, aby zobaczyć większą wersję tej ryciny.
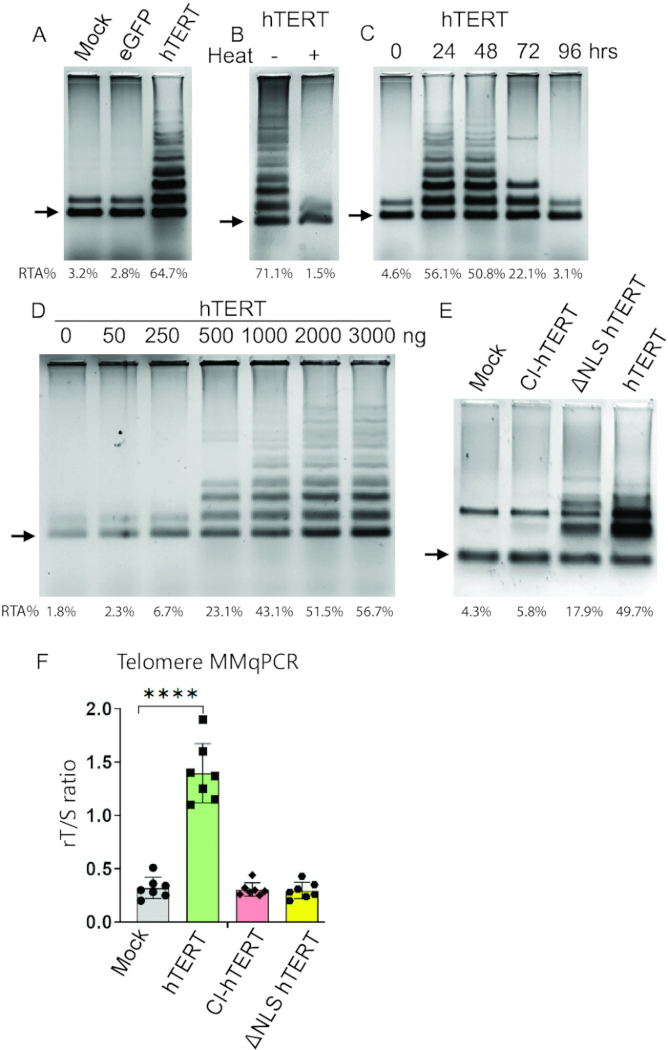
Rycina 3: Katalitycznie aktywne, zlokalizowane w jądrze mRNA hTERT wywołuje przejściowy, zależny od dawki wzrost aktywności telomerazy, który sam w sobie jest wystarczający do promowania mierzalnego wydłużenia telomerów w fibroblastach LF1 we wczesnej fazie starzenia. (A) Komórki we wczesnej fazie starzenia poddano transfekcji mock, eGFP lub mRNA d2EGFP-T2A-hTERT. 48 h po transfekcji przygotowano ekstrakt komórkowy z 20 000 komórek i poddano go analizie TRAP. Produkty reakcji rozdzielono metodą natywnego PAGE i barwiono SYBR Green. (B) Inaktywacja telomerazy indukowana ciepłem, zmierzona za pomocą analizy TRAP. (C) Analiza aktywności telomerazy w czasie w komórkach LF1 we wczesnej fazie starzenia po transfekcji mRNA hTERT wykazała, że aktywność powróciła do poziomu bazowego w ciągu 72 h, co wskazuje na przejściową aktywację enzymu. (D) Komórki LF1 we wczesnej fazie starzenia otrzymały różne ilości mRNA d2EGFP-T2A-hTERT (0–3 000 ng/mL), co wykazało wzrost aktywności telomerazy proporcjonalny do dawki. (E) Podanie 2 µg/ml TERT zwiększyło aktywność telomerazy w komórkach LF1 we wczesnej fazie starzenia. ΔNLS częściowo zwiększył aktywność telomerazy bez indukowania wydłużenia telomerów, ponieważ działa on w cytoplazmie, ale nie translokuje się do jądra, podczas gdy mRNA CI TERT nie wywołało tego efektu, co oznacza odmienne wyniki funkcjonalne. (F) Wpływ odwrotnej transfekcji funkcjonalnego TERT, TERT z niedoborem sygnału lokalizacji jądrowej (ΔNLS) oraz TERT katalitycznie nieaktywnego (CI) na średnią długość telomerów (rT/S) komórek LF1 we wczesnej fazie starzenia, co wskazuje na znaczenie zlokalizowanego w jądrze, katalitycznie aktywnego TERT dla wydłużenia telomerów. Słupek błędu reprezentuje SD; n = 7 powtórzeń biologicznych; ****P < 0,0001 w porównaniu z komórkami traktowanymi tylko mockami, ocenione za pomocą jednoczynnikowej analizy ANOVA z korektą Welcha. RTA%-Względna aktywność telomerazy (% kontroli) jest zaznaczona na dole każdej ścieżki. Stosunek poziomów intensywności drabin próbek TRAP i prążka ITAS (kontrola wewnętrzna- IC) obliczono dla każdej ścieżki według następującego wzoru: Activity normalized = Ladder intensity/ IC intensity, a każdą próbkę znormalizowano do kontroli pozytywnej jako procent (kontrola pozytywna; 2 500 komórek H1299) za pomocą następującego wzoru: Relative activity (%) =Activity normalized (sample)/ Activity normalized (reference). Na każdym etapie zastosowano odejmowanie tła. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
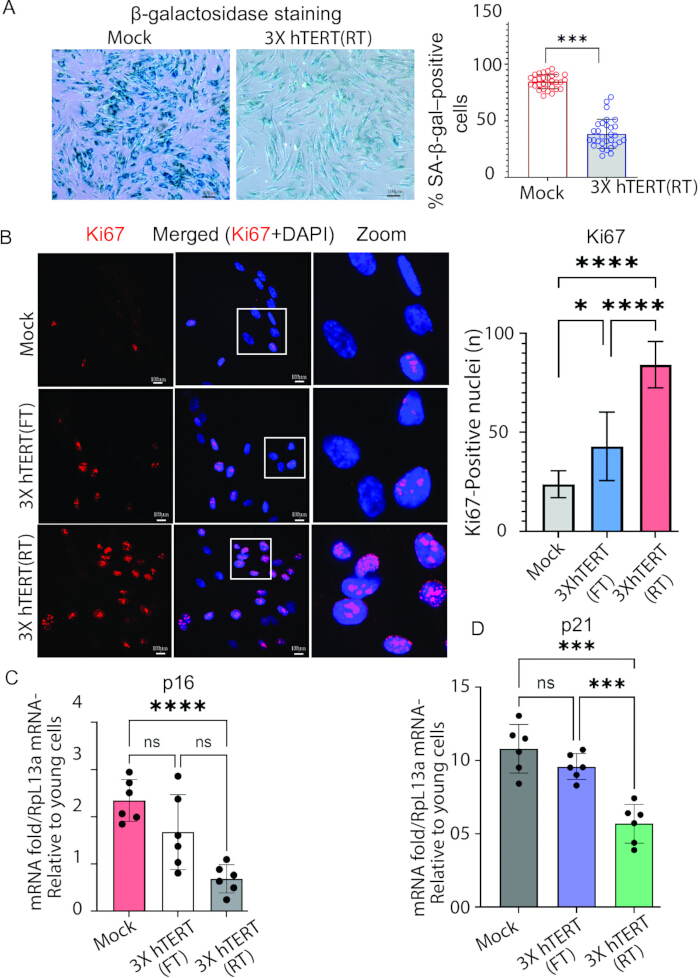
Rysunek 4: Zoptymalizowana odwrotna transfekcja mRNA hTERT częściowo odwraca fenotypy związane z senescencją i przywraca markery proliferacyjne w wczesnosenescencyjnych fibroblastach LF1. (A) Reprezentatywne obrazy wczesnosenescencyjnych komórek LF1 wykazujących ekspresję β-gal po trzykrotnej seryjnej zmodyfikowanej transfekcji mRNA hTERT w odstępach 5-dniowych. Pasek skali = 100 µm. Ekspresję β-gal analizowano 15 dni po ostatniej transfekcji. Eksperymenty przeprowadzono trzykrotnie, ręcznie oceniając >100 komórek na próbkę. (B) Reprezentatywne obrazy konfokalne (powiększenie 20x) wczesnosenescencyjnych komórek LF1, zabarwionych markerem proliferacji Ki67. Pasek skali = 100 µm. Istotny wzrost ekspresji Ki67 po 3 rundach odwrotnej transfekcji hTERT. Odsetek jąder dodatnich pod kątem Ki67 istotnie wzrasta po 3× hTERT (RT). Wykres przedstawia średnią ± SD liczby jąder dodatnich dla Ki67, znormalizowaną do warunku transfekcji Mock. Dla każdego warunku zbadano łącznie 18 obrazów, wybierając 6 oddzielnych pól z każdego z powtórzeń biologicznych, dla łącznej liczby n = 3 powtórzeń biologicznych. ****P < 0.0001. (C) Ekspresja markerów senescencji po 3× hTERT-pośrednim częściowym odmłodzeniu, oceniona za pomocą RT-qPCR (n = 6). Wszystkie dane przedstawiają średnie ± SD. **P < 0.01; ****P < 0.0001, ocenione za pomocą nieparzystego testu t z korekcją Welcha. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Komponent | Objętość/stężenie końcowe |
| matryca DNA do PCR | 200–1000 ng |
| Bufor do IVT 10× | 2 μL |
| ATP (100 mM) | 2 μL (stężenie końcowe 10 mM) |
| GTP (100 mM) | 1.5 μL (stężenie końcowe 7,5 mM) |
| CTP (100 mM) | 2 μL (stężenie końcowe 10 mM) |
| m1Ψ-5′-TP (100 mM) | 2 μL (stężenie końcowe 10 mM) (Można zwiększyć wbudowanie pseudo-UTP, stosując zwykłe UTP w stosunku 1:4–2:2 (m1Ψ-5′-TP:UTP).) |
| ARCA (10 mM) | 4 μL (stężenie końcowe 2 mM) |
| inhibitor RNazy (40 U/μL) | 0.5 μL (20 j.) |
| Polimeraza RNA T7 (50 j/μL) | 2 μL (100 j.) |
| Woda wolna od nukleaz (H₂O) | 20 μL |
Tabela 1: Skład reakcji transkrypcji in vitro (IVT) dla syntezy mRNA hTERT z modyfikowanymi nukleozydami. Przedstawiono składniki reakcji i końcowe ilości zastosowane w syntezie IVT z końcówką ARCA.
| Komponent | Objętość/Stężenie końcowe |
| Oczyszczone mRNA do 5 μg | ≤20 μL |
| 10× bufor do ogonowania Poly(A) | 5 μL |
| ATP (10 mM | 5 μL (stężenie końcowe 1 mM) (Mimo że znajduje się on już w buforze, dodatkowa porcja wspomaga stabilizację poli A). |
| Polimeraza poli(A) (5 U/μL) | 1 μL (5 j.) |
| Woda wolna od nukleaz | Suma całkowita 50 μL |
Tabela 2: Skład reakcji poliadenylacji stosowanej do modyfikacji potranskrypcyjnej mRNA hTERT. Przedstawiono objętości odczynników oraz warunki reakcji niezbędne do wytworzenia ogona poli(A) o długości 120–200 nukleotydów.
| Parametr | Format 12-dołkowy | Format 6-dołkowy |
| Powierzchnia wzrostu | ~3.8 cm² | ~9.5 cm² |
| Ilość pożywki na dołek | 1.0 mL | 2.0 mL |
| Liczba wysiewanych komórek | 5× 10⁴–6.5× 10⁴ Cells/ml | 2.0–2.5 × 10⁵ |
| Średnia liczba komórek (przy 100% konfluencji) | 5.7× 10⁴–7.2× 10⁴ Cells/ml | 2.9–3 × 10⁵ |
| Ilość mRNA do transfekcji | 750 –1000ng | 2000–3500 ng |
| Odczynnik do transfekcji mRNA | 1.5 – 3.0 µL | 4.75 – 7 µL |
| Końcowa objętość mRNA + odczynnika do transfekcji w Opti-MEM | 50 µL | 200 µL |
Tabela 3: Zalecane parametry transfekcji dla dostarczania mRNA hTERT w formatach hodowli 6-dołkowej i 12-dołkowej. Podsumowano gęstości wysiewu komórek, ilości mRNA, objętości odczynnika do transfekcji oraz objętości tworzenia kompleksów wykorzystane w eksperymentach transfekcji w przód i w tył.
Rycina uzupełniająca 1: Wpływ chlorochiny i Y-27632 na ekspresję p16 i p21 związanych ze starzeniem po wielokrotnej odwrotnej transfekcji mRNA hTERT. (A) Ilościowa analiza RT-PCR ekspresji mRNA p16 w fibroblastach LF1 kontrolnych (mock) oraz poddanych trzykrotnej odwrotnej transfekcji (RT) hTERT po traktowaniu chlorochiną (CQ), Y-27632 lub ich kombinacją, zgodnie z oznaczeniami. (B) Ilościowa analiza RT-PCR ekspresji mRNA p21 w tych samych warunkach eksperymentalnych. Poziomy transkrypcji znormalizowano względem RpL13a i wyrażono w stosunku do młodych komórek kontrolnych (PD#12). Pojedyncze punkty danych reprezentują powtórzenia biologiczne. Dane przedstawiono jako średnie ± SD dla n = 2 powtórzeń biologicznych, przy 5 powtórzeniach technicznych na każde powtórzenie biologiczne. Istotność statystyczna jest zaznaczona na rycinie; ns, brak istotności. *P < 0.05, **P < 0.01, ****P < 0.0001, określone za pomocą testów ANOVA Browna-Forsythe'a i Welcha. Skróty: CQ, chlorochina; RT, odwrotna transfekcja; Y-27632, inhibitor kinazy białkowej związanej z Rho (ROCK).Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1: Sekwencje DNA i białek konstruktów ekspresyjnych hTERT.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Obliczanie podwojeń populacji (PD). Podwojenia populacji (PD) obliczono zgodnie ze wzorem PD = log₂ (Nf/N₀), gdzie N₀ to liczba wysianych komórek, a Nf to liczba zebranych żywych komórek. Skumulowane PD wyznaczono poprzez sumowanie wartości PD z kolejnych pasaży.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Niniejsze badanie redefiniuje starzenie się komórek jako odrębny problem dostarczania substancji, a nie jedynie niewielką wariację fizjologii proliferacyjnej, i opracowuje strategię transfekcji mRNA telomerazy dostosowaną do ograniczeń biofizycznych i immunologicznych stanu starzenia. Komórki starzejące się charakteryzują się usztywnionymi, wzbogaconymi w cholesterol błonami oraz zmniejszoną aktywnością endocytarną, co tworzy istotną barierę dla efektywnego dostarczania kwasów nukleinowych. Poprzez zastosowanie podejścia opartego na transfekcji wstecznej, niniejszy protokół wykorzystuje przejściowy okres adhezji, podczas którego komórki starzejące się podlegają przebudowie błony i wykazują zwiększoną plastyczność błonową, synchronizując tym samym kontakt komórki z kompleksem z okresem zwiększonego potencjału poboru3,4. Reprezentatywne wyniki wykazują, że strategia ta poprawia dostarczanie i ekspresję modRNA hTERT w porównaniu z konwencjonalną transfekcją wprost, co prowadzi do większego wydłużenia telomerów i bardziej wyraźnych fenotypów związanych z odmłodzeniem.
Kluczowym elementem tej metody jest wielowarstwowa strategia inżynierii mRNA, zaprojektowana w celu przezwyciężenia trzech głównych barier w komórkach senescentnych: podwyższonej sygnalizacji wrodzonej odpowiedzi immunologicznej, zwiększonej degradacji RNA oraz upośledzonej wydajności translacji23,24,25. Wprowadzenie pseudourydyny i 5-metylocytydyny redukuje aktywację szlaków sygnalizacyjnych TLR3, TLR7/8 oraz RIG-I, jednocześnie zwiększając stabilność transkryptu i wydajność translacji13,26. Capping ARCA oraz optymalizacja ogona poli(A) dodatkowo poprawiają stabilność transkryptu i poziom translacji, co umożliwia silną, lecz przejściową ekspresję hTERT. Zgodnie z wcześniejszymi badaniami, modyfikacje te wspierają wydajną ekspresję telomerazy, minimalizując jednocześnie aktywację odporności wrodzonej związanej z dostarczaniem egzogennego RNA.
Protokół ten odnosi się również do bogatego w RNazy środowiska zewnątrzkomórkowego, charakterystycznego dla kultur starzejących się27. Ochronę RNA zwiększa się poprzez modyfikację nukleozydów, tworzenie kompleksów lipidowych oraz bezpośrednie dodanie inhibitora RNazy przed transfekcją. Ponadto czas transfekcji odwrotnej został dostosowany do wolniejszej kinetyki przylegania komórek starzejących się, co umożliwia przedłużoną interakcję między komórkami a kompleksami mRNA-lipid podczas adhezji komórkowej. Modyfikacje te wspólnie zwiększają prawdopodobieństwo skutecznego pobrania ładunku w populacji komórek, które w przeciwnym razie są trudne do transfekcji.
Ucieczka z endosomów stanowi drugie krytyczne wąskie gardło w dostarczaniu mRNA do komórek senescentnych. Komórki senescentne wykazują zwiększoną zawartość lizosomów oraz nasilony transport endocytowanych ładunków do przedziałów degradacyjnych17,28. Krótkotrwała ekspozycja na chlorochinę w wczesnym okresie po transfekcji poprawia funkcjonalną dostawę poprzez promowanie ucieczki z endosomów i ograniczanie degradacji zinternalizowanego mRNA w lizosomach. Choć optymalna dawka i czas ekspozycji mogą różnić się w zależności od typu komórek, przedstawione tutaj wyniki wskazują, że zwiększenie ucieczki z endosomów znacząco poprawia wydajność dostarczania w senescentnych fibroblastach.
Na poziomie funkcjonalnym powtarzamie podawanie modRNA hTERT spowodowało skumulowany wzrost względnej długości telomerów, wydłużenie życia replikacyjnego oraz redukcję wielu fenotypów związanych ze starzeniem. Komórki poddane powtarzającej się terapii hTERT wykazały obniżoną aktywność SA-β-gal, zmniejszoną ekspresję p16 i p21, zwiększoną ekspresję Ki67 oraz zwiększoną zdolność do proliferacji w porównaniu z kontrolami poddanymi transfekcją pozorowaną. Co istotne, aktywność telomerazy pozostała przejściowa, wracając do poziomów bliskich wyjściowym w ciągu kilku dni po transfekcji. Taki przejściowy profil ekspresji pozwala uniknąć trwałej modyfikacji genetycznej, zapewniając jednocześnie wystarczającą aktywność telomerazy do wywołania mierzalnych efektów biologicznych. Należy jednak zauważyć, że pomiary względnej długości telomerów uzyskane za pomocą MMqPCR nie kwantyfikują bezpośrednio bezwzględnego wydłużenia telomerów. Przyszłe badania z wykorzystaniem analizy terminalnych fragmentów restrykcyjnych, ilościowej hybrydyzacji in situ fluorescencyjnej, Flow-FISH lub metodologii TeSLA zapewnią bardziej precyzyjną ocenę dynamiki długości telomerów po dostarczeniu mRNA hTERT.
Należy wziąć pod uwagę kilka ograniczeń. Populacje komórek senescentnych są z natury heterogeniczne i ich reakcja na dostarczenie mRNA może się różnić w zależności od metody indukcji senescencji, źródła donora oraz historii hodowli. W konsekwencji wydajność transfekcji i efekty odmłodzenia mogą się różnić pomiędzy poszczególnymi układami eksperymentalnymi. Co więcej, reaktywacja telomerazy odnosi się przede wszystkim do aspektów starzenia komórkowego zależnych od telomerów i nie koryguje bezpośrednio wszystkich cech charakterystycznych dla senescencji. Zmiany związane ze starzeniem, takie jak dryf epigenetyczny, dysfunkcja mitochondrialna, zaburzenia proteostazy i przewlekłe sygnalizowanie zapalne, mogą utrzymywać się mimo pomyślnego wydłużenia telomerów29,30. Dlatego też niniejszy protokół należy traktować jako ukierunkowane narzędzie do badania i częściowego odwracania senescencji napędzanej przez telomery, a nie jako kompleksową strategię odmładzania.
Parametry opisane w niniejszym protokole mają charakter praktycznych wytycznych dla starzejących się ludzkich komórek i zostały opracowane poprzez iteracyjną optymalizację w oparciu o opublikowane badania oraz doświadczenia eksperymentalne. Czynniki takie jak gęstość komórek, stosunek odczynnika do transfekcji do mRNA, czas kompleksowania oraz warunki ucieczki endosomalnej mogą wymagać dostosowania do poszczególnych typów komórek i ustawień eksperymentalnych. Badacze powinni zatem traktować podane warunki jako punkt wyjścia do optymalizacji, a nie jako uniwersalnie stosowalne wartości końcowe.
Podsumowując, niniejszy protokół zapewnia powtarzalne ramy dla dostarczania zmodyfikowanego mRNA hTERT do starzejących się ludzkich komórek przy użyciu strategii odwrotnej transfekcji, zoptymalizowanej pod kątem charakterystyki fizjologicznej starzenia. Podejście to umożliwia przejściową reaktywację telomerazy, mierzalną elongację telomerów, wydłużenie życia replikacyjnego oraz częściowe odwrócenie fenotypów związanych ze starzeniem. Przyszłe badania powinny ocenić możliwości zastosowania tej strategii w odniesieniu do dodatkowych typów komórek starzejących się, zbadać podejścia łączone z komplementarnymi interwencjami odmładzającymi oraz przeanalizować możliwość przeniesienia metody na platformy dostarczania in vivo. W ten sposób metoda ta stanowi cenny instrument do badania biologii telomerów, odmładzania komórkowego oraz mechanizmów starzenia w badaniach nad procesami starzenia się organizmu.
Oświadczenia
J.M.S. jest współzałożycielem oraz przewodniczącym SAB w firmie Transposon Therapeutics.
Podziękowania
Praca ta była wspierana przez granty National Institutes of Health (NIH) P01 AG051449, R01 AG016694 oraz R01 AG078925 przyznane JS.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Ham's F-10 Nutrient Mix | Thermo Fisher | 11550043 | Pożywka do hodowli komórkowej. |
| Analog struktury czapeczki RNA 3´-O-Me-m7G(5')ppp(5')G | New England Biolab | S1411L | W przypadku większości cząsteczek RNA struktura czapeczki zwiększa stabilność, zmniejsza podatność na degradację przez egzonukleazy i sprzyja tworzeniu kompleksów inicjacji mRNA. |
| 5-metylocytydyna-5´-trifosforan (5-metylu-CTP) | New England Biolab | N0432S | Modyfikowane NTP są powszechnie stosowane w celu redukcji immunogenności RNA otrzymywanego w drodze transkrypcji in vitro. |
| Płytka 6-dołkowa | Corning | 351146 | Do hodowli i traktowania średnich i dużych objętości komórek adherentnych lub w zawiesinie w niezależnych warunkach eksperymentalnych. |
| Przeciwciało anty-Ki67 (SP6) | abcam | ab16667 | Ki67 wykazuje ekspresję głównie w komórkach proliferujących. |
| Zestaw do badania starzenia komórkowego (barwienie SA-beta-gal) | cellbiolabs | CBA-230 | Identyfikacja komórek starzejących się za pomocą testu barwienia SA-β-gal |
| Probówki DNA LoBind 0,5 ml | Eppendorf | 022431005 | Do wydajnego odzyskiwania DNA i RNA bez strat |
| Probówki DNA LoBind 1,5 ml | Eppendorf | 22431021 | Do wydajnego odzyskiwania DNA i RNA bez strat |
| DNaza I, wolna od RNaz (1 U/μL) | Thermo Fisher | EN0521 | DNaza I, wolna od RNaz, jest endonukleazą trawiącą jednoniciowe i dwuniciowe DNA. |
| Polimeraza poli(A) z E. coli | New England Biolab | M0276S | W Escherichia coli polimeraza poli(A) I (PAP I) pełni głównie funkcję katalizatora niezależnego od matrycy przyłączania reszt adenozynomonofosforanu (AMP) do końca 3' cząsteczek RNA. |
| Płodowa surowica bydlęca | Thermo Fisher | A5256701 | Suplement do pożywek do hodowli komórkowej |
| Zestaw HiScribe T7 ARCA mRNA | New England Biolab | E2065S | Zestaw HiScribe T7 ARCA mRNA (z dobudowywaniem ogona) został zaprojektowany do szybkiej produkcji in vitro mRNA z czapeczką ARCA i ogonem poli(A). Czapeczkowane mRNA są syntetyzowane poprzez ko-transkrypcyjną inkorporację analogu czapeczki anty-rewersyjnej (ARCA) przy użyciu polimerazy RNA T7. |
| Zestaw HiScribe T7 mRNA z odczynnikiem CleanCap AG | New England Biolab | E2080S | Zestawy HiScribe T7 mRNA z odczynnikiem CleanCap AG umożliwiają szybką i usprawnioną produkcję jednego lub wielu transkryptów z typową wydajnością ≥90 μg na reakcję, |
| Polimeraza DNA LongAmp Hot Start Taq | New England Biolab | M0534S | Polimeraza DNA LongAmp Hot Start Taq oferuje wyjątkową wydajność w przypadku długich amplikonów. |
| odwrotna transkryptaza M-MuLV | New England Biolab | M0253L | Odwrotna transkryptaza M-MuLV syntetyzuje komplementarną nić DNA inicjując proces od primera, wykorzystując jako matrycę RNA (synteza cDNA) lub jednoniciowe DNA. |
| Zestaw do oczyszczania RNA Monarch Spin (50 μg) | New England Biolab | T2040L | Główną funkcją zestawu Monarch® Spin RNA Cleanup Kit (50 μg) jest oczyszczanie i zagęszczanie do 50 μg wysokiej jakości RNA z reakcji enzymatycznych lub mieszanin ekstrakcyjnych. |
| Master Mix do składania DNA NEBuilder HiFi | New England Biolab | E2621L | Master Mix do składania DNA NEBuilder HiFi umożliwia bezszwowe składanie wielu fragmentów DNA, niezależnie od ich długości lub kompatybilności końców. Znajduje zastosowanie w biologii syntetycznej, a także w jednokrokowym klonowaniu wielu fragmentów dzięki łatwości użycia, elastyczności i prostej formie master-mixu. |
| Opti-MEM – pożywka z obniżoną zawartością surowicy | Thermo Fisher | 31985070 | Służy do maksymalizacji wydajności transfekcji komórek podczas tworzenia kompleksów lipid-ładunek. Stanowi zoptymalizowane, chemicznie zdefiniowane środowisko, które zapewnia wysoką żywotność komórek ssaków, redukując jednocześnie potrzebę standardowej suplementacji surowicą. |
| PBS, pH 7,4 | Thermo Fisher | 10010023 | Podstawowym zastosowaniem funkcjonalnym soli fosforanowo-buforowanej (PBS) o pH 7,4 jest utrzymanie stabilnego pH i równowagi osmotycznej dla komórek ssaków i cząsteczek biologicznych. |
| Strypy PCR | Thermo Fisher | AB0776 | Podstawowym zastosowaniem funkcjonalnym probówek w formie strypów PCR (zazwyczaj w formacie 8- lub 12-strypowym) jest przechowywanie małych objętości reakcji w cieczy podczas wysokoprzepustowego cyklowania termicznego. |
| Hydrobromek poli-L-lizyny | Millipore Sigma | P4707-50ML | Podstawowym zastosowaniem funkcjonalnym hydrobromku poli-L-lizyny (PLL) w przywieraniu komórek jest powlekanie ujemnie naładowanych powierzchni stałych (takich jak szkło lub plastik) w celu stworzenia silnie adhezyjnego, dodatnio naładowanego podłoża. |
| Pseudourydyna-5´-trifosforan (Pseudo-UTP- ΨUTP) | New England Biolab | N0433S | Pseudourydyna-5´-trifosforan (Pseudo-UTP) jest powszechnie stosowany w celu redukcji immunogenności RNA otrzymywanego w drodze transkrypcji in vitro. |
| Zestaw roztworów rybonukleotydów | New England Biolab | N0450L | Cztery oddzielne roztwory ATP, GTP, CTP i UTP |
| Inhibitor ROCK Y-27632 (dihydrochlorowodorek) | Stem cell technologies | 72302 | Y-27632 jest przenikalnym przez błony komórkowe, silnym i selektywnym inhibitorem kinazy białkowej ROCK (Rho-associated, coiled-coil containing protein kinase). Y-27632 hamuje zarówno ROCK1 (Ki = 220 nM), jak i ROCK2 (Ki = 300 nM), konkurując z ATP o wiązanie w centrum katalitycznym |
| Woda klasy RT-PCR | Thermo Fisher | AM9935 | Podstawowym zastosowaniem funkcjonalnym wody klasy RT-PCR (często oznaczanej jako woda wolna od nukleaz) jest służenie jako ultrazczysty rozpuszczalnik do czułych analiz enzymatycznych, w których jakiekolwiek zanieczyszczenie mogłoby zdegradować próbkę lub zahamować amplifikację. |
| Inhibitor RNazy SUPERase·In | Thermo Fisher | AM2694 | Inhibitor RNazy SUPERase In jest inhibitorem białkowym pochodzenia nie-ludzkiego, który niekowalencyjnie wiąże i hamuje najczęstsze i najbardziej problematyczne RNazy, w tym RNazę A, B, C, 1 oraz T1. |
| Barwnik do żeli kwasów nukleinowych SYBR Green I | Thermo Fisher | S7563 | Podstawowym zastosowaniem funkcjonalnym barwnika do żeli kwasów nukleinowych SYBR™ Green I jest wizualizacja i kwantyfikacja dwuniciowego DNA (dsDNA) w żelach agarozowych lub poliakryloamidowych. |
| Zestaw do transfekcji TransIT-mRNA | Mirusbio/ Millipore Sigma | MIR 2250 | Wysoko wydajny, niskotoksyczny odczynnik do transfekcji dużych cząsteczek RNA |
| Zestaw do wykrywania telomerazy TRAPeze | Millipore Sigma | S7700 | Test TRAP (Telomeric Repeat Amplification Protocol) to powszechnie stosowana i czuła metoda oparta na PCR, służąca do wykrywania i pomiaru aktywności telomerazy w komórkach ssaków i próbkach tkanek. Obejmuje ona trzy główne etapy: wydłużanie powtórzeń telomerycznych przez telomerazę, amplifikację tych produktów za pomocą PCR oraz późniejszą detekcję. |
| Trypsyna-EDTA (0,05%), czerwień fenolowa | Thermo Fisher | 25300054 | Do odrywania adherentnych komórek ssaków od naczyń hodowlanych podczas rutynowego pasażowania (subkultywacji) i zbierania komórek. |
Bibliografia
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.