Niniejszy protokół ma na celu ocenę rozwoju czerniaka w ksenotransplantatach rybki zebrafish przy użyciu in vivo rezonansowego spektra paramagnetycznego elektronu (spektroskopia do wykrywania i analizowania rodników melaniny), oferując nowatorskie podejście do przedklinicznych badań nad czerniakiem i oceny terapii.
Artykuł metodologiczny
Rezonans paramagnetyczny elektronowy pasma X do monitorowania zmian radykalnych związanych z melaniną w ksenograftach melanomu rybki zebry in vivo
W tym artykule
Podsumowanie
Streszczenie
Ten protokół przedstawia nową in vivo aplikację spektroskopii rezonansu paramagnetycznego elektronu w paśmie X (9,5 GHz) do monitorowania dynamiki rodników związanych z melaniną w modelach ksenotransplantacji melanomów na rybkach Danio (Danio rerio). Celem tej metody jest umożliwienie bezpośredniej, bezznacznikowej i ilościowej oceny zmian redoks związanych z melaniną podczas rozwoju embrionalnego oraz interakcji guz-gospodarz w fizjologicznie odpowiednim modelu kręgowców.
Wykorzystując właściwości paramagnetyczne melaniny, podejście to zapewnia uzupełniające informacje biochemiczne, które nie można uzyskać jedynie przy użyciu konwencjonalnych obrazów opartych na fluorescencji. Co ważne, wykryty sygnał rezonansu paramagnetycznego elektronu odzwierciedla redoksowo czynny ułamek polimeru melaniny, a zatem służy jako wskaźnik czuły na redoks, a nie bezpośrednie miara całkowitej obfitości pigmentu.
Wydajność metody została zweryfikowana poprzez selektywne wykrywanie rodników związanych z melaniną w ubarwionych embrionach typu dzikiego, brak sygnału w kontrolach albinosów, statystycznie istotne zmiany rozwojowe w znormalizowanym sygnale rezonansu paramagnetycznego elektronu w niezależnych replikowanych biologicznie oraz porównywalne wyniki uzyskane przy użyciu alternatywnych uchwytów próbek i zamrożonych próbek.
Łącząc spektroskopię rezonansu paramagnetycznego elektronu w paśmie X z modelami ksenotransplantacji na rybkach Danio, ten protokół zapewnia skalowalną, etycznie korzystną i transferowalną platformę do przedklinicznych badań nad rakiem czerniakowym, badań nad biologią redoks oraz oceny interwencji modyfikujących melanogenezę.
Wprowadzenie
Ogólnym celem tego badania jest opracowanie i zweryfikowanie niezawodnej metody in vivo do wykrywania i ilościowego oznaczania wolnych cząstek melaniny w modelu ksenograftu zarodków rybki labiryntowej (Danio rerio) w połączeniu ze spektroskopią rezonansu paramagnetycznego elektronu w paśmie X (9,5 GHz). Podejście to ma na celu umożliwienie bezpośredniej, ilościowej oceny procesów redoks związanych z melaniną podczas rozwoju czerniaka i w odpowiedzi na interwencje farmakologiczne.
Melanina jest heterogeniczną grupą biopolimerów odpowiedzialnych za pigmentację skóry, włosów i oczu w szerokim zakresie organizmów. Wśród jej form, eumelanina i feomelanina odgrywają odrębne role w biologii. Eumelanina wykazuje właściwości przeciwutleniające i fotoochronne, podczas gdy feomelanina może promować generowanie reaktywnych form tlenu (ROS), szczególnie pod wpływem ekspozycji na promieniowanie UV1,2,3. Zarówno działanie przeciwutleniające, jak i prooksydacyjne są związane z tworzeniem wolnych cząstek melaniny. Na poziomie molekularnym melanina jest heterogenicznym, aktywnym redoxowo polimerem złożonym z podjednostek indolowych i zawierających chinony, które mogą występować w wielu stanach fizykochemicznych, w tym w całkowicie utlenionym chinonie, częściowo zredukowanym półchinonie i całkowicie zredukowanym hydrochinonie4,5,6. Względna obfitość gatunków półchinonowych jest dynamiczna i zależy od lokalnych warunków fizykochemicznych, w tym dostępności tlenu, reaktywnych form tlenu (ROS), interakcji z jonami metali, pH, stopnia polimeryzacji i dojrzewania melanosomów7,8,9.
Dlatego potrzebne są metody umożliwiające ilościową ocenę tych stężeń wolnych cząstek dla lepszego zrozumienia zmian w stanie redoks melaniny. W czerniaku dysregulacja melanogenezy w melanocytach przyczynia się do inicjacji i postępu nowotworu. Ta dysregulacja jest często związana ze zmianami stanu redoks, zależnymi od lokalnych warunków mikrośrodowiska. Oznacza to, że aktywność redoks melaniny jest ważnym czynnikiem w biologii nowotworów10. Dlatego metody umożliwiające bezpośrednie ocena wolnych cząstek melaniny są niezbędne do zrozumienia patogenezy czerniaka i odpowiedzi terapeutycznej.
Zarodka rybki labiryntowej stanowią potężny model in vivo do badania pigmentacji i czerniaka. Do 5 dni po zapłodnieniu (120 godzin po zapłodnieniu, hpf), nie są klasyfikowane jako zwierzęta chronione na mocy Dyrektywy 2010/63/UE, co pozwala na przeprowadzanie eksperymentów wysokoszkalowych bez formalnej aprobaty etycznej. Szybki rozwój, przejrzystość optyczna i ustalone protokoły sprawiają, że rybki te są bardzo nadające się do badań toksykologicznych i farmakologicznych11,12. Co ważne, ta ryba dzieli znaczne podobieństwa genetyczne i fizjologiczne z ludźmi, a kluczowe szlaki zaangażowane w melanogenezę są zachowane13. Podczas gdy rybki labiryntowe typu dzikiego produkują głównie eumelaninę i służą jako model fizjologicznej pigmentacji, modele ksenograftu—oparte na implantacji linii komórek czerniaka, które produkują eumelaninę i feomelaninę—umożliwiają badanie progresji nowotworu u ssaków i reakcji na leki w fizjologicznie odpowiednim mikrośrodowisku14,15.
Obecnie obrazowanie oparte na fluorescencji jest standardową metodą stosowaną w badaniach ksenograftów czerniaka na rybkach labiryntowych. Podejście to pozwala na wizualizację w czasie rzeczywistym wzrostu guza, migracji i odpowiedzi na leczenie poprzez fluorescujące barwniki, np. dichlorodihydrofluoresceina diacetat (DCFDA) lub linie transgeniczne (Grx1-roGFP2, HyPer)16,17. Jednak techniki fluorescencyjne dostarczają głównie informacji morfologicznych i przestrzennych i są ograniczone w ich zdolności do rejestrowania procesów biochemicznych i związanych z redoks. Dodatkowo, ich wyniki mogą być wpłynięte przez fotobleaching, wycieki barwników, interferencję ze strony fluorescencyjnych związków leków i potencjalne zmiany w fizjologii komórki spowodowane znakowaniem. Krytycznie, metody oparte na fluorescencji nie dostarczają bezpośrednich informacji o wolnych cząstkach melaniny lub ich dynamicznym zachowaniu redoks.
Spektroskopia rezonansu paramagnetycznego elektronu oferuje unikalne i potężne podejście analityczne, ponieważ umożliwia bezpośrednie wykrywanie i ilościowe oznaczanie gatunków paramagnetycznych, w tym stabilnych wolnych cząstek związanych z melaniną. Zarówno eumelanina, jak i feomelanina zawierają fragmenty półchinonowe, które generują charakterystyczne sygnały rezonansu paramagnetycznego elektronu, a względna wkład tych sygnałów został zbadany jako biomarker statusu pigmentacji i postępu czerniaka18,19. Co ważne, ponieważ tylko redoks-aktywna frakcja półchinonu w
Protokół
Zarodki rybki zebrowej (Danio rerio) zostały użyte w tym badaniu do 5 dni po zapłodnieniu (120 hpf). Na tym etapie rozwoju zarodki nie są uważane za zwierzęta chronione zgodnie z Dyrektywą 2010/63/UE i dlatego eksperymenty nie wymagają formalnej autoryzacji przez komitet etyczny. Niemniej jednak cała praca została przeprowadzona zgodnie z dobrymi praktykami laboratoryjnymi i instytucjonalnymi wytycznymi dotyczącymi opieki nad rybkami zebrowymi i ich wykorzystania.
1. Przygotowanie reagentów i utrzymanie linii komórek melanomowych myszy B16F1 i B16F10
- Przygotowanie pełnego pożywki
- Dodaj 50 mL surowicy płodowej bydlęcej (FBS) i 5,5 mL roztworu penicyliny-streptomycyny do 500 mL pożywki Dulbecco's Modified Eagle Medium (DMEM).
- Podgrzej pełny medium do 37 °C przed użyciem.
UWAGA: Używaj podgrzanych roztworów, aby zminimalizować stres termiczny podczas manipulacji komórkami.
- Odtapianie i rozpoczęcie kultury z mrożonych komórek
- Szybko odtapiaj zamrożoną fiolkę z komórkami w łaźni wodnej o temperaturze 37 °C (~1-2 min).
- Zdezynfekuj zewnętrzną część fiolki 70% etanolem. Przeprowadzaj wszystkie kolejne kroki w warunkach aseptycznych.
- Przenieś zawiesinę komórek do 15 mL stożkowego probówki zawierającej 9 mL podgrzanego pełnego medium. Zachowaj małą alikwotę oryginalnej zawiesiny do testowania na obecność mikoplazm.
- Centryfuguj komórki w probówce 15 mL przy 200 × g przez 5 min w temperaturze pokojowej.
- Wyssij nadstan do usunięcia resztkowego siarczku dymetylowego (DMSO; z medium do zamrażania).
- Resuspenduj pellet komórek w 10 mL świeżego i podgrzanego pełnego medium.
- Przenieś komórki do miski Petriego o średnicy 9 cm i delikatnie obróć w figurę ósemkę, aby równomiernie rozdysponować komórki.
- Inkubauj komórki w 37 °C, 5% CO2 i ≥95% wilgotności przez noc.
- Zamień medium kulturowe na świeże, podgrzewane pełne medium po 16-24 h.
- Kontynuuj inkubację, aż komórki osiągną >80% stężenie. Przejdź do podrastania (zobacz krok 1.3).
UWAGA: Alternatywnie do misiek Petriego można używać sterylnych naczyń kulturowych (np. kolb T). Jeśli preferowane są mniejsze naczynia lub kolby, podziel komórki proporcjonalnie, aby zachować tę samą względną powierzchnię kultury.
- Podrastanie komórek
- Usuń medium kulturowe z monowarstwy komórek. Zachowaj małą alikwotę do testowania na obecność mikoplazm.
- Dodaj 10 mL buforu fosforanowego (PBS) do miski kulturowej.
- Pozwól buforowi PBS działać na komórkach w temperaturze pokojowej przez 3-5 min, aby całkowicie usunąć białka surowicy.
- Delikatnie wyssij PBS, uważając, aby nie oderwać komórek.
- Dodaj 1 mL reagentu dysocjacji komórek i inkubauj w 37 °C, aż komórki się zaokrąglą i oderwą (nie przekraczaj 5 min czasu inkubacji).
- Dodaj 1 mL podgrzanego pełnego medium, aby zatrzymać enzymatyczną dysocjację.
- Delikatnie pipetuj zawiesinę komórek w górę i w dół kilka razy, aby uzyskać jednokomórkową zawiesinę.
- Przenieś komórki do nowej miski Petriego lub kolby T zawierającej podgrzewane pełne medium w proporcji podziału 1:4 do 1:10. Delikatnie obróć w figurę ósemkę, aby równomiernie rozdysponować komórki.
- Inkubauj komórki w 37 °C, 5% CO2 i ≥95% wilgotności.
UWAGA: Używaj podgrzanych roztworów (37 °C) i przeprowadzaj wszystkie procedury w warunkach aseptycznych w szafce bezpieczeństwa biologicznego klasy II, zakładając odpowiedni sprzęt ochronny. Przeprowadzaj podrastanie komórek co 2-3 dni lub przy 80-90% stężeniu. Używaj komórek o niskim przebiegu (mniej niż P20 po odtapieniu), zapisuj numer przebiegu i rutynowo monitoruj kultury pod kątem skażenia i zmian morfologicznych.
- Kriopreservacja (bankowanie) komórek
- Użyj zdrowych, eksponentialnie rosnących komórek (ok. 70-80% stężenie).
- Zbierz komórki zgodnie z krokami 1.3.1-1.3.7 i przenieś zawiesinę komórek do 15 mL stożkowej probówki.
- Centryfuguj komórki przy 300 × g przez 2 min.
- Wyssuj nadstan i resuspenduj komórki w medium krioprezerwacyjnym w stężeniu 1-5 × 10⁶ komórek/mL.
- Przenieś zawiesinę komórek do etykietowanych fiolek kriogenicznych (linia komórkowa, numer przebiegu, data).
- Zamroż fjolki przez noc w -80 °C za pomocą pojemnika do kontrolowanego zamrażania.
- Jako alternatywę można zastosować metodę izolacji gniazdową: umieść fjolki
Wyniki
Schematyczne przedstawienie przepływu eksperymentu przedstawiono na Rysunku 1. Zarodki rybki labiryntowej zebrano, przeszczepiono im komórki melanoma B16F10, inkubowano je w kontrolowanych warunkach i obserwowano za pomocą mikroskopii jasnopolowej lub fluorescencyjnej przed analizą rezonansem paramagnetycznym elektronowym w paśmie X. Żywe zarodki następnie umieszczono w płaskim naczyńku/trzymaku próbki do całoorganizmowych pomiarów rezonansu paramagnetycznego elektronów, umożliwiających nieinwazyjne wykrywanie sygnałów powiązanych z melaniną. Po zdobyciu danych rezonansu paramagnetycznego elektronowym zarodki uwolniono do świeżego medium E3, co pozwoliło na przeprowadzenie pomiarów podłużnych na tych samych biologicznych próbkach.
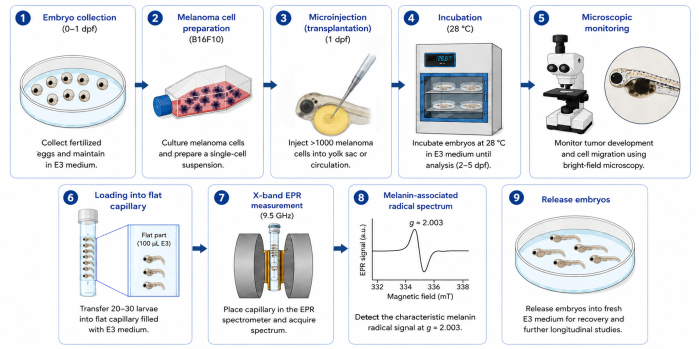
Rysunek 1: Graficzne przedstawienie przepływu eksperymentu na potrzeby in vivo monitorowania powiązanych z melaniną rodników w ksenograftach melanomowych rybki labiryntowej za pomocą spektroskopii rezonansu paramagnetycznego elektronowego w paśmie X (EPR). Zarodki rybki labiryntowej są zbierane, przeszczepiono im komórki melanoma, inkubowane i obserwowane mikroskopicznie przed załadowaniem do niestandardowego płaskiego naczynka do całoorganizmowych pomiarów EPR. Po wykryciu charakterystycznego sygnału powiązanego z melaniną (g ≈ 2,003), larwy uwalniane są na dalsze pomiary podłużne. Prosimy kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
Aby zweryfikować specyficzność metody, pomiary przeprowadzono na zarodkach rybki labiryntowej typu dzikiego (WT) i albinosów. Zarodki typu dzikiego zaczynają rozwijać widoczną pigmentację około 27 hpf. Odpowiednio, widma rezonansu paramagnetycznego elektronowego uzyskane od zarodków typu dzikiego wykazują charakterystyczny sygnał jednoliniowy skoncentrowany przy g ≈ 2,003, zgodny z pochodzącymi z eumelaniny rodnikami półchinonowymi (np. DHI/DHICA). W przeciwieństwie do tego, zarodki albinosów, które nie mają funkcjonalnej syntezy melaniny, nie wykazują wykrywalnego sygnału rezonansu paramagnetycznego elektronowego w tej samej częstotliwości nawet po 5 dniach po zapłodnieniu (dpf). Potwierdza to, że obserwowany sygnał pochodzi specyficznie od rodników melaniny i reprezentuje ujemną kontrolę zweryfikowaną selektywnością metody (Rysunek 2).
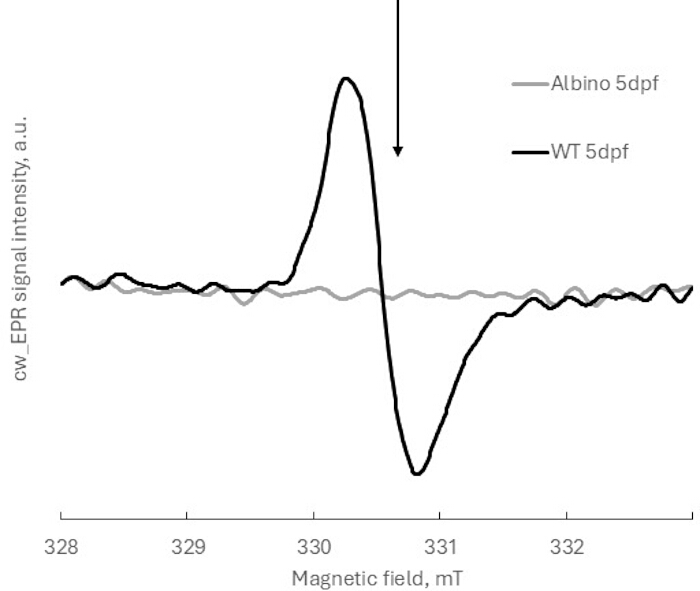
Rysunek 2: Reprezentatywne widma rezonansu paramagnetycznego elektronowego w paśmie X zarodków rybki labiryntowej typu dzikiego (WT) i albinosów w wieku 5 dpf. Strzałka wskazuje na pozycję rezonansu (g ≈ 2,003) sygnału powiązanego z melaniną od zarodków typu dzikiego w wieku 5 dpf. Prosimy kliknąć tutaj, aby zobaczyć większą wersję tego rysunku.
Metoda umożliwia ilościowe monitorowanie tworzenia się rodników melaniny podczas rozwoju. W miarę postępu pigmentacji obserwuje się wyraźny wzrost intensywności sygnału rezonansu paramagnetycznego elektronowego. Porównanie zarodków typu dzikiego z 2 dpf do 5 dpf wykazuje znaczny wzrost podwójnie zintegrowanego sygnału rezonansu paramagnetycznego elektronowego znormalizowanego na jeden zarodek. Normalizacja została przeprowadzona przez podzielenie surowych intensywności sygnałów rezonansu paramagnetycznego elektronowego przez liczbę zarodków w próbce przed obliczeniem podwójnej integrali (Rysunek 3A).
Analizę statystyczną przeprowadzono za pomocą testu Kruskala-Wallisa, a następnie testu Dunna na wiele porównań. Analiza sześciu niezależnych replik biologicznych (każda zawierająca 7-10 zarodków) wykazała statystycznie istotne różnice w znormalizowanym sygnale rezonansu paramagnetycznego elektronowego między etapami rozwoju (p < 0,05), co potwierdza czułość metody.
Podwójna integrala widm rezonansu paramagnetycznego elektronowego jest proporcjonalna do liczby niesparowanych spinów elektronowych. W ten sposób jego wzrost wskazuje na wzrost populacji rodników powiązanych z melaniną podczas rozwoju. Co ważne, ten wzrost prawdopodobnie odzwierciedla zmiany w równowadze redoks melaniny związane z progresywną melanogenezą, a nie tylko akumulacją pigmentu.
Powtarzalność protokołu oceniono dalsze porównując reprezentatywne widma rezonansu paramagnetycznego elektronowego uzyskane od próbek zawierających różną liczbę zarodków (7 versus 10) na tym samym etapie rozwoju (5 dpf). Jak się spodziewało, surowe widma wykazywały różnice w amplitudzie sygnału proporcjonalne do wielkości próbki (Rysunek 3B). Po normalizacji każdego widma do liczby zarodków na próbkę, widma pokrywały się prawie w całości (Rysunek 3C), a zmienność między partami pozostawała poniżej 10%. Wyniki te podkreślają znaczenie normalizacji na jeden zarodek i potwier
Dyskusja
Niniejsze badanie przedstawia solidny i wrażliwy protokół do in vivo wykrywania rodników związanych z melaniną w zarodkach rybki labiryntowej dzięki spektroskopii rezonansów paramagnetycznych w paśmie X. Metoda umożliwia nieinwazyjne, bezznacznikowe monitorowanie zmian redoks związanych z melaniną podczas fizjologicznego melanogenezy, rozwoju przeszczepów melanoma oraz interwencji farmakologicznej. Łącząc wysoką czułość spektroskopii rezonansów paramagnetycznych w paśmie X z platformą przeszczepów rybki labiryntowej, podejście to poszerza możliwości analityczne obecnych modeli melanoma u rybki labiryntowej poza konwencjonalne obrazy morfologiczne w kierunku bezpośredniej biochemicznej charakterystyki rodników melaniny.
Przedstawiony przepływ ma szerokie zastosowanie w badaniach nad pigmentacją i melanoma. Potencjalne zastosowania obejmują ocenę terapii przeciwmelanomowych, badanie zmian wywołanych lekami w równowadze redoks, ocenę związków modyfikujących melanogenezę, takich jak środki depigmentujące lub reagujące na promieniowanie UV oraz analizę interakcji guz-gospodarz in vivo. Ponadto integracja z obrazowaniem fluorescencyjnym i innymi badaniami fenotypowymi może zapewnić multimodalną platformę łączącą informacje przestrzenne, morfologiczne i biochemiczne, zwiększając w ten sposób wartość predykcyjną modeli rybki labiryntowej w badaniach przedklinicznych i rozwoju terapii.
Kilka parametrów eksperymentalnych jest kluczowych dla uzyskania wiarygodnych wyników. W eksperymentach przeszczepowych wstrzyknięcie do krążenia zapewniało bardziej spójne przeszczepienie i bardziej powtarzalne pomiary rezonansów paramagnetycznych niż wstrzyknięcie do worka żółtkowego, co jest zgodne z poprzednimi badaniami29,30. Wybór temperatury inkubacji odgrywa ważną rolę. Podczas gdy przeszczepy rybki labiryntowej mogą być zazwyczaj utrzymywane w 32 °C, aby sprzyjać kinetce komórek ssaczych31, użyte w tym badaniu linie melanoma B16F10 mysiej wyglądają wystarczająco agresywnie, aby wykazać mocne zdolności proliferacyjne i migracyjne w 28 °C. Ponieważ środowisko 32 °C mogłoby znacząco przyspieszyć rozwój rybki labiryntowej – potencjalnie prowadząc do niezależnego zachowania żywieniowego przed piątym dniem po zapłodnieniu – utrzymanie larw w 28 °C zapewniłoby, że organizmy pozostaną w niechronionych stadiach rozwojowych32. W konsekwencji, wybór tej temperatury mógłby pozwolić na pomyślne obserwowanie progresji guza i przerzutów, zachowując jednocześnie zgodność z przepisami dotyczącymi opieki nad zwierzętami, które chronią larwy po osiągnięciu niezależnego stadium żywienia. Innym istotnym punktem jest to, że dokładna normalizacja do liczby zarodków i spójne ustalenie stadiów rozwojowych są niezbędne do zminimalizowania zmienności biologicznej. Słabe lub niekonsekwentne sygnały mogą wynikać z niedostatecznego pigmentowania, niskiego obciążenia guza, nieoptymalnego umieszczenia próbki w rezonatorze lub niepełnego napełnienia naczyń włosowatych. W takich przypadkach zwiększenie liczby zarodków na próbkę, optymalizacja efektywności transplantacji i weryfikacja umieszczenia próbki w aktywnej objętości rezonatora mogą poprawić wykrywanie sygnału. Wyższa liczba zarodków jest wymagana dla pomiarów in vivo w płaskim naczyńku z powodu strat dielektrycznych i zmniejszonego współczynnika wypełnienia związanego z pomiarami całych organizmów w wodnych próbkach biologicznych. Mimo to, ta metoda może być stosowana z standardowymi naczyniami ex vivo. Te ustalenia pokazują, że protokół jest zgodny z powszechnie dostępnymi konfiguracjami spektroskopii rezonansów paramagnetycznych w paśmie X i wspiera opóźnioną analizę ex vivo, zwiększając dostępność i powtarzalność w laboratoriach korzystających z różnego rodzaju sprzętu.
Mimo swoich zalet, metoda ma kilka ograniczeń. Ważną kwestią biologiczną jest fakt, że wykryty sygnał rezonansów paramagnetycznych odzwierciedla frakcję redoks polimeru melaniny, a nie samą zawartość pigmentu15,21,33. W związku z tym zmiany w intensywności sygnału rezonansów paramagnetycznych należy interpretować jako zmiany w równowadze redoks związanej z melaniną, a nie jako bezpośredni surogat obfitości melaniny. Eksperymenty z przeszczepami albinosów wykazały ponadto, że w obecnych warunkach eksperymentalnych liczba wstrzykniętych komórek melanoma znajdowała się poniżej progu bezpośredniego wykrycia spektroskopii rezonansów paramagnetycznych w paśmie X. Dlatego też sygnał całego organizmu wykryty w larwach przeszczepowych odzwierciedla przede wszystkim globalne zmiany w powiązanym z melaniną stanie redoks gospodarza wywołane interakcjami guz-gospodarz, a nie sygnał specyficzny dla melanoma pochodzący wyłącznie z przeszczepu. Co ważne, środowisko rybki labiryntowej wprowadza dynamiczne gradienty tlenu, interakcje metaboliczne i warunki stresu oksydacyjnego, które mogą dodatkowo modyfikować populacje rodników melaniny in vivo19,20. W zastosowaniach przeszczepowych, metoda jest obecnie o
Oświadczenia
Autor Mikołaj Baranowski jest zatrudniony przez Novilet, która produkuje komponenty spektrometru używanego w tym badaniu (wieloharmoniczny analizator). Pozostali autorzy deklarują brak konfliktu interesów.
Podziękowania
Projekt „Nowy kapilat i metoda wyznaczania rodnika melaniny do stosowania w badaniach przedklinicznych potencjalnych leków na czerniaka w modelu zarodka Danio rerio” FENG.02.07-IP.05-0059/23 został przeprowadzony w ramach programu FENG POC Fundacji na rzecz Nauki Polskiej, współfinansowanego przez Unię Europejską ze środków Europejskich Funduszy na rzecz Inteligentnej Gospodarki 2021–2027 (FENG). Badania te były wspierane przez Unię Europejską w ramach Programu Operacyjnego Inteligentny Rozwój (numer projektu POIR.01.02.00-00-0077/18).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1.5 mL or 0.5 mL eppendorf tubes | Eppendorf | 0030120086, 0030121023 | Do przenoszenia larw daniosza do włosówka |
| 3 mL disposable Pasteur pipettes | Medlab Products | 76-1303-2 | Do sortowania i przenoszenia zarodków i larw |
| Benchtop X-band EPR spectrometer MiniScope MS200 | Magnettech | Bruker.com | Rejestracja widm EPR |
| Calcium chloride, dihydrate | Chempur | 363-118748706 | Do przygotowania pożywki E3 |
| Cell counting slides (e.g., EVE or EVE PLUS) | Nanoentek Inc | NC2200445 | Do licznika komórek |
| CellTracker Green | Thermo Fisher | C2925 | Fluorescencyjny barwnik do śledzenia komórek, do oznaczania komórek |
| CM-DiI | Thermo Fisher | C7000 | Fluorescencyjny barwnik do śledzenia komórek, do oznaczania komórek |
| CO2 incubator ICO240med | Memmert | N/A | Do utrzymania komórek, ustawiony na 37°C, 5% CO2, ≥95% wilgotność |
| Countess II Automated Cell Counter | Invitrogen | AMQAX1000 | Do liczenia komórek i gęstość komórek |
| Cryogenic storage boxes CryoKING | Biologix | BGX-ID81 | Do przechowywania danioszy z przeszczepami |
| Cryopreservation medium CM-1 | Cytion | #800150 | Do zamrażania komórek rakowych |
| Dulbecco's Modified Eagle Medium (DMEM), high glucose, glutamine, without sodium pyruvate | Gibco | #11965-092 | Do utrzymywania kultur komórek |
| E3 medium | In house | N/A | Do utrzymywania zarodków/larw daniosza, przygotowane zgodnie z Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Egg incubator | Incubato | 10130024 | Do inkubacji zarodków/larw daniosza, ustawiony na 28–32°C |
| eSpect+ software | Novilet | https://novilet.eu/products/espect/ | Do analizy wieloharmonicznej |
| Fetal Bovine Serum (FBS) | Gibco | A5256701 | Dodatek do DMEM |
| Fine forceps, ceramic coated, Dumont #5, 11 cm | Dumont SA | 11252-50 | Do dechorionacji zarodków daniosza |
| Flat glass capillaries designed for zebrafish (Application No.: 21 736) | N/A | N/A | Do pomiarów EPR zarodków daniosza |
| Glass capillary needles | Harvard Apparatus | GB100-10 | Bez żadnego filamentu, do wstrzykiwań mikro |
| Hematocrit capillaries (BRAND disposable BLAUBRAND micropipettes), volume 50 and 100 μL | BRAND | 41121500 | Do pomiarów EPR lub do przenoszenia larw daniosza do włosówka |
| Magnesium chloride, hexahydrate | Chempur | 363-116120500 | Do przygotowania pożywki E3 |
| Microinjection system with micromanipulator FemtoJet | Eppendorf | EPE5252000021 | Do ładowania komórek do mikroigieł |
| Microloader tips for needle loading | Eppendorf | #5242956003 | Do systemu wstrzykiwań mikro |
| Mouse melanoma cell line B16-F1 | Cytion | CLS-400122 | Do przeszczepów |
| Mouse melanoma cell line B16-F10 | Cytion | 305157 | Do przeszczepów |
| Multiharmonic analyser eSpect+ | Novilet | https://novilet.eu/products/espect/ | Do spektrometru EPR, w celu zwiększenia czułości |
| Penicillin-Streptomycin solution | Sigma | P0781-50ml | Opcjonalnie, dodatek do DMEM do kultury komórek |
| Petri dish, 55 mm | Medlab Products | 51-0056-0A-NX | Do inkubacji jajek, zarodków i larw daniosza |
| Phosphate Buffered Saline (PBS), calcium and magnesium free | Sigma | D8537-500ml | Do płukania komórek |
| Potassium chloride | Chempur | 363-117397402 | Do przygotowania pożywki E3 |
| Sealing kit for hematocrit capillaries - Critoseal | Noxygen | NOX-A.3-VPC | Do pomiarów EPR zarodków daniosza |
| Sodium chloride | Chempur | 363-117941206 | Do przygotowania pożywki E3 |
| Static Storage Liquid Nitrogen Container | Biobase | YDS-47-127-FS | Do przechowywania kultur komórek |
| Stereomicroscope | Optatech | SK Series | Do oceny rozwoju zarodków daniosza |
| Sterile 15 mL Falcon tubes | SPL Life Sciences | S50015 | Do zbioru komórek (wirowanie) |
| Sterile 90 nm Petri dishes | Googlab Scientific | GP508 | Do kultur komórek |
| Sterile cryovials: CryoPure Tube 1.0 mL | Sarstedt | 72.377 | Do zamrażania komórek |
| Tissue culture sterile Pasteur pipettes (Corning Falcon Serological Pipettes), volume 5, 10, 25 mL | Corning | 357543, 356551, 356535 | Do kultur komórek |
| Tricaine (MS-222) | Sigma | 886-86-2 | Świeżo przygotowane rozwiązanie 4 g/L, do znieczulenia i eutanazji daniosza |
| TrypLE Express (1×) or Trypsin-EDTA (0.05%) | Gibco | #12605-010 | Do odczepiania komórek podczas przesadzania |
| Water bath Precision GP 05 | Thermo Scientific | N/A | Ustawiony na 37 °C, do podgrzewania |
Bibliografia
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Przedruki i uprawnienia
Przeglądaj więcej artykułów
Ten artykuł został opublikowany
Film wkrótce dostępny