Za pomocą modelu eksplantacji ex vivo, małe fragmenty części rostralnej tkanki tłuszczowej białej trzewnej od szczupłych myszy są hodowane przez 7–10 dni, co umożliwia indukcję i badanie zapalenia tkanki tłuszczowej, jak to ma miejsce podczas karmienia dietą wysokotłuszczową.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ex vivo model myszy na zapaleniu tkanki tłuszczowej podobnym do diety wysoko tłuszczowej
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Ten protokół opisuje ex vivo model myszy, który odzwierciedla wybrane cechy komórkowe i zapalne obserwowane w tkance tłuszczowej trzewnej (VAT) po karmieniu wysokotłuszczową dietą (HFD), bez interwencji dietetycznej in vivo. Małe eksplantaty VAT od myszy szczupłych są kultywowane przez 7–10 dni, podczas których spontanicznie rozwijają fenotypową odpowiedź zapalną, która ściśle przypomina VAT od zwierząt karmionych dietą HFD. Co ważne, model zachowuje architekturę tkanki tłuszczowej (AT), umożliwiając badanie procesów zapalnych w fizjologicznie istotnym kontekście. Podczas hodowlania pojawiają się kluczowe cechy zapalenia związanego z otyłością, w tym tworzenie struktur przypominających koronę (CLS), akumulacja metabolicznie aktywowanych makrofagów (MMes) oraz zwiększona produkcja cytokin zapalnych. Pomimo śmierci adipocytów, inne czynniki zapalenia związanego z otyłością, takie jak stresory metaboliczne, takie jak nasycone kwasy tłuszczowe, zmieniona obsługa lipidów, nadmiar glukozy, stres oksydacyjny, niedotlenienie, brak równowagi adypokin oraz parakrynna stymulacja adipocytów i komórek odpornościowych, mogą być częściowo reprezentowane w modelu. System obsługuje szeroki zakres zastosowań wtórnych, w tym obrazowanie na żywo, cytometrię przepływową, ilościową PCR, ELISA, immunobarwienie oraz sekwencjonowanie RNA z grup komórek lub pojedynczych komórek. Ponadto, farmakologiczne i cytokine-oparte terapie mogą być stosowane w celu zbadania szlaków sygnałowych i odpowiedzi specyficznych dla typu komórki. Ten łatwo modyfikowalny model jest zgodny z zasadami 3R poprzez redukcję użycia zwierząt w badaniach dietetycznych in vivo. Model jest powtarzalny, opłacalny i prosty w implementacji, zapewniając wszechstronną platformę do badania śmierci adipocytów, dynamiki komórek odpornościowych oraz strategii terapeutycznych w zapaleniu AT.
Wprowadzenie
Tkanka tłuszczowa (AT) jest metabolicznie aktywnym organem składającym się u ludzi z około 20% adipocytów oraz heterogenicznej mieszaniny komórek odpornościowych, fibroblastów, komórek progenitorowych i komórek naczyniowych1. Tkankę tłuszczową klasyfikuje się na jednobąblową białą tkankę tłuszczową (WAT), wielobąblową brunatną tkankę tłuszczową (BAT) oraz pośrednią beżową tkankę tłuszczową, co odzwierciedla heterogeniczność pod względem składu, funkcji i lokalizacji anatomicznej. WAT jest rozmieszczona w depotach podskórnych (SCAT), trzewnych (VAT), okołonaczyniowych i szpikowych, które różnią się pochodzeniem rozwojowym, profilami ekspresji genów oraz funkcją metaboliczną. Poza rolą w magazynowaniu lipidów, AT pełni funkcję organu endokrynnego poprzez wydzielanie cytokin, hormonów i adipokin2. W porównaniu z SCAT, VAT jest bardziej aktywna metabolicznie i bogatsza w komórki zapalne, co czyni ją szczególnie istotną w badaniach nad stanami zapalnymi AT i chorobami metabolicznymi, takimi jak cukrzyca typu 23,4,5.
Tkanka tłuszczowa (AT) jest kluczowym regulatorem zdrowia metabolicznego i odgrywa centralną rolę w otyłości, która wiąże się z licznymi chorobami współistniejącymi. Otyłość sprzyja hipertrofii, hiperplazji i proliferacji adipocytów6, podczas gdy ekspansja i zapalenie AT silnie korelują z hiperglikemią, hiperinsulinemią, hipertriglicerydemią oraz zaburzoną tolerancją glukozy3. Przypuszcza się, że ekspansja AT jest powiązana ze zwiększoną śmiercią adipocytów, przy czym roczna wymiana komórkowa wynosi około 10%7, co wyzwala rekrutację makrofagów niezbędną do oczyszczania i przebudowy tkanki8. Ponieważ adipocyty są znacznie większe (100–200 µm) od makrofagów, efektywna fagocytoza przez te komórki, będące około pięciokrotnie mniejsze, jest utrudniona, co upośledza homeostazę tkankową i sprzyja przewlekłemu zapaleniu AT9. Makrofagi tkanki tłuszczowej (ATMs) pośredniczą w usuwaniu nadmiernie dużych, obumierających adipocytów, albo poprzez fuzję w wielojądrowe komórki olbrzymie (MGCs), albo poprzez tworzenie struktur przypominających koronę (CLS) wokół martwych adipocytów i degradowanie ich poprzez egzocytozę lizosomalną10,11,12. Liczba struktur CLS koreluje z zapaleniem związanym z otyłością11,13.
W zdrowej tkance tłuszczowej (AT), makrofagi tkanki tłuszczowej (ATMs) to głównie przeciwzapalne makrofagi typu M2, natomiast otyłość sprzyja przesunięciu w stronę prozapalnego fenotypu typu M114,15. Pojawiają się dodatkowe, odrębne mechanistycznie podgrupy makrofagów, w tym makrofagi aktywowane metabolicznie (MMes) i makrofagi związane z lipidami (LAMs), które odgrywają istotną rolę w usuwaniu martwych adipocytów poprzez egzocytozę lizosomalną16,17,18.
Aby zbadać stan zapalny tkanki tłuszczowej w fizjologicznie istotnym środowisku wielokomórkowym, w protokole opracowano model mysi ex vivo oparty na organotypowych kulturach eksplantów VAT pochodzących od szczupłych myszy. Eksplanty VAT hodowane przez 7–10 dni wykazują fenotyp zapalny porównywalny z tym obserwowanym po co najmniej 12 tygodniach żywienia dietą wysokotłuszczową (HFD) pod względem tworzenia się CLS, fenotypu makrofagów oraz produkcji cytokin zapalnych9,19. Co istotne, podejście to ogranicza liczbę wykorzystywanych zwierząt, eliminuje konieczność uzyskiwania zgód na interwencje dietetyczne i przyczynia się do realizacji zasad 3R poprzez zmniejszenie zależności od długoterminowych badań nad interwencjami dietetycznymi. W porównaniu z konwencjonalnymi dwuwymiarowymi (2D) systemami hodowli komórkowych, takimi jak modele hodowli pojedynczych komórek (np. komórki 3T3-L1 lub pierwotne hodowle adipocytów), metoda ta zachowuje złożoność tkanki i różnorodność komórkową, umożliwiając tym samym badanie fizjologicznych oddziaływań międzykomórkowych, w tym interakcji między komórkami odpornościowymi a adipocytami.
Hodowlane eksplanty AT są kompatybilne z szerokim zakresem podejść analitycznych. Obrazowanie konfokalne żywych komórek umożliwia monitorowanie akumulacji ATM, tworzenia się CLS oraz powstawania MGC9,19. Trawienie kolagenazą pozwala na izolację frakcji naczyniowo-zrębowej (SVF) do analiz cytometrycznych, w tym testów proliferacji oraz określania fenotypów typu M1, M2 lub MMe12. Analizy ekspresji genów, w tym ilościowy PCR (qPCR) i sekwencjonowanie RNA, mogą być przeprowadzane na całych eksplantach, komórkach SVF lub posortowanych makrofagach9. Ekspresję białek i aktywność enzymatyczną można oceniać za pomocą Western blottingu lub testu ELISA12,20,21, natomiast architekturę tkanki i ekspresję markerów można wizualizować poprzez barwienie całych preparatów (whole-mount staining) oraz immunofluorescencję9,22. Ponadto łatwo jest przeprowadzać interwencje farmakologiczne i genetyczne, w tym deplecję ATM oraz traktowanie cytokinami21,23,24.
Podsumowując, ten model ex vivo stanu zapalnego tkanki tłuszczowej u myszy, przypominający model HFD, umożliwia badanie śmierci adipocytów, bezpośrednią obserwację zachowania komórkowego in situ oraz manipulacje farmakologiczne lub genetyczne istotne dla immunologii tkanki tłuszczowej (Rycina 1).
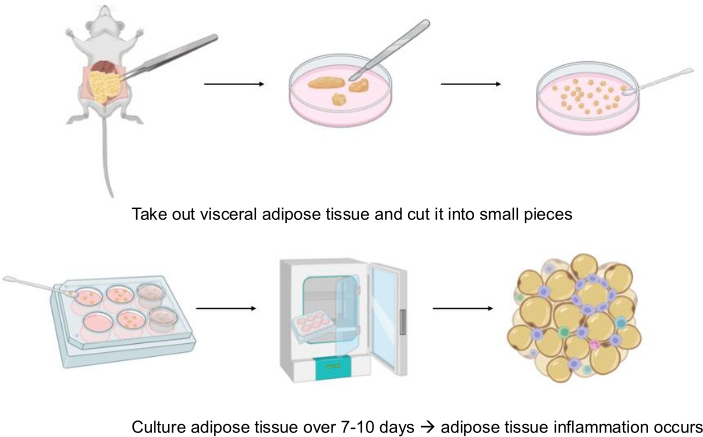
Rysunek 1: Graficzne podsumowanie przebiegu prac. Trzewna tkanka tłuszczowa (AT) jest izolowana od myszy, cięta na małe eksplantaty i hodowana przez 7–10 dni. W okresie hodowli eksplantaty wykształcają fenotyp zapalny, co umożliwia badanie stanu zapalnego tkanki tłuszczowej w kontrolowanych warunkach ex vivo. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Doświadczenia na zwierzętach przeprowadzono zgodnie z wytycznymi instytucjonalnymi i krajowymi, a protokoły zostały zatwierdzone przez odpowiednie organy regulacyjne. Myszy Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomato („MacFat”, RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549, Adipoq-iCreERT2: RRID:IMSR_JAX:025124, CAG-tdTomato: RRID:IMSR_JAX:007914)27,28 zostały wykorzystane w reprezentatywnych eksperymentach mikroskopowych. Ta linia reporterowa umożliwia wizualizację makrofagów poprzez ekspresję GFP oraz adipocytów poprzez ekspresję tdTomato. Ponieważ ekspresja tdTomato zanika po śmierci adipocytu, można monitorować żywotność adipocytów podczas hodowli. Myszy reporterowe Csf1r-eGFP („MacGreen”, RRID:IMSR_JAX:018549)28 wykorzystano do wizualizacji makrofagów i analizy cytometrii przepływowej. Myszy C57BL/6J (RRID:IMSR_JAX:000664) wykorzystano w eksperymentach niewymagających obrazowania, w tym w analizach scRNA-seq i qPCR. Wszystkie linie transgeniczne utrzymywano jako myszy heterozygotyczne na tle szczepu C57BL/6J.
Doświadczenia na zwierzętach przeprowadzono zgodnie z „Zasadami opieki nad zwierzętami laboratoryjnymi” (publikacja NIH nr 85e23, wersja z 1985 r.) oraz odpowiednimi przepisami krajowymi; zostały one zatwierdzone przez lokalne organy stanu Saksonii: Landesdirektion w Lipsku, Niemcy (wniosek o prowadzenie doświadczeń na zwierzętach: TV11-21-MEZ). Według lokalnych organów opisane eksperymenty nie stanowią testów na zwierzętach, ponieważ stwierdzono, że „jeśli kręgowiec zostaje uśmiercony wyłącznie w celu wykorzystania jego organów lub tkanek do celów naukowych, nie jest to uznawane za testowanie na zwierzętach zgodnie z § 7(2) ustawy o ochronie zwierząt (TierSchG), lecz za uśmiercenie zgodnie z § 4(3) ustawy o ochronie zwierząt (TierSchG)”. Uśmiercenie zwierząt musi zostać zgłoszone w „raporcie dotyczącym zwierząt”. Raport ten jest częścią wniosku o prowadzenie doświadczeń na zwierzętach. Projekty badawcze zostały również zatwierdzone przez komisję etyczną Wydziału Medycyny Uniwersytetu w Lipsku. Zgodnie z wytycznymi wniosku o prowadzenie doświadczeń na zwierzętach TV11-21-MEZ, myszy są poddawane eutanazji poprzez podanie przedawkowania anestetyku wziewnego izofluranu. Skuteczne stężenie gazu (5% w gazie nośnym O₂) jest dostarczane poprzez waporyzator izofluranu. Procedura eutanazji zostaje zakończona po potwierdzeniu ostatecznego zatrzymania krążenia (brak oddechu [test piórkowy] oraz bicia serca [palpacja]).
Myszy utrzymywano w pomieszczeniu z kontrolowaną temperaturą (22 ± 2 °C), wolnym od określonych patogenów, na Uniwersytecie w Lipsku, w grupach rodzeństwa po 3–5 zwierząt, w 12-godzinnym cyklu światła/ciemności. Zwierzęta miały dostęp ad libitum do wody i standardowej karmy (9% kcal tłuszczu; Sniff GmbH, Niemcy). Reprezentatywne eksperymenty przeprowadzono z użyciem myszy samców i samic. Odczynniki, substancje chemiczne i zestawy użyte w protokole są wymienione w Tabeli materiałów.
1. Przygotowania
- Przygotowanie odczynników i sprzętu
- Przygotować pożywkę hodowlaną w warunkach sterylnych, uzupełniając RPMI-1640 o 10% płodowej surowicy bydlęcej (FBS) i 1% roztwór antybiotyków.
- Podgrzać pożywkę hodowlaną oraz sterylny PBS do 37 °C.
- Oczyścić cały sprzęt oraz obszar roboczy wewnątrz komory do hodowli tkanek 70% etanolem.
- Przygotowanie zwierząt
- Uśmiercić myszy zgodnie z wytycznymi instytucjonalnymi. Opcjonalnie zważyć zwierzęta.
- Umieścić zwierzęta w zlewce szklanej zawierającej 70% etanol.
- Przetrzeć zewnętrzną powierzchnię zlewki etanolem i przenieść ją do komory do hodowli tkanek.
2. Izolacja tkanki tłuszczowej (Rycina 2)
- Przygotowanie myszy
- Za pomocą pęsety tępowej umieść mysz w pozycji grzbietnej w szklanym naczyniu lub przymocuj ją szpilkami do deski sekcyjnej.
- Do szalki Petriego dodaj cienką warstwę uprzednio ogrzanego PBS.
- Załóż nową parę rękawiczek.
- Unieś pęsetą skórę w dolnej części brzucha i wykonaj nożyczkami małe poziome nacięcie, aby otworzyć jamę brzusną.
- Wykonaj nacięcie pionowe (~2 cm od strony ogona ku głowie), przedłużając początkie cięcie, aby odsłonić narządy wewnętrzne.
- Izolacja tkanki tłuszczowej
- Za pomocą małych ostrych nożyczek i pęsety z ostrym końcem zlokalizuj i wycięcie białą tkankę tłuszczową. Użyj osobnego zestawu narzędzi, aby zapobiec kontaminacji.
- Samce myszy: Tłuszcz gonadalny jest przytwierdzony tylko do najądrza i jądra. Ostrożnie unieś poduszkę tłuszczową i przetnij powyżej najądrza lub wycięcie najądrze i jądro wraz z tłuszczem gonadalnym, a następnie je usuń.
- Samice myszy: Tłuszcz gonadalny jest przytwierdzony do rogów macicy i jajników i jest bardziej widoczny niż u samców. Ostrożnie unieś poduszkę tłuszczową i wycięcie wzdłuż rogów macicy i jajników.
- Umieść wyizolowane poduszki tłuszczowe w szalce Petriego wypełnionej PBS.
- Za pomocą żyletki usuń pozostałości najądrza, jąder, jajników lub naczyń krwionośnych.
- Przenieś oczyszczoną poduszkę tłuszczową do drugiej szalki Petriego zawierającej uprzednio ogrzany PBS. Opcjonalnie zważ poduszki tłuszczowe.
UWAGA: Ważenie poduszek tłuszczowych przed hodowlą umożliwia normalizację masy tkanki pomiędzy różnymi warunkami eksperymentalnymi.
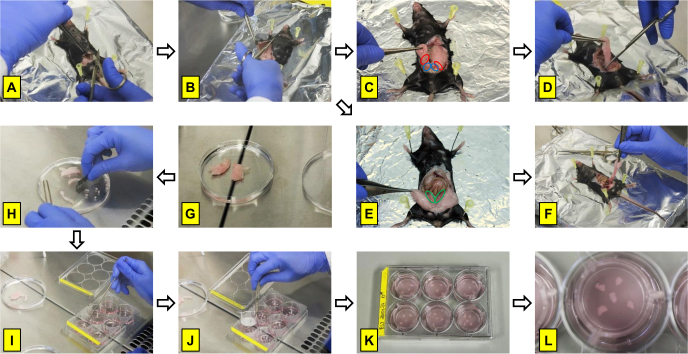
Rycina 2: Izolacja i hodowla eksplantów trzewnej tkanki tłuszczowej. (A,B) Otwarcie jamy brzusznej i odsłonięcie trzewnej tkanki tłuszczowej. (C, D) Izolacja tkanki tłuszczowej znad najądrzy u samców myszy; tłuszcz przylega do najądrza (czerwone okręgi) i jądra (niebieskie okręgi). (E, F) Izolacja tkanki tłuszczowej gonadalnej u samic myszy; tłuszcz przylega do rogu macicy (zielone okręgi) i jajników. (G, H) Przygotowanie i przycinanie eksplantów tkanki tłuszczowej. (I, J) Przeniesienie eksplantów do dołków hodowlanych i umieszczenie insertów do hodowli komórkowej. (K, L) Reprezentatywne obrazy eksplantów podczas hodowli w płytkach 6-dołkowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
3. Przygotowanie i hodowla eksplantatów
- Przygotowanie eksplantów
OSTROŻNIE: Żyletki są ostre i mogą spowodować obrażenia. Należy z nimi obchodzić się ostrożnie i utylizować zgodnie z instytucjonalnymi procedurami bezpieczeństwa.- Za pomocą żyletki pociąć tkankę tłuszczową na paski, a następnie na kostki o objętości około 10 mm3 (~10 mg na eksplant).
- Zakładanie kultur eksplantów
- Do każdego dołka płytki 6-dołkowej dodać 1–1.5 mL pożywki hodowlanej.
UWAGA: W celu normalizacji należy użyć około 50 mg tkanki tłuszczowej na 1 mL pożywki hodowlanej. - Za pomocą sterylnej łyżeczki lub szpatułki przenieść pięć eksplantów do każdego dołka.
- Rozmieścić eksplanty równomiernie w układzie kolistym.
- Przykryć eksplanty wkładką do hodowli komórkowych za pomocą sterylnej pincety.
UWAGA: Podczas umieszczania wkładek należy unikać wprowadzania pęcherzyków powietrza i upewnić się, że eksplanty znajdują się w ich centrum. - Inkubować eksplanty w temperaturze 37 °C, w atmosferze 5% CO₂ i 21% O₂ przez 7–10 dni.
UWAGA: Aby zwiększyć żywotność tkanki, należy stosować uprzednio ogrzany PBS oraz pożywkę hodowlaną. Pracować sprawnie, aby zminimalizować czas przebywania tkanki tłuszczowej poza inkubatorem. Unikać zanieczyszczenia futrem myszy. Jeśli do tkanki przykleją się włosy, należy je usunąć i wypłukać tkankę ciepłym PBS.
- Do każdego dołka płytki 6-dołkowej dodać 1–1.5 mL pożywki hodowlanej.
4. Analizy końcowe
- Po 7–10 dniowym okresie hodowli należy zebrać eksplanty, komórki frakcji naczyniowo-stromalnej lub nadsączki hodowlane do dalszych analiz, w tym do mikroskopii, cytometrii przepływowej, qPCR, testu ELISA lub sekwencjonowania RNA, zgodnie z wymaganiami punktu końcowego eksperymentu.
5. Analiza statystyczna
- Przeprowadzić analizy statystyczne z wykorzystaniem programu GraphPad Prism 10.2. Przesiewowo sprawdzić zestawy danych pod kątem wartości odstających za pomocą testu ROUT (Q = 1%) i ocenić normalność rozkładu za pomocą testu Shapiro–Wilka (α = 0.05).
- Porównać dwie grupy za pomocą sparowanych testów t-Studenta lub testów Wilcoxona dla par zależnych, w zależności od potrzeby. Porównać wiele grup za pomocą jednoczynnikowej analizy wariancji (one-way ANOVA) z następującym po niej testem post hoc Dunnetta. Różnice uznać za istotne statystycznie przy p < 0.05.
- Przedstawić dane jako średnia ± SEM. O ile nie wskazano inaczej, przyjąć n jako liczbę powtórzeń biologicznych (poszczególne myszy).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Ogólna żywotność tkanki była utrzymywana przez cały okres hodowli i monitorowana przy użyciu kilku komplementarnych metod. Żywotność tkanki można ocenić za pomocą mikroskopii konfokalnej z wykorzystaniem barwników żywotności, takich jak Calcein25, barwienia przeciwciałami przeciwko Perilipinie w celu oceny integralności błony adipocytów17,26 lub ekspresji transgenicznego białka reporterowego w adipocytach. Witalność i integralność tkanki b...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Biorąc pod uwagę rosnącą globalną częstość występowania chorób metabolicznych i cukrzycy, zrozumienie mechanizmów leżących u podstaw stanu zapalnego tkanki tłuszczowej (TT) pozostaje ważnym celem badań. Aby sprostać temu zapotrzebowaniu, opracowano system hodowania eksplantów ex vivo, który umożliwia indukcję i analizę stanu zapalnego TT w kontrolowanych warunkach eksperymentalnych.
Kluczowym wymogiem tej metody jest zachowanie żywotności tkanki przez cały okres kultury. Za pomocą wie...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Autorzy dziękują Constance Hobusch i Florianowi Kirmse za doskonałą pomoc techniczną. Analizy cytometrii przepływowej wykonano w Jednostce Centralnej Technologii Fluorescencji, Uniwersytet w Lipsku, przy wsparciu technicznym Kathrin Jäger i Pia Glückner. Praca ta była wspierana przez Deutsche Forschungsgemeinschaft (DFG, Niemiecką Fundację Badań), Numer projektu 209933838 – SFB 1052 (Projekt B09).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| BD OptEIA Mouse TNF ELISA Kit | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | Cytometria przepływowa: 1:10000; Barwienie: 1:2000 | Invitrogen | D3835 |
| Albumina krowie surowica | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | Barwienie: 1:100; Cytometria przepływowa: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | Cytometria przepływowa: 1:100 | BioLegend | 117334 |
| CD16/32 | Cytometria przepływowa: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | Cytometria przepływowa: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | Cytometria przepływowa: 1:400 | BioLegend | 102606 |
| CD45 – PE | Cytometria przepływowa: 1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry Assay Kit | EdU: 5 µM | Invitrogen | C10632 |
| Liposomes Clodronate | 500 µg/ml clodronate | Liposoma | |
| Collagenase Typ 2 | 1 mg/ml, 315 U/mg | Worthington | LS004176 |
| CyQUANT LDH Cytotoxicity Assay Kit | Invitrogen | C20301 | |
| DAPI | Cytometria przepływowa: 0.2 µg/ml | Thermo Fisher | 62248 |
| Etanol | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | Cytometria przepływowa: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | Cytometria przepływowa: 1:200 | Invitrogen | 25-4801-82 |
| Surowiца wołowa płodowa | 1.10 | Gibco | 10270106 |
| Surowiца wołowa płodowa | 1.20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | Cytometria przepływowa: 1:20000; Barwienie: 1:10000 | Invitrogen | H34477 |
| MAC-2 | Barwienie: 1:1000 | Cedarlane | CL8942AP |
| Millicell Cell Culture Insert, 30 mm, hydrophilic PTFE, 0.4 µm | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Penicylina/Streptomycyna (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Penicylina/Streptomycyna (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxicon 5622 | 40 µM | Plexxicon Inc. | HY-114153 |
| RPMI-Media 1640 | z 11 mM glukozą | Sigma Aldrich | R8758 |
| RPMI-Media 1640 | Sigma | R8758 | |
| TC-Insert for 6-well plates | Sarstedt | 83.3930.040 | |
| TPP tissue culture test plate 6 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| Chlorku cynku | 0.8 mM | Sigma | Z0152 |
| Formalina cynkowa | Polyscience | 21516-3.75 |
Bibliografia
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
