Ten protokół opisuje kroki wymagane do przeprowadzenia hybrydyzacji łańcucha reakcji fluorescencyjnej in situ (HCR-FISH) w narządach wzrokowych larw Drosophila melanogaster. Szczegółowo opisano procedury projektowania sond, hybrydyzacji, amplifikacji oraz montażu tkanki, aby ułatwić wizualizację rozwijającego się narządu wzrokowego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Reakcja łańcuchowa hybrydyzacji FISH w rozwijającym się Drosophila płacie wzrokowym
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Rozumienie rozwoju układu nerwowego wymaga precyzyjnej charakterystyki kiedy i gdzie geny są eksponowane. Techniki takie jak in situ hybrydyzacja od dawna umożliwiają wizualizację ekspresji genów w rozwijających się tkankach. Chociaż in situ hybrydyzacja jest szeroko stosowana w embrionach Drosophila melanogaster, jej zastosowanie do rozwoju układu wzrokowego było ograniczone przez kilka wyzwań technicznych. Na przykład długie sondy często słabo penetrują płat wzrokowy, a protokoły, które polegają na dyfuzyjnych reporterach katalitycznych, takich jak peroksydaza chrzanu, często dają niskie współczynniki sygnału do szumu w preparatach całokomórkowych. Fluorescencyjna hybrydyzacja in situ z reakcji łańcuchową (HCR-FISH) przezwycięża wiele z tych ograniczeń i umożliwia bardziej niezawodne wykrywanie sygnału. Podobnie jak w konwencjonalnej FISH, monomery sond DNA hybrydyzują z sekwencji RNA w obrębie tkanek. W HCR-FISH jednakże sondy amplifikacyjne sprzężone fluorescencyjnie tworzą stabilne struktury złożone, które wywołują polimeryzację dodatkowych monomerów, wzmacniając intensywność sygnału. Zastosowanie zestawów sond wielokanałowych pozwala również na użycie krótszych oligonukleotydów (~45 nt, w porównaniu z do 1000 nt w konwencjonalnej FISH), poprawiając penetrację sond i uzyskując bardziej jednolite barwienie w próbkach całokomórkowych. W artykule opisano protokół HCR-FISH zoptymalizowany dla płata wzrokowego larw Drosophila. Protokół dostosowuje istniejące podejścia HCR-FISH poprzez optymalizację warunków fiksacji i zwiększenie stężeń sond i złożeń, aby poprawić intensywność sygnału i penetrację tkanek. Podano listy reagentów i szczegółowe procedury. Przedstawiono również potencjalne zastosowania w neurobiologii rozwojowej, w tym wizualizację nowo narodzonych neuronów oraz charakteryzację wzorców ekspresji genów w przypadkach, gdy konwencjonalne metody, takie jak białka endogenownie oznakowane lub barwienie przeciwciałami, nie zapewniają wystarczających informacji.
Wprowadzenie
Zrozumienie procesu budowy mózgu wymaga zidentyfikowania zarówno różnorodności obecnych typów komórek, jak i repertuarów genów eksprymowanych w każdym typie komórki1. Ostatnie postępy w sekwencjonowaniu RNA pojedynczych komórek umożliwiły badaczom udzielenie odpowiedzi na te pytania z wysoką rozdzielczością2. Jednak wiele podejść opartych na pojedynczych komórkach nie zachowuje informacji przestrzennych, co wymaga przeprowadzenia dodatkowych eksperymentów w celu przypisania transkrypcyjnych klastrów typów komórek do ich lokalizacji w rozwijającym się mózgu.
Binarne systemy ekspresji genów, takie jak GAL4-UAS, mogą dostarczać informacji pozycyjnych, ale nie są ilościowe3. Ponadto opóźnienia między ekspresją genu a detekcją reportera mogą zacierać fizjologicznie istotne wzorce ekspresji w wczesnych stadiach rozwoju. Immunobarwienie jest innym powszechnie stosowanym podejściem do określania tkankowo specyficznych wzorców ekspresji4. Jednakże białka wydzielane są często rozproszone, co utrudnia ich dokładną lokalizację.
Metody znakowania nukleotydowego, takie jak hybrydyzacja in situ (ISH), są również szeroko stosowane w celu uzyskania informacji przestrzennych na temat ekspresji genów5. W metodzie ISH znakowane oligonukleotydy DNA wiążą się z komplementarnymi sekwencjami RNA, które są przedmiotem zainteresowania. Wczesne metody ISH wykorzystywały sondy DNA znakowane radioaktywnie6, podczas gdy późniejsze protokoły wprowadziły bezpieczniejsze znaczniki, takie jak digoksygenina, fluoresceina i rodamina7,8,9. Naukowcy szybko zaadaptowali ISH do zastosowań u Drosophila melanogaster, gdzie metoda ta była wykorzystywana do charakteryzacji organizacji chromosomów politenicznych oraz mapowania wzorców ekspresji genów gap, takich jak hunchback, w zarodkach utrwalonych w całości10,11.
Pomimo powszechnej użyteczności, kilka ograniczeń technicznych utrudniało zastosowanie ISH w grubszych preparatach całych organów, takich jak płat wzrokowy larwy. Wiele protokołów in situ opierało się na dyfuzyjnych reporterach katalitycznych, takich jak peroksydaza chrzanowa, co często skutkowało niskim stosunkiem sygnału do szumu12. Dodatkowo, w wielu podejściach stosowano długie sondy celujące w pojedyncze sekwencje w celu poprawy specyficzności. Choć są one skuteczne w embrionach Drosophila i chromosomach politenicznych, długie sondy słabo penetrują mózg larwy i często powodują nierównomierne znakowanie10,11,13.
Opracowanie fluorescencyjnej hybrydyzacji in situ pojedynczych cząsteczek (smFISH) oraz fluorescencyjnej reakcji łańcuchowej hybrydyzacji in situ hybrydyzacja wspomagana łańcuchowo (HCR-FISH) pozwoliła na wyeliminowanie wielu z tych ograniczeń14,15Dzięki zastosowaniu zestawów krótkich sond rozmieszczonych kafelkowo w obrębie jednego regionu genu, technika smFISH pozwala zredukować średnią długość sondy z około 1000 nt do około 40 nt.16Znacznie poprawia to penetrację sond przy jednoczesnym zachowaniu silnej intensywności sygnału. Metoda HCR-FISH dodatkowo poprawia stosunek sygnału do szumu dzięki zastosowaniu koniugowanych z fluoresceincją sond wzmacniających, które zwiększają dokładność lokalizacji i potęgują sygnał wyjściowy. Co istotne, etap ten wydaje się skalować liniowo wraz ze stężeniem transkrypcyjnym, co umożliwia ilościowy pomiar poziomów ekspresji genów.17.
Metoda HCR-FISH rozpoczyna się od zastosowania sond inicjujących komplementarnych do sekwencji docelowej. Te nieoznaczone oligonukleotydy DNA zawierają jednoniciową sekwencję inicjującą, która wiąże się z domeną wejściową fluorescencyjnie znakowanej sondy wzmacniającej H1. Wzmacniacze H1 przyjmują strukturę spinki do włosów, która zapewnia brak aktywności katalitycznej aż do momentu związania z sekwencją inicjującą. Po związaniu wzmacniacz H1 otwiera się, odsłaniając sekwencję wiążącą się z sondą partnerską H2. Oddziaływanie to otwiera spinkę do włosów H2, umożliwiając jej związanie kolejnej sondy H1 (Rysunek 1)15. Powtarzające się cykle wiązania H1/H2 generują stabilny polimer, który wzmacnia sygnał fluorescencji przy jednoczesnym zmniejszeniu szumu tła. Ponieważ każda sekwencja inicjująca jest specyficzna dla odpowiadającej jej pary H1/H2, można jednocześnie użyć wielu sond o różnych sekwencjach inicjujących i fluoroforach, aby oznakować kilka genów w tej samej próbce.
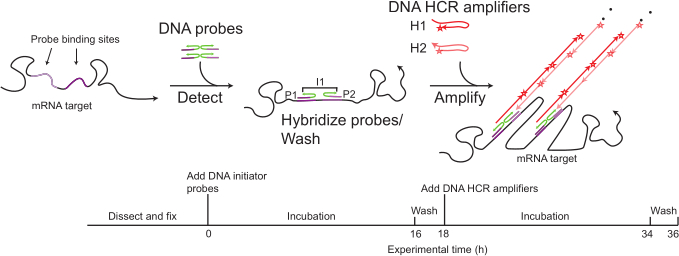
Rysunek 1: Graficzna reprezentacja schematu HCR-FISH. Sondy DNA zawierające sekwencje inicjujące hybrydyzują z docelowym transkryptem RNA. Znakowane fluorescencyjnie DNA-amplifikatory w formie spinek wiążą się z sekwencją inicjującą i ulegają sekwencyjnej polimeryzacji, tworząc stabilne dwuniciowe łańcuchy amplifikacyjne. Bezpośrednia konjugacja fluoroforu poprawia amplifikację sygnału oraz stosunek sygnału do szumu. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Niedawne udoskonalenia metody HCR-FISH dodatkowo zwiększyły jej użyteczność. Projekt sond z rozdzielonym inicjatorem poprawia swoistość wzmacniacza, a przeciwciała wtórne sprzężone z inicjatorami HCR umożliwiają jednoczesne przeprowadzenie immunohistochemii i HCR-FISH18. Ponadto rozszerzony wybór fluoroforów pozwala obecnie na obrazowanie multipleksowe do 10 genów jednocześnie19,20.
Choć wstępne eksperymenty potwierdzające koncepcję HCR-FISH przeprowadzono na danio pręgowanym (Danio rerio), metoda ta zyskała szerokie zastosowanie w wielu systemach, szczególnie w przypadku organizmów niebędących modelami, gdzie przeciwciała są drogie lub niedostępne15. Synteza sond stanowi również szybszą alternatywę dla generowania przeciwciał, co może wymagać wielu miesięcy opracowania. W konsekwencji HCR-FISH zapewnia szybkie podejście do walidacji genów kandydackich zidentyfikowanych w zbiorach danych sekwencjonowania RNA pojedynczych komórek21. Nawet w uznanych organizmach modelowych genetycznie, HCR-FISH stanowi wartościową metodę przestrzennego mapowania nowo powstałych neuronów w sytuacjach, gdy reportery GAL4 lub immunohistochemia nie pozwalają na odpowiednie oznakowanie specyficznych populacji komórek.
Niniejszy artykuł opisuje protokół HCR-FISH zoptymalizowany dla płata wzrokowego larwy Drosophila w trzecim stadium rozwojowym. Protokół ten adaptuje metody opublikowane wcześniej dla innych organizmów do zastosowania w układzie wzrokowym Drosophila 22. Warunki fiksacji powszechnie stosowane w immunohistochemii Drosophila zostały zoptymalizowane pod kątem zastosowań FISH. Stężenia sond i spinek (hairpin) zwiększono w celu poprawy intensywności sygnału oraz penetracji tkanki. Zamiast płytek do kropel wykorzystano probówki do PCR, aby zmniejszyć zużycie odczynników i uprościć manipulowanie małymi próbkami tkanek. Dodatkowo skrócono czasy przemywania i hybrydyzacji, aby dostosować je do mniejszego rozmiaru mózgu Drosophila w porównaniu do innych układów owadzich powszechnie wykorzystywanych w HCR-FISH.
Reprezentatywne zastosowania demonstrują, w jaki sposób podejście to może dostarczać informacji o pozycji specyficznych populacji neuronalnych podczas rozwoju. Eksperymenty te wskazują, że niektóre transkrypty, takie jak abrupt, mogą zostać wykryte za pomocą HCR-FISH wcześniej niż przy użyciu barwienia przeciwciałami lub linii reporterowych. Omówiono również potencjalne trudności, strategie rozwiązywania problemów oraz zastosowania HCR-FISH w badaniu rozwoju układu wzrokowego u Drosophila.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty z Drosophila melanogaster przeprowadzano zgodnie z wytycznymi City College of New York, Columbia University i New York University dotyczącymi opieki nad organizmami badawczymi i ich wykorzystywania. Narzędzia badawcze wykorzystane w tym protokole są wymienione w Tabeli materiałów.
1. Przygotowanie buforów
UWAGA: Przygotuj wszystkie odczynniki w wolnych od nukleaz probówkach z wykorzystaniem końcówek filtracyjnych.
UWAGA: Na całym czasie trwania procedury należy nosić rękawiczki. Przed rozpoczęciem czynności wyczyść powierzchnie robocze roztworem do dekontaminacji RNase.
- Przygotuj roztwory wolne od nukleaz
- Przygotuj 1x PBS-T poprzez rozcieńczenie 20x PBS, Triton X-100 i glicyny w wodzie wolnej od nukleaz do ostatecznych stężeń 1x PBS, 1% (v/v) Triton X-100 i 1 mM glicyny.
- Przygotuj 5x SSCT poprzez rozcieńczenie 20x SSC i Tween-20 w wodzie wolnej od nukleaz do ostatecznego uzyskania 5x SSC zawierającego 0,1% (v/v) Tween-20.
- Roztwórz 20x PBS w wodzie wolnej od nukleaz do uzyskania 1x PBS.
2. Zaprojektuj sondy
- Aby zaprojektować sondy komercyjnie, wybierz izoformę interesującego gatunku i zamów sondy dopasowane do pożądanego amplifikatora za pomocą interfejsu internetowego dostawcy.
UWAGA: Komercyjne chemizmy sond HCR i sekwencje inicjatorów są własnością firmy Molecular Instruments i objęte są patentami.- Zmodyfikuj region docelowy w interfejsie internetowym, jeśli wykrywanie transkryptów specyficznych dla gatunku lub pre-mRNA jest pożądane.
- Zamów około 20 sond na wysoce eksponowane transkrypty. Użyj do 40 sond na transkrypty o niskiej obfitości w preparatach całkowitych Drosophila.
UWAGA: Zamów specjalistyczne oligonukleotydy na krótsze transkrypty, które mieszczą mniej miejsc wiązania sond.
- Aby zaprojektować sondy ręcznie, pobierz sekwencję FASTA dla docelowego transkryptu. Określ, czy ma to być jedna izoforma czy wszystkie izoformy genu.
UWAGA: Uprzywilejowuj ekzony konstytutywne lub wysoko eksponowane izoformy zidentyfikowane na podstawie danych sekwencjonowania RNA, aby poprawić sygnał.- Jeśli zaprojektujesz sondy do wykrywania pre-mRNA, zaprojektuj sondy obejmujące złącza introny-ekzony. Zaprojektuj sondy obejmujące złącza splajsowe, aby wykryć dojrzałe transkrypty. Użyj sond intronikowych do wykrywania nowo powstałych transkryptów w jądrach.
UWAGA: Sondy intronikowe mogą nie kolocalizować się z dojrzałymi transkryptami cytoplazmatycznymi i mogą wymagać dodatkowych markerów do identyfikacji komórek. - Określ rozmiar zestawu sond. Użyj co najmniej około 5 sond na krótkie transkrypty, gdy nie można zaprojektować większych zestawów sond. Użyj 20 sond do zastosowań standardowych i około 40 sond dla optymalnej wrażliwości w próbkach całkowitych18,23.
- Jeśli zaprojektujesz własne sondy, użyj sekwencji 25nt oddzielonych odstępem 2bp i dodaj podzielone sekwencje inicjatorów na 5’ koniec każdego oligonukleotydu.
UWAGA: Chociaż pierwszej generacji podzielone sekwencje inicjatorów są dostępne publicznie, komercyjne sekwencje inicjatorów drugiej generacji są własnością prywatną18. - Jeśli zaprojektujesz własne sondy, zweryfikuj sekwencje sond. Upewnij się, że sondy w każdym zestawie mają podobne temperatury topienia. Potwierdź 100% identyczność pomiędzy sondami.
UWAGA: Unikaj silnych regionów bogatych w G i utrzymuj podobną zawartość GC wśród sond24. Zminimalizuj sekwencje powtarzające się i oceń wiążące poza docelowo używając BLAST25. - Użyj publicznie dostępnego oprogramowania do projektowania sond, gdy to odpowiednie26,27.
UWAGA: Narzędzia open-source mogą nie odtworzyć zoptymalizowanej wydajności komercyjnych pipeline'ów do projektowania sond.
- Jeśli zaprojektujesz sondy do wykrywania pre-mRNA, zaprojektuj sondy obejmujące złącza introny-ekzony. Zaprojektuj sondy obejmujące złącza splajsowe, aby wykryć dojrzałe transkrypty. Użyj sond intronikowych do wykrywania nowo powstałych transkryptów w jądrach.
3. Dysekcja, utrwalacz i prehybrydyzacja mózgu
- Podgrzej bufor hybrydyzacji sond do 37 °C.
OSTROŻNIE: Bufor hybrydyzacji sond zawiera formiamid. Obsługuj w wyciągu chemicznym używając odpowiednich środków ochrony osobistej. - Roztwórz każdy zestaw sond do ostatecznego stężenia 1 µM używając wolnej od nukleaz wody destylowanej.
- Rozmieść około 250 µL wolnego od nukleaz PBS na talerzu do dysekcji.
- Przenieś wędrowną larwę trzeciego stadium do PBS za pomocą kleszczy. Trzymaj brzuch jedną parą
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Dla naukowców badających neurobiologię rozwoju, metoda HCR-FISH stanowi niezawodne narzędzie do wizualizacji wzorców ekspresji genów oraz określania położenia przestrzennego rozwijających się neuronów w płacie optycznym Drosophila.
W płacie wzrokowym Drosophila (Rysunek 2A) neurony w neuropilu meduli powstają z neuralnych komórek macierzystych (neuroblastów) pochodzących z przestrzennie ustrukturyzowanego neuroepitelium zwanego zewnętrznym c...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Niniejsze badanie opisuje adaptację HCR-FISH do zastosowania w narządzie wzrokowym larw Drosophila melanogaster. Konwencjonalne podejścia in situ hybrydyzacji często wykonują się słabo na całotności tkanki mózgu larw z powodu ograniczonego przenikania sond i niskiej intensywności sygnału. Prezentowany tutaj protokół optymalizuje kilka kluczowych kroków, aby poprawić jakość barwienia w rozwijającym się narządzie wzrokowym. Warunki fiksacji powszechnie stosowane w immunohistologii Drosophila zost...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują, że nie mają żadnych konkurencyjnych interesów finansowych.
Podziękowania
Autorzy dziękują Claudiowi Desplan za dostęp do sond HCR-FISH firmy Molecular Instruments oraz linii muchówek dpp-GAL4; UAS-Stinger. Autorzy dziękują również Aneesh Acharya i Harry Choi z firmy Molecular Instruments za opinię techniczną oraz dyskusje dotyczące implementacji HCR-FISH. Ten protokół został przystosowany z wcześniej opublikowanych i niepublikowanych metodologii HCR-FISH opracowanych przez Meg Younger22, Hunter Whitbeck, Bogdan Sieriebriennikov, Amanda Araujo Gomes Ferreira, Yen-Chung Chen i Yanqiqi Zeng. Bogdan Sieriebriennikov był wspierany przez Human Frontier Science Program (LT000010/2020-L). Jennifer Malin była wspierana przez grant R00 Narodowych Instytutów Zdrowia EY032269.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10% Tween-20 | Bio-Rad Laboratories | 1662404 | NA |
| 20x PBS, pH7.4 | Growcells.com | MRGF-6396 | 2.74M NaCl, 53.7 mM KCl, 20.3 mM Na2HPO4, 29.4 mM KH2PO4 |
| 20x SSC | Quality Biological | 351-003-131 | 3M NaCl, 0.3M Sodium Citrate |
| 37 °C incubator | Fisher Scientific (Isotemp) | 15-015-2633 | NA |
| 37 °C water bath | Fisher Scientific | FSGPD15D | NA |
| Aluminum foil | Reynolds Wrap/Fisher Brand | 15-078-291 | NA |
| Antibody: Mouse-anti-Abrupt | DSHB | Abrupt; RRID: AB_528344 | Rozcieńczenie: 1:20 |
| Antibody: Chicken anti-GFP | Millipore Sigma | Catalog# 06-896; RRID: AB-619712 | Rozcieńczenie: 1:500 |
| Antibody: Rabbit anti-GFP | Life Technologies | #11122; RRID: AB_221569 | Rozcieńczenie: 1:500 |
| Antibody: Rabbit anti-Dll | Genscript/Desplan lab | - | Rozcieńczenie: 1:200 |
| Antibody: Rat anti-NCadherin | DSHB | DN-Ex #8, RRID: AB_528121 | Rozcieńczenie: 1:50 |
| Antibody: Rabbit anti-SoxN | Genscript/Desplan lab | - | Rozcieńczenie: 1:200 |
| Antibody: Guinea Pig anti-Traffic jam | Gift from D. Godt | - | Rozcieńczenie: 1:2,000 |
| Antibody: Donkey anti-Rat 405 | Jackson ImmunoResearch | Code # 712-475-150; RRID: AB_2340680 | Rozcieńczenie: 1:100 |
| Antibody: Donkey anti-Chicken 488 | Jackson ImmunoResearch | Code #703-545-155; RRID: AB_2340375 | Rozcieńczenie: 1:200 |
| Antibody: Donkey anti-Mouse 488 | Jackson ImmunoResearch | Code #715-545-151; RRID: AB_2341099 | Rozcieńczenie: 1:200 |
| Antibody: Donkey anti-Rabbit 488 | Jackson ImmunoResearch | Code #711-545-152; RRID: AB_2313584 | Rozcieńczenie: 1:200 |
| Antibody: Donkey anti-Rabbit A555 | Thermo Scientific | Catalog #A-31572; RRID: AB_162543 | Rozcieńczenie: 1:200 |
| Antibody: Donkey anti-Rat Cy3 | Jackson ImmunoResearch | Code #712-165-153; RRID: AB_2340667 | Rozcieńczenie: 1:200 |
| Antibody: Donkey anti-Guinea Pig 647 | Jackson ImmunoResearch | Code #706-605-148; RRID: AB_2340476 | Rozcieńczenie: 1:200 |
| Antibody: Donkey anti-Rat 647 | Jackson ImmunoResearch | Code #712-605-153; RRID: AB_2340694 | Rozcieńczenie: 1:200 |
| Antifade mountant | Thermo Fisher Scientific | S36940 (SlowFade Gold Antifade Mountant) | Inne antyfades będą również działać, w tym te z DAPI (S36936) |
| Confocal Microscope | Zeiss | LSM-880 | NA |
| Cover slips (22 x 30) | VWR | 16004-332 | NA |
| Fly: D. melanogaster: ab-GFP-FLAG | BDSC | 38626; RRID: BDSC_38626 | NA |
| Fly: D. melanogaster: Canton S | BDSC | 64349; RRID: BDSC_64349 | NA |
| Fly: D. melanogaster: dpp-Gal4 | BDSC | 1553; RRID: BDSC_1553 | NA |
| Fly: D. melanogaster: ham-GFP.FPTB | BDSC | 83660; RRID: BDSC_83660 | NA |
| Fly: D. melanogaster: yw; 10xUAS-myr-GFP; | BDSC | 32198; RRID: BDSC_32198 | NA |
| Fly: D. melanogaster: UAS-Stinger | BDSC | 84277; RRID: BDSC_84277 | NA |
| Fly: D. melanogaster: wit-KO-Gal4 | BDSC | 600136; RRID: BDSC_600136 | NA |
| Forceps | Dumont | #5 or #55s | NA |
| Glass slides | VWR | 16005-106 | NA |
| Glycine | Millipore Sigma | G7126-10MG | NA |
| HCR Amplification buffer | Molecular Instruments | HCR Gold RNA-FISH Kit | NA |
| HCR-Gold Amplifiers | Molecular Instruments | HCR Gold RNA-FISH Kit | NA |
| HCR HiFi Probes | Molecular Instruments | HCR Gold RNA-FISH Kit | NA |
| HCR Probe Hybridization Buffer | Molecular Instruments | HCR Gold RNA-FISH Kit | Contains formamide |
| HCR Probe Wash Buffer | Molecular Instruments | HCR Gold RNA-FISH Kit | Contains formamide |
| Nail polish (clear) | Electron Microscopy Sciences | 72180 | NA |
| Nuclease-free water (not DEPC-treated) | Thermo Fisher Scientific | AM9937 | NA |
| Nutating mixer | Corning/Fisher Scientific | 10-320-100 | NA |
| Paraformaldehyde, 16% (w/v) | Electron Microscopy Sciences | 15710 | Toksyczne |
| PCR Machine/Thermal Cycler | Bio-Rad | 1851148 (C1000 Touch Thermal Cycler) | NA |
| PCR pull-apart tube strips with dome cap strips (0.2 mL) | USA Scientific | #1402-2400 | NA |
| Petri dishes (150 x 15 mm; for making dissecting dishes) | Fisher Scientific | FB0875714 | NA |
| RNase ZAP | ThermoFisher Scientific | AM9780 | NA |
| Slide spacer stickers | SUNJin | IS016 (iSpacer stickers (0.2 mm deep)) | NA |
Bibliografia
- Zeng H, Sanes JR. Neuronal cell-type classification: challenges, opportunities and the path forward. Nat Rev Neurosci. 2017;18(9):530-46.
- Macosko EZ, Basu A, Satija R, Nemesh J, Shekhar K, Goldman M, et al. Highly parallel genome-wide expression profiling of individual cells using nanoliter droplets. Cell. 2015;161(5):1202-14.
- Brand AH, Perrimon N. Targeted gene expression as a means of altering cell fates and generating dominant phenotypes. Development. 1993;118(2):401-15.
- Coons AH, Kaplan MH. Localization of antigen in tissue cells: improvements in a method for the detection of antigen by means of fluorescent antibody. J Exp Med. 1950;91(1):1-13.
- Pardue ML, Gall JG. Chromosomal localization of mouse satellite DNA. Science. 1970;168(3937):1356-8.
- Gall JG, Pardue ML. Formation and detection of RNA-DNA hybrid molecules in cytological preparations. Proc Natl Acad Sci U S A. 1969;63(2):378-85.
- Singer RH, Ward DC. Actin gene expression visualized in chicken muscle tissue culture by using in situ. hybridization with a biotinylated nucleotide analog. Proc Natl Acad Sci U S A. 1982;79(23):7331-5.
- Bauman JG, Wiegant J, Borst P, van Duijn P. A new method for fluorescence microscopical localization of specific DNA sequences by in situ. hybridization of fluorochrome-labelled RNA. Exp Cell Res. 1980;128(2):485-90.
- Herrington CS, Burns J, Graham AK, Evans M, McGee JO. Interphase cytogenetics using biotin- and digoxigenin-labelled probes. I. Relative sensitivity of both reporter molecules for detection of HPV16 in CaSki cells. J Clin Pathol. 1989;42(6):592-600.
- Tautz D, Pfeifle C. A non-radioactive in situ hybridization method for the localization of specific RNAs in Drosophila. embryos reveals translational control of the segmentation gene hunchback. Chromosoma. 1989;98(2):81-5.
- Rudkin GT, Stollar BD. High-resolution detection of DNA-RNA hybrids in situ. by indirect immunofluorescence. Nature. 1977;265(5593):472-3.
- van de Corput MP, Dirks RW, van Gijlswijk RP, van de Rijke FM, Raap AK. Fluorescence in situ. hybridization using horseradish peroxidase-labeled oligodeoxynucleotides and tyramide signal amplification for sensitive DNA and mRNA detection. Histochem Cell Biol. 1998;110(4):431-7.
- Schröder C, Tautz D, Seifert E, Jäckle H. Differential regulation of the two transcripts from the Drosophila. gap segmentation gene hunchback. EMBO J. 1988;7(9):2881-7.
- Dirks RM, Pierce NA. Triggered amplification by hybridization chain reaction. Proc Natl Acad Sci U S A. 2004;101(43):15275-8.
- Choi HMT, Chang JY, Trinh LA, Padilla JE, Fraser SE, Pierce NA. Programmable in situ. amplification for multiplexed imaging of mRNA expression. Nat Biotechnol. 2010;28(11):1208-12.
- Femino AM, Fay FS, Fogarty K, Singer RH. Visualization of single RNA transcripts in situ. Science. 1998;280(5363):585-90.
- Trivedi V, Choi HMT, Fraser SE, Pierce NA. Multidimensional quantitative analysis of mRNA expression within intact vertebrate embryos. Development. 2018;145(1):dev156869.
- Choi HMT, Schwarzkopf M, Fornace ME, Acharya A, Artavanis G, Stegmaier J, et al. Third-generation in situ. hybridization chain reaction: multiplexed, quantitative, sensitive, versatile, robust. Development. 2018;145(12):dev165753.
- Schulte SJ, Fornace ME, Hall JK, Shin GJ, Pierce NA. HCR spectral imaging: 10-plex, quantitative, high-resolution RNA and protein imaging in highly autofluorescent samples. Development. 2024;151(4):dev202159.
- Schwarzkopf M, Liu MC, Schulte SJ, Ives R, Husain N, Choi HMT, et al. Hybridization chain reaction enables a unified approach to multiplexed, quantitative, high-resolution immunohistochemistry and in situ. hybridization. Development. 2021;148(22):dev199847.
- Ferreira AAG, Cordoba S, Rajesh R, Choi BJ, Desplan C. A developmental single-cell atlas of the Drosophila. visual system glia reveals cell type diversification and subcellular mRNA compartmentalization. bioRxiv. 2023. Available from: https://www.biorxiv.org/content/10.1101/2023.08.06.552169v2
- Herre M, Goldman OV, Lu TC, Caballero-Vidal G, Qi Y, Gilbert ZN, et al. Non-canonical odor coding in the mosquito. Cell. 2022;185(17):3104-23.e28.
- Olivares-Abril J, Joha J, Lee JY, Davis I. Optimization of hybridization chain reaction for imaging single RNA molecules in Drosophila. larvae. Fly (Austin). 2024;18(1):2409968.
- Burge S, Parkinson GN, Hazel P, Todd AK, Neidle S. Quadruplex DNA: sequence, topology and structure. Nucleic Acids Res. 2006;34(19):5402-15.
- Altschul SF, Gish W, Miller W, Myers EW, Lipman DJ. Basic local alignment search tool. J Mol Biol. 1990;215(3):403-10.
- Lovely AM, Duerr TJ, Stein DF, Mun ET, Monaghan JR. Hybridization chain reaction fluorescence in situ. hybridization (HCR-FISH) in Ambystoma mexicanum tissue. Methods Mol Biol. 2023;2562:109-22.
- Kuehn E, Clausen DS, Null RW, Metzger BM, Willis AD, Ozpolat BD. Segment number threshold determines juvenile onset of germline cluster expansion in Platynereis dumerilii. J Exp Zool B Mol Dev Evol. 2022;338(4):225-40.
- Hofbauer A, Campos-Ortega JA. Proliferation pattern and early differentiation of the optic lobes in Drosophila. melanogaster. Roux Arch Dev Biol. 1990;198(5):264-74.
- Li X, Erclik T, Bertet C, Chen Z, Voutev R, Venkatesh S, et al. Temporal patterning of Drosophila. medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456-62.
- Hasegawa E, Kitada Y, Kaido M, Takayama R, Awasaki T, Tabata T, et al. Concentric zones, cell migration and neuronal circuits in the Drosophila. visual center. Development. 2011;138(5):983-93.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila. visual center. Dev Biol. 2013;380(1):12-24.
- Zhu H, Zhao SD, Ray A, Zhang Y, Li X. A comprehensive temporal patterning gene network in Drosophila. medulla neuroblasts revealed by single-cell RNA sequencing. Nat Commun. 2022;13(1):1247.
- Konstantinides N, Holguera I, Rossi AM, Escobar A, Dudragne L, Chen YC, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316-22.
- Konstantinides N, Kapuralin K, Fadil C, Barboza L, Satija R, Desplan C. Phenotypic convergence: distinct transcription factors regulate common terminal features. Cell. 2018;174(3):622-35.e13.
- Garcia-Alonso L, VanBerkum MF, Grenningloh G, Schuster C, Goodman CS. Fasciclin II controls proneural gene expression in Drosophila. Proc Natl Acad Sci U S A. 1995;92(23):10501-5.
- Simon F, Holguera I, Chen YC, Malin J, Valentino P, Njoo-Deplante C, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila. optic lobe. Nat Neurosci. 2026;29(5):1068-78.
- Malin JA, Chen YC, Simon F, Keefer E, Desplan C. Spatial patterning controls neuron numbers in the Drosophila. visual system. Dev Cell. 2024;59(9):1132-45.e6.
- Pinto-Teixeira F, Koo C, Rossi AM, Neriec N, Bertet C, Li X, et al. Development of concurrent retinotopic maps in the fly motion detection circuit. Cell. 2018;173(2):485-98.
- Erclik T, Li X, Courgeon M, Bertet C, Chen Z, Baumert R, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365-70.
- Özel MN, Simon F, Jafari S, Holguera I, Chen YC, Benhra N, et al. Neuronal diversity and convergence in a visual system developmental atlas. Nature. 2021;589(7840):88-95.
- Marques GS, Teles-Reis J, Konstantinides N, Brito PH, Homem CCF. Asynchronous transcription and translation of neurotransmitter-related genes characterize the initial stages of neuronal maturation in Drosophila. PLoS Biol. 2023;21(5):e3002115.
- Pan Y, Rauskolb C, Irvine KD. Near-infrared nuclear markers for Drosophila. imaging. microPublication Biol. 2022;2022. Available from: https://www.micropublication.org/journals/biology/micropub-biology-000639
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
