Niniejszy protokół przedstawia kompatybilną z mikroskopem platformę magnetycznej nanoaktywacji, która integruje fluorescencyjne superparamagnetyczne nanocząsteczki, skalibrowany elektromagnes oraz obrazowanie konfokalne w czasie rzeczywistym, aby zdalnie i w sposób kontrolowany stymulować komórki Schwanna i dynamicznie monitorować ich odpowiedzi mechanosensoryczne.
Artykuł metodologiczny
Platforma magnetycznej nanoaktuacji do zdalnej i kontrolowanej mechanostymulacji komórek Schwanna z obrazowaniem konfokalnym w czasie rzeczywistym
W tym artykule
Podsumowanie
Streszczenie
Siły mechaniczne w krytyczny sposób regulują zachowanie komórek, jednak wiele istniejących metod stymulacji mechanicznej opiera się na bezpośrednim kontakcie fizycznym lub sztucznie zaprojektowanych środowiskach zewnątrzkomórkowych, co ogranicza ich elastyczność w dynamicznych badaniach żywych komórek. W niniejszej pracy przedstawiamy platformę magnetycznej nano-aktuacji do zdalnej, bezkontaktowej i kontrolowanej mechanostymulacji komórek Schwanna in vitro. Zintegrowany układ ten umożliwia zdalną stymulację magnetyczną oraz zsynchronizowany obrazowanie żywych komórek w ramach jednej sesji eksperymentalnej. Niniejsza publikacja opisuje przygotowanie fluorescencyjnych superparamagnetycznych nanocząstek tlenku żelaza (SPIONs), opcjonalnie funkcjonalizowanych SPIONs nakierowanych na aktynę (f-SPIONs), konstrukcję i kalibrację kompatybilnego z mikroskopem urządzenia do stymulacji elektromagnetycznej, szacowanie sił magnetycznych na poziomie pojedynczej cząsteczki i pojedynczej komórki oraz integrację aktuacji magnetycznej z obrazowaniem konfokalnym w czasie rzeczywistym. Komórki Schwanna to wysoce mechanowrażliwe komórki glejowe, które odgrywają kluczową rolę w rozwoju, utrzymaniu i regeneracji nerwów obwodowych. Monitorowanie w czasie rzeczywistym ich reakcji na stymulację mechaniczną jest niezbędne do zrozumienia, w jaki sposób siły mechaniczne wpływają na organizację cytoszkieletu i zachowanie komórek. Platforma ta zapewnia powtarzalny schemat postępowania w badaniu mechanobiologii komórek Schwanna i może zostać zaadaptowana do innych mechanowrażliwych typów komórek oraz układów wielokomórkowych.
Wprowadzenie
Sygnały mechaniczne regulują szeroki zakres procesów komórkowych, w tym adhezję, migrację, proliferację, różnicowanie oraz plastyczność fenotypową1,2,3. Badania w dziedzinie mechanobiologii wykazały, że zarówno neurony, jak i komórki glejowe wykazują wyraźną mechanoczułość i responsywność w trakcie rozwoju4,5,6,7. Aby zbadać, w jaki sposób komórki wyczuwają siły i reagują na nie, opracowano wiele podejść eksperymentalnych, w tym mikroskopię sił atomowych (AFM), aspirację mikropipetą, pęsety optyczne, systemy hodowli oparte na rozciąganiu oraz platformy mikrofluidyczne8,9,10,11,12. Techniki te znacznie posunęły naprzód badania nad mechanotransdukcją. Jednak wiele z nich wymaga bezpośredniego kontaktu fizycznego z komórkami lub opiera się na zdefiniowanych sztucznych środowiskach mechanicznych, co czyni je mniej odpowiednimi do stymulacji zdalnej, dynamicznie kontrolowalnej i kompatybilnej z obrazowaniem.
Dostarczanie siły za pośrednictwem magnetycznych nanocząsteczek stanowi alternatywną strategię zdalnej mechanostymulacji13,14,15,16,17,18. Ponieważ większość tkanek biologicznych wykazuje niską podatność magnetyczną, zewnętrznie przyłożone pola magnetyczne mogą przenikać przez próbki biologiczne bez bezpośredniego kontaktu i selektywnie oddziaływać na cząstki reagujące magnetycznie, wprowadzone do komórek lub tkanek. W obecności gradientu pola magnetycznego cząstki te podlegają siłom kierunkowym, które można wykorzystać do wywołania zaburzeń mechanicznych na poziomie subkomórkowym, komórkowym lub tkankowym8,9. Podejście to jest atrakcyjne, ponieważ jest bezkontaktowe, regulowane, kompatybilne z obrazowaniem na żywo i potencjalnie możliwe do rozszerzenia na bardziej złożone systemy biologiczne.
Komórki Schwanna są wysoce mechanowrażliwymi komórkami glejowymi19,20, które odgrywają kluczową rolę w rozwoju, utrzymaniu i regeneracji nerwów obwodowych21,22. Dynamiczna obserwacja reakcji komórek Schwanna na stymulację fizyczną jest istotna dla zrozumienia, w jaki sposób siła reguluje organizację cytoszkieletu i zachowanie komórek. Jednak wiele konwencjonalnych systemów przykładania siły nie jest łatwo kompatybilnych z mikroskopią wysokiej rozdzielczości w czasie rzeczywistym. Aby rozwiązać ten problem, opracowaliśmy platformę magnetycznej nanoaktywacji, która łączy fluorescencyjne magnetyczne supercząstki (f-SPIONs) nakierowane na cytoszkielet aktynowy, specjalistyczne urządzenie elektromagnetyczne kompatybilne z elementem stołu mikroskopu konfokalnego oraz ilościowe ramy do szacowania siły. Ten zintegrowany układ umożliwia zdalną stymulację magnetyczną i zsynchronizowane obrazowanie żywych komórek w ramach jednej sesji eksperymentalnej.
Opisany tutaj schemat obejmuje przygotowanie fluorescencyjnych magnetycznych supercząsteczek (SPIONs), opcjonalną funkcjonalizację z wykorzystaniem faloidyny w celu ukierunkowania na aktynę dla otrzymania f-SPIONs, charakterystykę nanocząsteczek, konstrukcję urządzenia elektromagnetycznego i kalibrację pola, oszacowanie siły magnetycznej oraz połączoną stymulację magnetyczną z obrazowaniem konfokalnym w czasie rzeczywistym. Chociaż platforma ta została tutaj zoptymalizowana dla komórek Schwanna, może ona stanowić praktyczne ramy dla pokrewnych badań nad innymi żywymi systemami reagującymi mechanicznie.
Protokół
Eksperymenty opisane w niniejszym protokole wykorzystywały ustanowioną linię komórek Schwanna szczura (RSC96) i nie angażowały uczestników będących ludźmi ani żywych zwierząt. Badanie to zostało przeprowadzone w ramach szerszego projektu badawczego obejmującego eksperymenty na zwierzętach, który został zatwierdzony przez Komitet ds. Dobrostanu i Etyki Zwierząt Pierwszego Szpitala Uniwersytetu w Jilin (nr zatwierdzenia 202-045).
1. Przygotowanie fluorescencyjnych supercząsteczek magnetycznych
- Zsyntetyzować nanocząstki Fe₃O₄ powlekane kwasem oleinowym.
UWAGA: Nanocząstki Fe₃O₄ powlekane kwasem oleinowym zsyntetyzowano metodą rozkładu termicznego, zgodnie z wcześniejszym opisem20,23.- Do kolby reakcyjnej dodać 2 mmol Fe(ac)₃, 6 mmol kwasu oleinowego, 6 mmol oleilaminy oraz 5 mmol 1,2-heksadekanodiolu do 20 mL eteru benzylowego.
- Mieszać mieszaninę w atmosferze azotu przez 15 min, aż do uzyskania jednorodnego roztworu prekursorów.
- Ogrzać mieszaninę do 200 °C z szybkością 20 °C/min.
- Utrzymywać reakcję w temperaturze 20 °C przez 30 min.
- Zwiększyć temperaturę do 265 °C i prowadzić reflux mieszaniny przez 30 min.
- Pozostawić mieszaninę reakcyjną do naturalnego ochłodzenia do temperatury pokojowej.
- Zebrać nanocząstki Fe₃O₄ metodą separacji magnetycznej.
- Przemyć nanocząstki 3 razy etanolem.
- Redyspergować oczyszczone nanocząstki w toluenie.
- Złożyć supercząstki Fe₃O₄·Cy3.5.
UWAGA: Supercząstki Fe₃O₄·Cy3.5 przygotowano zgodnie z wcześniejszym opisem20,24,25.- Zdyspergować 28 mg nanocząstek Fe₃O₄ powlekanych kwasem oleinowym w 4 mL toluenu w 50-mililitrowej trójszyjnej kolbie okrągłodennej.
- Przygotować fazę wodną zawierającą 12,5 mg dodecylosiarczanu sodu i 3 mg Cyanine 3.5 (Cy 3.5) w 12,5 mL wody.
- Połączyć zawiesinę nanocząstek Fe₃O₄ w toluenie (28 mg w 4 mL; 7 mg/mL) z wodnym roztworem surfaktantu i barwnika, aby utworzyć mikroemulsję typu olej w wodzie.
- Mieszać dokładnie do uzyskania stabilnej emulsji.
- Ogrzać trójszyjną kolbę okrągłodenną do 60 °C i mieszać nieprzerwanie przy 30 obr./min przez 6 h.
UWAGA: Nie jest wymagana procedura odparowania pod zmniejszonym ciśnieniem ani odparowanie rotacyjne. - Odparować toluen w warunkach opisanych powyżej, aby wywołać agregację nanocząstek Fe₃O₄. Za pomocą jednorazowej pipety transferowej przenieść niewielką porcję roztworu do probówki i pozostawić do odstania. Brak rozwarstwienia faz świadczy o całkowitym usunięciu toluenu.
- Przenieść zawiesinę supercząstek Fe₃O₄·Cy3.5 do 15-mililitrowych probówek wirówkowych. Wirować przy 2370 × g przez 5 min w temperaturze pokojowej w celu zebrania supercząstek, a następnie ostrożnie odlać nadsącz, nie naruszając osadu.
- Redyspergować osad w ultrapurej wodzie dejonizowanej i ponownie wirować przy 2370 × g przez 5 min w temperaturze pokojowej. Odlać nadsącz i powtórzyć procedurę mycia trzy razy, aby usunąć pozostałości wolnego barwnika Cy3.5 oraz dodecylosiarczanu sodu.
- Powlec supercząstki polidopaminą (PDA).
UWAGA: Supercząstki powlekane polidopaminą przygotowano zgodnie z wcześniejszym opisem20,26.- Wirować zawiesinę supercząstek Fe₃O₄·Cy3.5 przy 2370 × g przez 5 min w temperaturze pokojowej i odlać nadsącz.
- Redyspergować osad w 10 mM buforze Tris (pH 8,5).
- Dodać 26 mg monomeru dopaminy do zawiesiny.
- Mieszać mieszaninę w temperaturze pokojowej przez 3 h w warunkach zasadowych.
- Wirować zawiesinę przy 2370 × g przez 5 min w temperaturze pokojowej.
- Usunąć nadsącz i redyspergować osad w wodzie ultrapurej, aby otrzymać cząstki Fe₃O₄·Cy3.5@PDA (SPIONs).
- Opcjonalnie funkcjonalizować cząstki faloidyną-Alexa Fluor 350.
UWAGA: Supercząstki funkcjonalizowano powierzchniowo przy użyciu komercyjnie dostępnej faloidyny-Alexa Fluor 35020.- Przygotować 5 mL wodnego roztworu zawierającego 10 jednostek faloidyny-Alexa Fluor 350.
- Dodać 20 µL zawiesiny Fe₃O₄·Cy3.5@PDA zawierającej 2 mg cząstek do roztworu.
- Mieszać delikatnie mieszaninę w temperaturze pokojowej przez 24 h.
- Wirować mieszaninę przy 2370 × g przez 5 min w temperaturze pokojowej.
- Odlać nadsącz i redyspergować osad w wodzie dejonizowanej.
- Przechowywać końcową formulację Fe₃O₄·Cy3.5@PDA@phalloidin (f-SPIONs) w ciemności do momentu użycia.
2. Charakterystyka nanocząsteczek
- Określenie morfologii i rozmiaru.
- Przygotować próbki nanocząsteczek do transmisyjnej mikroskopii elektronowej (TEM) lub transmisyjnej mikroskopii elektronowej wysokiej rozdzielczości (HRTEM) zgodnie z wymaganiami urządzenia.
- Wykonać zdjęcia w celu określenia ogólnej morfologii cząsteczek, struktury rdzeń-powłoka oraz średnicy średniej (Rycina 1).
- Przygotować wodne zawiesiny nanocząsteczek do dynamicznego rozpraszania światła (DLS).
- Zmierzyć średnicę hydrodynamiczną oraz indeks polidyspersyjności (PDI).
- Porównać wyniki mikroskopii elektronowej i DLS w celu oceny jednorodności formulacji i zachowania koloidalnego.
- Określenie właściwości magnetycznych.
- Przygotować wysuszone lub skoncentrowane próbki nanocząsteczek odpowiednie do analizy za pomocą superprzewodzącego kwantowego interferometru (SQUID).
- Zarejestrować krzywe histerezy magnetycznej w temperaturze 30 K.
- Wyznaczyć namagnesowanie nasycenia, remanencję i koercyjność.
- Potwierdzić, że cząsteczki wykazują zachowanie superparamagnetyczne z pomijalną remanencją i koercyjnością.
- Określenie właściwości fluorescencyjnych.
- Przygotować zawiesinę f-SPION w ultrapurej wodzie dejonizowanej i przenieść zawiesinę do kuwety kwarcowej.
- Zarejestrować widma fotoluminescencji za pomocą spektrofluorometru.
- Potwierdzić, że sygnał fluorescencyjny pozostaje wykrywalny po przemyciu i resuspensji.
- Walidacja lokalizacji związanej z aktyną przy użyciu formulacji celowanej.
- Pozyskać komórki RSC96.
UWAGA: Komórki RSC96 użyte w tej badaniu, stanowiące spontanicznie przekształconą linię komórek Schwanna szczura, ustanowioną poprzez długotrwałą hodowlę pierwotnych komórek Schwanna szczura, zostały pozyskane z Banku Komórek Chińskiej Akademii Nauk w Szanghaju w Chinach (CSTR: 19375.09.3101RATGNR6) i przebadały negatywnie w kierunku kontaminacji mykoplazmami i grzybami. Wykorzystano komórki w pasażach 3–10. - Hodować komórki w podłożu Eagle modyfikowanym przez Dulbecco (DMEM) uzupełnionym o 10% płodowej surowicy bydlęcej (FBS) i 1% roztwór penicyliny i streptomycyny (10 U/mL penicyliny i 100 µg/mL streptomycyny).
- Zasiać komórki RSC96 w zagęszczeniu 1 × 10⁵ komórek na 35 mm szalkę mikroskopową do hodowli komórek i hodować je przez 24 h w temperaturze 37 °C w atmosferze nawilżonej zawierającej 5% CO₂, aby umożliwić adhezję komórek.
- Odssać istniejące podłoże hodowlane, przemyć komórki dwukrotnie solą fizjologiczną w buforze fosforanowym (PBS) i dodać kompletne podłoże hodowlane zawierające 15 µg/mL f-SPIONs. Inkubować komórki z f-SPIONs przez 12 h.
- Odssać podłoże hodowlane i przemyć komórki dwukrotnie lodowatym PBS zawierającym 1 mM deferoksaminy, aby dokładnie usunąć cząsteczki niezinternalizowane.
- Wykonać obrazy konfokalne w celu oceny wewnątrzkomórkowego rozkładu cząsteczek. Ustawić parametry obrazowania na pinhole o wielkości 1 jednostki Airy (AU) i krok z wynoszący 0,43 µm, aby uzyskać wysokorozdzielcze przekroje optyczne struktur wewnątrzkomórkowych.
- Zbadać, czy cząsteczki wykazują wzbogacenie w obszarach komórkowych związanych z aktyną.
- Pozyskać komórki RSC96.
3. Konstrukcja i kalibracja urządzenia do stymulacji elektromagnetycznej (Rycina 2)
- Zmontuj urządzenie elektromagnetyczne.
- Zbuduj kompaktowy system cewek elektromagnetycznych o rozmiarach dopasowanych do stolika mikroskopu konfokalnego i komory do hodowli żywych komórek (Rycina 2A,B).
- Podłącz cewkę do sterowalnego zasilacza lub zewnętrznego źródła prądu.
- Przeprowadź numeryczną symulację środowiska gradientowego pola magnetycznego przy użyciu oprogramowania COMSOL Multiphysics 4.3b (Rycina 2C,D).
- Potwierdź, że elektromagnes generuje odpowiednie gradientowe pole magnetyczne (GMF) przy różnych prądach wejściowych (Rycina 2G).
- Zmierz gęstość strumienia magnetycznego i skalibruj gradient pola magnetycznego.
- Ustaw elektromagnes obok naczynia hodowlanego tak, aby końcówka bieguna była skierowana w stronę środka naczynia i znajdowała się 1 mm od jego zewnętrznej ścianki (Rycina 2E,F).
- Zachowaj tę względną konfigurację geometryczną między elektromagnesem a naczyniem hodowlanym podczas wszystkich kolejnych eksperymentów z obrazowaniem i stymulacją siłą magnetyczną żywych komórek.
- Użyj cyfrowego gaussometru do pomiaru gęstości strumienia magnetycznego w zdefiniowanych pozycjach w obszarze stymulacji, wykorzystując siatkę pozycjonującą na dnie naczynia hodowlanego jako referencję przestrzenną.
- Oblicz lokalny gradient pola na podstawie przestrzennej zmiany gęstości strumienia magnetycznego.
- Skalibruj i zweryfikuj numerycznie symulowany gradient pola magnetycznego, korzystając z eksperymentalnie zmierzonych i obliczonych wartości gradientu pola magnetycznego.
4. Szacowanie sił magnetycznych generowanych przez platformę.
- Zdefiniuj model szacowania siły.
- Zastosowanie równania siły dla nanocząsteczek magnetycznych w niejednorodnym polu magnetycznym27,28:
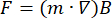
- Zakładając superparamagnetyczne uporządkowanie zgodnie z przyłożonym polem, uprość równanie do
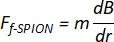
gdzie:
F jest siła nanomagnetyczna
m jest moment magnetyczny dipola
 jest gradient pola magnetycznego
dB/dr jest gradientem pola magnetycznego (T/m) generowanym przez odpowiadające mu urządzenie do generowania pola magnetycznego. - We wszystkich obliczeniach należy stosować zmierzony gradient pola z kalibrowanego urządzenia.
- Zastosowanie równania siły dla nanocząsteczek magnetycznych w niejednorodnym polu magnetycznym27,28:
- Oszacuj siłę działającą na pojedynczą nanocząsteczkę.
- Wyznaczenie średnich wymiarów cząstek na podstawie obrazów HRTEM.
- Oblicz objętość rdzenia magnetycznego, przyjmując geometrię sferyczną.
- Oszacuj objętość magnetyczną specyficzną dla Fe₃O₄ na podstawie frakcji magnetycznej rdzenia.
- Oblicz moment dipola magnetycznego zgodnie z
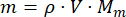
gdzie:
Mm reprezentuje namagnesowanie masowe f-SPIONs (16 A·m2/kg) przy danej natężeniu pola;
ρ czy gęstość Fe₃O₄ (5,24 g/cm³3).
V objętość magnetycznego rdzenia Fe₃O₄ w obrębie każdego f-SPION (5,89 × 10⁻17 cm3). - Pomnóż moment dipolowy przez zmierzony gradient pola, aby oszacować siłę działającą na pojedynczą nanocząsteczkę (
 ).
- Oszacowanie poboru nanocząstek przez pojedynczą komórkę Schwanna.
- Wysiać komórki Schwanna RSC96 w zagęszczeniu 5 × 10⁵ liczba komórek na dołek w 35 mm naczyniach mikroskopowych do hodowli komórkowej.
- Inkubować komórki przez 24 h w standardowych warunkach hodowli.
- Wymień pożywkę na świeżą pożywkę zawierającą 15 µg/mL f-SPIONy.
- Inkubować komórki przez kolejne 12 h.
- Przemyj komórki dwukrotnie lodowatym roztworem soli w soli fosforanowej (PBS) zawierającym 1 mM deferoksaminy.
- Zebrać i policzyć komórki.
- Pomiar wewnątrzkomórkowej zawartości żelaza z wykorzystaniem spektroskopii emisyjnej z plazmą sprzężoną indukcyjnie (ICP-AES).
- Oblicz liczbę zinternalizowanych cząsteczek na komórkę, dzieląc średnią masę żelaza na komórkę przez masę żelaza w jednej cząsteczce.
 .
- Oszacuj siłę przyłożoną do pojedynczej komórki Schwanna.
- Oblicz siłę na poziomie komórki zgodnie z
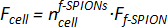
gdzie:
jest siła magnetyczna działająca na pojedynczy f-SPION.
 jest liczbą f-SPION-ów zinternalizowanych na jedną komórkę.
Fkomórka jest siłą magnetyczną działającą na pojedynczą komórkę. - Wynik należy podać jako szacunkową siłę magnetyczną działającą na pojedynczą komórkę Schwanna (Fkomórka).
- Należy wyraźnie zaznaczyć, że wartość ta jest szacunkiem opartym na modelu, a nie bezpośrednim pomiarem siły wewnątrzkomórkowej.
- Oblicz siłę na poziomie komórki zgodnie z
5. Połączenie stymulacji magnetycznej z obrazowaniem w czasie rzeczywistym za pomocą konfokalnej laserowej skaningowej mikroskopii (CLSM)
- Obciąż komórki Schwanna nanocząstkami magnetycznymi.
- Wysiać komórki Schwanna w kompatybilnych z obrazowaniem szalkach hodowlanych ibidi lub w mikrofluidycznych komorach hodowlanych.
- Pozostawić komórki do przylegania i rekonwalescencji.
- Wymień istniejące pożywkę na świeżą pożywkę hodowlaną zawierającą 15 µg/mL f-SPIONy.
- Inkubować komórki przez 12 h, aby umożliwić załadowanie f-SPION.
- Przed kontynuacją należy ocenić morfologię komórek.
- Usuń cząstki niezinternalizowane.
- Usunąć medium zawierające nanocząstki.
- Przemyć komórki dwukrotnie buforem PBS zawierającym 1 mM deferoksaminy.
- Zastąp roztwór piorący medium do hodowli żywych komórek kompatybilnym z obrazowaniem.
- Przed obrazowaniem należy potwierdzić niski poziom tła cząsteczek zewnątrzkomórkowych.
- Zintegruj urządzenie elektromagnetyczne z systemem obrazowania CLSM.
- Zmontuj elektromagnes z komorą do hodowli żywych komórek, umieszczając elektromagnes w jego uprzednio skalibrowanym położeniu.
- Umieść zmontowaną komorę do hodowli żywych komórek na stoliku mikroskopu konfokalnego (Rycina 3). Potwierdź, że szalka hodowlana znajduje się w obrębie efektywnego obszaru stymulacji (Rysunek 3A).
- Włączyć elektromagnes zgodnie z zadanymi parametrami i potwierdzić skuteczną ekspozycję na gradient pola magnetycznego w obszarze szalki hodowlanej (Rysunek 3B).
- Należy upewnić się, że obiektyw może dotrzeć do płaszczyzny ogniskowej bez żadnych przeszkód.
- Należy upewnić się, że urządzenie nie utrudnia pozycjonowania obiektywu ani ruchu stolika.
- Biorąc pod uwagę ciepło generowane podczas pracy elektromagnesu, należy dostosować ustawienia temperatury komponentów komory do żywych komórek zgodnie z wcześniej określonymi optymalnymi warunkami hodowli, aby zapewnić wewnętrzne środowisko o 37 °C oraz 5% CO₂ (Rycina 3C).
- Należy potwierdzić, że cały system pracuje prawidłowo i stabilnie.
- Funkcjonalny Ca2+2obrazowanie w żywych komórkach.
- Inkubować komórki w roztworze Krebsa-Ringera (pH 7,4) zawierającym 3 µM Fluo-4 AM i 0,1% Pluronic F-127 w 37 °C przez 30 min.
- Po inkubacji kultury należy dwukrotnie przemyć buforem PBS, a następnie przenieść je na platformę do obrazowania żywych komórek systemu CLSM w celu przeprowadzenia obrazowania (Rysunek 4A).
- Korzystając z siatki pozycjonującej znajdującej się na spodzie naczynia hodowlanego ibidi, wykonaj obrazy pięciu predefiniowanych lokalizacji.
- Podziel każde pole obrazowania na 25 równych obszarów i wybierz od 0 do 3 komórek z każdego obszaru do ilościowej analizy fluorescencji, w zależności od rzeczywistej gęstości komórek w danym obszarze.
- Zdefiniuj pełny obrys pojedynczej komórki jako obszar zainteresowania (ROI) i monitoruj magnetycznie indukowaną odpowiedź wapniową poprzez analizę zmian intensywności fluorescencji (ΔF) w obrębie ROI.
- Oblicz zmianę intensywności fluorescencji jako ΔF = (Fstymulacja - F0). Przyjmij zmianę intensywności fluorescencji przed i po stymulacji (ΔF/F0) przekraczające 10% uznaje się za zdarzenie odpowiedzi wapniowej.
UWAGA: Fniestymulowany reprezentuje intensywność fluorescencji przed stymulacją siłą magnetyczną, F0 reprezentuje bazową intensywność fluorescencji, a Fstymulacja reprezentuje wywołaną intensywność fluorescencji po stymulacji siłą magnetyczną. - W celu korekcji tła należy odjąć średnią intensywność fluorescencji tła, zmierzoną w obszarze wolnym od komórek, od wartości intensywności fluorescencji każdego ROI.
- Należy przeprowadzić trzy niezależne eksperymenty, uwzględniając jedną szalkę hodowlaną w każdym z nich.
- Wykonaj obrazowanie time-lapse i zastosuj stymulację magnetyczną podczas obrazowania.
- Parametry obrazowania time-lapse należy ustawić w następujący sposób: interwał akwizycji 2,1 s na klatkę, całkowity czas akwizycji 650 s oraz standardowe obrazowanie w wysokiej rozdzielczości z sekcjonowaniem optycznym przy użyciu 1 AU.
- Podczas obrazowania komórkowego należy rejestrować obrazy w sposób ciągły przez 50 s bez przyłożenia prądu, aby zapisać intensywność fluorescencji wapnia wewnątrzkomórkowego w warunkach braku stymulacji siłą magnetyczną (Fniestymulowany) (Rysunek 2H i Rysunek 4B).
- Znormalizuj intensywność fluorescencji zarejestrowaną podczas pierwszych 50 s i zdefiniuj ją jako bazową intensywność fluorescencji (F₀)0).
- Następnie przykładamy do elektromagnesu stały prąd o natężeniu 3,0 A, wystawiając komórki Schwanna obciążone nanocząsteczkami magnetycznymi na gradient pola magnetycznego o wartości 3,25 T/m, a tym samym poddając je stymulacji siłą magnetyczną. Kontynuujemy obrazowanie time-lapse przez 10 min, aby zarejestrować intensywność wewnątrzkomórkowej fluorescencji wapnia podczas stymulacji siłą magnetyczną (Fstymulacja) (Rysunek 2H i Rycina 4C).
- Oblicz ilościowo zmianę natężenia fluorescencji jako ΔF/F0 (Rysunek 4D,E).
- Przeprowadź analizę statystyczną i przeanalizuj poziom Ca2dane fluorescencyjne⁺
- Dla każdej komórki oblicz medianę wartości ΔF/F₀ w analizowanych szeregach czasowych i wykorzystaj tę wartość jako poziom Ca w komórce.2metryka odpowiedzi ⁺
- Przeprowadź trzy niezależne eksperymenty dla każdego warunku doświadczalnego, wykorzystując w każdym eksperymencie jedną płytkę hodowlaną na warunek. Połącz komórki przeanalizowane w trzech niezależnych eksperymentach w celu prezentacji opisowej i podaj wartość n jako całkowitą liczbę przeanalizowanych komórek w każdej grupie.
- Oceń normalność rozkładu danych ΔF/F₀ na poziomie pojedynczych komórek za pomocą testu Kołmogorowa-Smirnowa.
- Ponieważ Ca2Jeśli dane dotyczące odpowiedzi fluorescencyjnej nie mają rozkładu normalnego, dane należy przedstawić jako medianę i rozstęp międzykwartylowy (IQR).
- Analizę różnic między grupami przeprowadzono przy użyciu nieparametrycznego testu Friedmana, a następnie testów znakowych Wilcoxona w celu wykonania porównań parzystych, zgodnie z wcześniej opisaną procedurą.
- Rozważ P < 0,05 w celu oznaczenia istotności statystycznej.
Wyniki
wysokorozdzielcza transmisyjna mikroskopia elektronowa (HRTEM) wykazała, że końcowa formulacja nanocząsteczek posiadała skupiony rdzeń magnetyczny oraz zewnętrzną otoczkę po modyfikacji powierzchniowej (Rysunek 1). Końcowe f-SPIONs miały średnią całkowitą średnicę 63.36 ± 16.65 nm, z bogatym w Fe₃O₄ rdzeniem magnetycznym o rozmiarze około 56.60 ± 6.19 nm oraz zewnętrzną otoczką składającą się z polidopaminy i faloidyny-Alexa Fluor 350 o średniej grubości około 5.79 ± 1.36 nm. Wyniki te potwierdziły pomyślną konstrukcję architektury supercząsteczek odpowiedniej do aktywacji magnetycznej i wizualizacji opartej na fluorescencji.
Analiza histerezy magnetycznej wykazała, że cząstki wykazują wyraźne właściwości superparamagnetyczne, przy pomijalnej remanencji i koercji. Przy przyłożonym polu magnetycznym o natężeniu 10 0 Oe (1,0 T) ich namagnesowanie nasycenia osiągnęło wartość około 35 A·m2/kg (Rysunek 5). W przypadku braku gradientu pola magnetycznego f-SPIONs wykazywały dobrą dyspersyjność w środowisku wodnym (Rysunek 6A). Po wystawieniu na działanie gradientowego pola magnetycznego f-SPIONs wykazały wysoką responsywność magnetyczną (Rysunek 6B). Analiza fluorescencji dodatkowo potwierdziła, że cząstki zachowały wykrywalność optyczną po syntezie i modyfikacji powierzchniowej (Rysunek 7).
Urządzenie do stymulacji elektromagnetycznej zostało pomyślnie zintegrowane z systemem obrazowania żywych komórek (Rycina 3). Kalibracja pola magnetycznego wykazała, że urządzenie generuje stabilny gradient pola magnetycznego w obszarze hodowli komórkowej (Rycina 2E,F), z gradientem pola magnetycznego in vitro wynoszącym około 3,25 T/m przy obecnej konfiguracji eksperymentalnej (Rycina 2G).
Obrazowanie konfokalne wykazało efektywne wprowadzanie fluorescencyjnych nanocząstek magnetycznych do komórek Schwanna (Rysunek 7). Po przemyciu sygnał fluorescencyjny pozostał związany głównie z komórkami, a nie z wolnymi cząstkami w medium. W przypadku formulacji ukierunkowanej na aktynę obrazowanie konfokalne wykazało ponadto wzbogacenie cząstek w obszarach komórkowych związanych z aktyną.
Obrazowanie konfokalne w trybie time-lapse wykazało, że stymulacja magnetyczna oraz obrazowanie żywych komórek mogą być przeprowadzane w ramach tego samego schematu doświadczalnego, przy jednoczesnym zachowaniu stabilnego dostępu optycznego do komórek przez cały okres stymulacji (Rycina 2H oraz Rycina 4A).
Ilościowe podsumowanie dodatkowo powiązało projekt nanocząsteczek, kalibrację urządzenia i obciążenie komórkowe. W warunkach in vitro w gradiencie pola magnetycznego 3,25 T/m siłę magnetyczną działającą na pojedynczą f-SPION oszacowano na około 1,59 × 10⁻⁵ pN. Na podstawie ilościowego oznaczenia żelaza wewnątrzkomórkowego ustalono, że każda komórka Schwanna RSC96 zinternalizowała około 9,30 ± 2,8 × 10³ cząsteczek, co odpowiada szacowanej całkowitej sile magnetycznej wynoszącej około 0,15 ± 0,05 pN na komórkę.
W porównaniu z fluorescencją wyjściową, pod wpływem stymulacji magnetycznej pośredniczonej przez f-SPIONs, komórki RSC96 wykazały aktywną dynamikę Ca2+ oraz znacząco zwiększone sygnały fluorescencji Ca2+ (Rycyna 4D). Analiza ilościowa sygnałów fluorescencji Ca2+ wykazała, że zmiana intensywności fluorescencji Ca2+ (ΔF/F0) w komórkach RSC96 w grupie stymulacji magnetycznej (62,96 [35,07–91,67]) była znacząco wyższa niż w grupie kontrolnej normalnej (-5,74 [-15,66–1,20]), grupie kontrolnej f-SPIONs (-16,70 [-2,02–-12,0]) oraz grupie kontrolnej z gradientowym polem magnetycznym (-12,90 [-21,24–-6,97]) (Rycyna 4E).
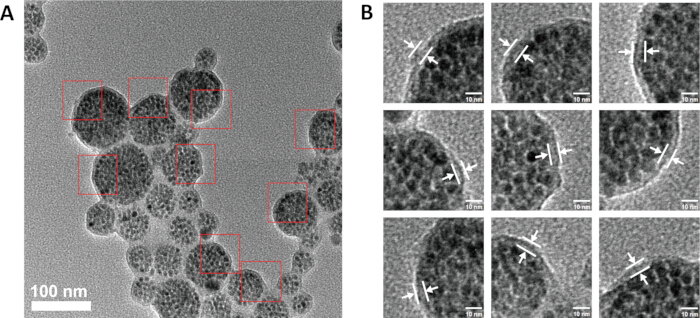
Rysunek 1Morfologia i struktura rdzeń-powłoka f-SPIONs w obrazowaniu HRTEM. (A) f-SPIONy mają kształt sferyczny i wykazują typową strukturę rdzeń-powłoka, z wewnętrznym rdzeniem magnetycznym składającym się z nanocząsteczek Fe₃O₄ oraz Cy3.5.B) Zewnętrzna otoczka składa się z PDA i faloidyny-Alexa Fluor 350. Obrazy w panelu B przedstawiają reprezentatywne powiększenia obszarów zaznaczonych czerwonymi ramkami w panelu A, przy czym białe linie i strzałki wskazują zmierzoną grubość otoczki. Pasek skali w panelu B odpowiada 10 nm. Wykonano trzy niezależne pomiary, analizując łącznie 680 nanocząstek. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
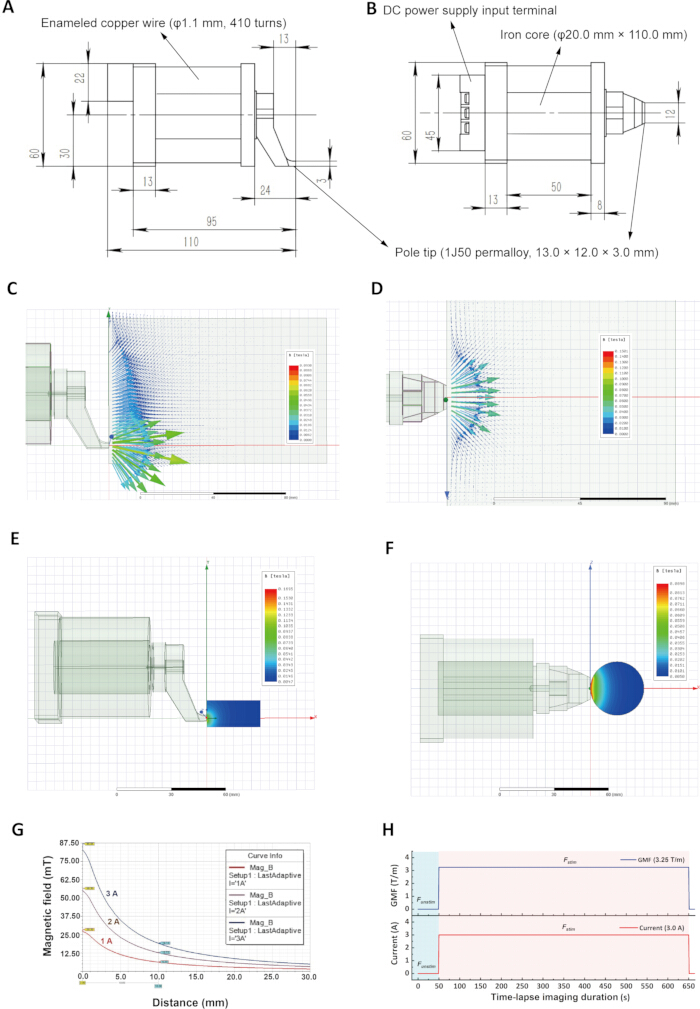
Rysunek 2Budowa, kalibracja i obsługa niestandardowego elektromagnesu do stymulacji magnetycznej żywych komórek. (A,B) Cewkę elektromagnesu nawinięto na rdzeń żelazny, używając emaliowanego drutu miedzianego o średnicy 1,1 mm, wykonując łącznie 410 zwojów. Cewka miała średnicę zewnętrzną 60 mm, średnicę wewnętrzną 20 mm, długość 10 mm oraz rezystancję prądu stałego wynoszącą około 1,2 Ω. Grot bieguna miał wymiary 13,0 mm × 12,0 mm × 3,0 mm (długość × szerokość × wysokość) i został wykonany z permaloju 1J50.C,DMaksymalny prąd wejściowy elektromagnesu nie przekroczył 3 A. Przy prądzie wejściowym 3 A w pobliżu wierzchołka bieguna generowano gradient pola magnetycznego o wartości około 6,7 T/m.E,F) Rozkład gradientu pola magnetycznego wewnątrz naczynia hodowlanego w pobliżu wierzchołka bieguna przy prądzie wejściowym 3 A. W obszarze obrazowania komórkowego wygenerowano średni statyczny gradient pola magnetycznego o wartości około 3,25 T/m. (G) Gradienty pola magnetycznego generowane przez elektromagnes przy różnych prądach wejściowych wynoszących 1 A, 2 A i 3 A. (H) Protokół obrazowania time-lapse żywych komórek, aplikacji prądu oraz ekspozycji na gradientowe pole magnetyczne w niniejszym badaniu. Obrazy time-lapse pozyskiwano w sposób ciągły przez 50 s bez dopływu prądu. Następnie przyłożono stały prąd ciągły o natężeniu 3,0 A i kontynuowano obrazowanie time-lapse przez 10 min. DC: prąd stały. GMF: gradientowe pole magnetyczne. Panele E, F i G zostały zaadaptowane za zgodą Liu i wsp.20. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
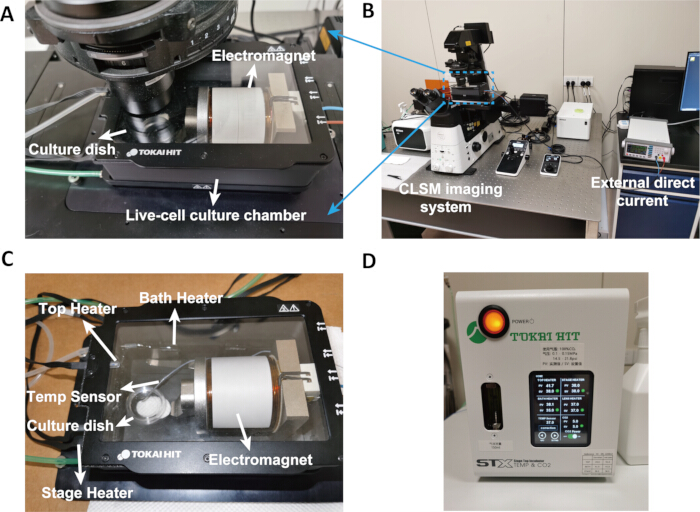
Rycina 3Integracja elektromagnesu z komorą do hodowli żywych komórek. (A) Dostosowany kompaktowy elektromagnes umieszczony w skalibrowanej lokalizacji wewnątrz komory do hodowli żywych komórek w celu ekspozycji obszaru naczynia z hodowlą komórkową na gradient pola magnetycznego.B) Zintegrowana konfiguracja systemu obrazowania CLSM, platformy magnetycznego nanoaktuacji oraz zewnętrznego zasilacza prądu stałego. (C) Optymalizacja ustawień temperatury dla poszczególnych elementów komory do hodowli komórkowych zapewnia stabilną temperaturę w naczyniu hodowlanym podczas pracy elektromagnesu. (D) Parametry ustawiania temperatury dla poszczególnych komponentów komory do hodowli komórek. CLSM: konfokalna laserowa mikroskopia skaningowa. PV: wartość zmierzona. SV: wartość zadana. Top Heater: temperatura grzałki górnej pokrywy. Stage heater: temperatura grzania stolika mikroskopu i dna komory hodowlanej. Bath heater: temperatura kąpieli wodnej. Lens heater: temperatura grzałki obiektywu. Temp sensor: rzeczywista temperatura mierzona przez sondę temperatury. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
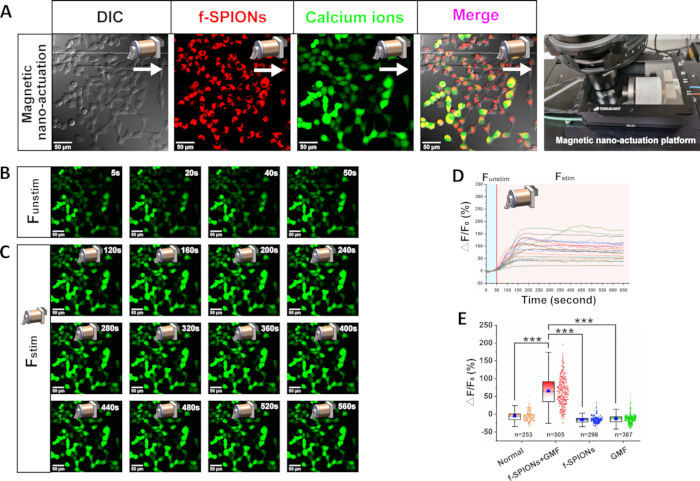
Rysunek 4Reprezentatywne obrazy odpowiedzi wapniowych w komórkach Schwanna pod wpływem stymulacji siłą magnetyczną. (A) Zintegrowany schemat postępowania dla stymulacji magnetycznej i obrazowania poziomu wapnia w żywych komórkach2+ obrazowanie w platformie magnetycznej nanoaktuacji. (B) Wyjściowy poziom Ca2+ obraz fluorescencyjny uzyskany przed stymulacją magnetyczną (Fniestymulowany). (C) Ca2+ obraz fluorescencyjny uzyskany po stymulacji magnetycznej (Fstymulacja), przedstawiające zmianę intensywności fluorescencji (ΔF). (D) Pomiar stężenia Ca w funkcji czasu2+ ślady sygnałów monitorowane przed i po stymulacji magnetycznej. (E) Analiza ilościowa i porównanie zmian w poziomie Ca2+ fluorescencji (ΔF/F₀) pomiędzy różnymi grupami eksperymentalnymi. DIC: mikroskopia kontrastowo-interferencyjna. Fniestymulowanyintensywność fluorescencji przed stymulacją siłą magnetyczną. F0: bazowa intensywność fluorescencji. Fstymulacjaintensywność fluorescencji wywołana stymulacją siłą magnetyczną. ΔF: zmiana intensywności fluorescencji. „Normal” oznacza grupę kontrolną normalną, „f-SPIONs+GMF” oznacza grupę nanoaktywacji magnetycznej, „f-SPIONs” oznacza grupę kontrolną f-SPIONs, a „GMF” oznacza grupę kontrolną gradientowego pola magnetycznego. Przeprowadzono trzy niezależne eksperymenty, stosując jedną szalkę hodowlaną na warunek eksperymentalny w każdym z nich. Dla każdej komórki jako miarę odpowiedzi na poziomie komórkowym przyjęto medianę wartości ΔF/F₀ z analizowanych szeregów czasowych. Dane przedstawiono jako medianę i rozstęp ćwiartkowy (IQR), a n oznacza całkowitą liczbę komórek przeanalizowanych w trzech niezależnych eksperymentach. Analizę statystyczną przeprowadzono za pomocą testu Friedmana, a następnie testu Wilcoxona, zgodnie z wcześniejszymi doniesieniami Liu et al. Dane ilościowe w panelu E zostały zaadaptowane za zgodą autorów Liu et al.20. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
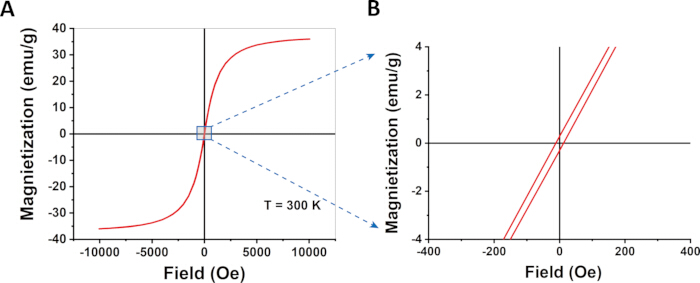
Rysunek 5Właściwości superparamagnetyczne f-SPIONs. (A) Pętla histerezy magnetycznej f-SPIONs, wykazująca typowe zachowanie superparamagnetyczne. (B) Powiększony widok pętli histerezy w pobliżu zerowego pola magnetycznego. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
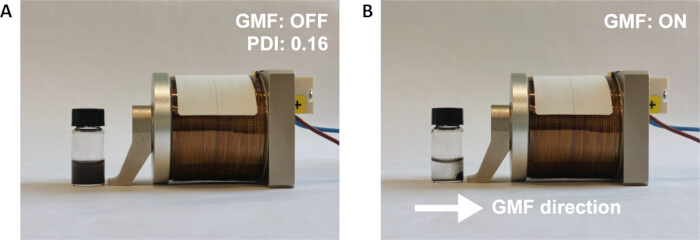
Rycina 6Rozpuszczalność w wodzie i odpowiedź na gradient pola magnetycznego f-SPIONs. (AW przypadku braku gradientowego pola magnetycznego f-SPIONs pozostają dobrze zdyspersowane w środowisku wodnym.B) Po przyłożeniu gradientowego pola magnetycznego f-SPIONs szybko migrują i gromadzą się zgodnie z kierunkiem gradientu pola. GMF: Gradientowe pole magnetyczne. PDI: Indeks polidyspersyjności. Strzałka wskazuje kierunek gradientowego pola magnetycznego. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
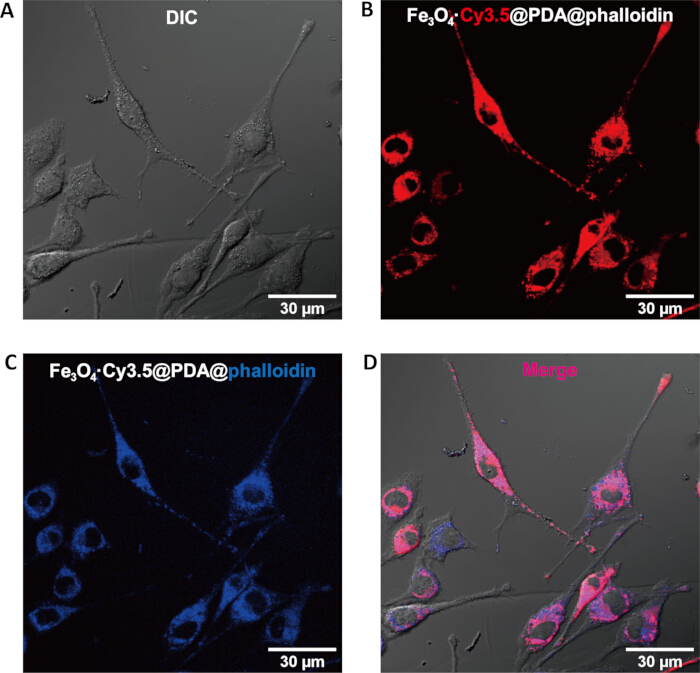
Rysunek 7Obrazowanie fluorescencyjne CLSM w celu oceny internalizacji f-SPION w komórkach Schwanna. (AObrazowanie CLSM komórek Schwanna po wspólnej inkubacji z f-SPIONs (15 µg/mL) przez 12 h, a następnie przemywanie (pinhole = 1 AU; z-step = 0.43 µm), wykazując zachowaną morfologię komórek i minimalne tło w postaci cząsteczek zewnątrzkomórkowych. (B) Czerwona fluorescencja wykryta w kanale Cy3.5 (Ex/Em: 561–568/607 nm) wskazuje na obecność f-SPIONs znakowanych Cy3.5 wewnątrz komórek Schwanna.C) Wykryto niebieską fluorescencję w kanale Alexa Fluor 350 (Ex/Em: 350–360 nm/40–460 nm), co potwierdza pomyślną inkorporację modułu funkcjonalizacji phalloidin-Alexa Fluor 350.D) Obraz scalony wykazujący znaczny stopień pokrycia przestrzennego sygnałów fluorescencji czerwonej i niebieskiej, co jest zgodne z prawidłowym wytworzeniem magnetyczno-fluorescencyjnych supercząsteczek. DIC: mikroskopia kontrastowo-interferencyjna. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Nanocząstki tlenku żelaza są powszechnie uznawane za nanomateriały magnetyczne o korzystnej biokompatybilności. Superparamagnetyczne nanocząstki Fe₃O₄, szeroko stosowane jako środki kontrastowe w obrazowaniu rezonansem magnetycznym, znajdują rozległe zastosowanie w klinicznej diagnostyce obrazowej29,30. W niedawnym badaniu przeprowadzonym przez naszą grupę20 wykazano, że f-SPIONs charakteryzują się niezwykle niską cytotoksycznością i doskonałym bezpieczeństwem biologicznym. Nanomagnetyczna platforma aktywacyjna, zbudowana z wykorzystaniem f-SPIONs jako aktuatorów mechanicznych w połączeniu z regulowanym elektromagnesem, skutecznie aktywowała dynamikę cytoszkieletu w komórkach Schwanna, indukowała otwarcie mechanosensorycznego kanału jonowego Piezo1, wyzwalała napływ Ca2⁺ przez błonę komórkową, a w konsekwencji promowała „reprogramowanie” ekspresji genów oraz zmiany fenotypowe w komórkach20.
Kilka etapów jest szczególnie istotnych dla pomyślnego wdrożenia tej platformy. Pierwszym krytycznym krokiem jest przygotowanie nanocząsteczek. Cząsteczki muszą pozostać dobrze rozproszone, magnetycznie responsywne i optycznie wykrywalne po syntezie i modyfikacji powierzchni. Agregacja na dowolnym etapie może zmniejszyć spójność wychwytu komórkowego, zmienić efektywne właściwości magnetyczne i pogorszyć jakość obrazowania żywych komórek.
Drugim krytycznym krokiem jest procedura ładowania komórkowego i przemywania. Stężenie nanocząstek oraz czas inkubacji muszą być wystarczające, aby uzyskać wykrywalne ładowanie wewnątrzkomórkowe, nie powodując jednocześnie nadmiernej akumulacji zewnątrzkomórkowej ani nie naruszając morfologii komórek. Dokładne usunięcie cząstek niezinternalizowanych i związanych z błoną jest niezbędne, szczególnie w przypadku wykorzystania obrazowania fluorescencyjnego do oceny lokalizacji wewnątrzkomórkowej. Niewłaściwe przemywanie może prowadzić do błędnej interpretacji wzorców lokalizacji i może również zniekształcić szacunki sił na poziomie komórkowym.
Trzecim krytycznym krokiem jest geometryczne wyrównanie urządzenia do stymulacji magnetycznej względem próbki. Ponieważ siła magnetyczna zależy bezpośrednio od lokalnego gradientu pola, względna pozycja cewki elektromagnetycznej i płaszczyzny próbki musi pozostać zgodna z konfiguracją kalibracyjną. Nawet niewielkie zmiany w odległości lub wyrównaniu cewki względem próbki mogą zmienić efektywne warunki stymulacji.
Platformę można modyfikować w zależności od analizowanego problemu biologicznego. W przypadkach, gdy ogólne obciążenie magnetyczne i przyłożona siła są wystarczające, można stosować supercząstki fluorescencyjne pokryte PDA (SPIONs) bez funkcjonalizacji celującej w aktynę. Gdy pożądana jest lokalizacja subkomórkowa w pobliżu regionów bogatych w aktynę, można zamiast nich zastosować formulację funkcjonalizowaną faloidyną (f-SPIONs). Ta modułowość stanowi praktyczną zaletę platformy.
Obecna technika posiada kilka ograniczeń. Po pierwsze, obliczona liczba cząsteczek magnetycznych pobranych przez komórkę reprezentuje wartość średnią dla całej populacji, podczas gdy obciążenie cząsteczkami na poziomie pojedynczej komórki nieuchronnie wykazuje heterogenność. Po drugie, wartości siły magnetycznej raportowane w niniejszym badaniu są szacunkami opartymi na modelu, a nie bezpośrednimi pomiarami wewnątrzkomórkowych obciążeń mechanicznych. Po trzecie, niniejszy protokół został zaprojektowany i opracowany głównie dla komórek Schwanna hodowanych w warunkach obrazowania in vitro. W gęstych trójwymiarowych systemach hodowli komórkowych oraz w tkankach może być wymagana znaczna optymalizacja, ponieważ pobieranie nanocząsteczek, ich wewnątrzkomórkowy rozkład, dostępność optyczna oraz sprzężenie mechaniczne mogą różnić się od tych w hodowlach dwuwymiarowych. Wreszcie, opcjonalna strategia celowania w aktynę zwiększa prawdopodobieństwo lokalizacji cząsteczek w obszarach związanych z aktyną, ale nie gwarantuje jednolitego ani specyficznego celowania we wszystkie struktury bogate w aktynę w żywych komórkach.
Pomimo tych ograniczeń, prezentowana platforma magnetycznej nanoaktuacji oferuje kilka wyraźnych zalet metodologicznych w porównaniu z istniejącymi technikami dostarczania siły. Na przykład mikroskopia sił atomowych (AFM) umożliwia precyzyjne, zlokalizowane przyłożenie siły, ale wymaga bezpośredniego kontaktu mechanicznego z celem i nie zawsze daje się łatwo zintegrować z długoterminowym obrazowaniem żywych komórek8. Systemy oparte na rozciąganiu oraz zaprojektowane podłoża mogą dostarczać sygnałów mechanicznych na poziomie populacji komórek, jednak opierają się one na zdefiniowanych interfejsach materiałowych i nie nadają się do zdalnego dostarczania siły wewnątrzkomórkowej10. Pęsety optyczne zapewniają wysoką rozdzielczość przestrzenną przyłożenia siły, ale niosą ze sobą ryzyko uszkodzenia tkanki wywołanego laserem8. Metody oparte na mikropipetach są stosunkowo proste w obsłudze, lecz charakteryzują się relatywnie niską przepustowością i rozdzielczością siły12. Systemy mikrofluidyczne są korzystne do generowania specyficznych mechanicznych mikrośrodowisk, takich jak naprężenie ścinające i ciśnienie płynu, ale napotykają trudności techniczne w odtwarzaniu złożonych środowisk komórkowych i integrowaniu wielu trybów stymulacji mechanicznej11. W przeciwieństwie do nich, obecna platforma integruje zdalną, bezkontaktową stymulację, sterowalną aktuację magnetyczną, śledzenie cząstek oparte na fluorescencji oraz bezpośrednią kompatybilność z konfokalnym obrazowaniem w czasie rzeczywistym w ramach jednego procesu roboczego.
Tę samą ogólną strategię można dostosować do innych typów komórek reagujących mechanicznie oraz bardziej złożonych modeli biologicznych. Może ona zostać rozszerzona na gęstsze systemy wielokomórkowe, takie jak organoidy neuronalne, cysty nabłonkowe lub nabłonki podobne do komórek nerki psa Madin-Darby (MDCK). W takich układach wymagana byłaby dodatkowa optymalizacja w zakresie penetracji cząstek, ich rozkładu oraz szacowania sił w mechanicznie sprzężonych próbkach trójwymiarowych. Pomimo tych wyzwań, obecny schemat postępowania stanowi praktyczną podstawę dla szerszego rozwoju strategii stymulacji magnetomechanicznej w systemach żywych.
Oświadczenia
Autorzy oświadczają, że nie istnieją żadne konkurencyjne interesy finansowe.
Podziękowania
Praca ta była wspierana przez National Natural Science Foundation of China (granty nr 82571677 i 82001304 dla Y.W.), Special Program for Medical and Health Care Talents w prowincji Jilin (grant nr JLSRCZX2025-134 dla Y.W.) oraz Bethune Program Project na Uniwersytecie w Jilin (grant nr 2024B19 dla Y.W.). Autorzy dziękują College of Chemistry na Uniwersytecie w Jilin (State Key Laboratory of Supramolecular Structure and Materials) oraz Changchun Institute of Applied Chemistry przy Chińskiej Akademii Nauk za pomoc w projektowaniu, syntezie i charakteryzacji nanomateriałów. Autorzy dziękują również Institute of Translational Medicine w The First Hospital of Jilin University za pomoc w obrazowaniu CLSM.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1,2-heksadekanodiol | Sigma-Aldrich | 213748 | Stopień techniczny, 90%; stosowany w syntezie z rozkładem termicznym |
| ibidi 35 mm µ-szalki | ibidi | 80156 | Stosowane do hodowli i obrazowania komórek Schwanna |
| Eter benzylowy | Sigma-Aldrich | 108014 | 98%; rozpuszczalnik dla Fe3O4 synteza nanocząstek |
| Konfokalny skaningowy mikroskop laserowy | Nikon | AXR (Ti2-E) | Stosowane do obrazowania żywych komórek oraz obrazowania fluorescencyjnego |
| Niestandardowy elektromagnes | Własnej konstrukcji | Nie dotyczy | Kompaktowy jednobiegunowy elektromagnes do generowania gradientowego pola magnetycznego in vitro |
| Kwas cyjaniny 3,5-karboksylowy | Duofluor Inc. | D10128 | Barwnik fluorescencyjny stosowany do wykrywania Fe3O4·montaż supercząsteczek Cy3.5; MW 593,20; przechowywać w temp. -20 °C, chroniąc przed światłem |
| Solem mezylanu deferoksaminy | Sigma-Aldrich | D9533 | Chelator żelaza stosowany do usuwania żelaza niezinternalizowanego i związanego z błoną |
| Cyfrowy gaussometr | WEITE MAGNETIC | WT103 | Służy do pomiaru gęstości strumienia magnetycznego i kalibracji gradientu pola magnetycznego generowanego przez niestandardowy elektromagnes |
| Chlorowodorek dopaminy | Sigma-Aldrich | H8502 | ≥98% (TLC); stosowany do powlekania polidopaminą |
| Urządzenie do dynamicznego rozpraszania światła | Malvern Instruments | Zetasizer Nano-ZS | Stosowane do pomiaru średnicy hydrodynamicznej oraz PDI |
| Fluo-4 AM | Invitrogen, Thermo Fisher Scientific | F14201 | Wskaźnik wapnia stosowany do pomiarów Ca w żywych komórkach2+ obrazowanie |
| Spektrofluorometr | Shimadzu | RF-6000 | Stosowane do charakterystyki fotoluminescencyjnej |
| transmisyjny mikroskop elektronowy wysokiej rozdzielczości | JEOL | JEM-F200 | Stosowane do obrazowania morfologii i rdzenia nanocząstek za pomocą HRTEM–struktura powłokowa |
| Spektrometr emisyjny z plazmą indukcyjnie sprzężoną | PerkinElmer | Optima 3300 DV | Stosowane do ilościowego oznaczania żelaza wewnątrzkomórkowego |
| Acetyloacetonian żelaza(III), Fe(acac)3 | Sigma-Aldrich | F300 | 97%; prekursor dla Fe3O4 synteza nanocząstek |
| Inkubator nadstolikowy do hodowli komórek żywych | TOKAI HIT | TENP&tlenek węgla (II)2 | Stosowane do konfokalnego obrazowania żywych komórek podczas stymulacji magnetycznej |
| Kwas oleinowy | Sigma-Aldrich | O1008 | ≥99% (GC); ligand powierzchniowy dla Fe3O4 synteza nanocząstek |
| Oleyloamina | Sigma-Aldrich | O7805 | Klasa techniczna, 70%; ligand do syntezy nanocząstek |
| Faloidyna–Alexa Fluor 350 | Invitrogen, Thermo Fisher Scientific | A22281 | Opcjonalny odczyn do funkcjonalizacji nakierowanej na aktynę |
| Pluronic F-127 | Invitrogen, Thermo Fisher Scientific | P3000MP | Stosowane w celu ułatwienia wprowadzania Fluo-4 AM do żywych komórek w celu pomiaru stężenia Ca2+2+ obrazowanie |
| Programowalny regulowany zasilacz prądu stałego | Tongmen | eTM-L605SPL (60 V, 5 A) | Służy do zasilania niestandardowego elektromagnesu do generowania gradientu pola magnetycznego in vitro |
| komórki Schwanna RSC96 | Bank Komórek Chińskiej Akademii Nauk | Nie dotyczy | Linia komórek Schwanna pochodzenia szczurzego |
| Dodcylo硫酸 sodu (SDS) | Sigma-Aldrich | 436143 | odczynnik klasy ACS, ≥99,0%; surfaktant do mikroemulsji typu olej w wodzie |
| magnetometr SQUID | Quantum Design Inc. | MPMS-XL | Stosowane do pomiaru histerezy magnetycznej w temperaturze 300 K |
| Toluen | Sigma-Aldrich | 244511 | Bezwodny, 99,8%; rozpuszczalnik do montażu supercząstek |
| Transmisyjny mikroskop elektronowy | FEI | EP 5018/40, Tecnai Spirit Biotwin | Stosowane do obserwacji ultrastruktury tkanek komórkowych i nerwowych |
Bibliografia
- Cheng B, et al. Mechanobiology across timescales. Nat Rev Phys. 2025;7:621-44.
- Di X, et al. Cellular mechanotransduction in health and diseases: from molecular mechanism to therapeutic targets. Signal Transduct Target Ther. 2023;8:282.
- Pillai EK, Franze K. Mechanics in the nervous system: from development to disease. Neuron. 2024;112(3):342-61.
- Franze K. The mechanical control of nervous system development. Development. 2013;140(15):3069-77.
- Franze K, Guck J. The biophysics of neuronal growth. Rep Prog Phys. 2010;73:094601.
- Moore SW, Sheetz MP. Biophysics of substrate interaction: influence on neural motility, differentiation, and repair. Dev Neurobiol. 2011;71(11):1090-101.
- Franze K, Janmey PA, Guck J. Mechanics in neuronal development and repair. Annu Rev Biomed Eng. 2013;15:227-51.
- Sun W, et al. Biophysical approaches for applying and measuring biological forces. Adv Sci (Weinh). 2022;9(5):e2105254.
- Mohammed D, et al. Innovative tools for mechanobiology: unraveling outside-in and inside-out mechanotransduction. Front Bioeng Biotechnol. 2019;7:162.
- Constantinou I, Bastounis EE. Cell-stretching devices: advances and challenges in biomedical research and live-cell imaging. Trends Biotechnol. 2023;41:939-50.
- Polacheck WJ, Li R, Uzel SGM, Kamm RD. Microfluidic platforms for mechanobiology. Lab Chip. 2013;13(12):2252-67.
- Li Z, et al. Non-invasive acquisition of mechanical properties of cells via passive microfluidic mechanisms: a review. Biomicrofluidics. 2021;15(3):031501.
- Xiao Y, Du J. Superparamagnetic nanoparticles for biomedical applications. J Mater Chem B. 2020;8(3):354-67.
- Yang X, et al. Nanotechnology enables novel modalities for neuromodulation. Adv Mater. 2021;33(52):e2103208.
- Semeano AT, et al. Effects of magnetite nanoparticles and static magnetic field on neural differentiation of pluripotent stem cells. Stem Cell Rev Rep. 2022;18(4):1337-54.
- Lee B, et al. Design of oxide nanoparticles for biomedical applications. Nat Rev Mater. 2025;10:252-67.
- Kim YJ, et al. Magnetoelectric nanodiscs enable wireless transgene-free neuromodulation. Nat Nanotechnol. 2025;20:121-31.
- Signorelli L, Hescham SA, Pralle A, Gregurec D. Magnetic nanomaterials for wireless thermal and mechanical neuromodulation. iScience. 2022;25(11):105401.
- Liu T, Wang Y, Lu L, Liu Y. SPIONs-mediated magnetic actuation promotes nerve regeneration by inducing and maintaining repair-supportive phenotypes in Schwann cells. J Nanobiotechnology. 2022;20:159.
- Liu T, et al. f-SPION-mediated magnetic stimulation induces reparative Schwann cell reprogramming via cytoskeletal dynamics-gated activation of Piezo1. J Nanobiotechnology. 2026;24:298.
- Jessen KR, Mirsky R, Lloyd AC. Schwann cells: development and role in nerve repair. Cold Spring Harb Perspect Biol. 2015;7(7):a020487.
- Jessen KR, Mirsky R. The repair Schwann cell and its function in regenerating nerves. J Physiol. 2016;594(13):3521-31.
- Sun S, Zeng H. Size-controlled synthesis of magnetite nanoparticles. J Am Chem Soc. 2002;124(28):8204-5.
- Zhuang J, Wu H, Yang Y, Cao YC. Controlling colloidal superparticle growth through solvophobic interactions. Angew Chem Int Ed Engl. 2008;47(12):2208-12.
- Bai F, et al. A versatile bottom-up assembly approach to colloidal spheres from nanocrystals. Angew Chem Int Ed Engl. 2007;46(35):6650-3.
- Tang L, et al. Investigating the optimal size of anticancer nanomedicine. Proc Natl Acad Sci U S A. 2014;111(43):15344-9.
- Tay A, Kunze A, Murray C, Di Carlo D. Induction of calcium influx in cortical neural networks by nanomagnetic forces. ACS Nano. 2016;10(2):2331-41.
- Tay A, Di Carlo D. Magnetic nanoparticle-based mechanical stimulation for restoration of mechano-sensitive ion channel equilibrium in neural networks. Nano Lett. 2017;17(2):886-92.
- Cheng FY, et al. Characterization of aqueous dispersions of Fe(3)O(4) nanoparticles and their biomedical applications. Biomaterials. 2005;26(7):729-38.
- Lee N, et al. Iron oxide-based nanoparticles for multimodal imaging and magnetoresponsive therapy. Chem Rev. 2015;115(19):10637-89.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny