Rośliny strączkowe wchodzą w symbiozę z glebą bakterie tworzące guzki korzeniowe, w których bakterie wiążą azot atmosferyczny na potrzeby rośliny. Mikro-tomografia komputerowa (MicroCT) umożliwia nieniszczące obrazowanie 3D organizacji tkanek, stref bakteroidów oraz wiązek przewodzących w tej nieprzezroczystej, twardej tkance guzków korzeniowych, co stanowi przewagę nad tradycyjnymi technikami obrazowania wymagającymi przecinania guzków.
Artykuł metodologiczny
Obrazowanie 3D MicroCT brodawek korzeniowych Medicago sativa
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Symbiotyczna relacja między rośliną strączkową Medicago sativa a bakterią glebową Sinorhizobium meliloti prowadzi do powstania wiążących azot brodawek korzeniowych. Tradycyjne metody destrukcyjne, w tym sekcjonowanie w parafinie, sekcjonowanie w wibrotomie oraz kriosekcjonowanie, były stosowane do wizualizacji sposobu zajmowania brodawki przez bakterie, co sprawia, że uzyskanie wiarygodnych informacji trójwymiarowych jest niezwykle trudne. Podejścia te są często łączone z znakowaniem fluorescencyjnym lub barwieniem, co może wprowadzać dodatkowy stres wpływający na wzrost rośliny i tworzenie brodawek. MicroCT wyłoniło się jako stosunkowo szybkie, łatwe i solidne narzędzie w biologii roślin, które pozwala na nieniszczącą wizualizację cech histologicznych roślin w trzech wymiarach (3D), unikając tym samym artefaktów destrukcyjnych podczas przygotowania próbek i zapewniając wysoką wierność rekonstrukcji 3D. Choć microCT było stosowane w badaniach brodawek korzeniowych roślin strączkowych, brakuje szczegółowego, ugruntowanego protokołu dokumentującego cały proces – od zbioru roślin i przygotowania próbek, po skanowanie i wizualizację programową.
W niniejszym badaniu przedstawiamy krok po kroku proces obrazowania mikroCT z wykorzystaniem Medicago sativa jako modelu. Protokół obejmuje wycinanie guzków z korzeni, fiksację, wzmocnienie kontrastu, montaż, skanowanie oraz rekonstrukcję trójwymiarową. Omówiono krytyczne parametry wpływające na takie elementy jak jakość obrazu, konserwacja tkanek i kontrast. Dzięki zastosowaniu tego podejścia możliwe jest trójwymiarowe obrazowanie ogólnej organizacji tkanek, komórek zainfekowanych bakteroidami oraz wiązek przewodzących bez konieczności fizycznego przekrawania guzków. Opisany tutaj schemat postępowania stanowi powtarzalną metodę nieniszczącego obrazowania natywnych guzków korzeniowych o wysokiej rozdzielczości i prawdopodobnie jest możliwy do dostosowania do innych gatunków roślin strączkowych, oferując badaczom praktyczne narzędzie do analizy struktury guzków oraz organizacji bakterii w ich wnętrzu w 3D.
Wprowadzenie
Rośliny z rodziny Leguminosae (lub Fabaceae), takie jak Medicago sativa (lucerna), tworzą symbiotyczną relację z wiążącymi azot bakteriami glebowymi z rodziny Rhizobiaceae, np. Sinorhizobium meliloti, co prowadzi do rozwoju brodawek korzeniowych. W warunkach ograniczonej dostępności azotu roślina wydziela flawonoidy w celu przyciągnięcia bakterii. Aktywuje to ekspresję czynników Nod w bakteriach symbiotycznych, co wywołuje zwijanie się włośników korzeniowych i późniejsze utworzenie komory infekcyjnej otaczającej bakterie1,2,3,4. Z osłabionego fragmentu ściany komory tworzy się nitka infekcyjna, która jest wydłużającą się rurką transportującą bakterie przez komórkę włośnika korzeniowego5. Gdy nitka infekcyjna dotrze do wewnętrznej kory, seria podziałów komórkowych inicjuje powstanie wyspecjalizowanego organu korzenia zwanego brodawką korzeniową1,2,5. Bakterie infekują następnie komórkę brodawki i żyją wewnątrzkomórkowo, otoczone błoną symbiosomalną wewnątrz komórki. Tutaj roślina dostarcza bakteriom węgiel i inne składniki odżywcze. W zamian bakterie wiążą azot dla rośliny, przekształcając nieużyteczny azot atmosferyczny w amoniak, formę dostępną dla rośliny2,3,4. W ten sposób brodawka korzeniowa funkcjonuje jako kluczowa biologiczna fabryka wiązania azotu, podtrzymując wzrost roślin nawet w przypadku braku syntetycznych nawozów azotowych. Proces biologicznego wiązania azotu jest istotny ekonomicznie i środowiskowo, ponieważ pozwala roślinom strączkowym rosnąć bez użycia nawozów syntetycznych6. Co więcej, niektóre rośliny strączkowe tworzą brodawki niezdeterminowane, w których powstają wyraźne strefy, w których bakterie różnicują się i wiążą azot bardziej efektywnie4. Dlatego w celu szczegółowego zbadania biologicznego wiązania azotu ważne jest obrazowanie zarówno zewnętrznej, jak i wewnętrznej części brodawki (gdzie bakterie fizycznie zajmują komórki roślinne wewnątrz brodawki). Jest to jednak organ nieprzezroczysty, wypełniony czerwoną białkową leghemoglobiną roślinną, co utrudnia stosowanie tradycyjnych metod obrazowania.
Techniki obrazowania stosowane w przeszłości miały charakter destrukcyjny. Do przygotowania przekrojów tkankowych wykorzystywano sekcjonowanie w parafinie, wibratom oraz kriosekcjonowanie, jednak metody te zaburzają naturalny stan tkanki i wprowadzają artefakty utrudniające rekonstrukcję trójwymiarową (3D)6,7,8,9,10. Pomyślnie przeprowadzono rekonstrukcję na podstawie przekrojów tkanki brodawek zatopionych w parafinie, jednak metoda ta wykorzystuje próbki odwodnione i wymaga ponad 200 pojedynczych przekrojów8. Na pojedynczych przekrojach widoczne są fragmenty układu naczyniowego, lecz nie sposób zaobserwować, w jaki sposób pęczki dzielą się i oplatają brodawkę. Przed mikroskopią konfokalną na przekrojach tkankowych stosowano różne techniki znakowania fluorescencyjnego i barwienia, jednak wiążą się one zazwyczaj z następującymi problemami8,9,10: (i) tkanka brodawek roślinnych wykazuje silną autofluorescencję, (ii) wiele metod wymaga przejrzyszczenia tkanki przed obrazowaniem, (iii) barwienie fluorescencyjne może uszkodzić tkankę brodawek, (iv) inokulacja roślin bakteriami znakowanymi zielonym białkiem fluorescencyjnym (GFP) wywołuje stres wpływający zarówno na wzrost rośliny, jak i na tworzenie się brodawek, oraz (v) naturalne brodawki są zbyt duże, aby łatwo wykonać przekroje całej próbki5,11.
Tomografia komputerowa (CT), powszechnie stosowana w medycynie, służy zarówno do celów diagnostycznych, jak i terapeutycznych12,13. Jej mniejsza wersja, mikrotomografia rentgenowska (MicroCT), jest techniką obrazowania umożliwiającą nieniszczącą trójwymiarową (3D) wizualizację małych obiektów. Podczas gdy w CT urządzenie obraca się wokół większego obiektu, w microCT to mniejszy obiekt obraca się w bliskiej odległości od źródła promieni rentgenowskich, co pozwala na uzyskanie znacznie wyższej rozdzielczości. MicroCT znajduje zastosowanie w biologii rozwoju zwierząt, ale stała się również obiecującym narzędziem w biologii roślin6,10,14,15,16,17,18,19. Co istotne, microCT oraz tomografia rentgenowska oparta na synchrotronie były szeroko wykorzystywane w fizjologii roślin do badania embolii ksylemu oraz do walidacji szacunków opartych na obrazowaniu w odniesieniu do konwencjonalnych pomiarów przepływu hydraulicznego20,21,22. Ponieważ microCT obrazuje nienaruszone organy w odpowiednich skalach bez konieczności fizycznego przekrawania, pozwala ona zachować zależności przestrzenne w całym guzku. Przy zastosowaniu odpowiednich środków kontrastowych umożliwia rozdzielenie struktur na poziomie tkankowym, takich jak wiązki przewodnicze i strefy infekcji, oraz może penetrować obszary, w których rozproszenie światła ogranicza konwencjonalne podejścia optyczne, co jest szczególnie wartościowe w przypadku guzków nieprzezroczystych i autofluorescencyjnych. Próbki mogą być również ponownie skanowane, włączane w dalsze korelacyjne przepływy pracy po procesowaniu próbek do mikroskopii świetlnej lub elektronowej, bądź archiwizowane do przyszłych analiz. Chociaż w kilku badaniach wykorzystano microCT i synchrotronową tomografię komputerową do badania guzków korzeniowych soi, brakuje szczegółowego opisu obejmującego cały proces – od zbioru guzków i barwienia, po obrazowanie i rekonstrukcję, szczególnie w przypadku mniejszych guzków, takich jak te u lucerny6,14. Kontrast rentgenowski zależy od gęstości tkanki, a większość tkanek roślinnych ma niską gęstość i słabo tłumi promieniowanie X. Bez środka kontrastowego guzków nie można odróżnić od tła w konwencjonalnym mikrotomografie laboratoryjnym. Zastosowaliśmy kwas fosfotungstowy (PTA), nieswoisty barwnik wiążący białka i inne biomolekuły, który wykazano, że zapewnia wysoki kontrast w tkankach roślinnych14.
Niniejsze badanie przedstawia szczegółowy, krok po kroku protokół obrazowania mikrotomografią komputerową (microCT) brodawek korzeniowych roślin strączkowych na przykładzie lucerny, z wykorzystaniem konwencjonalnego systemu laboratoryjnego, który stanowi bardziej dostępną alternatywę dla mikroskopii rentgenowskiej (XRM) oraz platform synchrotronowych6,14. Ten schemat postępowania zawiera konkretne instrukcje dotyczące zbioru brodawek z korzenia, ich utrwalania, barwienia, wzmacniania kontrastu, montażu, skanowania, rekonstrukcji 3D oraz analizy (Rysunek 1). Pomiędzy poszczególnymi etapami podano szczegółowe parametry, aby zapewnić stabilny montaż, utrzymanie wilgotności oraz odpowiedni kontrast. W rezultacie ta procedura microCT jest powtarzalną metodą, która umożliwia nieniszczącą, wysokorozdzielczą wizualizację trójwymiarowych cech histologicznych, w tym ogólnej organizacji tkanek, zasiedlenia komórek roślinnych przez bakterie, wyraźnych stref wiązania azotu oraz pęczków naczyniowych całych brodawek korzeniowych lucerny w ich naturalnym stanie. Uważamy, że protokół ten będzie możliwy do zaadaptowania dla innych gatunków roślin strączkowych, oferując badaczom praktyczną i nieniszczącą metodę wizualizacji struktury 3D oraz organizacji tego niezwykle ważnego organu korzeniowego.
Protokół
1. Pobranie i utrwalenie guzków
- Użyj skalpela (patrz Tabela materiałów), aby wykonać proste cięcie korzenia po obu stronach wybranego guzka, pozostawiając go przyczepionym do korzenia (Rysunek 2).
- Przenieś od ośmiu do dwunastu guzków do 20 mL szklanej fiolki zawierającej 10 mL 70% (v/v) etanolu (patrz Tabela materiałów).
2. Barwienie guzków
- Przygotować 1% (w/v) PTA w 70% etanolu, dodając 2 g proszku PTA do 200 mL 70% etanolu w 200 mL szerokoujściej butelce kwadratowej (patrz Tabela materiałów). Wstrząsać do całkowitego rozpuszczenia, a następnie przechowywać w temperaturze 4 °C. Barwnik należy przygotować 1 dzień przed użyciem.
- Usunąć 70% etanol użyty podczas fiksacji i zastąpić go 10 mL 1% roztworu PTA (patrz Tabela materiałów).
- Umieścić szklaną fiolkę na wytrząsarce orbitalnej w temperaturze pokojowej przy 80 rpm na 4 tygodnie. Co tydzień wymieniać roztwór barwiący na 10 mL świeżego 1% PTA (patrz Tabela materiałów, Rycina 2).
3. Montowanie guzków
- Roztopić parafinę na płycie grzejnej w temperaturze 100 °C w otwartym zlewce szklanym o pojemności 100 mL (patrz Tabela materiałów).
- Wybrać końcówki do pipety o pojemności 200 µL do zatapiania próbek. Uszczelnić końcówki od strony węższej, zanurzając je płytko (1–2 mm) w roztopionej parafinie (patrz Tabela materiałów).
- Przepłukać próbkę w 2 mL 70% etanolu w szalce z mikrowypustkami o średnicy 35 mm przez 5 min (patrz Tabela materiałów).
- Wprowadzić 0,2 g agarozy niskotopliwej do kolby Erlenmeyera o pojemności 25 mL i wymieszać z 20 mL wody demineralizowanej, aby otrzymać 1% (w/v) agarozę niskotopliwą. Podgrzać na płycie grzejnej w temperaturze 50 °C i kilka razy wstrząsnąć do całkowitego rozpuszczenia. Następnie umieścić kolbę w kąpieli wodnej ustawionej na 40 °C (patrz Tabela materiałów).
- Wlać około 25 µL 1% agarozy niskotopliwej do odwróconych, uszczelnionych końcówek pipet i odczekać 1 min do ostygnięcia (patrz Tabela materiałów).
- Pobrać jeden brodawkowy guzek i przenieść go do końcówki pipety za pomocą pęsety precyzyjnej, aby unieruchomić go w 1% agarozie niskotopliwej. Użyć końcówki do nakładania żelu, aby przesunąć guzek tak blisko strony uszczelnionej parafiną, jak to możliwe, nie uszkadzając guzka korzeniowego (patrz Tabela materiałów).
- Umieścić końcówki z guzkami korzeniowymi w statywie, aby agaroza niskotopliwa mogła stężeć. Po stężeniu uszczelnić otwartą stronę końcówek pipet Parafilmem w celu utrzymania wilgotności (patrz Tabela materiałów). Przechowywać próbkę w lodówce w temperaturze 4 °C i przeprowadzić skanowanie zatopionych próbek w ciągu tygodnia.
4. Obrazowanie MicroCT
- Zamocuj końcówki do pipet dnem do góry na odpowiednio dobranym uchwycie do próbek, aby umożliwić ich jak najbliższe ustawienie względem źródła promieniowania rentgenowskiego i zapewnić dokładne centrowanie próbki (patrz Tabela materiałów).
- Uruchom oprogramowanie CT. Mocno przykręć uchwyt z próbką do stołu obrotowego mikro-CT (patrz Tabela materiałów, Rysunek 3, Rycina uzupełniająca 1).
- Włącz podgląd z kamery oraz źródło promieniowania rentgenowskiego, a następnie uruchom ekran ciągłego podglądu promieniowania X (Rycina uzupełniająca 1).
- Dostosuj pionowo wysokość próbki tak, aby obszar zainteresowania znalazł się w centrum ekranu podglądu ciągłego. Zanotuj tę wysokość, aby wykorzystać ją później w kroku 4.10 (Rycina uzupełniająca 1).
- Przy binningu 512 × 512 dostosuj rozmiar piksela (patrz Tabela uzupełniająca 1) w taki sposób, aby próbka wypełniała większość pola widzenia w podglądzie ciągłym, pozostawiając niewielką wolną przestrzeń po każdej stronie (Rycina uzupełniająca 1).
- Wycentruj próbkę na ekranie podglądu ciągłego promieniowania X, obracając ją co 45° i korygując jej położenie względem środka (Rycina uzupełniająca 1).
- Zmień binning na 2048 × 2048 (patrz Tabela uzupełniająca 1, Rycina uzupełniająca 1).
- W menu Scanning Modes wybierz brak filtra, ustaw napięcie na 50 kV oraz natężenie prądu na 40 µA (patrz Tabela uzupełniająca 1, Rycina uzupełniająca 1).
- Wykonaj korekcję pola płaskiego (flat field correction), przesuwając próbkę w dół na wysokość 68 mm, tak aby znajdowała się poza polem widzenia ekranu podglądu ciągłego. Wyłącz funkcję Flat Field Correction i ustaw Exposure Time tak, aby średnia transmitancja promieniowania X wynosiła 55%. Włącz funkcję Flat Field Correction (patrz Tabela uzupełniająca 1, Rycina uzupełniająca 1).
- Przesuń próbkę z powrotem na wysokość wyznaczoną w kroku 4.4 (Rycina uzupełniająca 1).
- W sekcji Scanning Options określ nazwę pliku oraz lokalizację folderu (Rycina uzupełniająca 1).
- Ustaw krok obrotu na 0,200°. Ustaw Frame Average na 3 oraz Random Movement na 30. Wybierz skanowanie w zakresie 360° (patrz Tabela uzupełniająca 1, Rycina uzupełniająca 1).
- W razie potrzeby dostosuj parametr Partial width, aby wyeliminować nadmiar pustej przestrzeni i zmniejszyć rozmiar danych (Rycina uzupełniająca 1).
- Kliknij Scan, aby rozpocząć skanowanie (Rycina uzupełniająca 1).
5. Rekonstrukcja obrazu
- Otwórz oprogramowanie do rekonstrukcji obrazu i wgraj wszystkie projekcje 2D ze skanu (zob. Tabela materiałów, Rys. 4).
- Kliknij Preview, aby zwizualizować wyniki rekonstrukcji w miejscu linii zielonej (Rycina uzupełniająca 2).
- Dostosuj histogram w zakładce Output. Odetnij płaski obszar po prawej stronie i utrzymuj wartość 0 lub nieco poniżej 0 po lewej stronie (Rycina uzupełniająca 2).
- W zakładce Start kliknij Fine Tuning w celu dopasowania po wyrównaniu. Ustaw Parameter step na 1 i Number of trials na 5. Kliknij Start i OK. Gdy wyniki pojawią się w zakładce Output, kliknij okno prv i przełączaj się między wynikami za pomocą strzałek, aby wybrać najlepsze wyrównanie. Pozostaw wybrany obraz najlepszy (Rycina uzupełniająca 2).
- Aktywuj ROI w zakładce Output, zaznaczając pole obok Use ROI. Jako kształt ROI wybierz circle. Dostosuj rozmiar ROI do rozmiaru próbki w całej objętości danych, wracając do zakładki Start i przesuwając zieloną linię, aby podejrzeć różne lokalizacje. Pozostaw nieco wolnej przestrzeni wokół próbki (Rycina uzupełniająca 2).
- Wróć do zakładki Start. Przesuń czerwone linie u góry i u dołu, aby odciąć obszary niepotrzebne w danych rekonstrukcyjnych. Sprawdź, czy nie wykluczono istotnych danych, przesuwając zieloną linię w pobliże czerwonych linii i podglądając rekonstrukcje w zakładce Output (Rycina uzupełniająca 2).
- W zakładce Output zapisz rekonstrukcję jako obrazy TIFF (16-bit) w wybranej lokalizacji (Rycina uzupełniająca 2).
- Wróć do zakładki Start i kliknij Start (Rycina uzupełniająca 2).
6. Wizualizacja 3D
- Otwórz oprogramowanie Dragonfly (patrz Tabela materiałów).
UWAGA: Dodatkowe informacje o oprogramowaniu Dragonfly i jego możliwościach można znaleźć pod adresem https://dragonfly.comet.tech/ - Zaimportuj zrekonstruowane obrazy TIFF.
- Zaznacz wszystkie obrazy i potwierdź, że odstępy między obrazami są zgodne z wartością Scaled Image Pixel Size w pliku tekstowym skanu (Rycina uzupełniająca 3).
- Dostosuj poziomowanie okna (window leveling), aby uzyskać widok 3D z odpowiednim kontrastem (Rycina uzupełniająca 3).
- Przewiń przez poszczególne płaszczyzny przekrojów 2D (XY, poprzeczna; XZ, czołowa; YZ, strzałkowa) (Rycina uzupełniająca 3).
- Kliknij prawym przyciskiem myszy na obraz i wyeksportuj zrzut ekranu widoku, aby zapisać widoki przekrojów w razie potrzeby (Rycina 4).
Wyniki
Z trzech roślin M. sativa pobrano po dwa guzki korzeniowe. Dwa guzki wykorzystano do porównania czasu barwienia, a cztery obrazowano po pełnym 28-dniowym barwieniu 1% PTA w 70% etanolu w celu zwiększenia kontrastu. Dzięki zastosowaniu 1% agarozy niskotopliwej jako medium montażowego w końcówkach pipet osiągnięto środowisko montażowe o niskiej gęstości rentgenowskiej wokół próbki. Roztwór barwiący skutecznie zwiększył kontrast tkanki roślinnej (Rysunek 5A,B, Rysunek uzupełniający 4). Sygnał z próbki został łatwo oddzielony od tła i końcówki pipety za pomocą histogramu danych, co umożliwiło niezakłóconą wizualizację 3D struktury zewnętrznej i wewnętrznej całego guzka korzeniowego (Rysunek 5A,B).
Zewnętrzna epidermia jest widoczna, lecz wykazuje mniejszy kontrast niż pozostałe tkanki (Rycina 5C–E). Z kolei wiązki przewodzące są wyraźne i dobrze połączone od dołu do góry próbki (Rycina 5A,B). W przekrojach poprzecznych można wyraźnie dostrzec liczbę oraz podziały tych wiązek (Rycina 5C). Ponadto tkanka wewnętrzna wykazuje dobry kontrast, co pozwala na identyfikację kory oraz wakuol roślinnych (Rycina 5C–E). Wysoki kontrast ułatwia również rozróżnienie komórek zainfekowanych i niezainfekowanych (Rycina 5C–E). Przekroje czołowe i strzałkowe ujawniają rozmieszczenie strefy merystematycznej, infekcyjnej i różnicowania (Rycina 5D). Wideo uzupełniające 1 przedstawia widok 360° zrekonstruowanego w 3D brodawki.
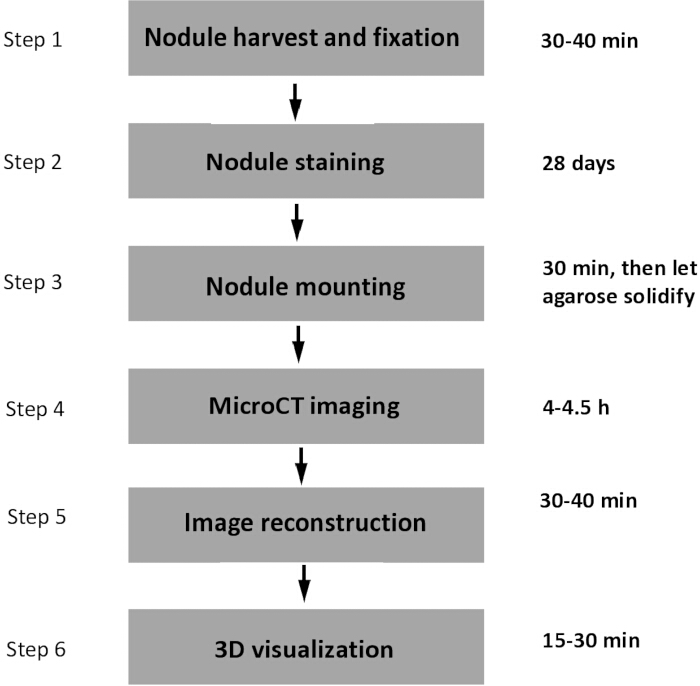
Rycina 1: Schemat procedury. Przegląd procesu wykorzystania mikro-CT do obrazowania grudek korzeniowych roślin strączkowych oraz czas wymagany dla każdego etapu. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
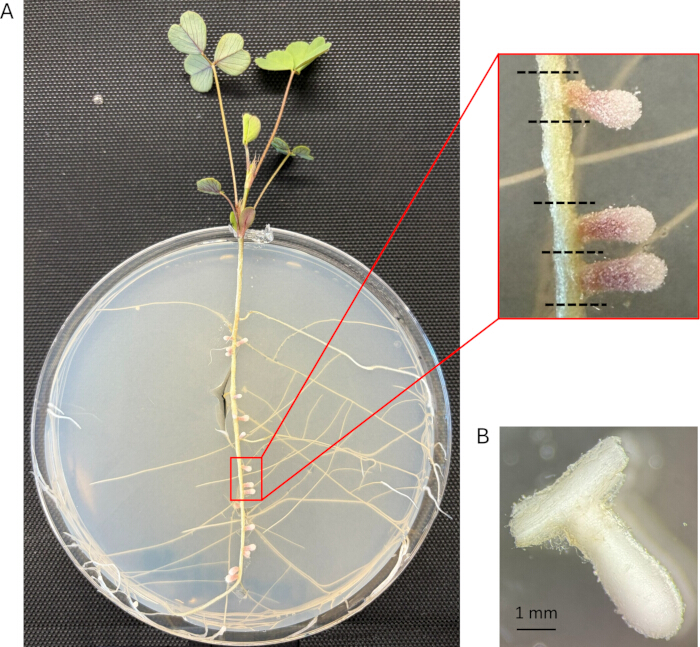
Rysunek 2: Bruzdki korzeniowe M. sativa do niniejszego protokołu. (A) Roślina M. sativa 28 dni po inokulacji bakteriami S. meliloti (28 dpi). Czarne linie przerywane reprezentują sugerowane linie cięcia w celu wycięcia przedstawionych bruzdek. Z trzech roślin wycięto po dwie bruzdki z każdej, a następnie zeskanowano cztery próbki. (B) Bruzdka M. sativa 28 dpi po 4 tygodniach barwienia PTA. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
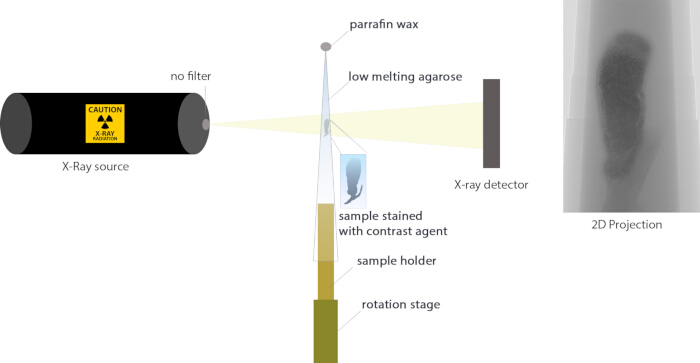
Rycina 3: Przegląd przygotowania próbki do mikroCT. Brodawek korzeniowych zabarwionych środkiem kontrastowym stabilizuje się w niskotopliwej agarozie wewnątrz końcówki mikropipety. Końcówkę mikropipety uszczelnia się z jednego końca woskiem parafinowym i mocuje na stole obrotowym w urządzeniu mikroCT. Źródło promieniowania rentgenowskiego (bez filtra) znajduje się po jednej stronie urządzenia, a promienie przechodzą przez próbkę, aby dotrzeć do detektora rentgenowskiego po drugiej stronie. Skanowanie skutkuje uzyskaniem projekcji 2D opartej na gęstości tkanek. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
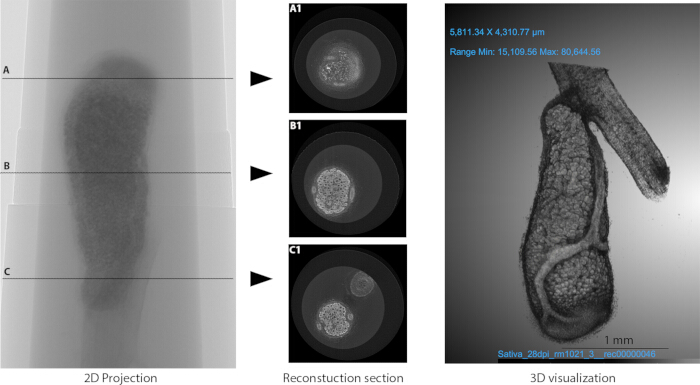
Rycina 4: Przykład rekonstrukcji obrazu i wizualizacji 3D. (Lewo) Projekcja 2D. (Środek) Przekrój rekonstrukcyjny. A1, B1 i C1 przedstawiają zrekonstruowane przekroje poprzeczne w miejscach A, B i C z projekcji 2D microCT. (Prawo) Wizualizacja 3D grudki korzeniowej wykonana na podstawie zrekonstruowanych obrazów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
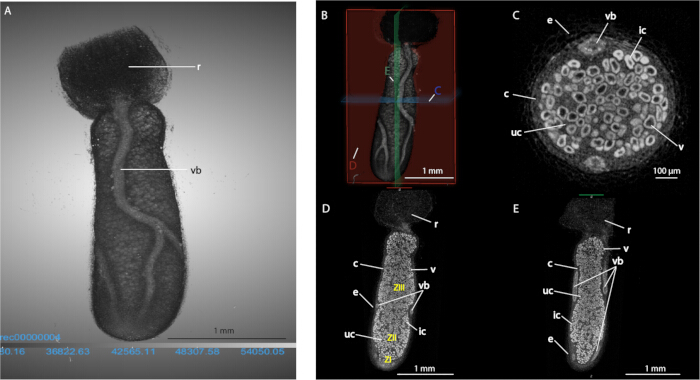
Rysunek 5Adnotowane obrazy reprezentatywne. (A) Adnotowany Wizualizacja 3D *M. sativa* brodawek korzeniowych (B) Czerwone, niebieskie i zielone obrysy na obrazie 3D przedstawiającym przekrój poprzeczny (C), czołowy (D), oraz strzałkowej (E) płaszczyzn, odpowiednio. Adnotowane przekroje poprzeczne (C), czołowy (D), oraz strzałkowej (E) przekroje *M. sativa* broda korzeniowa. Skróty: c – kora; e – epidermatyka; ic – komórka zainfekowana; r – korzeń; uc – komórka niezainfekowana; v – wakuola; vb – wiązka przewodząca; ZI – strefa I (merystematyczna); ZII – strefa II (infekcji); ZIII – strefa III (różnicowania). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina uzupełniająca 1. Zrzuty ekranu oprogramowania do obrazowania microCT. (A1) Otwieranie i zamykanie drzwiczek modułu. (A2) Włączanie podglądu z kamery. (A3) Włączanie źródła promieniowania rentgenowskiego. (A4) Włączanie ciągłego podglądu rentgenowskiego. (A5) Regulacja wysokości próbki. (A6) Regulacja rozmiaru piksela. (A7) Obracanie próbki. (A8) Zmiana binningu. (A9) Zmiana filtra. (A10) Opcje dostępu do trybów skanowania. (A11) Ustawianie napięcia i natężenia prądu źródła promieniowania rentgenowskiego. (A12) Dwukrotne kliknięcie w celu wyłączenia korekcji pola płaskiego (flat-field correction). (A13) Opcje skanowania. (B1) Wyłączona korekcja pola płaskiego. (B2) Opcje dostępu do trybów skanowania. (B3) Średnia transmisja promieni rentgenowskich. (B4) Regulacja czasu ekspozycji. (B5) Aktualizacja pól płaskich. (C1) Nazwanie pliku i wybór miejsca zapisu danych. (C2) Ustawienie kroku rotacji, uśredniania klatek, ruchu losowego oraz skanowania 360 stopniami. (C3) Regulacja szerokości częściowej. (C4) Rozpoczęcie skanowania.Proszę kliknąć tutaj, aby pobrać ten plik.
Rysunek uzupełniający 2. Zrzuty ekranu oprogramowania do rekonstrukcji obrazu. (A1) Wybór miejsca podglądu próbki. (A2) Podgląd próbki. (A3) Precyzyjne dostrajanie parametrów. (A4) Ustawienie liczby prób oraz kroku parametru dla dopasowania po rekonstrukcji. (A5-6) Góra i dół obszaru rekonstrukcji. (A7) Rozpoczęcie rekonstrukcji. (B1) Regulacja kontrastu. (B2) Przeglądanie i przechodzenie przez wyniki dopasowania po rekonstrukcji. (B3) Tworzenie okrągłego ROI. (B4) Wybór formatu pliku i miejsca zapisu danych.Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 3. Zrzuty ekranu oprogramowania do wizualizacji 3D. (A) Informacje o odstępach między obrazami. (B) Narzędzia do zaznaczania, obracania i powiększania (góra). Poziomowanie okna dla kontrastu (dół). (C) Wyświetlanie paska skali (góra). Zmiana koloru tła (dół). Prosimy kliknąć tutaj, aby pobrać ten plik.
Rycina uzupełniająca 4. Rekonstrukcja MicroCT po barwieniu PTA przez 14, 17 i 28 dni. (A) Zrekonstruowany przekrój M. sativa po 14 dniach barwienia PTA wykazuje szum w warstwie zewnętrznej (n = 1). (B) Zrekonstruowany przekrój M. sativa po 17 dniach barwienia PTA wykazuje wyższy kontrast w warstwie zewnętrznej, ale mniejszą przejrzystość wnętrza w porównaniu do (A) (n = 1). (C) Zrekonstruowany przekrój M. sativa po 28 dniach barwienia PTA wykazuje wyższy kontrast zarówno w warstwie zewnętrznej, jak i wewnętrznej w porównaniu do (A) i (B) (n = 4).Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Parametry obrazowania microCT.Kliknij tutaj, aby pobrać ten plik.
Wideo uzupełniające 1: Wideo 3D guzka.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Poniżej przedstawiono zalecenia dotyczące przygotowania i barwienia próbek. Podczas przygotowywania próbek do obrazowania microCT niezbędne jest staranne wycięcie guzków w celu zachowania ich integralności strukturalnej. Zalecamy pozostawienie niewielkiego fragmentu korzenia po obu stronach punktu przyczepienia guzka, aby zachować kontekst przestrzenny i zminimalizować uszkodzenia tkanek. Zastosowanie środka kontrastowego jest kluczowe dla zwiększenia tłumienia promieni rentgenowskich i wizualizacji wewnętrznych cech anatomicznych14. Wcześniejsza analiza z wykorzystaniem barwienia PTA wykazała, że w celu uzyskania wystarczającego kontrastu u różnych gatunków roślin i typów tkanek wymagany jest okres barwienia wynoszący minimum 14 dni, przy czym nie stwierdzono przebarwienia14. W tej badaniu guzki korzeniowe soi indukowane przez Bradyrhizobium (utrwalone w 14 dpi) były barwione przez 35 dni14. Przyjmując ten zakres (14–35 dni) jako punkt odniesienia, przeprowadziliśmy wstępne próby barwienia własnych próbek guzków w kilku punktach czasowych (14, 17 i 28 dni) i porównaliśmy uzyskany kontrast obrazu. Do niniejszego protokołu wybrano 28-dniowy okres barwienia, ponieważ zapewniał on lepszy kontrast, wyraźniejsze granice komórek i bardziej jednorodne barwienie w porównaniu z krótszymi okresami (Supplementary Figure 4). Zauważamy, że rekonstrukcje dla 14 i 17 dni pochodzą z pojedynczego guzka, a nie z systematycznego badania powtórzeń, podczas gdy warunek 28 dni obejmuje wszystkie cztery zeskanowane guzki; czas trwania barwienia należy dostosować do rozdzielczości wymaganej w badaniu. 28-dniowy okres barwienia nie jest również krótkim przedziałem czasowym. Jak sugerowano w poprzednich badaniach, barwienie wspomagane mikrofalowo może pomóc przyspieszyć penetrację PTA, a tym samym skrócić wymagany czas barwienia14. Do zwiększania kontrastu w tkankach roślinnych stosuje się również środki na bazie jodu, takie jak roztwór Lugola23,24. Wybraliśmy PTA na podstawie jego udowodnionej skuteczności w tkance guzków i nie porównywaliśmy różnych środków barwiących, ponieważ głównym celem niniejszego badania było opracowanie pojedynczego, powtarzalnego protokołu14. Przyszłe badania powinny testować inne barwniki u różnych gatunków roślin i typów tkanek.
Równie istotne jest prawidłowe zatopienie próbki. Próbka powinna pozostać całkowicie przykryta agarozą o niskiej temperaturze topnienia, aby zapobiec odwodnieniu i zachować jej naturalną morfologię. Po zatopieniu próbki należy przechowywać je przez noc w temperaturze 4 °C, aby zapewnić zestalenie agarozy i utrzymać stabilność podczas skanowania. Zamontowana próbka musi być bezpiecznie przymocowana do stolika skanującego, aby zapobiec dryftowi lub artefaktom wibracyjnym podczas akwizycji danych.
MicroCT umożliwia nieniszczącą, trójwymiarową wizualizację całej tkanki guzka przy rozdzielczości niższej niż w przypadku mikroskopii świetlnej i elektronowej. Zarówno XRM, jak i synchrotronowa tomografia komputerowa (CT) zazwyczaj zapewniają obrazowanie o wyższej jakości i rozdzielczości niż konwencjonalna microCT. Synchrotronowa tomografia komputerowa pozwala również na bezpośrednie skanowanie świeżych, niebarwionych próbek, ponieważ wysoki strumień fotonów i koherentność wiązki umożliwiają szybką akwizycję i uzyskanie wystarczającego kontrastu bez użycia środków kontrastujących6. Bezpośrednie porównanie z wynikami Duncan i wsp. (2022)14 oraz Nakhforoosh i wsp. (2024)6 jest ograniczone przez różnice w projekcie badań: gatunek (soja vs Medicago sativa), typ guzka (determiniowany vs indeterminiowany) oraz metodę obrazowania (XRM i synchrotronowa tomografia komputerowa vs konwencjonalna microCT). Niemniej jednak nominalna wielkość piksela w naszych rekonstrukcjach guzków wynosi około 1,75 µm, co jest wartością mniejszą niż w skanach guzków u Duncan i wsp. (2022)14 (2,2 µm, Rycina 4A), mimo to ich rekonstrukcje wciąż wykazują większą przejrzystość niż nasze. Prawdopodobnie wynika to z faktu, że rozdzielczość efektywna zależy od czegoś więcej niż tylko od nominalnej wielkości piksela; wpływ na nią mają m.in. powiększenie optyczne soczewek obiektywu XRM, czułość detektora, stabilność źródła, jakość kamery oraz metody rekonstrukcji. Chociaż duże obiekty o niskiej gęstości, takie jak wakuole, są łatwo rozróżnialne, co pokazano tutaj, nie można zidentyfikować zajęcia poszczególnych komórek przez bakteroidy ani mniejszych lub mniej gęstych organelli, a dynamiczne procesy biologiczne nie mogą być rejestrowane w czasie rzeczywistym. PTA i środki kontrastowe na bazie jodu są nieswoiste i nie mogą informować o tożsamości molekularnej. Pytania dotyczące poziomu subkomórkowego wciąż będą wymagały zastosowania mikroskopii fluorescencyjnej lub elektronowej. Przedstawione podejścia do obrazowania są komplementarne, przy czym microCT doskonale nadaje się do analizy morfologii całego organu i trójwymiarowej architektury tkanki, dostarczając kontekstu dla mikroskopii świetlnej i elektronowej, które pozwalają na badanie drobniejszych szczegółów strukturalnych i molekularnych.
Z powodzeniem powtórzyliśmy ten schemat postępowania z wykorzystaniem guzków w podobnych punktach czasowych i na podobnych etapach rozwoju z *M. sativa* zaszczepione innymi S. meliloti szczepy, a M. truncatula i Trigonella foenum-graecum zaszczepione kilkoma różnymi S. meliloti szczepy (dane nieopublikowane). Nie badaliśmy brodawek na różnych etapach rozwoju, ponieważ naszym celem była charakterystyka oraz opracowanie powtarzalnego protokołu dla dojrzałych brodawek wiążących azot. Niemniej jednak opisany tok postępowania powinien być możliwy do zastosowania w przypadku brodawek na różnych etapach rozwoju, gdyż bardziej istotnym ograniczeniem jest ich rozmiar. Skanowane przez nas brodawki miały długość około 2,5 mm (Tabela uzupełniająca 1). W przypadku mikro-tomografii komputerowej (microCT) wykorzystanej w niniejszym badaniu, zalecana minimalna długość to 1 mm. Rozmiar obrazowanego obiektu zależy od użytego urządzenia, ponieważ powiększenia mogą się różnić.
Ostatnie dowody sugerują, że stopień zasiedlenia brodawek jest ważnym parametrem, który bezpośrednio koreluje z wydajnością wiązania azotu. Wykazano, że brodawki z większą proporcją zainfekowanych komórek wiążą azot efektywniej niż te, w których mniej komórek jest zasiedlonych przez bakterie25. Ponadto stan zdrowia brodawek zależy od stopnia rozwinięcia układu naczyniowego, a zaburzona lub ograniczona architektura naczyniowa oznacza wadliwe brodawki i pogorszenie stanu zdrowia rośliny26. Biorąc pod uwagę możliwość wizualizacji stopnia zasiedlenia oraz architektury naczyniowej, mikroCT wypełnia istotną lukę w dziedzinie wiązania azotu. Niniejszy schemat postępowania sprawia, że nieniszcząca wizualizacja struktur wewnętrznych i zewnętrznych brodawek korzeniowych staje się rutynowo dostępna, a struktury te są bezpośrednimi determinantami wydajności wiązania, która napędza symbiotyczne dostarczanie azotu do upraw.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Pragniemy podziękować Stephanie Sage za pomoc w przygotowaniu roślin. Xia Zhao pomogła w oddzielaniu próbek. Jesteśmy wdzięczni Madi Mitchell za wstępne dyskusje nad projektem. Chcielibyśmy podziękować Tomowi Kleistowi i Kexi Yi za porady dotyczące interpretacji danych. Dziękujemy również Keithowi Duncanowi (Donald Danforth Plant Science Center) za wskazówki dotyczące protokołu. Projekt ten jest finansowany przez Stowers Institute for Medical Research.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Fiolka szklana 20 mL | Sigma-Aldrich | Z190527 | Służy do przechowywania brodawek w celu ich utrwalenia i barwienia. |
| końcówki do pipety 200 µL | Fisherbrand | 02-717-144 | Służą do unieruchomienia brodawek podczas obrazowania. |
| Szalka z mikrowypustkami 35 mm | Fisher Scientific | 507532924 | Służy do płukania brodawek po barwieniu. |
| Oprogramowanie Dragonfly | Comet Technologies Canada Inc. | V2022.2 | Służy do wizualizacji i manipulowania rekonstrukcjami 2D w widoku 3D. |
| Etanol | Decon Labs | V1001 | Służy do utrwalania i płukania brodawek. |
| Pęseta precyzyjna | Dumont | AA-Inox-E | Służy do ustawiania brodawek w końcówce pipety. |
| Końcówka do nakładania żelu | Corning (Costar) | 4853 | Służy do manipulowania brodawką w agarozie wewnątrz końcówki pipety. |
| Płyta grzejna | Mirak | SP72725 | Służy do topienia parafiny i rozpuszczania agarozy LowMelt. |
| Agaroza LowMelt | GeneMate | 490001-602 | Służy do zatapiania brodawek korzeniowych w celu zachowania ich orientacji i wilgotności. |
| MicroCT | Bruker | Bruker SkyScan 1272 | Służy do skanowania brodawek. |
| Oprogramowanie NRecon | Bruker | V2.2.0.6 | Służy do rekonstrukcji projekcji 2D. |
| Mieszadło orbitalne | VWR | 77591-858 | Służy do wstrząsania brodawkami korzeniowymi w celu przyspieszenia penetracji barwnika. |
| Parafina | McCormick Scientific | 39503002 | Służy do uszczelniania wąskiego końca końcówki pipety. |
| Parafilm | Alkali Scientific | PM996 | Służy do uszczelniania końcówek pipet, aby zapobiec wysychaniu próbki. |
| Kwas fosfotungstowy | Electron Microscopy Science (EMS) | 19500 | Służy do barwienia brodawek. |
| Uchwyt na próbki - L 3,4 cm D 0,63 mm | Bruker | Set from Bruker with machine | Służy do unieruchomienia końcówki pipety i próbki podczas obrazowania. |
| Skalpel | Fisher Scientific | S07890 | Służy do pobierania brodawek korzeniowych. |
| Oprogramowanie Skyscan | Bruker | v1.5.1.0 | Służy do sterowania urządzeniem MicroCT. |
| Kąpiel wodna | Boekel Grant | 640013001 | Służy do utrzymywania agarozy w stanie ciekłym podczas zatapiania brodawek. |
Bibliografia
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny