Opisano dwie bezkontaktowe metody kokultury do jakościowej i ilościowej oceny odpowiedzi morfologicznych grzybów podczas oddziaływań międzygatunkowych. Protokół demonstruje, w jaki sposób czynniki wewnętrzne wpływają na wzrost strzępek, posługując się przykładem testu międzygatunkowego *Candida*. Metody te można łatwo zaadaptować do badania komunikacji międzygatunkowej drobnoustrojów u różnych organizmów.
Artykuł metodologiczny
Bezstykowe testy kokultury do badań morfometrycznych podczas interakcji międzygatunkowych u grzybów
W tym artykule
Podsumowanie
Streszczenie
Zachowanie i morfologia komórek w społeczności mikrobowej są zazwyczaj pod wpływem różnych czynników wewnątrz- i zewnątrzkomórkowych. Różne podejścia dostępne do badania komunikacji mikrobowej mogą być żmudne i/lub wymagać specjalistycznego zaplecza oraz wiedzy. W niniejszej pracy opisano dwa komplementarne bezkontaktowe podejścia do kokultury: test kokultury z wykorzystaniem wkładki membranowej w płytce wielodołkowej oraz test oparty na nienasyconym supernatancie (CFS), które bazują na transformacji morfologicznej jako mierzalnej odpowiedzi w celu zbadania roli różnych czynników w danej interakcji międzygatunkowej. System z wkładką membranową, umożliwiając dyfuzję cząsteczek zewnątrzkomórkowych, pozwala na interakcję w czasie rzeczywistym między gatunkami oddzielonymi fizycznie. W porównaniu do niego, test oparty na CFS stanowi uproszczone, skalowalne podejście do oceny odpowiedzi na pożywki kondycjonowane. Przedstawiony tutaj protokół obejmuje zestandaryzowane procedury przygotowania kultur, otrzymywania kondycjonowanych supernatantów, konfiguracji testu, mikroskopii, pozyskiwania obrazów, ilościowej analizy morfometrycznej z użyciem programu Fiji oraz ewaluacji statystycznej. Zostało to zademonstrowane na przykładzie morfologicznej odpowiedzi grzybów na czynniki wewnętrzne i zewnętrzne. Zaprezentowane metody oferują dostępne i adaptowalne, alternatywne narzędzia do badania nowych interakcji mikrobowych w społeczności i mogą być łatwo rozszerzone w celu zbadania mechanizmów leżących u podstaw współistnienia wielu gatunków w obrębie jednej społeczności.
Wprowadzenie
W ekosystemach naturalnych i klinicznych mikroorganizmy zazwyczaj bytują w obrębie ustrukturyzowanych społeczności polimikrobowych, którymi rządzą złożone sieci komunikacji wewnątrz- i międzygatunkowej 1. Konsorcja te wykorzystują różnorodne sygnały chemiczne, w tym cząsteczki quorum sensing, lotne związki organiczne oraz wydzielane peptydy i białka, aby koordynować zachowania na poziomie populacyjnym2. Mapowanie tej dynamiki komunikacyjnej jest kluczowe, ponieważ kooperacyjne, konkurencyjne lub drapieżne interakcje niszowe znacząco zmieniają metabolizm mikrobów, architekturę przestrzenną oraz adaptację do stresu3. W warunkach klinicznych sieci polimikrobowe (takie jak dwugatunkowe konsorcja bakteryjno-grzybowe lub międzygatunkowe konsorcja grzybowe) często wykazują synergistyczną wirulencję, przyspieszoną kolonizację tkanek i podwyższoną oporność na środki przeciwdrobnoustrojowe w porównaniu do monokultur4,5. Rozszyfrowanie molekularnych determinantów komunikacji mikrobiologicznej jest zatem niezbędne, aby wyjść poza tradycyjne modele i opracować innowacyjne strategie przeciwinfekcyjne mające na celu zaburzenie stabilności społeczności6.
Aby przeanalizować odrębne tryby komunikacji mikrobiologicznej, badacze wykorzystują różnorodne konfiguracje eksperymentalne, stosowane głównie w biologii komórki ssaków, immunologii i onkologii7,8,9. Na przykład modele kokultur z bezpośrednim kontaktem stanowią standard w badaniu sygnalizacji jukstakrynowej oraz fizycznych oddziaływań międzykomórkowych10. Podobne układy z modyfikacjami są również stosowane do badania fizycznych interakcji między mikrobami, co pozwala zrozumieć wzajemne hamowanie mikrobiologiczne lub odpowiedź na leki9,11,12. Trudno jest jednak rozróżnić mechanizmy leżące u podstaw tych zjawisk, ponieważ zarówno sygnały zależne od kontaktu, jak i sygnały dyfundujące przyczyniają się do obserwowanej odpowiedzi. Choć tradycyjne testy oparte na kontakcie mogą dostarczać informacji przestrzennych, są one pracochłonne i/lub wymagają odrębnego znakowania szczepów, co może być uciążliwe w przypadku organizmów niemodelowych. Z kolei testy Transwell (płytki z wkładkami membranowymi) są stosowane, głównie w badaniach nad ssakami, aby rozróżnić wkład sygnałów zależnych od kontaktu i dyfundujących13,14,15,16. Metoda ta jest szczególnie użyteczna, gdy komunikacja komórkowa jest zapośredniczona przez cząsteczki wydzielane, co umożliwia analizę dynamiki sygnalizacji między populacjami komórek w czasie rzeczywistym17. Ponadto testy bezkontaktowe oferują zaletę separacji membranowej, która może być zintegrowana z modelami obliczeniowymi w celu dynamicznego śledzenia mikrobów, których tradycyjne metody nie wykrywają18. Podejście to jest sporadycznie wykorzystywane do jednoczesnego badania kinetyki rozwojowej różnych gatunków bakterii19.
Tańszą, wysokoprzepustową alternatywą dla testu z użyciem płytki wielodołkowej z wkładkami membranowymi jest test oparty na nadsączu bezkomórkowym (CFS) lub pożywce warunkującej. Metoda ta jest znana z zastosowań w medycynie regeneracyjnej i biologii naczyniowej w celu izolacji sekretomów niezbędnych do zrozumienia naprawy tkanek pośredniczonej przez komórki macierzyste i/lub angiogenezy indukowanej przez nowotwór20. Podobnie w badaniach mikrobiologicznych systemy CFS okazały się przydatne w analizie konkurencji polimikrobowej. Na przykład filtraty bakteryjne (takie jak Pseudomonas aeruginosa acyl-homoserynowe laktony lub Lactobacillus metabolity) były wykorzystywane do modulacji dojrzewania biofilmu grzybowego21,22. W ostatnim czasie platformy mikroprzepływowe umożliwiły wierną biomimikrę fizjologiczną dzięki technologiom organów na chipie (organ-on-a-chip)23,24. Chociaż systemy mikroprzepływowe wdrożono do jednoczesnego wykrywania odpowiedzi społeczności mikrobiologicznej na ich sekretomy, wymagają one specjalistycznej aparatury i wiedzy i nie mogą być łatwo zaimplementowane we wszystkich warunkach25,26,27. Zatem testy z użyciem płytek wielodołkowych z wkładkami membranowymi oraz testy oparte na CFS wydają się być metodami pierwszego wyboru w większości przypadków. Wybór między tymi dwoma testami zależy od natury cząsteczki wydzielniczej. Jeśli cząsteczka wydzielnicza jest niestabilna, t.j. ma krótki okres półtrwania i wymaga pomiaru aktywności w czasie rzeczywistym, bardziej odpowiedni jest test z użyciem płytki wielodołkowej z wkładkami membranowymi. Z drugiej strony, jeśli cząsteczka wydzielnicza jest stabilna, a eksperyment prowadzony jest na dużą skalę, bardziej ekonomiczny będzie test oparty na CFS.
Głównym celem niniejszego protokołu jest przedstawienie krok po kroku metodologii śledzenia jakościowego i ilościowego do oceny cech morfologicznych z wykorzystaniem płytek wielodołkowych z wkładkami membranowymi oraz platform CFS (Rysunek 1). W niniejszym opracowaniu zaprezentowano to na przykładzie komunikacji sterowanej czynnikami wydzielniczymi między Candida albicans a Candida glabrata. Ponadto narzędzia te mogą służyć do ilościowego określenia wpływu wewnętrznych zmiennych genetycznych (ploidalności i statusu locus sprzężonego z typem strzępkowania) na zmiany w absolutnym rozwoju geometrycznym (długości, objętości i średnicy) filamentów C. albicans pod wpływem ekspozycji na sygnałowe cząsteczki wydzielnicze. Ten ugruntowany protokół zapewnia prostą i przystępną cenowo platformę bezkontaktową, odpowiednią do badania dynamiki sygnalizacji międzygatunkowej.
Protokół
Zarówno C. albicans, jak i C. glabrata są klasyfikowane jako ludzkie patogeny oportunistyczne 2. poziomu bezpieczeństwa biologicznego (BSL-2). Wszystkie etapy eksperymentu muszą być przeprowadzane w certyfikowanych komorach bezpieczeństwa biologicznego, przy ścisłym przestrzeganiu Dobrej Praktyki Mikrobiologicznej (GMP) oraz instytucjonalnych procedur izolacji. Przez cały czas należy stosować środki ochrony indywidualnej (PPE), w tym fartuchy laboratoryjne, podwójne rękawiczki oraz okulary ochronne. Wszystkie zanieczyszczone materiały eksploatacyjne, wyroby plastikowe i kultury płynne muszą zostać poddane walidowanej autoklawacji (121 °C, 15 psi przez 20 min) lub dezynfekcji chemicznej przy użyciu świeżo przygotowanego 10% roztworu podchlorynu sodu przed ostateczną utylizacją (Zalecane: National Institutes of Health (NIH) Waste Disposal Guide 2022). Wszystkie standardowe odczynniki, chemikalia czystości analitycznej oraz sprzęt użyty w niniejszej metodologii opisano w Tabeli materiałów. Właściwości szczepów grzybów oraz ich genotypy opisano szczegółowo w Tabeli 1. Lista pożywek zastosowanych w badaniu wraz z ich składem znajduje się w Pliku uzupełniającym 1.
1. Przygotowanie nadsączu wolnego od komórek (CFS)
- Inicjacja i inkubacja hodowli
- Za pomocą sterylnej pętli plastikowej pobierz pojedynczą, odosobnioną kolonię C. glabrata CBS138 wyhodowany na świeżo na szalka z agarem z minimalnego medium glukozowego (GMM)28Zaszczep kolonię do sterylnej probówki szklanej zawierającej 10 ml standardowej pożywki YPD (Yeast Peptone Dextrose; 1% m/v ekstraktu drożdżowego, 2% m/v peptonu, 2% m/v D-glukozy).29.
- Umieść probówkę w inkubatorze z wytrząsarką orbitalną. Inkubuj kulturę w stałej temperaturze 37 °C przy ciągłym mieszaniu z prędkością 200 obr./min przez 18 h.
- Należy zweryfikować, czy kultura jednorodnie weszła w późną fazę stacjonarną wzrostu, sprawdzając, czy gęstość optyczna (OD600) mieści się w stabilnym zakresie od 12,0 do 14,0. Należy sprawdzić komórki pod mikroskopem, aby upewnić się, że występują one w formie drożdżowej i są wolne od zanieczyszczeń. To okno rozwojowe jest niezbędne do zapewnienia optymalnej akumulacji stabilnych składników zewnątrzkomórkowego sekretomu.
- Separacja i filtracja komórek
- Aseptycznie przenieś 18-godzinną C. glabrata kulturę płynną do sterylnej, stożkowatej polipropylenowej probówki wirówkowej o pojemności 15 ml.
- Zrównoważyć probówki i odwirować kulturę z prędkością 5 000 x g przez dokładnie 5 min w kontrolowanej temperaturze pokojowej wynoszącej 25 °C aby skompresować biomasę w zwartą peletę.
- Przelej surowy ciekły nadsącz do czystej, sterylnej plastikowej strzykawki o pojemności 20 ml. Ostrożnie przymocuj strzykawkę do sterylnego 0.22 µm Membrana filtracyjna z polietersulfonu (PES) o niskim wiązaniu białek.
- Wywarć stały nacisk mechaniczny, aby przepuścić ciecz przez filtr PES do sterylnej probówki zbiorczej o pojemności 15 ml, otrzymując w ten sposób roboczy nadsącz bezkomórkowy (CFS). W przypadku wystąpienia oporu podczas filtracji nie należy stosować nadmiernego nacisku, ponieważ może to doprowadzić do przerwania membrany. W takich sytuacjach należy użyć nowego filtra membranowego.
UWAGA: Świeżo zebranego CFS nie należy poddawać szybkim cyklom zamrażania i odmrażania ani przechowywać w temperaturach poniżej 4 °C przed przystąpieniem do wykonania analizy, ponieważ wytrącanie na zimno może destabilizować białkowe czynniki występujące w niskim stężeniu. - Pozostaw docelowy skompresowany osad komórkowy w pierwotnej probówce zbiorczej, jeśli przechodzisz bezpośrednio do towarzyszącego eksperymentu z kokulturą na płytce z wkładkami membranowymi (Krok 4).
2. Przygotowanie inokulum Candida albicans do testów indukcji strzępek
- Przygotowanie i utrzymanie inokulum
- Pobrać docelowe szczepy C. albicans (genotypy wymieniono w Tabeli 1) bezpośrednio z długoterminowych macierzystych zapasów w glicerolu przechowywanych w -80 °C. Wysiać komórki na stałe pożywki GMM (0,67% w/v yeast nitrogen base bez aminokwasów, 2% w/v D-glukozy, 2% w/v agaru) w celu uzyskania kolonii roboczych.
- Dla szczepów diploidalnych (SC5314, RBY1132, RBY1133): Zaszczepić pojedynczą kolonię do 5 mL płynnego GMM. Inkubować probówkę przez 12 h w 37 °C przy stałym wytrząsaniu z prędkością 200 rpm.
UWAGA: Stosowanie pożywki minimalnej (GMM) do nocnego przygotowania komórek diploidalnych jest kluczowe dla zahamowania spontanicznej auto-filamentacji, która często występuje w pożywkach bogatych w składniki odżywcze. - Dla szczepów haploidalnych (GZY896, GZY803): Zaszczepić odizolowaną kolonię do 5 mL płynnej pożywki YPD uzupełnionej o 0,1 mg/mL urydyny (YPDU). Inkubować probówkę przez 12 h w 37 °C przy ciągłym wytrząsaniu z prędkością 200 rpm.
- Aby zachować stabilność morfologiczną i zapewnić spójność, ograniczyć liczbę kolejnych subkultur w cieczy do maksymalnie trzech pasażów. Jeśli auto-filamentacja lub grupowanie pseudohif przekroczy 2% w początkowej puli kontrolnej, należy zutylizować szczep i odnowić świeże komórki z macierzystych zapasów mrożonych.
- Normalizacja
- Odmierzyć 1 mL z nocnych kultur płynnych do sterylnych kuwet. Zmierzyć dokładną absorbancję przy 600 nm (OD600) przy użyciu skalibrowanego spektrofotometru UV-Vis, stosując świeżą pożywkę GMM lub YPDU jako kontrolę tła (blank).
UWAGA: OD600 (gęstość komórek) nocnych kultur płynnych, zwłaszcza tych hodowanych w YPDU, może przekraczać zakres czułości spektrofotometru. W takich przypadkach należy odpowiednio rozcieńczyć kultury (10–20-krotnie) przed dokonaniem pomiarów. - Obliczyć objętość gęstej kultury potrzebną do przygotowania ustandaryzowanej zawiesiny docelowej. Rozcieńczyć komórki uprzednio ogrzanym (37 °C) płynnym GMM w sterylnej probówce, aby przygotować 1 mL inokulum roboczego o końcowej wartości OD600 = 0,1.
- Odmierzyć 1 mL z nocnych kultur płynnych do sterylnych kuwet. Zmierzyć dokładną absorbancję przy 600 nm (OD600) przy użyciu skalibrowanego spektrofotometru UV-Vis, stosując świeżą pożywkę GMM lub YPDU jako kontrolę tła (blank).
3. Test indukcji strzępek oparty na CFS (w formacie płytki 96-dołkowej)
- Przygotowanie testu
- Należy użyć sterylnej, optycznie przezroczystej polistyrenowej płytki mikrotitracyjnej z 96 dołkami o płaskim dnie.
- Konfiguracja dołków testowych: Do wyznaczonych dołków testowych należy odpipetować 45 µL świeżo przefiltrowanego CFS C. glabrata (z kroku 1.2.4). Następnie dodać 45 µL sterylnego bulionu GMM (lub bulionu YPDU w przypadku oceny haploidalnych szczepów docelowych).
- Negatywne kontrole podłoża: Do dołków kontrolnych należy dodać 90 µL bulionu GMM. Dodatkowo, w oddzielnym dołku, należy zmieszać 45 µL sterylnego bulionu GMM z 45 µL czystego, niezaszczepionego bulionu YPD w celu monitorowania tła składników podłoża.
- Pozytywne kontrole indukcji: Należy dodać 80 µL bulionu GMM połączonego z 10 µL płodowej surowicy bydlęcej (FBS; stężenie końcowe 10% v/v).
- Inokulacja: Do 90 µL odpowiedniego podłoża we wszystkich dołkach eksperymentalnych i kontrolnych należy odpipetować dokładnie 10 µL znormalizowanego inokulum roboczego C. albicans o OD600 = 0.1 (z kroku 2.2.2).
- Inkubacja i gromadzenie danych
- Płytkę 96-dołkową należy przykryć dopasowaną plastikową pokrywą, aby zminimalizować parowanie. Płytkę należy umieścić w statycznym inkubatorze w temperaturze 37 °C na dokładnie 3 h. W tym czasie należy unikać przesuwania lub wstrząsania płytką, aby umożliwić stabilną filamentację.
- Po inkubacji płytkę wielodołkową należy ustawić pionowo na stoliku odwróconego mikroskopu świetlnego wyposażonego w optykę pola jasnego i zintegrowany cyfrowy moduł kamery CCD.
- Należy systematycznie wykonywać automatyczne lub ręczne zdjęcia z co najmniej pięciu różnych pól widzenia na każdy dołek.
- Tę konfigurację testu należy przeprowadzić w dubletach technicznych dla każdego warunku, w co najmniej trzech w pełni niezależnych powtórzeniach biologicznych przygotowanych w oddzielne dni.
4. Test kokultury w płytce z wkładkami membranowymi
- Przygotowanie komory abluminalnej (dolnej)
- Należy wziąć sterylną płytkę hodowlaną z 24 dołkami.
- Do dolnych komór abluminalnych należy nanieść dokładnie 1,0 mL znormalizowanej zawiesiny komórek C. albicans o OD600 = 0,1 (z kroku 2.2.2).
- Przygotowanie komory luminalnej (górnej)
- Należy pobrać osad komórek C. glabrata odłożony w kroku 1.2.5. Osad należy resuspendować w 1 mL sterylnego bulionu GMM, odwirować przy 5000 x g przez 3 min i odlać ciecz. Ten etap płukania należy powtórzyć dwukrotnie, aby usunąć pozostałe składniki odżywcze lub elementy starej pożywki.
- Ostateczny wypłukany osad należy resuspendować w świeżym bulionie GMM i dostosować końcową gęstość optyczną do wysokiego stężenia OD600 = 5,0.
- Za pomocą sterylnej pincety należy ująć sterylną wkładkę membranową z poliwęglanową membraną o rozmiarze porów 0,4 µm otrzymanym metodą trawienia ścieżkowego. Korpus wkładki należy gładko opuścić do zajętego dołka płytki 24-dołkowej, mocując jej górne kołnierze w pozycjach środkowych nacięć.
- Do górnej komory wkładki luminalnej należy nanieść dokładnie 750 µL skoncentrowanej kultury C. glabrata o OD600 = 5,0.
UWAGA: Utrzymanie początkowego stosunku komórek wynoszącego około 1:50 (C. albicans do C. glabrata) przez barierę membranową zapewnia wystarczającą akumulację ligandów sygnałowych, zapobiegając jednocześnie powstawaniu lokalnych artefaktów sprzężenia zwrotnego.
- Inkubacja i obrazowanie
- Złożony układ płytki z wkładkami membranowymi należy przykryć i inkubować statycznie lub przy delikatnym wstrząsaniu orbitalnym (30 rpm) w temperaturze 37 °C przez dokładnie 3 h.
- Po inkubacji należy użyć sterylnej pincety, aby ostrożnie unieść i wyciągnąć górną wkładkę luminalną z każdego dołka. Wkładki należy wyrzucić do odpadów biologicznych.
UWAGA: Całkowite usunięcie górnej membrany wkładki przed obrazowaniem jest wymagane w celu wyeliminowania cieni refrakcyjnych, wzorów rozpraszania światła i artefaktów tła w postaci siatki podczas mikroskopowego przesiewania o wysokiej rozdzielczości. - Płytkę 24-dołkową należy umieścić na stoliku mikroskopu odwróconego w celu oceny morfologicznej. W niniejszym badaniu zastosowano mikroskop odwrócony z obiektywami 10x/0,30NA, 20x/0,50NA lub 40x/0,60NA o bardzo dużej odległości roboczej, wraz z zestawem filtrów DIC.
5. Mikroskopia o wysokiej rozdzielczości i cyfrowa analiza obrazu
- Cyfrowa akwizycja obrazu
- Przeskanuj dno studzienek przy użyciu obiektywu 10x o niskiej mocy, aby zweryfikować jednorodność rozkładu komórek oraz oznaczyć wszelkie lokalne błędy śledzenia lub anomalne skupiska komórek.
- Należy zarejestrować co najmniej 10 oddzielnych pól widzenia, korzystając z skalibrowanego obiektywu 20x. Obrazy te stanowią podstawowy zestaw danych do śledzenia standardowej liczby filamentów oraz rozkładu populacji.
- W celu przeprowadzenia dokładnej analizy fenotypowej i precyzyjnych pomiarów granic komórek, należy wykonać mikrofotografie przy użyciu obiektywu o powiększeniu 40x z dodatkowo wydłużoną odległością roboczą. Wszystkie surowe pliki obrazów należy zapisać.
- Potok ilościowego fenotypowania (Fiji)
- Uruchom Fiji oprogramowanie do przetwarzania (wersja 1.54p lub nowsza). Otwórz docelową mikrofotografię, przechodząc do Plik > Otwórz lub przeciągając plik bezpośrednio do Fiji panel sterowania
- Śledzenie długości strzępek (L): Kliknij prawym przyciskiem myszy ikonę wyboru linii w menu głównym Fiji pasek narzędzi i wybierz Narzędzie do wyznaczania linii segmentowych z menu rozwijanego. Ustaw kursor w dokładnym punkcie połączenia, w którym ruchoma nić wychodzi poza granicę ściany komórkowej macierzystej komórki drożdży.
- Klikaj lewym przyciskiem myszy w sposób ciągły, aby prowadzić linię wzdłuż centralnej osi podłużnej strzępki, ustawiając punkty zakotwiczenia w celu dostosowania jej do wszelkich zakrzywień lub zagięć, a następnie zakończ linię na samym wierzchołku apikalnym. Kliknij w Pomiar aby zarejestrować długość w mikrometrach (µm). Naciśnij Ctrl+M (Windows) lub Cmd+M (Mac OS) w celu zarejestrowania całkowitej długości (L) w mikrometrach (µm) w oknie Wyniki.
- Aby zapobiec powieleniu pomiarów tego samego filamentu, należy użyć wbudowanego narzędzia „Brush Tool” w celu zaznaczenia każdej przeanalizowanej komórki.
- Profilowanie macierzystej komórki drożdży: Zlokalizuj przyłączone ciało macierzystej komórki drożdży odpowiadające wcześniej śledzonemu filamentowi strzępkowemu. Użyj Narzędzie do rysowania linii segmentowych należy narysować linię prostą wzdłuż maksymalnej osi podłużnej ciała komórki, aby zmierzyć jej maksymalną oś podłużną (oś główną, zdefiniowaną jako zmienna „a”), a następnie przeprowadzić Pomiar polecenie
- Należy narysować linię pomocniczą ściśle prostopadłą do osi głównej w najszerszym przekroju poprzecznym ciała komórki, aby zmierzyć odpowiadającą jej prostopadłą oś poprzeczną (oś pomocniczą, zdefiniowaną jako zmienna „b”), a następnie wykonać Pomiar polecenie
- Oblicz całkowitą objętość komórki macierzystej drożdży (CV, wyrażoną w mikrometrach sześciennych, µm3) poprzez zastosowanie standardowego modelu geometrycznego dla sferoidy wydłużonej z wykorzystaniem wartości zmiennych „a” i „b”: CV = 4/3 π ab2.
- Grubość strukturalna strzępki (d): Wybierz Narzędzie do wyznaczania linii segmentowychZmierz odległość zewnętrzną od ściany do ściany t.j. linia poprowadzona prostopadle do osi podłużnej. Pomiary należy wykonać w trzech oddzielnych, równoodległych punktach wzdłuż długości włókna, aby uwzględnić naturalne zmienności strukturalne, odnotowując każdy wynik. poprzez naśmieci Pomiar polecenie
- Oblicz średnią arytmetyczną tych trzech odrębnych punktów danych, aby wyznaczyć dokładną wartość średniej grubości (d). Podziel obliczoną wartość średnicy przez dwa, aby wyznaczyć zmienną strukturalną promienia (r = d/2).
- Oblicz całkowitą objętość filamentu strzępki (HV, wyrażoną w µm3) poprzez potraktowanie filamentu jako nierozgałęzionego, regularnego cylindra geometrycznego. Należy zastosować wyznaczoną długość filamentu (L) oraz pochodną promień strukturalny (r) w następującym modelu obliczeniowym: HV = π Proszę podać tekst źródłowy do przetłumaczenia.2 L.
6. Projekt statystyczny
- Powtórzenia biologiczne
- Wszystkie indywidualne układy testowe należy przeprowadzić w co najmniej trzech niezależnych seriach biologicznych, wykorzystując świeże, oddzielnie przygotowane kultury startowe.
- W ramach każdego powtórzenia biologicznego należy wyznaczyć co najmniej dwa identyczne otwory techniczne na każdą warunkę, aby uwzględnić lokalne efekty brzegowe lub różnice w pipetowaniu.
- Definiowanie jednostki eksperymentalnej: Aby zapewnić poprawność statystyczną i uniknąć artefaktów, należy przeprowadzić co najmniej trzy powtórzenia techniczne dla każdego eksperymentu. Pojedyncze komórki mierzone w obrębie jednej dołki stanowią podpróbki techniczne; analogicznie, trzy takie dołki odpowiadają trzem powtórzeniom technicznym. Podobnie, dla każdej próbki zaleca się wykonanie trzech powtórzeń biologicznych (niezależnych eksperymentów) (N = 3).
- Dla każdego odrębnego wariantu w ramach serii biologicznej należy w sposób losowy zmierzyć od 50 do 100 poszczególnych komórek w wielu polach widzenia. Dla każdego powtórzenia biologicznego należy obliczyć średnią lub medianę wartości z pomiarów tych komórek. Uzyskane wartości średnie lub mediany z powtórzeń biologicznych należy wykorzystać do wszystkich dalszych porównawczych testów statystycznych.
- Profilowanie rozkładu i testowanie hipotez
- Zbiory danych z powtórzeń biologicznych należy poddać ocenie normalności rozkładu za pomocą testu Shapiro-Wilka lub testu D’Agostino-Pearsona przed zastosowaniem metod parametrycznych (np. porównania średnich).
- Porównania dwóch grup: w przypadku bezpośredniego porównania jednej grupy badawczej z jedną grupą kontrolną (np. typu dzikiego C. albicans wzrost w pożywce czystej w porównaniu ze wzrostem w izolacie C. glabrata CFS), zastosować nieparowany, dwustronny test t Studenta test t-Studentapod warunkiem, że zbiór danych wykazuje rozkład normalny.
- Jeśli dane znacząco odbiegają od rozkładu normalnego, należy zastosować nieparametryczną alternatywę, taką jak test U Manna-Whitneya (test sum rang Wilcoxona), który porównuje wartości median danych uporządkowanych i nie zależy od bezwzględnych wartości danych. Testy nieparametryczne są również znane z tego, że są odporne na wpływ wartości odstających.
- Oceny wielogrupowe: Podczas jednoczesnej oceny trzech lub więcej linii genetycznych lub kombinacji zabiegów (np. monitorowania zmienności morfologicznej w obrębie MATa/a, MATα/αi MATa/α szczepy), należy przeprowadzić standardową jednoczynnikową analizę wariancji (ANOVA), a następnie test post-hoc Tukeya dla wielokrotnych porównań parzystych. W przypadku naruszenia testu normalności, ramy parametryczne należy zastąpić nieparametrycznym testem Kruskala-Wallisa, a następnie analizą wielokrotnych porównań post-hoc metodą Dunna.
- Reprezentacja graficzna i wizualizacja danych: Wszystkie analizy statystyczne oraz reprezentacje graficzne należy wykonać przy użyciu oprogramowania statystycznego i graficznego.
UWAGA: Do przeprowadzenia analiz statystycznych i przygotowania reprezentacji graficznych można wykorzystać równoważne oprogramowanie. Dane z płytek z insertami membranowymi oraz z testów CFS można przedstawić za pomocą wykresów słupkowo-rozproszeniowych, wykresów skrzypcowych z rozproszeniem (jitter-violin plots) lub wykresów pudełkowych z rozproszeniem, które przedstawiają medianę (linia środkowa) i 95% CI (stosowane w niniejszym badaniu) lub medianę (linia środkowa) oraz pierwszy i trzeci kwartyl (odpowiednio górna i dolna linia). - Ustal próg formalnej istotności statystycznej na poziomie alfa wynoszącym p < 0.05. Zachować konwencjonalne konfiguracje oznaczeń we wszystkich wygenerowanych rysunkach i tabelach danych. Na przykład: ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
Wyniki
Bezkontaktowe testy kokultury do badania interakcji międzygatunkowych
Rozpuszczalne, występujące w niskim stężeniu zewnątrzkomórkowe cząsteczki sygnałowe często pośredniczą w kluczowych zdarzeniach komunikacyjnych podczas mieszanej koabitacji drobnoustrojów. Dynamikę tę oceniono przy użyciu dwóch bezkontaktowych układów komórkowych, zaprojektowanych w celu analizy wzorców interakcji między C. albicans a C. glabrata, przy jednoczesnym zapobieganiu bezpośredniemu fizycznemu kontaktowi między komórkami. Pierwsza konfiguracja wykorzystywała zintegrowany system hodowli na płytkach z wkładkami membranowymi, w którym dwie populacje były fizycznie oddzielone od siebie obojętną, porowatą membraną z poliwęglanu o wielkości porów 0,4 µm, co umożliwiało swobodną dwukierunkową dyfuzję wydzielanych cząsteczek przez barierę. W drugim układzie monitorowano wzrost komórek drożdżowych C. albicans hodowanych bezpośrednio na płytkach mikrotitracyjnych zawierających bezkomórkowy nadsącz pobrany z kultur C. glabrata w fazie stacjonarnej (CgCFS).
Zgodnie z poprzednimi badaniami przesiewowymi30, heterozygoniczne diploidalne komórki C. albicans typu dzikiego (SC5314) łatwo wytwarzały prawdziwe strzępki w odpowiedzi na komórki C. glabrata oddzielone barierą w postaci wkładki membranowej lub na przefiltrowany CgCFS. Natomiast komórki utrzymywane w czystym medium kontrolnym negatywnym (GMM lub YPD) pozostawały głównie w formie pączkujących drożdży i pseudostrzępek (Rysunek 2A). Analizy porównawcze wykazały spójność między obiema konfiguracjami testu. Oba testy dały porównywalne wartości we wszystkich metrykach strukturalnych, w tym w odniesieniu do długości, objętości i grubości strzępek (Rysunek 2). Różnicę w parametrach morfologicznych uznano za istotną, jeśli wartość p z odpowiednich testów statystycznych, poprzedzonych testami post-hoc dla porównań wielokrotnych, spełniła kryterium 0,05. Obserwacje te wykazały, że w przypadku komórek C. albicans nie wystąpiła istotna różnica w długości prawdziwych strzępek indukowanych przez komórki C. glabrata w układzie z płytką z wkładką membranową (39,66 µm ± 6,81 µm) oraz po ekspozycji na przefiltrowany CgCFS (37,13 µm ± 6,50 µm; Rysunek 2B). Podobnie, objętości tych indukowanych strzępek w systemie płytkowym z wkładką membranową (112,10 µm3± 22,59 µm3) nie różniły się istotnie od objętości w medium kondycjonowanym CgCFS (109,78 µm3± 34,69 µm3; Rysunek 2C). Ponadto pomiary średnicy strzępek potwierdziły, że średnia grubość strzępek pozostała spójna w obu konfiguracjach, osiągając wartości 1,89 ± 0,10 µm dla układu z płytką z wkładką membranową oraz 1,92 µm ± 0,23 µm dla traktowania CgCFS (Rysunek 2D).
Stany ploidalności i konfiguracje typu kojarzenia zmieniają wymiary morfologiczne in vitro
Rola poziomów ploidalności i architektury loci mating w kierowaniu przejściami dimorficznymi została ustalona w różnych grzybiczych systemach modelowych. W niniejszej pracy zastosowano analityczny potok śledzenia w celu ilościowego określenia parametrów filamentacji, a konkretnie długości strzępek, objętości strukturalnej, grubości oraz odpowiadającej im objętości macierzystej komórki drożdżowej w panelu szczepów C. albicans haploidalnych (MATa lub MATα) i diploidalnych (MATa/a, MATα/α lub MATa/α).
Profilowanie strukturalne wykazało, że po ekspozycji na indukujący sekretom CgCFS lub pozytywną kontrolę surowiczą, homozygotyczny szczep diploidalny alfa (MATα/α) tworzył filamenty o znacznie dłuższych osiach (45,56 µm ± 9,24 µm i 46,62 µm ± 9,07 µm) i większej objętości (125,24 µm3 ± 39,94 µm3 i 119,45 µm3 ± 37,32 µm3) w porównaniu do homozygotycznego szczepu diploidalnego MATa/a (Rysunek 3A,C). Chociaż standardowe izolaty kliniczne C. albicans występują głównie jako diploidy heterozygotyczne, referencyjny szczep MATa/α po indukcji (szczególnie surowicą) wykazywał dłuższe filamenty i większe objętości w stosunku do szczepu MATa/a. Były one jednak znacznie mniejsze niż w przypadku homozygotycznego szczepu MATα/α (Rysunek 3B,D).
Jednocześnie w przypadku szczepów haploidalnych zaobserwowano odwrotny wzorzec, w którym haploidalny szczep MATa wykazał znaczący wzrost długości strzępek w porównaniu do haploidalnego szczepu MATα w obu warunkach indukcji (CgCFS: 22.06 µm ± 5.41 µm wobec 17.58 µm ± 4.12 µm; surowica: 23.71 µm ± 6.59 µm wobec 21.00 µm ± 5.29 µm; Rycina 4A). Co ciekawe, ten wzrost długości w tle haploidalnym przełożył się na wzrost objętości strzępek (38.84 µm3 ± 19.58 µm3 wobec 34.25 µm3 ± 19.62 µm3) tylko w odpowiedzi na CgCFS (Rycina 4B). Te wstępne pomiary in vitro wskazują na złożoną interakcję między stanami ploidii a konfiguracjami locus typu mating, sugerując, że loci MATa i MATα prawdopodobnie różnie wpływają na dynamikę filamentacji.
Aby zbadać statystyczne zależności między tymi metrykami strukturalnymi w połączonych zestawach danych, przeprowadzono analizy korelacji rang Spearmana (ρ) oraz regresji liniowej Pearsona (R2), obejmujące wszystkie testowane warianty ploidii i typów kopulacji. Pozytywne korelacje zaobserwowano we wszystkich analizowanych parach: długość strzępki względem objętości strzępki, długość strzępki względem grubości strzępki, długość strzępki względem objętości komórki macierzystej oraz całkowita objętość strzępek względem objętości macierzystej komórki drożdży (Rysunek 5, Tabela uzupełniająca 1 oraz Tabela uzupełniająca 2).
Najsilniejszy związek zaobserwowano pomiędzy długością strzępki a obliczoną objętością strzępki (ρ = 0.91; Rycina 5A). Z kolei najsłabsza korelacja wystąpiła pomiędzy początkową objętością macierzystej komórki drożdży a objętością wyrosłej strzępki (ρ = 0.63; Rycina 5C). Ponadto grubość strzępki nie korelowała z jej długością tak silnie, jak robiła to objętość strzępki (Rycina 5A,D). Objętość komórki macierzystej, długość strzępki i grubość strzępki nie wykazały statystycznie istotnych różnic w swoich korelacjach (Rycina 5B,D). Te rozkłady geometryczne sugerują, że większa początkowa objętość macierzystej komórki drożdży nie musi skutkować powstaniem dłuższych strzępek lub większą objętością.
Podsumowując, wyniki te demonstrują użyteczność zarówno płytek z wkładkami membranowymi, jak i testów opartych na CFS w celu wizualizacji i kwantyfikacji zmienności morfogenetycznej C. albicans bez kontaktu fizycznego. Dane uzyskane przy użyciu tego protokołu ujawniają różne cechy morfologiczne w zależności od stopnia ploidalności i konfiguracji typu kojarzenia. Te bezkontaktowe układy testowe oferują elastyczną i skalowalną metodologię, którą można dostosować do badania dynamiki sygnalizacji międzygatunkowej w różnych kombinacjach drobnoustrojów.
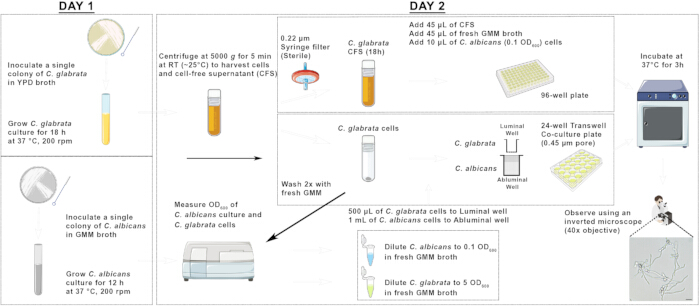
Rycina 1: Schematyczne przedstawienie kokultury w płytce z wkładkami membranowymi oraz testów indukcji strzępek opartych na CFS z wykorzystaniem gatunków Candida. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
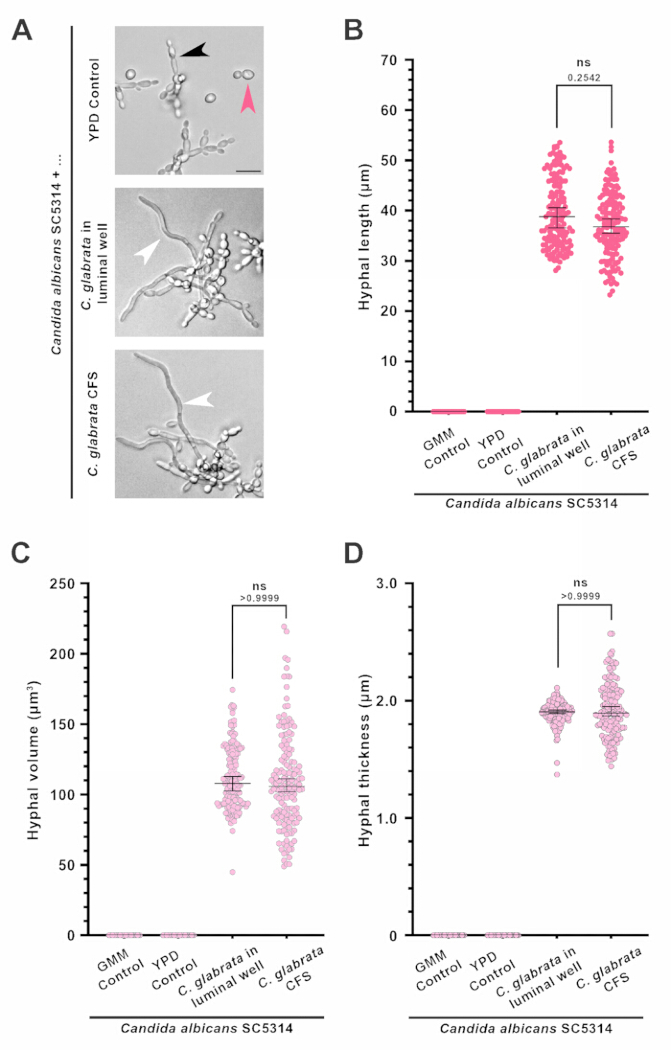
Rycina 2: Porównanie morfologii strzępek obserwowanych w płytce z insertami membranowymi oraz w bezkontaktowych testach opartych na CFS. (A) Reprezentatywne mikrofotografie w polu jasnym przedstawiające odpowiedź morfologiczną C. albicans na YPD (kontrola), C. glabrata w układzie z płytką z insertami membranowymi lub na pożywkę kondycjonowaną bezkomórkowym supernatantenem (CFS) C. glabrata. Różowe, czarne i białe groty strzałek oznaczają odpowiednio drożdże, pseudostrzępki i prawdziwe strzępki. Pasek skali, 10 µm. Długości strzępek (B), objętości strzępek (C) i grubość strzępek (D) heterozygotycznego szczepu diploidalnego C. albicans (SC5314) obserwowanego w odpowiedzi na komórki C. glabrata w układzie z płytką z insertami membranowymi lub CFS C. glabrata. Dane przedstawiają medianę ± 95% przedziały ufności z trzech niezależnych eksperymentów biologicznych, przy n = 50 komórek. ns, brak istotności: p > 0.05. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
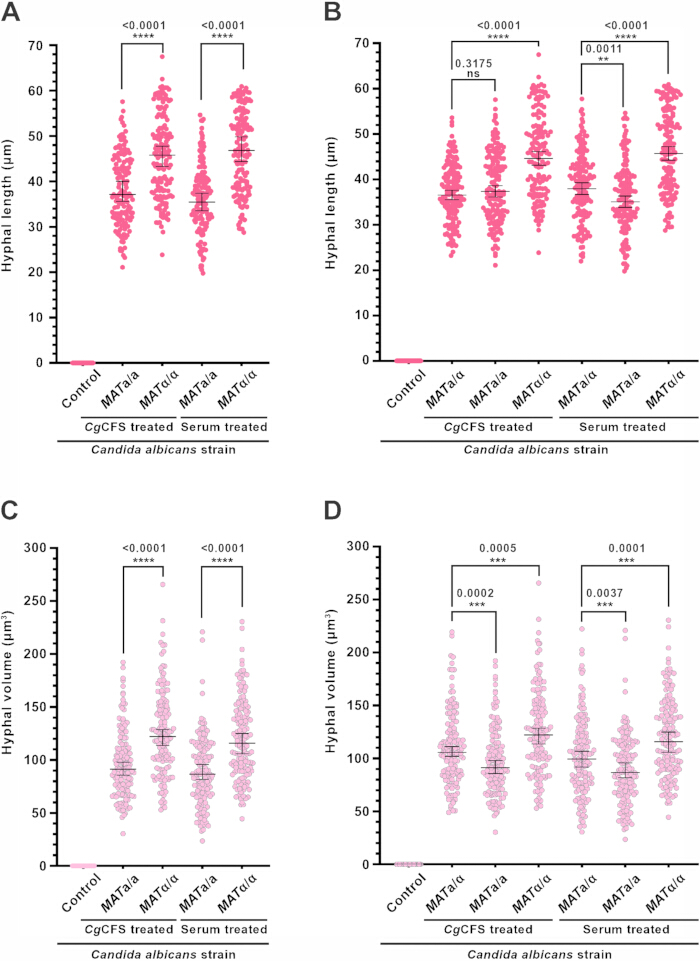
Rycina 3: Typ kojarzenia i zygotyczność mają istotny wpływ na morfologię strzępek u diploidalnych C. albicans. Wykresy przedstawiające porównanie długości strzępek w odpowiedzi na wskazaną cząsteczkę induktora pomiędzy diploidami homozygotycznymi (A) oraz pomiędzy diploidami hetero- i homozygotycznymi (B) C. albicans. Analogicznie przedstawiono porównanie objętości strzępek w odpowiedzi na wspomniane cząsteczki induktora pomiędzy diploidami homozygotycznymi (C) oraz pomiędzy diploidami hetero- i homozygotycznymi (D). Kontrola: YPD, kontrolne podłoże nieindukujące wzrostu strzępek. Dane przedstawiają medianę ± 95% przedziały ufności z trzech niezależnych eksperymentów biologicznych przy n = 50 komórek. Wartości wskazane na górze wykresów to wartości p wyznaczone za pomocą testu sum rang Wilcoxona. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001, istotne statystycznie; ns, nieistotne: p > 0.05. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
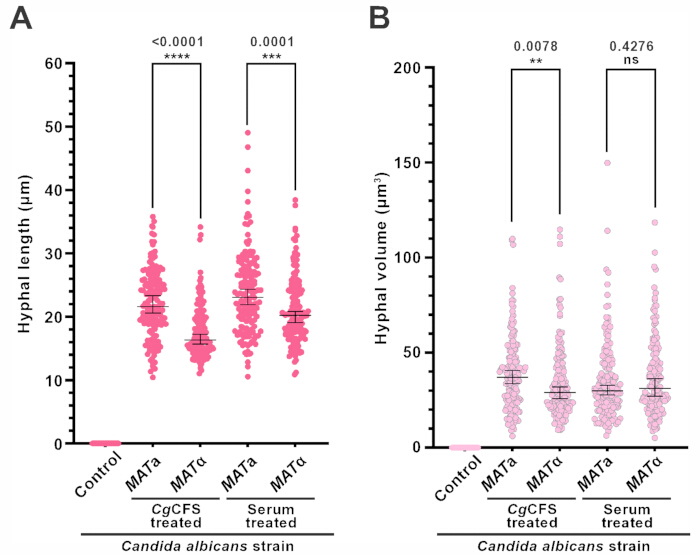
Rycina 4: Charakterystyka strzępek haploidalnych C. albicans w odpowiedzi na różne induktory molekularne. Wykresy przedstawiają długość strzępek (A) oraz objętość strzępek (B) w haploidalnych szczepach C. albicans w odpowiedzi na wskazany induktor. Kontrola: YPD, kontrolne podłoże nieindukujące wzrostu strzępek. Dane przedstawiają medianę ± 95% przedziały ufności z trzech niezależnych eksperymentów biologicznych, przy n = 50 komórek. Wskazane liczby oznaczają wartości p wyznaczone testem sum rang Wilcoxona. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001, istotne statystycznie; ns, nieistotne: p > 0.05. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
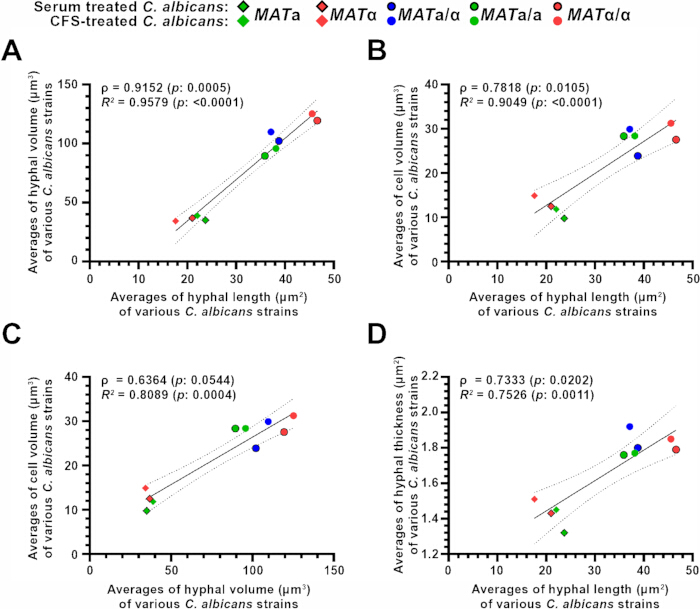
Rycina 5: Korelacja parametrów morfologicznych odpowiadających ploidalności C. albicans. Wykresy przedstawiają korelację Spearmana oraz regresję liniową pomiędzy parametrami morfologicznymi użytymi w niniejszym badaniu, tj. objętością strzępek i długością strzępek (A), objętością komórki i długością strzępek (B), objętością komórki i objętością strzępek (C) oraz grubością strzępek i długością strzępek (D). ρ: współczynnik korelacji Spearmana; R2: współczynnik determinacji z analizy regresji liniowej; p: wartość p. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Szczep | Gatunki | Ploidia | Genotyp | Proszę podać tekst źródłowy do tłumaczenia. |
| CBS138 | Candida glabrata | Haploidalny (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Diploidalny (2n) | Heterozygotyczny (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Diploidalny (2n) | Homozygotyczny (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Aktywność bariery w Candida albicans pośredniczy w degradacji feromonów i promuje kojarzenie. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Diploidalny (2n) | Homozygotyczny (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Haploidalny (1n) | Homozygotyczny (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Haploidalny (1n) | Homozygotyczny (MATα); his4 ura3Δ::HIS4 |
Tabela 1: Szczepy Candida albicans i Candida glabrata wykorzystane w niniejszym badaniu. W tabeli przedstawiono oznaczenia, dokładne genotypy, stopień ploidalności oraz zygotyczność typu strzyżenia dla szczepów grzybów ocenianych w bezkontaktowych testach kokultury w płytkach z wkładkami membranowymi oraz w testach opartych na nadsączu wolnym od komórek (CFS).
Tabela uzupełniająca 1: Dane z analiz statystycznych przeprowadzonych dla różnych parametrów morfologicznych C. albicans. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Surowe wartości wszystkich powtórzeń biologicznych dla różnych parametrów morfologicznych C. albicans ocenianych w niniejszym badaniu.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1: Lista pożywek użytych w niniejszym badaniu wraz z ich składem.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Poprzedni raport, w którym wykorzystano płytkę z wkładkami membranowymi oraz test oparty na CFS, wykazał, że C. albicans rozwija strzępki w odpowiedzi na komórki C. glabrata lub ich CFS. Odpowiedź ta nie była jednak indukowana przez inne drożdże, takie jak Saccharomyces cerevisiae i Candida dubliniensis30. Co więcej, reakcja strzępkowa nie była ograniczona wyłącznie do laboratoryjnego szczepu referencyjnego C. albicans SC5314, lecz wystąpiła również w innych tła genomicznych, w tym w izolacie klinicznym WUM5A30. W niniejszym protokole, w oparciu o te odkrycia, opracowano zstandaryzowany schemat postępowania w celu ilościowego określenia trzech parametrów morfologicznych: długości strzępek, objętości strzępek oraz grubości strzępek. Ponadto czynniki morfologiczne te zostały wykorzystane do oceny, w jaki sposób zmienność ploidalności i status locus typu kojarzenia wpływają na charakterystykę morfologiczną C. albicans w odpowiedzi na wydzielaną cząsteczkę induktora.
Opisane tutaj metody bezkontaktowe zapewniają prostą strukturę eksperymentalną do wizualizacji i analizy efektów morfometrycznych rozpuszczalnych sygnałów komunikacyjnych międzygatunkowych. Podczas gdy płytka z wkładkami membranowymi umożliwia dwukierunkową dyfuzję między aktywnymi kulturami, test oparty na CFS zapewnia skalowalny format, ponieważ wymagane komponenty indukcyjne są pozyskiwane niezależnie od docelowej kultury. W celu zapewnienia spójności testu w układzie z płytką z wkładkami membranowymi wymagane jest utrzymanie stosunku około 1:50 (C. albicans do C. glabrata). Taki gradient stężeń zapewnia odpowiedni strumień rozpuszczalnych cząsteczek indukcyjnych przez barierę membranową, pozostając jednocześnie poniżej progów akumulacji endogennych inhibitorów quorum sensing, takich jak farnezol, który może hamować kinetykę filamentacji C. albicans31,32. Podobnie, krytycznym etapem w teście opartym na CFS jest 18-godzinny okres inkubacji, niezbędny do tego, aby kultura wyjściowa C. glabrata jednolicie osiągnęła późną fazę stacjonarną wzrostu. Jeśli okres inkubacji kultury C. glabrata jest krótszy niż 12 h lub dłuższy niż 24 h, pozyskany CFS z mniejszym prawdopodobieństwem będzie posiadał optymalne stężenie badanej tutaj specyficznej cząsteczki induktora, co prowadzi do suboptimalnej indukcji strzępek. Odpowiedni stopień wzrostu do pozyskania CFS lub stosunek kultur musi zostać wystandaryzowany dla każdego nowego celu eksperymentalnego i/lub nowych kombinacji gatunków drobnoustrojów.
Aby zmaksymalizować powtarzalność testu w różnych warunkach laboratoryjnych, zaleca się następujące kluczowe ulepszenia proceduralne. Do nocnej hodowli wszystkich diploidalnych szczepów C. albicans zaleca się stosowanie minimalnego podłoża glukozowego (GMM). Stosowanie GMM hamuje tło autofilamentacji często obserwowane w bogatym w składniki odżywcze podłożu YPD. Taka autofilamentacja została zaobserwowana również w innych badaniach, choć mechanizm leżący u jej podstaw pozostaje niejasny33. Zaleca się również całkowite fizyczne usunięcie wkładki z membrany poliwęglanowej przed akwizycją obrazu, aby wyeliminować rozpraszanie światła i aberracje optyczne, które mogą zakłócać obrazowanie podczas mikroskopii w polu jasnym przy dużym powiększeniu.
Choć te konfiguracje bezkontaktowe pomagają w oddzieleniu roli rozpuszczalnych komponentów sygnałowych, wiążą się one ze specyficznymi trudnościami eksperymentalnymi. Na przykład testy bezkontaktowe są podatne na niewielkie ryzyka, takie jak przerwanie membrany w wyniku niewłaściwej obsługi, a tym samym na przenikanie drobnoustrojów. Należy zatem zachować ostrożność podczas pozycjonowania końcówek pipet, dbając o to, aby podczas pobierania próbek końcówki dotykały ścianek komór wkładek, a nie membrany. Ponadto do fizycznej kontaminacji krzyżowej między przedziałami może dojść z powodu niewłaściwego (zbyt dużego) rozmiaru porów, co można łatwo rozwiązać, stosując wkładki z membraną o odpowiedniej wielkości porów. Nadmierny wzrost grzybów lub rozległe osadzanie się biofilmu mogą pokryć porowatą membranę. Problem ten rozwiązuje się poprzez ograniczenie początkowych inokulacji do OD600 = 0.1 i nieprzekraczanie czasu inkubacji powyżej 12 h. Dodatkowo mikroby mogą nie rozkładać się homogenicznie w dołkach urządzenia, często skupiając się lub przywierając w pobliżu membrany, co może prowadzić do nieoczekiwanych błędów w pomiarach gęstości optycznej. Co więcej, ponieważ systemy te fizycznie oddzielają dwie populacje, nie mogą one odtworzyć ani ocenić oddziaływań zależnych od bezpośredniego kontaktu fizycznego komórka-komórka. Przykładem są: dojrzewanie biofilmu wielogatunkowego, mechaniczna koagregacja lub sygnalizacja napędzana przez zakotwiczone na powierzchni adhezyny ściany komórkowej. Choć te testy płytkowe zapewniają skuteczny obraz końcowy wczesnej kinetyki filamentacji (w 3 h), nie oddają one długoterminowej dynamiki wzrostu ani zachowania przestrzennego. Dla badaczy wymagających ciągłego śledzenia w czasie rzeczywistym przez dłuższe okresy, bardziej odpowiednią alternatywą mogą być specjalistyczne mikrofluidyczne kanały perfuzyjne lub zautomatyzowane komory do obrazowania żywych komórek.
Geometria komórki jest fundamentalnie powiązana z wydajnością metaboliczną, przy czym stosunek powierzchni do objętości (SA/V) stanowi kluczowy czynnik determinujący pobieranie składników odżywczych i transport wewnątrzkomórkowy. U grzybów dimorficznych i nitkowatych przejście w wydłużony morfotyp strzępkowy funkcjonuje jako adaptacja strukturalna mająca na celu utrzymanie zoptymalizowanego stosunku SA/V. Pozwala to na rozproszone wchłanianie składników odżywczych wzdłuż rozciągniętej ściany strzępki przy jednoczesnym podtrzymaniu procesów metabolicznych skierowanych w stronę wierzchołka strzępki34,35,36,37. Jednak nasze badanie pokazuje, że skalowanie morfometryczne nie jest jednolicie proporcjonalne w różnych stanach ploidii i konfiguracjach loci typu zapłodnienia.
Zbiory danych morfometrycznych wygenerowane via niniejszy protokół śledzenia ujawniają wyraźne trendy skalowania strukturalnego skorelowane z ploidią, przy czym linie haploidalne konsekwentnie wykazują mniejsze wartości bezwzględne we wszystkich metrykach geometrycznych niż odpowiadające im szczepy diploidalne (Rysunek 5). W obrębie tła diploidalnego konfiguracja homozygotyczna MATα/α wykazała przyspieszoną kinetykę filamentacji (długość i objętość) w porównaniu do szczepów MATa/a lub MATa/α w tych warunkach in vitro. Biorąc pod uwagę, że nasilona filamentacja jest często powiązana ze zwiększoną zdolnością penetracji, nie jest jasne, dlaczego izolaty kliniczne C. albicans są izolowane głównie jako diploidy heterozygotyczne (MATa/α). Jest możliwe, że w organizmie gospodarza o sprawnej odporności stan heterozygotyczny zapewnia szerszą przewagę adaptacyjną w kontekście długotrwałej kolonizacji komensalnej. Innymi słowy, cechy strukturalne morfotypu MATa/α są zoptymalizowane pod kątem przetrwania w obliczu nadzoru immunologicznego gospodarza. Dlatego przyszłe badania powinny wykorzystać te zestandaryzowane systemy kokultury do systematycznej oceny porównawczej przystosowania różnych homozygot typów kojarzenia pod wpływem zróżnicowanych presji selekcyjnych.
Poprzednie badania wykazały, że morfologia wakuol, dynamika podziału i łączenia oraz ekspansja strukturalna odgrywają istotną rolę w regulacji objętości wewnętrznej i turgoru wydłużających się filamentów grzybni. Na przykład u patogenu wywołującego zarazę ryżu Magnaporthe oryzaewyraźne przejścia między smukłymi strzępkami wegetatywnymi a cebulowatymi strukturami inwazyjnymi są ściśle skoordynowane ze zmianami w organizacji wakuol38,39,40Jednakże obecny protokół nie monitorował bezpośrednio dynamiki wakuolar podczas C. albicans filamentację, śledzenie tych zmian w obrębie organelli w odniesieniu do całkowitej objętości strukturalnej stanowi obiecujący kierunek przyszłych badań. Ponadto niezbędne są dalsze analizy w celu ustalenia, dlaczego konkretne komponenty sekretomu pochodzenia grzybowego indukują inną kinetykę skalowania morfologicznego niż chemiczne induktory pochodzenia gospodarza, takie jak surowica.
Metody bezkontaktowej kokultury opisane w niniejszym protokole mogą zostać zaadaptowane do badania interakcji międzygatunkowych i międzykrólestwami, takich jak dynamika sygnalizacji między oportunistycznymi populacjami bakterii a grzybami dimorficznymi. Ponadto, ze względu na skalowalność formatów 96- i 24-dołkowych, ta platforma ilościowa może być wykorzystywana do przesiewów chemicznych. Przykładami takich zastosowań jest identyfikacja małocząsteczkowych inhibitorów lub nowych związków przeciwgrzybiczych w celu selektywnego zaburzenia szlaków filamentacji stymulowanej przez sekretom, bez bezpośredniego wpływu na podstawową żywotność komórek.
Oświadczenia
Autorzy oświadczają, że nie istnieją żadne konkurencyjne lub sprzeczne interesy.
Podziękowania
Niniejsza praca była wspierana przez stypendium DBT-Wellcome Trust India Alliance Intermediate Fellowship (IA/I/19/1/504294) przyznane RNP. KBSS otrzymał wsparcie z Ahmedabad University Special Research Grant (AU/SRG/SAS/20-21/07_KS_03.25) oraz SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27). Ikony użyte na Rysunku 1 zostały dostosowane z Servier Medical Art (https://smart.servier.com/), licencjonowane na podstawie CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), oraz z BioArt Source, NIAID, NIH.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Filtr strzykawkowy PES 0.22 μm | Millipore (Merck) | SLGPR33RS | |
| Agar agar | HiMedia | GRM666 | |
| Glukoza | HiMedia | GRM016 | |
| Nunc 24-well Carrier Plate z wkładkami do hodowli komórkowej (0.4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite 96 Well Multidish, traktowany do hodowli komórkowej, płaskie dno | Thermo Scientific | 130188 | |
| Pepton proteozowy | HiMedia | RM005 | |
| Urydyna | Sigma | U6381 | |
| Ekstrakt drożdżowy | HiMedia | RM027 | |
| Yeast Nitrogen Base, z siarczanem amonu, bez aminokwasów | HiMedia | M878 |
Bibliografia
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Przedruki i uprawnienia
