Opisujemy wrażliwą, czasowo rozdzielczościową ilościową platformę do pomiaru klirensu pozakomórkowego tau w ludzkich wywołanych pluripotencjalnych komórkach macierzystych (iPSC) pochodzących z mikroglii, z wykorzystaniem systemu luminescencji opartego na płytkach mikrotytrajowych. Takie podejście umożliwia wrażliwe wykrywanie kinetyki degradacji tau w formacie mikrodołków, pozwalając na dużo wyższą efektywność badania przetwarzania tau w różnych warunkach eksperymentalnych.
Artykuł metodologiczny
Przeciwbadzieniowy test uzupełniania Split-Luciferazy do czasowo rozdzielonych pomiarów eliminacji Tau w mikrogleju
W tym artykule
Podsumowanie
Streszczenie
Jako komórki odpornościowe mózgu, mikroglej to centralne regulatory homeostazy mózgu i kluczowe mediatory chorób neurodegeneracyjnych. Te komórki ciągle monitorują środowisko neuronowe i odgrywają krytyczną rolę w rozpoznawaniu, internalizacji i degradacji substratów pozakomórkowych, w tym nieprawidłowo sfałdowanych i zagregowanych białek, takich jak patologiczne tau. Pomimo rosnących dowodów implikujących mikroglej w usuwaniu tau, istniejące podejścia do pomiaru przyjmowania i degradacji tau nie mają rozdzielczości czasowej i wrażliwości potrzebnej, aby w pełni uchwycić te dynamiczne procesy. Tutaj, opracowałyśmy świetlny test do ilościowego monitorowania usuwania tau w mikrogleju pochodzącym z ludzkich pluripotencjalnych komórek macierzystych (iPSC). Ta platforma wykorzystuje system dopełniacza oparty na podzielonej lucyferazie, aby umożliwić wysoce wrażliwe, czasowe wykrywanie tau w żywych komórkach, pozwalając na precyzyjne śledzenie jego wewnątrzkomórkowego przetwarzania. Ten test jest skalowalny i przystosowywalny dla wielu typów komórek, zapewniając wszechstronne narzędzie do badania szlaków endolizosomalnych i mechanizmów komórkowych rządzących obsługą tau w chorobach neurodegeneracyjnych, w tym chorobie Alzheimera.
Wprowadzenie
Tauopatii, w tym choroba Alzheimera (AD), charakteryzują się agregacją i rozprzestrzenianiem się białka tau związanego z mikrotubulami w obrębie obwodów neuronalnych1,2. Glia są coraz bardziej doceniane jako regulatorzy dynamiki choroby tau, w tym pobierania, degradacji i rozprzestrzeniania się3,4,5,6,7,8,9,10,11,12. Zrozumienie, w jaki sposób glia przyczynia się do tauopatii, jest pilnym problemem do rozwiązania kluczowych dynamiki choroby, w tym neuroinflamacji i rozprzestrzeniania się tau. Wśród populacji glejocytów, mikrogleja – komórki fagocytarne zamieszkujące mózg – są unikalnie pozycjonowane, aby pośredniczyć w usuwaniu tau.
Mimo pilnej potrzeby wyjaśnienia mechanizmów obsługi tau w mikroglei, dziedzina ta nadal ogranicza się w zakresie rozdzielczości i przepustowości dostępnych testów. Kluczowe pytania dotyczące wewnętrznego pobierania tau, transportu wewnątrzkomórkowego i usuwania komórkowego pozostają nierozwiązane. Każdy z tych etapów reprezentuje odrębny mechanizmiczny proces: pobieranie odnosi się do wewnętrznego pobierania tau pozakomórkowego w błonie komórkowej; transport obejmuje sortowanie i transport pobranego tau przez endosomalne, lizosomalne i inne komponenty wewnątrzkomórkowe; a degradacja oznacza proteolityczny rozkład tau, głównie przez ścieżki lizosomalne i proteasomowe. Chociaż te kroki są sekwencyjne dla przetwarzania tau pozakomórkowego, ponieważ pobrane tau musi przejść przez komponenty wewnątrzkomórkowe przed osiągnięciem mechanizmów degradacyjnych, są one niezależnie regulowane, a dana eksperymentalna perturbacja może wpływać na jeden krok bez zmiany pozostałych. Na przykład zmniejszenie wewnętrznego sygnału tau może oznaczać upośledzone pobieranie, niewłaściwe kierowane z dala od komponentów degradacyjnych lub zwiększoną degradację. Rozwiązanie tych procesów wymaga nowych platform testowych, które mogą wykrywać obecność białka i mogą być połączone z istniejącymi środkami w celu określenia losu białka w czasie.
Obecne metody rozwiązywania wewnętrznego pobierania i degradacji tau opierają się na immunocytochemii, cytometrii przepływowej, western blottingu i podejściach do fluorescencyjnego oznaczania w celu ilościowego określenia pobierania, lokalizacji subkomórkowej i przetwarzania wewnątrzkomórkowego gatunków tau13,14,15,16,17,18. Jednak każde z tych podejść cierpi na fundamentalne ograniczenia, gdy jest stosowane do badania dynamiki usuwania białka. Immunocytochemia i western blotting nie mają wystarczającej czułości do wykrycia gatunków tau o niskiej obfitości i są pracochłonne. Cytometria przepływowa i testy oparte na fluorescencji nie wiernie raportują usuwanie białka, ponieważ fluorofory mogą utrzymywać się po zdegradowaniu skonjugowanego białka19, rozdzielając sygnał fluorescencyjny od rzeczywistego losu białka interesującego nas. Razem, te ograniczenia pozostawiają krytyczną lukę, bez żadnej istniejącej metody, która jednocześnie zapewnia czułość, rozdzielczość czasową i skalowalność wymaganą do ilościowego śledzenia dynamiki usuwania tau. Dlatego główną przeszkodą w postępie w zrozumieniu dynamiki obsługi tau w mikroglei był brak ilościowych, czasowo rozdzielonych, wysoko-przepustowościowych testów do pomiaru usuwania tau w żywych komórkach.
Aby załatać lukę w braku ilościowej platformy do monitorowania dynamiki tau w żywych komórkach, opracowaliśmy wrażliwy test oparty na luminescencji, który może być używany do wykrywania dynamiki białka tau wewnątrzkomórkowego. To podejście wykorzystuje system dopełniający oparty na podzielonym luciferase, w którym mała tag-peptydowa (High Affinity Binary Technology lub HiBiT) jest scalana z tau, umożliwiając pomiary kinetyczne w żywych komórkach. Po interakcji z komplementarnym partnerem wiązania (Large Binary Technology lub LgBiT), oznaczone białko odtwarza aktywny enzym luciferase, generując ilościowy bioluminescencyjny sygnał20,21,22. Ten luminescencyjny sygnał zapewnia bezpośrednie, wrażliwe odczytywanie obfitości białka, umożliwiając dynamiczne śledzenie zmian w poziomach wewnątrzkomórkowych w czasie. W rezultacie luminescencja może być używana jako solidny reporter obecności lub braku białka, jak w przypadku degradacji wewnątrzkomórkowej. Razem, ta platforma umożliwia precyzyjne, czasowo rozdzielone pomiary obsługi tau i oferuje powszechnie stosowalną strategię do badania obrotu białka.
Protokół
Wszystkie eksperymenty komórkowe przeprowadzono w odpowiednim laboratorium o poziomie bezpieczeństwa biologicznego 2, zatwierdzonym przez Służby Ochrony Środowiska i Zdrowia Uniwersytetu Massachusetts Amherst.
1. Ekspresja, oczyszczanie i usuwanie endotoksyny białka Tau-SLP
- Dołącz peptyd split-lucyferazy lub tag SLP (VSGWRLFKKIS) do konstruktu Tau, aby stworzyć oznakowane konstrukty (Tau-SLP) przy użyciu standardowych metod klonowania, takich jak montaż Gibson23.
UWAGA: Uzupełnienie tagu peptydu split-lucyferazy generuje mocny sygnał, jeśli jest umieszczony na końcu C-terminalnym, N-terminalnym lub w domen wewnętrznych 2N4R Tau24. - Wyprodukuj i oczyść Tau-SLP przy użyciu wcześniej opisanych metod25,26 i upewnij się o czystości za pomocą SDS-PAGE i immunoblottingu.
- Do użycia z komórkami mikrogleju, postępuj zgodnie z opublikowanymi protokołami, aby usunąć endotoksyny bakteryjne po oczyszczeniu Tau-SLP, aby ograniczyć niepożądane reaktywności27.
- Określ stężenie białka Tau-SLP za pomocą standardowego testu kwasu bicinchoninowego (BCA) lub testu Bradford28,29.
- Jeśli to pożądane, agreguj Tau-SLP zgodnie z wcześniej opisanymi protokołami24.
- Waliduj funkcjonalne luminescencje Tau-SLP, generując krzywą standardową przy użyciu komercyjnie dostępnego substratu lucyferazy i reagentu dopełnienia, zgodnie z instrukcjami producenta (patrz Tabela Materiałów).
2. Hodowla mikroglii pochodzącej z iPSC (iTF-Mikroglia)
- Hoduj komórki mikrogleju w 5% CO2 w temperaturze 37 °C w odpowiednim pożywce hodowlanej.
- Zróżnicuj linię komórek pluripotentnych (iPSC) zawierającą sześć indukowanych przez doksycyklinę czynników transkrypcyjnych, aby wytworzyć komórki przypominające mikroglej (indukowany transkrypcyjny czynnik mikroglej-podobny lub iTF-Mikroglej) przy użyciu zweryfikowanego protokołu30 (patrz Tabela Materiałów).
UWAGA: Ten test nie jest ograniczony do iTF-Mikroglii i może być stosowany z dowolną linią komórek adhezji. Optymalizacja czasów klaransu może być wymagana podczas pracy z innymi liniami komórek.
3. Test klaransu Tau
- Na 24-dołkową płytkę, umieść komórki w gęstości 1 x 10⁵ komórek na dołku, w trzech powtórzeniach na warunek, z pożywką hodowlanym (250 μL) i inkubację przez noc w temperaturze 37 °C i 5% CO2 (Rysunek 1A).
- Usuń pożywkę hodowlanym, przepłucz komórki raz z PBS (250 μL) i zamień na 250 μL pożywki hodowlanym.
- Aby czasowo zmierzyć klarans Tau-SLP, wystaw komórki na Tau-SLP w sposób przesunięty, aby wszystkie dołki zostały zebrane jednocześnie, różniąc się tylko czasem klaransu. Na przykład, dla grup klaransu 0 h, 2 h i 4 h, dodaj 100 nM pożywki zawierającej Tau-SLP najpierw do grupy 4 h, następnie 1 h później do grupy 2 h i wreszcie 1 h później do grupy 0 h (patrz Rysunek 1B dla zaleceń dotyczących czasu). Po zakończeniu ostatniego okresu internalizacji wszystkie dołki przeszły ten sam okres ekspozycji na Tau-SLP, ale różnią się tylko czasem klaransu (Rysunek 1B).
- Umieść dołki nieotrzymujące żadnego leczenia Tau-SLP na potrzeby subtrahowania tła (Rysunek 1C).
- Pod koniec okresu internalizacji usuń pożywkę zawierającą Tau-SLP. Przepłucz komórki trzy razy z PBS, aby usunąć pozakomórkowe Tau-SLP i zamień na pożywkę hodowlanym bez Tau-SLP.
- Inkubaj komórki przez określony czas klaransu (Rysunek 1A). Grupa 0 h klaransu, zebrana natychmiast po okresie internalizacji, reprezentuje całkowitą ilość zinternalizowanego Tau-SLP na początku fazy klaransu.
- Po wszystkich punktach czasowych klaransu usuń pożywkę z dołków i przepłucz 250μL PBS.
- Tresc każdy dołek przez 5 min w 37 °C z 250 μL Trypsyny-EDTA 0,25%. Ten krok usuwa tau związane z powierzchnią, aby upewnić się, że luminescencja odzwierciedla zinternalizowanego Tau-SLP. Neutralizuj każdy dołek z 250 μL inhibitorem trypsyny (5 mg/mL).
- Zbierz każdy dołek do odpowiednio oznaczonej mikroprobówki 1,5 mL i osadź przez wirowanie (500 x g, 5 min).
- Przygotuj odpowiednią ilość buforu lizacyjnego zawierającego substrat lucyferazy i komponenty dopełnienia (patrz Tabela Materiałów; 50 μL x liczba dołków + 10%).
- Usuń każdy nadstan z pipetą aspirowajac
Wyniki
Dzięki zastosowaniu tego czułego testu opartego na luminescencji, możliwe było monitorowanie w czasie zawartości wewnątrzkomórkowego Tau-SLP po zsynchronizowanym okresie poboru w mikrogleju pochodzącym z ludzkich iPSC. Po wypłukaniu Tau-SLP luminescencja stopniowo spadała, co było zgodne z wewnątrzkomórkowym usuwaniem Tau-SLP. Platforma ta była wystarczająco czuła, aby wykryć różnice w sposobie przetwarzania monomerów i włókien Tau-SLP przez mikroglej. Monomeryczny Tau-SLP został całkowicie usunięty z iTF-Microglia w ciągu 60 min, podczas gdy włóknisty Tau-SLP utrzymywał się przez ponad 240 min (Rysunek 2A). Dodatkowo przeprowadzono test z mutantem tau (np. N279K) w celu oceny kinetyki usuwania, co wykazało, że TauN279K-SLP wykazuje znacznie obniżoną kinetykę usuwania jedynie w krótkich punktach czasowych (15 min) (Rysunek 2B). Wyniki te sugerują, że zaobserwowana degradacja może być widoczna jedynie dzięki wysokiej czułości tego testu. W celu potwierdzenia udziału lizosomów przeprowadzono eksperyment degradacji Tau-SLP z użyciem małej cząsteczki L-leucylo-L-leucyny w postaci estru metylowego (LLOMe). LLOMe jest substratem katepsyny C, który permeabilizuje błony lizosomalne, zaburzając aktywność lizosomów31. Po zastosowaniu LLOMe zaobserwowano znacząco zwiększone stężenia stanu stacjonarnego Tau-SLP w t=0 (Rysunek 3A) oraz znacząco obniżoną szybkość degradacji (Rysunek 3B), z 4-krotnym wzrostem ilości pozostałego Tau-SLP po 60 min czasie usuwania. Na koniec przeprowadzono test usuwania Tau-SLP w neuronach pochodzących z iPSC, aby potwierdzić kompatybilność testu między różnymi typami komórek. Stwierdzono, że neurony pochodzące z iPSC wykazują obniżoną kinetykę usuwania zarówno dla form monomerów (Rysunek 4A), jak i włókien (Rysunek 4B) Tau-SLP. Co najważniejsze, poziomy włókien Tau-SLP pozostają stabilne na poziomie ~100% podczas 240 min usuwania, podczas gdy w tym samym czasie poziomy włókien Tau-SLP w iTF-Microglia spadły poniżej 50%. Wyniki te dowodzą, że nasza platforma komplementacji oparta na rozszczepionej lucyferazie zapewnia solidne i wiarygodne wykrywanie wewnątrzkomórkowego usuwania endolizosomalnego Tau-SLP oraz prezentuje wysoce adaptowalną konstrukcję testu, którą można zastosować do wielu innych białek lub typów komórek.
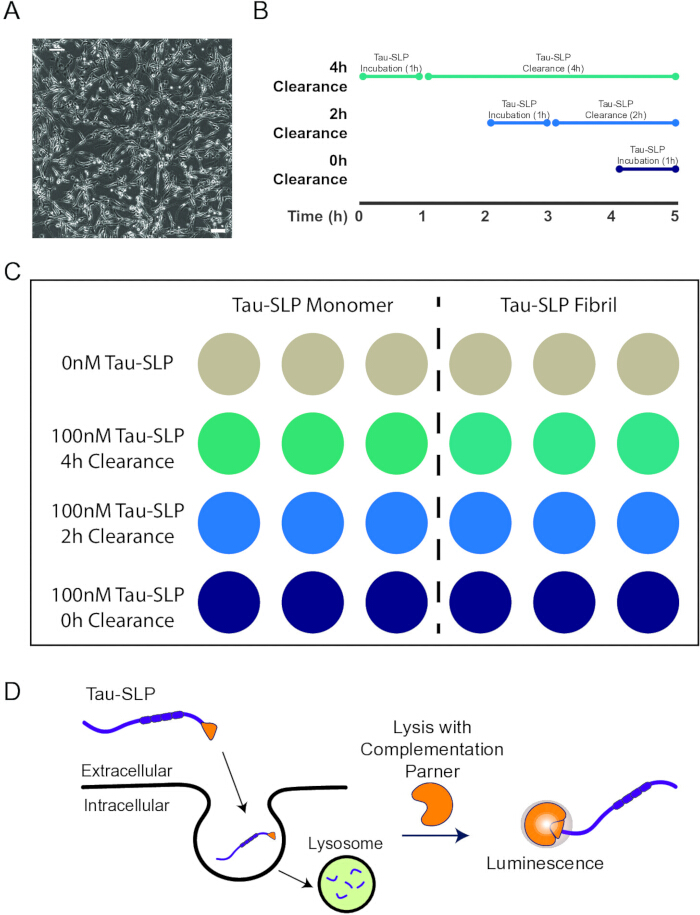
Rycina 1: Reprezentatywny projekt eksperymentalny testu usuwania Tau-SLP. (A) Reprezentatywny obraz w polu jasnym iTF-Microglia wykorzystanych w tym teście (pasek skali = 100µm) (B) Ludzkie mikrogleje (iTF-Microglia) są eksponowane na rekombinowane 2N4R-SLP w sposób kaskadowy, co umożliwia dokładną detekcję opartą na luminescencji. Po 1-godzinnej inkubacji zewnątrzkomórkowe tau są usuwane poprzez wymianę pożywki, a komórki są płukane w PBS. Komórki są utrzymywane w pożywce podstawowej podczas odpowiedniego okresu usuwania (0 h, 2 h, 4 h) przed zbiorem. W punkcie końcowym komórki są lizowane, a luminescencja jest mierzona. (C) Proponowany układ płytki do pomiaru usuwania Tau-SLP w porównaniu degradacji monomerycznej do włóknistej. (D) Białko Tau-SLP jest internalizowane do komórek i kierowane do degradacji lizosomalnej. Dodanie LgBiT zapewnia ilościowy odczyt ilości Tau-SLP pozostałego w komórce poprzez komplementację i generowanie luminescencji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
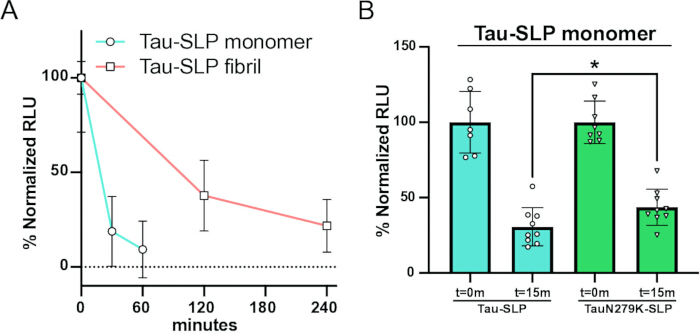
Rycina 2: iTF-Microglia usuwają zewnątrzkomórkowe Tau-SLP. (A) iTF-Microglia poddano działaniu monomerów Tau-SLP (100nM) lub włókien Tau-SLP (50nM); próbki znormalizowano do odpowiedniego początkowego pobrania (t = 0; 100%) oraz do komórek niepoddanych działaniu Tau-SLP (0%) (średnia ± SD; n = 9 z trzech niezależnych różnicowań). (B) iTF-Microglia inkubowano z monomerami Tau-SLP lub TauN279K-SLP (100nM); próbki znormalizowano do odpowiedniego początkowego pobrania (t = 0; 100%) oraz do komórek niepoddanych działaniu Tau-SLP (0%) (średnia ± SD; n ≥ 7 z trzech niezależnych różnicowań; ∗ p < 0.05 przy użyciu nieparzystego testu t Welcha). Dane przedrukowane z Shultz et al., 202524, wykorzystane na licencji Creative Commons Attribution (CC BY 4.0). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
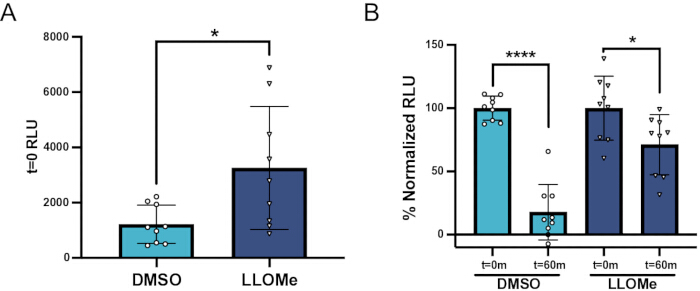
Rycina 3: Hamowanie lizosomów upośledza usuwanie Tau-SLP. (A) Traktowanie 1mM inhibitorem lizosomów L-leucylo-L-leucynianem metylu (LLOMe) przez 24 h zwiększyło początkowe pobieranie Tau-SLP (t = 0) w komórkach neurogliomy H4 (średnia ± SD; n = 9 niezależnych kultur; ∗ p < 0,05 przy użyciu nieparzystego testu t Welcha). (B) Traktowanie LLOMe (1mM) przez 24 h zwiększyło znormalizowany % RLU Tau-SLP po 60 min czasu usuwania (t = 60min) w porównaniu z nośnikiem (DMSO). Sygnał luminescencyjny znormalizowano do odpowiednich początkowych poziomów pobierania (100%) oraz komórek, które nie były eksponowane na Tau-SLP (0%) (średnia ± SD; n = 9 niezależnych kultur; ∗∗∗∗ p < 0,0001, ∗ p < 0,05 przy użyciu nieparzystego testu t Welcha). Dane przedrukowane z Shultz et al., 202524, i użyte na podstawie licencji Creative Commons Attribution (CC BY 4.0). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
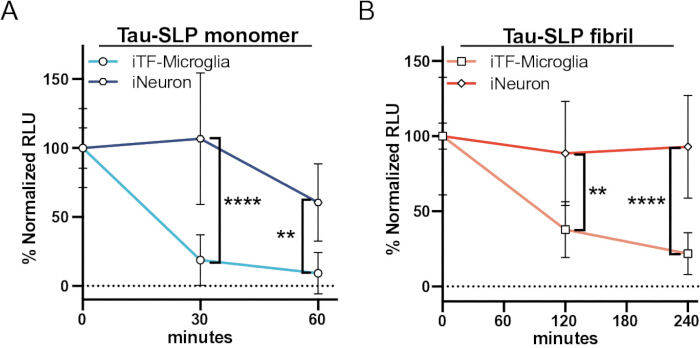
Rycina 4: iTF-Microglia i iNeurony wykazują różnice w usuwaniu Tau-SLP. (A) iTF-Microglia lub iNeurony inkubowano z monomericznym Tau-SLP (100nM); próbki znormalizowano względem odpowiedniego początkowego pobrania (t=0; 100%) oraz komórek nieeksponowanych na Tau-SLP (0%) (średnia±SD; n ≥ 6 z dwóch-trzech niezależnych różnicowań; ∗∗ p < 0.01, ∗∗∗∗ p < 0.0001 przy użyciu dwuczynnikowej analizy wariancji ANOVA; czas: F(1, 28) = 7.489, p = 0.0107; typ komórek: F(1, 28) = 46.61, p < 0.0001; interakcja: F(1, 28) = 3.229, p = 0.0831; test wielokrotnych porównań Sidaka, wartości p wskazane na rycinie; wartości dla t=0 przedstawiono dla odniesienia, lecz wykluczono je z analizy statystycznej). (B) iTF-Microglia lub iNeurony inkubowano z włóknistym Tau-SLP (50nM); próbki znormalizowano względem odpowiedniego początkowego pobrania (t=0; 100%) oraz komórek nieeksponowanych na Tau-SLP (0%) (średnia±SD; n ≥ 6 z dwóch do trzech niezależnych różnicowań; ∗∗ p < 0.01, ∗∗∗∗ p < 0.0001 przy użyciu dwuczynnikowej analizy wariancji ANOVA; czas: F(1, 26) = 0.3888, p = 0.5384; typ komórek: F(1, 26) = 43.09, p < 0.0001; interakcja: F(1, 26) = 1.209, p = 0.2816; test wielokrotnych porównań Sidaka, wartości p wskazane na rycinie; wartości dla t=0 przedstawiono dla odniesienia, lecz wykluczono je z analizy statystycznej). Dane przedrukowane z Shultz et al., 202524, użyte na licencji Creative Commons Attribution (CC BY 4.0). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
To narzędzie zapewnia skalowalną i ilościową platformę do mierzenia zewnątrzkomórkowego usuwania Tau-SLP przez mikrogleję z wysoką czułością i rozdzielczością czasową. W przeciwieństwie do tradycyjnych metod opartych na obrazowaniu, które często wymagają pracochłonnej obróbki próbek i są ograniczone pod względem przepływu i próbkowania czasowego, ten system oparty na luminescencji umożliwia bezpośrednie, ilościowe określenie poziomu tau na poziomie populacji w formacie płytki mikrotypanowej. Otrzymany wynik zapewnia ilościowe pomiaru usuwania Tau-SLP po ekspozycji na zewnątrzkomórkowe tau. Ponieważ pomiary mogą być uzyskiwane wielokrotnie w wielu punktach czasowych i przy dłuższych okresach inkubacji, test umożliwia wysokoszybkową, kinetycznie rozdzielczną analizę dynamiki pobierania i usuwania tau. Ponadto zmiany w luminescencji w czasie są zgodne ze zmianami w wewnątrzkomórkowym stężeniu Tau-SLP, ale nie rozróżniają między przemieszczaniem, degradacją czy sekrecją bez uzupełniających podejść. Chociaż znacznik Tau-SLP nie wpłynął istotnie na pobieranie tau czy agregację w naszym towarzyszącym badaniu24, egzogenne znaczniki mogą wpływać na zachowanie innych białek. Dlatego wyniki testu powinny być uzupełniane za pomocą ortogonalnych podejść i porównywane z preparatami tau bez znaczników, gdzie to możliwe. Dodatkową ograniczeniem jest to, że ten test wykorzystuje rekombinowane gatunki Tau-SLP, a nie endogenne tau czy pochodzące od pacjentów patologiczne agregaty tau. Podczas gdy rekombinowane 2N4R tau zapewnia powtarzalny eksperymentalny substrat, nie w pełni odwzorowuje endogenną heterogeniczność (tj. modyfikacje potranslacyjne) gatunków tau izolowanych z mózgów ludzkich pacjentów. Istnieje wiele protokołów dotyczących in vitro fosforylacji rekombinowanego białka tau i mogą one być łatwo włączone do tego przepływu pracy. Ta platforma może również być dostosowana do badania endogennego tau; wymagałoby to zastosowania inżynierii genetycznej do włączenia sekwencji znacznika SLP w locus tau (MAPT).
Ważne jest, aby interpretacja redukcji sygnału jako degradacji była uzależniona od skutecznego usunięcia tau zewnątrzkomórkowego i związanego z powierzchnią, na przykład poprzez trypsynizację lub równoważne kroki ściągania. Możliwe są fałszywie ujemne wyniki, jeśli skuteczne usunięcie nie zostanie osiągnięte. Również pozorna utrata sygnału, która zostałaby interpretowana jako fałszywie dodatnia degradacja tau, jest możliwa. Mogłoby to wynikać z oderwania komórek czy ich śmierci, sekrecji Tau-SLP czy proteolitycznego rozszczepienia, które oddziela SLP od tau bez degradacji białka. Odpowiednio, spadki w luminescencji powinny być interpretowane jako redukcje wewnątrzkomórkowego stężenia Tau-SLP, a nie jako bezpośrednie pomiary degradacji lizosomowe. Aby bardziej jednoznacznie przypisać zmiany sygnału do degradacji lizosomowe, zalecane są ortogonalne strategie walidacji. Mogą one obejmować farmakologiczne zakłócenie funkcji lizosomowe, takie jak leczenie bafilomycyną A1 lub LLOMe (Rysunek 3), a także eksperymentalne projekty pulse–chase, aby rozdzielić dynamikę pobierania i degradacji.
Giętkość tego testu sprawia, że jest on dobrze przystosowany do badania mechanizmów rządzących pobieraniem tau, przemieszczaniem wewnątrzkomórkowym i degradacją, a także do przesiewowych testów farmakologicznych czy genetycznych modyfikatorów usuwania tau w ludzkich systemach komórkowych. Chociaż przedstawiono tutaj w mikrogleji pochodzącej z iPSC, platforma jest łatwo przystosowana do innych typów komórek (Rysunek 4), umożliwiając szerokie zastosowanie w modelach biologii tau i chorób neurodegeneracyjnych, w tym chorobie Alzheimera i innych pierwotnych i wtórze tauopatiach. Ponieważ ten test opiera się na zewnątrzkomórkowym ekspozycji Tau-SLP i wykrywaniu opartym na luminescencji, powinien być łatwo przystosowany do astrocytów, oligodendrocytów czy powszechnie stosowanych linii komórkowych, choć może być konieczna optymalizacja warunków pobierania. W sumie, to podejście zapewnia potężne narzędzie do rozdzielania ścieżek komórkowych zaangażowanych w proteostazę i rozwijania mechanistycznego rozumienia procesów chorób neurodegeneracyjnych.
Oświadczenia
Autorzy nie mają nic do ujawnięcia.
Podziękowania
Praca ta była wspierana przez granty Narodowych Instytutów Zdrowia (AG064116, AG077672)
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Accutase | Thermo Scientific | A1110501 | |
| Stożkowe sterylne polipropylenowe probówki do wirówki | Fisher Scientific | 12-565-268 | |
| Corning Matrigel Growth Factor Reduced (GFR) Basement Membrane Matrix, Phenol Red-free, LDEV-free | Corning | 356231 | |
| DMEM/F-12, HEPES | Thermo Scientific | 11330057 | |
| Doksycyklina | Clontech | 631311 | |
| DPBS | Thermo Scientific | 14-190-250 | |
| GlutaMAX | Thermo Scientific | 35050061 | |
| Oprogramowanie graficzne | GraphPad Prism (lub podobne) | n/a | |
| Human GM-CSF | Thermo Scientific | 300-03 | |
| KnockOut DMEM | Thermo Scientific | 10829018 | |
| Luminescent Plate Reader | SpectraMax i3x (lub podobne) - Molecular Devices | n/a | |
| Probówki do mikrowirówki | Fisher Scientific | 02-682-002 | |
| Płytka mikroskoliczna, 96 dołków, PS, półpowierzchniowa, biała | Greiner | 675075 | |
| mTeSR Plus | STEMCELL Technologies | 100-0276 | |
| Nano-Glo HiBiT Lytic Detection System | Promega | N3030 | |
| Poly-L-Lysine hydrobromide | Fisher Scientific | ICN15017750 | |
| Recombinant Human IL-34 | Thermo Scientific | 200-34 | |
| Recombinant Human M-CSF | Thermo Scientific | 300-25 | |
| Recombinant Human TGF-β1 | Thermo Scientific | 100-21C | |
| Surface Treated Sterile Tissue Culture Plates | Fisher Scientific | FB012927 | |
| Białko Tau-HiBiT | In house | n/a | Białko Tau z tagiem peptydowym VSGWRLFKKIS |
| Inhibitor trypsyny | Sigma Aldrich | T9128 | |
| Trypsyna-EDTA | Thermo Scientific | 5-200-072 | |
| Y-27632 dihydrochloride | Bio-techne | 1254 |
Bibliografia
- Vogel, J. W. et al. Spread of pathological tau proteins through communicating neurons in human Alzheimer’s disease. Nat Commun 11, 2612 (2020).
- Weber, A. J. et al. Tau seeds induce neurofibrillary tangle formation across brain regions via individual-specific connectivity. Neuron S0896627326001649 doi:10.1016/j.neuron.2026.03.001 (2026).
- Luo, W. et al. Microglial internalization and degradation of pathological tau is enhanced by an anti-tau monoclonal antibody. Sci Rep 5, 11161 (2015).
- Bolós, M. et al. Direct Evidence of Internalization of Tau by Microglia In Vitro and In Vivo. JAD 50, 77-87 (2016).
- Bolós, M. et al. Absence of CX3CR1 impairs the internalization of Tau by microglia. Mol Neurodegeneration 12, 59 (2017).
- Perea, J. R. et al. Extracellular Monomeric Tau Is Internalized by Astrocytes. Front. Neurosci. 13, 442 (2019).
- Fleeman, R. M., & Proctor, E. A. Astrocytic Propagation of Tau in the Context of Alzheimer’s Disease. Front. Cell. Neurosci. 15, 645233 (2021).
- Mothes, T. et al. Astrocytic uptake of neuronal corpses promotes cell-to-cell spreading of tau pathology. acta neuropathol commun 11, 97 (2023).
- Eltom, K., Mothes, T., Libard, S., Ingelsson, M., & Erlandsson, A. Astrocytic accumulation of tau fibrils isolated from Alzheimer’s disease brains induces inflammation, cell-to-cell propagation and neuronal impairment. acta neuropathol commun. 12, 34 (2024).
- Ferrer, I. et al. Involvement of Oligodendrocytes in Tau Seeding and Spreading in Tauopathies. Front. Aging Neurosci. 11, 112 (2019).
- Hopp, S. C. et al. The role of microglia in processing and spreading of bioactive tau seeds in Alzheimer’s disease. J Neuroinflammation 15, 269 (2018).
- Asai, H. et al. Depletion of microglia and inhibition of exosome synthesis halt tau propagation. Nat Neurosci 18, 1584-1593 (2015).
- Dickson, J. R. et al. Alzheimer disease-associated tau post-translational modification mimics impact tau propagation and uptake. Journal of Neuropathology & Experimental Neurology 84, 459-470 (2025).
- Weisová, P. et al. Therapeutic antibody targeting microtubule-binding domain prevents neuronal internalization of extracellular tau via masking neuron surface proteoglycans. acta neuropathol commun 7, 129 (2019).
- Shamir, D. B., Rosenqvist, N., Rasool, S., Pedersen, J. T., & Sigurdsson, E. M. Internalization of tau antibody and pathological tau protein detected with a flow cytometry multiplexing approach. Alzheimer’s & Dementia. 12, 1098-1107 (2016).
- Evans, L. D. et al. Extracellular Monomeric and Aggregated Tau Efficiently Enter Human Neurons through Overlapping but Distinct Pathways. Cell Reports 22, 3612-3624 (2018).
- Holmes, B. B. et al. Heparan sulfate proteoglycans mediate internalization and propagation of specific proteopathic seeds. Proc. Natl. Acad. Sci. U.S.A. 110, (2013).
- Boland, B. et al. Autophagy induction and autophagosome clearance in neurons: relationship to autophagic pathology in Alzheimer’s disease. J Neurosci 28, 6926-6937 (2008).
- Mandrekar, S. et al. Microglia Mediate the Clearance of Soluble Aβ through Fluid Phase Macropinocytosis. J. Neurosci. 29, 4252-4262 (2009).
- Oh-hashi, K., Furuta, E., Fujimura, K., & Hirata, Y. Application of a novel HiBiT peptide tag for monitoring ATF4 protein expression in Neuro2a cells. Biochemistry and Biophysics Reports. 12, 40-45 (2017).
- Schwinn, M. K. et al. CRISPR-Mediated Tagging of Endogenous Proteins with a Luminescent Peptide. ACS Chem. Biol. 13, 467-474 (2018).
- Boursier, M. E. et al. The luminescent HiBiT peptide enables selective quantitation of G protein–coupled receptor ligand engagement and internalization in living cells. Journal of Biological Chemistry 295, 5124-5135 (2020).
- Gibson, D. G. et al. Enzymatic assembly of DNA molecules up to several hundred kilobases. Nat Methods 6, 343-345 (2009).
- Shultz, A. et al. Extracellular tau clearance is governed by its aggregation state and independent of microglial activation by LPS and IFN-γ. Neurobiology of Disease 215, 107058 (2025).
- Rauch, J. N. et al. LRP1 is a master regulator of tau uptake and spread. Nature 580, 381-385 (2020).
- Rauch, J. N. et al. Tau Internalization is Regulated by 6-O Sulfation on Heparan Sulfate Proteoglycans (HSPGs). Sci Rep 8, 6382 (2018).
- Shultz, A., Mena, D., Roy, J. L., Nulman, J., & Rauch, J. N. Protocol for the removal of bound endotoxin from tau protein produced in Escherichia coli. STAR Protocols. 6, 104177 (2025).
- Smith, P. K. et al. Measurement of protein using bicinchoninic acid. Analytical Biochemistry 150, 76-85 (1985).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Analytical Biochemistry. 72, 248–254 (1976).
- Dräger, N. M. et al. A CRISPRi/a platform in human iPSC-derived microglia uncovers regulators of disease states. Nat Neurosci 25, 1149-1162 (2022).
- Elias, R. D. et al. Cathepsin C–Catalyzed Ligation Generates Intralysosomal Amyloid Fibrils from Dipeptide Esters. Preprint at https://doi.org/10.64898/2025.12.23.696283 (2025).
Przedruki i uprawnienia
Przeglądaj więcej artykułów
