Modele ksenoprzeszczepów – pochodzące z linii komórkowych (CDX), pochodzące od pacjenta (PDX), humanizowane oraz autologiczne – pozostają podstawową platformą in vivo w opracowywaniu leków przeciwnowotworowych; ustandaryzowane raportowanie, racjonalny dobór platformy oraz translacja oparta na sztucznej inteligencji definiują obecne najlepsze praktyki.
Artykuł przeglądowy
Ustandaryzowane modele ksenograftów w przedklinicznych badaniach nad rakiem
W tym artykule
Podsumowanie
Streszczenie
Modele ksenoprzeszczepowe stanowią główną platformę in vivo w onkologii przedklinicznej i są najlepiej ugruntowanym eksperymentalnym ogniwem łączącym hodowle komórkowe z badaniami klinicznymi. Od modeli króliczych narażonych na kancerogeny z początku XX wieku, po obecną generację humanizowanych systemów ksenoprzeszczepów pochodzących od pacjentów (PDX), platformy te ewoluowały w odpowiedzi na potrzeby translacyjnych badań nad rakiem. Niniejszy przegląd krytycznie analizuje zasady biologiczne, standardy metodologiczne oraz zastosowania translacyjne głównych platform ksenoprzeszczepowych obecnie w użyciu. Modele ksenoprzeszczepów pochodzących z linii komórkowych (CDX) pozostają najszerzej stosowaną i najbardziej efektywną kosztowo metodą testowania skuteczności przedklinicznej, oferując powtarzalność, skalowalność i dostępność, które przez dziesięciolecia podtrzymywały ich rolę w procesach opracowywania leków onkologicznych. Modele PDX wyłoniły się jako preferowana platforma do projektowania współklinicznych badań, odkrywania biomarkerów prognostycznych i zastosowań w onkologii personalizowanej, zachowując krajobraz genomiczny, heterogeniczność wewnątrznowotworową oraz architekturę histologiczną guza dawcy w kolejnych pasażach. Przeanalizowano biologię przyjmowania przeszczepów w systemach PDX, w tym dobór immunodeficyjnych szczepów gospodarzy, miejsce implantacji, źródło guza oraz biologię pasażowania, wraz z konfiguracjami humanizowanymi i autologicznie humanizowanymi, które rozszerzają możliwości platformy o ocenę inhibitorów punktów kontrolnych układu odpornościowego, bispecyficznych przeciwciał angażujących limfocyty T oraz terapii komórkami T z chimerycznym receptorem antygenowym (CAR-T). W przeglądzie omówiono translację z fazy przedklinicznej do klinicznej w zależności od rozbieżności immunologicznych, niepełnej rekonstrukcji mikrośrodowiska guza oraz standaryzacji. Omówiono formalne ramy, w tym standard Minimal Information for PDX Models (PDX-MI) oraz Minimal Information for Standardization of Humanized Mice (MISHUM), obok globalnej infrastruktury biobanków i pojawiających się podejść do modelowania translacyjnego opartych na AI.
Wprowadzenie
Nowotwory pozostają główną przyczyną śmiertelności na całym świecie, a szacuje się, że do 2040 roku rocznie będzie diagnozowanych 28,4 miliona nowych przypadków1. Pomimo znaczących postępów terapeutycznych, w tym wprowadzenia leków celowanych molekularnie, inhibitorów punktów kontrolnych odpowiedzi immunologicznej, terapii komórkami T z chimerycznym receptorem antygenowym (CAR-T) oraz koniugatów przeciwciało-lek, większość pacjentów z zaawansowanymi nowotworami złośliwymi wykazuje oporność na leki lub nie odpowiada na wstępne leczenie, a ogólne wskaźniki przeżywalności pięcioletniej dla wielu guzów litych pozostają niezadowalające2. Rozwój leków przeciwnowotworowych wciąż utrudnia tzw. wąskie gardło translacyjne. Duża część preparatów onkologicznych o obiecującej aktywności przedklinicznej zawodzi podczas badań klinicznych, co wskazuje na to, że wiele systemów eksperymentalnych wciąż nie odzwierciedla biologicznych uwarunkowań odpowiedzi pacjenta3,4. Powszechnie uznaje się potrzebę stosowania przedklinicznych systemów in vivo, które wiernie odtwarzają właściwości genomiczne, histopatologiczne i farmakologiczne nowotworów ludzkich. Modele ksenoprzeszczepów pozostają kluczowe w rozwiązywaniu tego problemu, ponieważ stanowią one najlepiej uznany pomost in vivo pomiędzy kulturą komórkową a praktyką kliniczną. Modele ksenoprzeszczepów tworzy się poprzez implantację ludzkiego materiału nowotworowego do immunologicznie przystającego gospodarza, najczęściej myszy z niedoborem odporności5. W dziedzinie tej dominują dwie główne formy: ksenoprzeszczepy pochodzące z linii komórkowych (CDX), generowane z ustalonych linii komórek nowotworowych, oraz ksenoprzeszczepy pochodzące od pacjentów (PDX), powstające poprzez bezpośrednie przeszczepienie świeżego materiału chirurgicznego lub bioptacyjnego, bez pośredniego etapu długoterminowej hodowli6,7. Warianty ortotopowe, rozsiane, podtorebkowe nerkowe, pochodzące z organoidów oraz humanizowane rozszerzają te ramy poprzez zmianę miejsca implantacji, materiału źródłowego lub statusu immunologicznego gospodarza8,9,10.
Nowotwory ludzkie są dynamicznymi układami kształtowanymi przez mutacje somatyczne, przeprogramowanie epigenetyczne, heterogenność wewnątrzguza oraz ciągłe interakcje koewolucyjne między populacjami komórek nowotworowych i zrębowych6,11. Chociaż linie komórkowe raka były historycznie uważane za mniej skuteczne predyktory odpowiedzi klinicznej3,4, pogląd ten został z czasem doprecyzowany10,12,13. Mimo że linie komórkowe wykazują dryft genomowy, utratę komponentów zrębowych i immunologicznych oraz rozbieżność względem heterogenności guza macierzystego, znaczna część ich pozornego braku wartości predykcyjnej wynika z projektu badań (małe panele, niedopasowana histologia oraz brak stratyfikacji molekularnej), a nie z immanentnych wad modelu14. Modele PDX częściowo rozwiązują główne ograniczenia modeli linii komórkowych (dryft genomowy, utrata heterogenności i brak zrębu) poprzez szczepienie świeżych fragmentów guzów pacjentów bezpośrednio do myszy z niedoborem odporności, co pozwala zachować histologię dawcy, architekturę genomową oraz aspekty organizacji zrębu w pierwszych pasażach; warianty ortotopowe, rozsiane, podtorebkowe nerkowe, pochodzące z organoidów oraz humanizowane rozszerzają te ramy o różne miejsca implantacji, materiały źródłowe i status immunologiczny gospodarza10. Badania PDX w skali populacyjnej odzwierciedlają odpowiedzi kliniczne na poziomie danej wskazania12, a dopasowane pary pacjent–PDX wykazują ~87% zgodności z indywidualnymi wynikami pacjentów, choć specyficzność w tej analizie wyniosła 70%13.
Zakres modeli ksenoprzeszczepowych rozciąga się dalej, obejmując platformy humanizowane, w których guzy PDX są hodowane u gospodarzy zrekonstytuowanych elementami ludzkiego układu odpornościowego9, obok modeli ortotopowych w anatomicznie odpowiadających miejscach pierwotnych oraz wariantów przerzutowych14. Jednocześnie niniejszy przegląd koncentruje się na mysich modelach ksenoprzeszczepowych; systemy komplementarne, takie jak testy na błonie chorioallantoicznej (CAM) kurczaka15, ksenoprzeszczepy w embrionach zebrafish16 oraz organoidy pochodzące od pacjentów17, mogą oferować ortogonalne zalety w zakresie szybkości, przepustowości i skalowalności, sytuując je w ramach zintegrowanych wieloplatformowych procedur przedklinicznych. Międzynarodowa infrastruktura biobankowania PDX znacznie rozwinęła się w ciągu ostatniej dekady18, a ustanowiono formalne ramy standaryzacji – standard Minimalnych Informacji o Modelu PDX (PDX-MI)19 oraz Minimalne Informacje dla Standaryzacji Myszy Humanizowanych (MISHUM)20; jednak niepełne wdrażanie ich w publikowanej literaturze pozostaje strukturalną barierą dla translacji klinicznej. Formalne ramy standaryzacji zostały ustanowione, aby ujednolicić raportowanie adnotacji klinicznych, metodologię wszczepiania, historię pasaży, zapewnienie jakości oraz parametry rekonstytucji odpornościowej. Mimo tych postępów żadna pojedyncza platforma ksenoprzeszczepowa nie jest wystarczająca dla każdego pytania translacyjnego. Modele PDX są z natury powolne, wymagają dużych zasobów i są obarczone zmienną skutecznością przyjęcia przeszczepu, podczas gdy humanizowane systemy ksenoprzeszczepowe, choć częściowo rozwiązują problem deficytu immunologicznego konwencjonalnych gospodarzy PDX, wprowadzają dodatkową zmienność poprzez niepełną rekonstytucję odpornościową9, heterogeniczność między dawcami21 oraz ograniczenia wynikające z choroby przeszczep przeciwko gospodarzowi22. Co więcej, standaryzacja pozostaje nierównomierna: protokoły ustanawiania modeli, konwencje numerowania pasaży, metody uwierzytelniania, kwantyfikacja wzrostu guza, monitorowanie immunologiczne, definicje punktów końcowych oraz ogólna jakość raportowania różnią się znacznie pomiędzy instytucjami i publikacjami23. Niniejszy przegląd analizuje modele ksenoprzeszczepowe przez pryzmat standaryzacji oraz praktycznego doboru modelu. Pozycjonując CDX jako podstawowe, wczesne narzędzie pracy in vivo, a PDX jako platformę o wyższej wierności, lecz bardziej zasobochłonną, syntetyzujemy aktualne dowody na temat taksonomii modeli, biologii szczepów gospodarzy, determinantów wszczepiania, biobankowania, stabilności genomicznej, ilościowego projektu badań oraz ram raportowania, a także kontekstualizujemy systemy ksenoprzeszczepowe obok modeli syngeneicznych, organoidów, genetycznie modyfikowanych modeli mysich (GEMM) i szybkich testów alternatywnych. Głównym argumentem jest to, że standaryzację należy rozumieć nie jako próbę konsolidacji badań w ramach jednej klasy modeli, lecz jako ramy definiujące sposób generowania, walidacji, raportowania i racjonalnego pozycjonowania każdej platformy w zintegrowanym procesie przedklinicznym (Rysunek 1).
Przegląd i perspektywa
Rozwój historyczny i taksonomia
Demonstracja raka skóry indukowanego kancerogenami u królików przeprowadzona przez Yamigawę i Ichikawę w 1915 roku ustanowiła koncepcję eksperymentalnego modelu nowotworowego24. Modele syngeneiczne pojawiły się w połowie XX wieku wraz z podstawowymi liniami, takimi jak rakowiak płuca Lewis, rakowiak gruczołu mlekowego 4T1, rakowiak jelita grubego CT26 oraz czerniak B16, które zachowują użyteczność w obecnej erze immuno-onkologii25. Odkrycie przez Flanagana w 1966 roku atymicznej myszy nagi dostarczyło pierwszego gospodarza z niedoborem odporności zdolnego do tolerowania tkanek ksenogenicznych26, co umożliwiło Rygaardowi i Povlsenowi przeprowadzenie w 1969 roku pierwszego udanego przeszczepu ludzkiego guza jelita grubego27. Następczy rozwój szczepów poprzez tła SCID, NOD/SCID oraz brak wspólnego łańcucha gamma receptora IL-2 (Il2rg) sukcesywnie eliminował bariery w postaci limfocytów T, limfocytów B i komórek NK28, ustanawiając współczesną taksonomię: CDX, PDX, warianty ortotopowe i rozsiane, ksenoprzeszczepy pochodzące z organoidów oraz ksenoprzeszczepy humanizowane6.
Panel NCI-60, ustanowiony pod koniec lat 80. XX wieku jako badanie in vitro 60 linii komórkowych ludzkich nowotworów obejmujące dziewięć typów tkanek, zinstytucjonalizował systematyczną ocenę leków i stał się podstawą przedklinicznej farmakologii opartej na liniach komórkowych przez kilka dziesięcioleci, przy czym zidentyfikowane związki aktywności przechodziły do badań podskórnych CDX u myszy nago beztymusowych z wykorzystaniem standaryzowanych punktów końcowych, takich jak %T/C (procent objętości guza w grupie badawczej w stosunku do grupy kontrolnej), opóźnienie wzrostu guza oraz zgony związane z podaniem leku, aby umożliwić porównywanie wyników między badaniami29. Modele CDX pozostają najszerzej stosowaną i najbardziej efektywną kosztowo platformą do przedklinicznych testów skuteczności; badania podskórne CDX osiągają odczyt wyników w ciągu 5–7 tygodni (Rysunek 1) i odgrywają centralną rolę w procesie opracowywania leków w zakresie optymalizacji dawki, charakterystyki farmakokinetycznej/farmakodynamicznej (PK/PD), kwantyfikacji hamowania wzrostu guza (TGI) oraz oceny przeżywalności jako punktu końcowego (Rysunek 2).
Z praktycznego punktu widzenia taksonomia modeli ksenoprzeszczepowych jest definiowana przez trzy zmienne: źródło guza, miejsce implantacji oraz tło gospodarza. Modele CDX opierają się na ustalonych liniach komórkowych nowotworów o stabilnej podaży i szerokiej adnotacji molekularnej i farmakologicznej, dostępnej w zasobach takich jak Cancer Cell Line Encyclopedia30. Modele PDX wykorzystują świeżo wszczepione fragmenty guzów pacjentów, aby zachować histologię dawcy, architekturę genomową oraz heterogenność wewnątrznowotworową, choć ludzkie stroma jest stopniowo zastępowana przez stroma mysią w miarę kolejnych pasażowań10. Miejsce implantacji określa kontekst biologiczny: wszczepienie podskórne priorytetyzuje prostotę techniczną, powtarzalność oraz seryjny pomiar suwmiarką; implantacja ortotopowa przywraca specyficzne dla organu mikrośrodowisko i wspiera klinicznie istotne wzorce spontanicznych przerzutów; wtryskiwanie do naczyń krwionośnych (do żyły ogonowej, wewnątrzsercowe, wewnątrzśledzionowe) generuje eksperymentalne modele przerzutowe, które badają późniejsze etapy kaskady przerzutniczej, takie jak ekstrawasacja i kolonizacja14; natomiast implantacja podtorebkowa nerki wykorzystuje silnie unaczynione miejsce, co znacznie poprawia wskaźniki przyjęcia się guzów trudnych do wszczepienia31.
CDX i PDX: Komplementarne role w onkologii przedklinicznej
Gromadzone dowody wskazały na ograniczoną zdolność modeli CDX do przewidywania klinicznej odpowiedzi na leki, co skłoniło do ponownej oceny metodologii przedklinicznej onkologii. Ustanowione linie komórkowe raka, utrzymywane bezterminowo w hodowli sztucznej, ulegają progresywnej selekcji klonalnej, dywergencji transkrypcyjnej oraz utracie kontekstu stromalnego i immunologicznego w stosunku do guzów pierwotnych, z których zostały wyprowadzone. Modele PDX zachowują histologię dawcy, architekturę genomiczną oraz heterogenność wewnątrznowotworową w kolejnych pasażach10. W 2006 roku platforma PDX raka trzustki dostarczyła pierwszego dowodu na przewidywanie odpowiedzi na leki w oparciu o biomarkery32. W 2011 roku platforma „xenopatient” zgromadziła 85 molekularnie adnotowanych modeli PDX raka jelita grubego, odtworzyła kliniczne wzorce odpowiedzi na cetuksymab i zidentyfikowała amplifikację HER2 jako celowany mechanizm oporności – co zostało następnie potwierdzone w badaniach HERACLES33,34. Przełomowe badanie z 2015 roku zastosowało projekt badania klinicznego PDX (PCT) typu 1 × 1 × 1 na ok. 1 000 modelach i 62 schematach leczenia, odtwarzając powiązania między genotypem a odpowiedzią oraz wskazując nowe mechanizmy oporności, co ustanowiło farmakologię w skali PDX jako wiarygodny pomost do projektowania badań klinicznych12.
Pomimo tych postępów, modele CDX pozostają złotym standardem wczesnej fazy przedklinicznej oceny in vivo potencjalnych terapeutyków, ponieważ są szybkie, eksperymentalnie przejrzyste i efektywne kosztowo: uwierzytelnione linie komórkowe mogą być modyfikowane genetycznie, namnażane na szeroką skalę i wszczepiane dużym, dopasowanym kohortom z porównywalnie niskim szumem biologicznym, co umożliwia interpretowalny odczyt skuteczności, farmakodynamiki i tolerancji w ramach ram czasowych niepraktycznych dla systemów PDX lub humanizowanych. Kanoniczne linie, takie jak HCT116, A549 i U8735, opierają się na dziesięcioleciach literatury mechanistycznej i publicznych zasobach omicznych, a warianty CDX ortotopowe lub rozsiane rozszerzają ich użyteczność o tropizm tkankowy, kolonizację przerzutową i terapię celowaną w konkretne miejsce, bez utraty zalet operacyjnych10. W przypadku pytań badawczych opartych na hipotezach dotyczących zależności od celu, optymalizacji schematu dawkowania, porównawczej skuteczności lub dowodu mechanizmu, CDX pozostaje odpowiednią pierwszą platformą in vivo. Jego uznane ograniczenia, w tym dryf klonalny, brak ludzkiego zrębu i komponentów odpornościowych oraz ograniczona wartość predykcyjna na poziomie populacyjnym, definiują jego właściwe zastosowanie jako platformy do szybkiej selekcji i badania mechanizmów, a nie jako substytutu wyników klinicznych.
Ustanowienie modelu PDX: Źródła nowotworów, implantacja i biologia przyrostu
Żywy materiał nowotworowy pozyskuje się najczęściej z resekcji chirurgicznej, a także z biopsji gruboigłowej, płynów z wysięków nowotworowych lub aspiratów szpiku w przypadku nowotworów hematologicznych31. Radykalna resekcja dostarcza większych objętości żywej tkanki o zachowanej architekturze; biopsje pozwalają jednak na uzyskanie odpowiedniego materiału w przypadku przerzutów lub zmian nieoperacyjnych31,36. Tkankę należy transportować w zimnym medium buforowym i przetworzyć w ciągu ~24 h; niedokrwienie na ciepło trwające powyżej 2 h oraz odstępy ex vivo przekraczające 8–10 h stopniowo zmniejszają wydajność engraftmentu. Obowiązkowe jest uzyskanie zgody komisji bioetycznej oraz pisemnej świadomej zgody pacjenta.
Materiał guza poddaje się obróbce do fragmentów o objętości 1–3 mm3, aby zachować architekturę macierzy zewnątrzkomórkowej i heterogeniczność przestrzenną, lub dysocjuje do zawiesin jednokomórkowych w celu sortowania i inokulacji z dawką znormalizowaną. Często stosuje się współimplantację Matrigelu w celu wsparcia wczesnej waskularyzacji; jego efekt jest zmienny i powinien zostać odnotowany, ponieważ zmienia on kontekst mikrośrodowiska31. Suplementacja hormonalna, za pomocą granulek estradiolu w przypadku guzów piersi ER-dodatnich oraz dihydrotestosteronu dla guzów prostaty, poprawia przyjmowanie nowotworów zależnych od hormonów. Implantacja podskórna w okolicy grzbietowej boku umożliwia monitorowanie za pomocą suwmiarki i jest prosta operacyjnie; implantacja ortotopowa przywraca specyficzne dla narządu mikrośrodowisko; natomiast implantacja pod torebkę nerki maksymalizuje odsetek przyjęcia w przypadku trudnych do wszczepienia typów guzów, w tym niedrobnokomórkowego raka płuca (NSCLC) i raka prostaty31.
Przyjęcie przeszczepu jest silnie zależne od rodzaju guza. Guzy agresywne, słabo zróżnicowane, oporne na leczenie lub przerzutowe przyjmują się łatwiej niż guzy indolentne lub dobrze zróżnicowane; raki piersi potrójnie ujemne, gruczolaki przewodowe trzustki, wysokostopniowe surowicze raki jajnika oraz ostre białaczki wykazują konsekwentnie wyższą skuteczność przyjęcia niż luminalne guzy piersi typu A i inne jednostki o niskiej zapadalności, a sam sukces przeszczepienia jest prognostykiem złego rokowania pacjentów w przypadku raka piersi potrójnie ujemnego oraz nowotworów dróg żółciowych i trzustki10. Drugim głównym czynnikiem determinującym jest szczep gospodarza: wysoce immunodeficyjne szczepy, takie jak NSG i NOG, zastąpiły myszy nude i SCID w trudnych przypadkach lub w badaniach hematologicznych ze względu na ich szerszą tolerancję9.
Zgodnie z konwencją, pierwotne wszczepienie pacjenta oznacza się jako F0 (lub P0), a kolejne pasażowania jako F1, F2 i następne. Kinetyka wzrostu zazwyczaj stabilizuje się po wczesnych pasażach, a większość programów przeznacza formalne badania farmakologiczne dla materiału F2 lub F3 w celu zmniejszenia zmienności między myszami, choć nie istnieje uniwersalny próg; większość programów definiuje wczesny pasaż jako F2–F4, przy czym materiał powyżej F5 niesie ze sobą rosnące ryzyko rozrostu subklonalnego i dryfu transkrypcyjnego w tempie zależnym od typu guza. Ponieważ numer pasażu wpływa zarówno na powtarzalność, jak i dryf biologiczny, historia pasażowania, szczep gospodarza, miejsce wszczepienia oraz pochodzenie powinny być zapisywane dla każdego badania zgodnie ze standardem raportowania PDX-MI19.
Immunodeficjentne szczepy gospodarzy
Myszy atypiczne nude (Foxn1nu) nie posiadają dojrzałych limfocytów T, ale zachowują limfocyty B, komórki NK oraz odporność nieswoistą. Myszy CB-17 scid, posiadające mutację utraty funkcji w genie Prkdc, nie posiadają limfocytów T i B z powodu wadliwej rekombinacji V(D)J, ale zachowują komórki NK i z wiekiem wykazują obecność tzw. "przeciekających" limfocytów9. Mutacja scid na tle NOD/ShiLtJ (NOD/SCID) wprowadziła dodatkowe defekty odporności nieswoistej, w tym niedobór dopełniacza, upośledzenie funkcji makrofagów i komórek dendrytycznych oraz zmniejszoną aktywność komórek NK. Dodanie mutacji null w wspólnej gamie łańcucha receptora IL-2 (Il2rg), niezbędnej dla sygnalizacji IL-2, IL-4, IL-7, IL-9, IL-15 i IL-21, eliminuje funkcjonalne komórki NK i upośledza resztkową odporność nieswoistą, co daje szczepy NSG (NOD.Cg-Prkdcscid Il2rgtm1wjI/SzJ) oraz NOG (NODShi.Cg-Prkdcscid Il2rgtm1sug); NSG posiada całkowity knockout Il2rg, podczas gdy NOG wykazuje ekspresję skróconego receptora, który wiąże ligand, ale nie może przekazywać sygnału. Myszy NSG i NOG umożliwiają engraftment nowotworów litych i hematologicznych i są domyślnymi gospodarzami w badaniach PDX. Szczep NRG (NOD.Cg-Rag1tm1Mom Il2rgtm1wjI) zastępuje Prkdc knockoutem Rag1, co zachowuje zdolność do naprawy DNA. Szczep BRG (BALB/c-Rag2null Il2rgnull) stanowi alternatywę na tle BALB/c, odporną na promieniowanie, która pozwala uniknąć specyficznego dla NOD allelu Sirpa. Szczur SRG (podwójny knockout Rag2/Il2rg u szczura Sprague-Dawley) umożliwia hodowlę linii komórkowych i PDX, które słabo rosną w NSG, w tym raka prostaty VCaP z wynikiem przyjęcia >90%, oraz pozwala na seryjne pobieranie krwi i tkanek, operacje ortotopowe i badanie fizjologicznie istotnej farmakokinetyki37.
Humanizowane systemy ksenoprzeszczepowe polegają na rekonstrukcji ludzkich komponentów odpornościowych u myszy z ciężkim niedoborem odporności przed lub równocześnie z wszczepieniem guza38. Trzy główne formaty to hu-PBMC (wstrzyknięcie mononuklearnych komórek krwi obwodowej osób dorosłych), hu-CD34 (dożylne podanie ludzkich CD34⁺ hematopoetycznych komórek macierzystych (HSCs) po subletalnym napromieniowaniu lub kondycjonowaniu busulfanem) oraz BLT (jednoczesna implantacja płodowej wątroby i grasicy wraz z komórkami CD34⁺, co pozwala na najpełniejszy rozwój tkanki limfatycznej). Modele te umożliwiają ocenę inhibitorów punktów kontrolnych układu odpornościowego, przeciwciał bispecyficznych, terapii komórkowych oraz mechanizmów oporności pośredniczonej immunologicznie38. W projektach autologicznych lub dopasowanych pod kątem HLA guz i komponenty odpornościowe pochodzą od tego samego dawcy. Efektywność rekonstrukcji zależy od źródła dawcy, szczepu gospodarza, schematu kondycjonowania i czasu trwania badania; komponenty mieloidalne, stropowe (stromalne) i limfatyczne są zazwyczaj niepełne lub niezrównoważone: modele hu-PBMC wykazują niedobór komórek NK, limfocytów B i linii mieloidalnych mimo silnego przyjmowania limfocytów T; modele hu-CD34 wspierają produkcję wieloliniową, ale niedostatecznie reprezentują konwencjonalne komórki dendrytyczne i makrofagi tkankowe; natomiast modele BLT osiągają lepszą edukację limfocytów T w grasicy, lecz pozostają nieoptymalne pod kątem rekonstrukcji linii mieloidalnej. Myszy hu-PBMC osiągają szybką rekonstrukcję limfocytów T, ale w ciągu od trzech do 6 tygodni rozwijają ksenogenną chorobę przeszczep przeciw gospodarzowi (GvHD) poprzez rozpoznawanie mysiego MHC przez ludzkie limfocyty T; warianty NSG-MHC-I/II-null częściowo łagodzą to zjawisko22. Myszy hu-CD34 pozwalają na dłuższe badania, ale wymagają dłuższego czasu rekonstrukcji i nie odtwarzają w pełni biologii ludzkich komórek mieloidalnych, NK ani komórek stropowych.
Modele ortotopowe i przerzutowe
Ksenoprzeszczepy podskórne, mimo że stanowią domyślną platformę prekliniczną pierwszego rzutu, umieszczają tkankę nowotworu ludzkiego w kontekście biologicznym, który różni się od naturalnego mikrośrodowiska narządu. Skład macierzy zewnątrzkomórkowej, architektura naczyniowa, ciśnienie tlenu, populacje stromalne oraz sygnalizacja parakrynna w przestrzeni podskórnej grzbietu różnią się od tych występujących w piersi, trzustce, otrzewnej, jelicie grubym lub płucach10. Implantacja ortotopowa przywraca specyficzne dla danego narządu mikrośrodowisko i zazwyczaj sprzyja zwiększonej unaczynieniu oraz spontanicznym przerzutom, co dokładniej odzwierciedla naturalny przebieg nowotworu, choć odbywa się to kosztem większej złożoności chirurgicznej i konieczności monitorowania obrazowego39.
Techniki ortotopowego PDX zostały rozszerzone na różne typy nowotworów. Model PDX raka piersi jest ustanawiany w tkance tłuszczowej gruczołu piersiowego, co sprzyja spontanicznej przerzutowości do płuc i węzłów chłonnych40. Model PDX raka jelita grubego implantowany do ściany kątnicy lub okrężnicy odwzorowuje lokalną inwazję oraz przerzuty do wątroby39. Model PDX raka jajnika wprowadzany drogą dostępu wewnątrzbrzusznجego odtwarza rozsiew otrzewnowny charakterystyczny dla wysokostopniowego raka surowiczego41. Model PDX gruczolakoraka przewodowego trzustki implantowany do trzustki odtwarza desmoplastyczną reakcję zrębu oraz wczesną inwazję miejscową32. Stosuje się dwie główne strategie modelowania przerzutów: eksperymentalne modele przerzutowania, w których komórki nowotworowe są wprowadzane do naczyń krwionośnych w celu oceny późniejszych etapów kaskady przerzutniczej, takich jak ekstrawazacja i kolonizacja; oraz modele spontanicznego przerzutowania, w których ortotopowe guzy pierwotne rozsiewają się poprzez pełną kaskadę14.
Standaryzacja, uwierzytelnianie i projekt badania
Eksperymenty z ksenoprzeszczepami definiują cztery ramy raportowania i projektowania badań. PDX-MI określa minimalne metadane dla modeli pochodzących od pacjentów, w tym informacje o dawcy, źródło nowotworu, szczep gospodarza, miejsce implantacji, numer pasażu, wskaźnik przyjęcia przeszczepu oraz charakterystykę histologiczną i molekularną; uwierzytelnienie za pomocą krótkich tandemowych powtórzeń (STR) jest zawarte w kontroli jakości modelu w celu potwierdzenia pochodzenia i wykrycia kontaminacji krzyżowej19. MISHUM rozszerza analogiczne wymagania na systemy zhumanizowane, obejmując źródło ludzkich hematopoetycznych komórek macierzystych lub PBMC, schemat przygotowania, szczep gospodarza, wydajność rekonstytucji zweryfikowaną za pomocą cytometrii przepływowej oraz monitorowanie GvHD20. OBSERVE (Oncology Best-practices: Signs, Endpoints and Refinements for In Vivo Experiments), konsensus EurOPDX/INFRAFRONTIER z 2024 roku, dostarcza wytycznych dotyczących udoskonalenia i dobrostanu zwierząt specjalnie dla gryzoni w modelach nowotworowych, uzupełniając szersze ramy PREPARE i ARRIVE 2.023,42. Zalecenia konsensusu NCI PDXNet z 2024 roku dotyczą projektu badania, analizy wzrostu guza i kategoryzacji odpowiedzi w eksperymentach farmakologicznych PDX, a także zapewniają publiczny zestaw narzędzi analitycznych43.
Ramy te nie są w pełni zharmonizowane, a nowoczesne badanie ksenoprzeszczepu może wymagać jednoczesnego spełnienia wytycznych PDX-MI, MISHUM, OBSERVE oraz rekomendacji PDXNet. W praktyce często pomija się informacje o numerze pasażu, formule pomiaru guza, źródle gospodarza, metodzie uwierzytelnienia oraz wcześniej określonej strategii analitycznej43. Niezaspokojoną potrzebą pozostaje ujednolicony schemat raportowania obejmujący systemy CDX, PDX i zhumanizowane. Publicznie dostępne repozytoria PDX obejmują NCI Patient-Derived Models Repository (PDMR), EurOPDX Data Portal oraz PDX Finder, które wspólnie katalogują kilka tysięcy modeli wraz z powiązanymi danymi genomicznymi, histologicznymi i farmakologicznymi, aby wspomóc identyfikację i pozyskiwanie modeli18. Badania CDX wymagają rutynowego profilowania STR i kontroli zanieczyszczeń, podczas gdy badania PDX wymagają powiązania z przypadkiem dawcy, molekularnego potwierdzenia cech sterujących (driver features), jeśli jest to możliwe, oraz dokumentacji zawartości komórek ludzkich w stosunku do mysich w kolejnych pasażach19. Szacowanie objętości guza pozostaje niespójne między badaniami, gdyż stosuje się różne formuły bez ich wyraźnego ujawnienia, co zmienia szacunki efektu leczenia i komplikuje porównania między badaniami; zatem standaryzacja wskaźników wzrostu, progów odpowiedzi, reguł cenzurowania i formatów wizualizacji jest tak samo ważna, jak standaryzacja metod przeszczepiania43.
Wierność genomiczna, ewolucja klonalna i interpretacja translacyjna
Modele PDX zachowują mutacje sterujące i krajobraz liczby kopii w wczesnych pasażach wierniej niż modele CDX, co wspiera ich zastosowanie w opracowywaniu biomarkerów, badaniach nad opornością oraz modelowaniu koklinicznym44. Niemniej jednak podczas pasażowania dochodzi do ewolucji guza specyficznej dla myszy, zastępowania zrębu oraz reprogramowania epigenetycznego, a pewne widoczne rozbieżności wynikają z subklonalnego próbkowania przestrzennie heterogennych guzów, a nie z dryfu indukowanego modelem45. Wczesne pasażowania wykazują silniejszą zgodność biologiczną niż materiał poddany licznym pasażom, choć oba są kształtowane przez presję selekcyjną miejsca implantacji, odporność gospodarza oraz wcześniejsze leczenie45. Z tego wynikają dwie praktyczne zasady: modele PDX powinny być charakteryzowane podłużnie, a nie uznawane za statyczne, oraz zaleca się integrację sekwencjonowania, histopatologii, profilowania transkrypcyjnego i odpowiedzi na leczenie w sytuacjach, gdy wybór modelu niesie ze sobą istotne konsekwencje w dalszych etapach badań44.
Humanizowane modele mysie i zastosowania w immunoonkologii
Systemy humanizowane, w których zrekonstytuowano ludzkie PBMC, CD34⁺ HSC lub tkankę BLT, rozwiązują problem braku możliwości modelowania nienaruszonego ludzkiego mikrośrodowiska odpornościowego w konwencjonalnych gospodarzach PDX. Modele hu-PBMC pozwalają na szybką rekonstytucję limfocytów T, lecz są ograniczone przez ksenogeniczną GvHD w ciągu trzech do sześciu tygodni; modele hu-CD34 wymagają 8–16 tygodni na rekonstytucję wieloliniową, ale umożliwiają prowadzenie dłuższych badań9. Wprowadzenie ludzkich transgenów cytokin dodatkowo poprawiło rekonstytucję specyficznych linii odpornościowych. Myszy NSG-SGM3 (transgeniczne dla ludzkich IL-3, GM-CSF i SCF) wspierają rozwój komórek mieloidalnych i mastocytów46. Myszy MISTRG (humanizowane dla M-CSF, IL-3, GM-CSF, SIRPα i trombopoetyny) oraz myszy MISTRG6 (dodatkowo humanizowane dla IL-6) na tle Rag2⁻/⁻ Il2rg⁻/⁻ zapewniają najbardziej kompleksową dostępną obecnie rekonstytucję ludzkich komórek mieloidalnych, komórek NK i makrofagów tkankowych oraz wspierają engraftment dorosłych hematopoetycznych komórek macierzystych i progenitorowych pochodzących ze szpiku kostnego, których inne szczepy nie są w stanie przyjąć47. Myszy NOG-EXL (transgeniczne dla ludzkich IL-3 i GM-CSF na tle NOG) wspierają rekonstytucję komórek mieloidalnych i mastocytów przy niższych poziomach cytokin niż NSG-SGM3, co przekłada się na poprawę przeżywalności długoterminowej i mniej nasilony zespół aktywacji makrofagów, dzięki czemu są one lepiej dostosowane do rozszerzonych badań nad humanizacją i nowotworami. Myszy humanizowane, w których wszczepiono ludzkie limfocyty T, umożliwiają modelowanie zespołu uwalniania cytokin (CRS), co pozwala na przedkliniczną charakterystykę profilu bezpieczeństwa bispecyficznych przeciwciał angażujących limfocyty T, przeciwciał celujących w CD3 oraz powiązanych z nimi biologicznych leków aktywujących limfocyty T. Żaden pojedynczy szczep nie jest uniwersalnie lepszy; wybór zależy od interesującej linii odpornościowej oraz czasu trwania badania.
Konfiguracją o najwyższej wierności jest autologiczny humanizowany model PDX, w którym wspólnie szczepione są dopasowane do pacjenta komórki krwiotwórcze i tkanka nowotworowa, co eliminuje niedopasowanie MHC pomiędzy przedziałem odpornościowym a nowotworowym47. Chiorazzi i współpracownicy wykazali w 2023 roku, że autologiczne modele MISTRG6 PDX generują ludzkie populacje odpornościowe wrodzone i adaptacyjne, które infiltrują mikrośrodowisko guza, odtwarzają programy aktywacji i wyczerpania w komórkach T CD8⁺ oraz wytwarzają zależną od VEGF-A pro-nowotworową sygnaturę mieloidalną, której zahamowanie znosi wzmocniony wzrost guza, co potwierdza użyteczność tej konfiguracji jako platformy do oceny immunoterapii47. Phoon i współpracownicy rozszerzyli to podejście na czerniaka, wykazując, że autologiczne modele PBMC-humanized PDX oddają zmienność międzypacjentową w odpowiedzi na blokadę punktów kontrolnych oraz zmodyfikowane cytokiny IL-248,49. Równoległe podejście autologiczne, polegające na adoptywnym transferze limfocytów naciekających guz (TILs) pochodzących od pacjenta i namnożonych ex vivo do myszy z dopasowanymi guzami PDX, było stosowane do modelowania skuteczności terapii TIL w czerniaku i innych guzach litych50. Interpretacja badań nad immunoterapią w systemach humanizowanych wymaga jednak ostrożności: kilka przeciwciał skierowanych przeciwko punktom kontrolnym odpowiedzi immunologicznej (np. anty-CTLA4, anty-PD1) wykazuje ograniczoną reaktywność krzyżową zależną od gatunku, funkcja komórek dendrytycznych i prezentacja antygenów pozostają niepełne w większości szczepów humanizowanych, a struktury takie jak trzeciorzędowe organy limfoidalne i w pełni funkcjonalne ośrodki rozmnażania są rzadko rekonstruowane51.
Terapia komórkami CAR-T i modele ksenoprzeszczepowe
Terapia komórkami CAR-T posiada wiele zgód regulacyjnych w leczeniu nowotworów hematologicznych, a ocena ksenoprzeszczepów u myszy z niedoborem odporności z guzami CDX lub PDX stanowi standardową platformę przedkliniczną dla ludzkich produktów CAR-T przed translacją kliniczną52. Deficyt immunologiczny gospodarzy klasy NSG wyklucza z systemu eksperymentalnego aktywację makrofagów, krzyżową prezentację antygenów przez komórki dendrytyczne oraz supresję zapośredniczoną przez regulatorowe komórki T, a mysie ksenoprzeszczepy nie pozwoliły na przewidzenie systemowych toksyczności indukowanych przez cytokiny, zaobserwowanych później u pacjentów52. Systematyczny przegląd i metaanaliza z 2025 roku obejmująca 422 badania kliniczne i 3 157 badań przedklinicznych wykazały, że sygnały skuteczności przedklinicznej w modelach ksenoprzeszczepów CAR-T są w dużej mierze homogeniczne, niezależne od antygenu i nie pozwalają rozróżnić konstruktów CAR, które następnie odnoszą sukces lub ponoszą porażkę w badaniach klinicznych53. Fløe i współpracownicy udokumentowali w 2025 roku, że różnice gatunkowe w sygnalizacji cytokin, gęstości antygenów, repertuarze receptorów komórek T oraz w interakcjach między guzem a układem odpornościowym ograniczają potencjał translacyjny danych z ksenoprzeszczepów CAR-T, a modele syngeneiczne są stosowane w ok. 4% opublikowanych przedklinicznich badań CAR-T52,53. Zespół uwalniania cytokin (CRS) oraz zespół neurotoksyczności związany z efektorowymi komórkami odpornościowymi (ICANS) nie są odtwarzane w standardowych ksenoprzeszczepach NSG. Badania mechanistyczne u gospodarzy NSG-SGM3 wskazały, że CRS jest napędzany głównie przez IL-1 i IL-6 pochodzenia monocytarnego, przy czym IL-1 i IL-6 są w różny sposób wymagane dla CRS w porównaniu do neurotoksyczności. Ponadto neutralizacja GM-CSF redukuje CRS i neurozapalenie, zachowując jednocześnie przeciwnowotworową aktywność CAR-T. Ścieżki te są uchwycone w konfiguracjach cytokiny-transgenicznych i autologicznych humanizowanych, a nie w konwencjonalnych ksenoprzeszczepach opartych na NSG. Syngeneiczne mysie modele CAR-T stanowią komplementarną platformę, która umożliwia ocenę interakcji CAR-T z nienaruszonym układem odpornościowym gospodarza, kosztem opierania się na biologii celu mysiego, a nie ludzkiego. Ocena oparta na ksenoprzeszczepach wsparła translację kliniczną terapii CAR-T skierowanej przeciwko CD19, gdzie aktywność przeciwko modelom B-ALL i B-NHL u gospodarzy NSG odpowiadała trwały odpowiedzi klinicznym54.
Opracowywanie leków, odkrywanie biomarkerów i translacja oparta na AI
Modele PDX mają na celu przewidywanie odpowiedzi klinicznej na leki z większą dokładnością niż modele CDX lub GEMMs. Badanie kliniczne PDX (PCT) przeprowadzone w 2015 roku przez Novartis przez Gao i współpracowników wykorzystało projekt 1 × 1 × 1 w odniesieniu do ok. 1000 modeli PDX, 62 schematów leczenia i sześciu wskazań, co pozwoliło zidentyfikować powiązania między genotypem a odpowiedzią oraz ustalone i nowe mechanizmy oporności12. Rozszerzenie koncepcji 1 × 1 × 1 na poziom indywidualnego pacjenta jest ograniczone przez 3–6 miesięczny czas opracowania modelu, co zazwyczaj sprawia, że decyzje oparte na PDX zapadają w ramach terapii drugiej lub trzeciej linii10. Badania PDX przyczyniły się do walidacji biomarkerów klinicznych, w tym mutacji KRAS jako predyktora oporności na leki anty-EGFR w raku jelita grubego, mutacji aktywujących EGFR oraz T790M przy wyborze inhibitorów kinazy tyrozynowej w NSCLC, amplifikacji HER2 w raku piersi i żołądka oraz oporności na platynę w raku jajnika10.
Duże zestawy danych dotyczących odpowiedzi leków w modelach PDX umożliwiły zastosowanie podejść uczenia maszynowego do przewidywania odpowiedzi na leczenie. Yang i współpracownicy opisali w 2025 roku TRANSPIRE-DRP — framework głębokiego uczenia wykorzystujący nienadzorowaną adaptację domeny do przekształcania transkrypomicznych danych PDX w przewidywania odpowiedzi na poziomie pacjenta, oceniany dla cetuksymabu, paklitakselu i gemcytabiny55. Tosca i współpracownicy opublikowali w 2024 roku framework modelowania translacyjnego, który allometrycznie skalował tempo wzrostu guzów PDX w celu przewidywania czasu podwojenia objętości guza oraz przeżycia wolnego od progresji w nieleczonych populacjach pacjentów w jedenastu typach nowotworów litych, przy czym 91% przewidywanych median czasu podwojenia objętości guza mieściło się w zakresie 1,5-krotności obserwacji klinicznych56. Pozostają nierozwiązane problemy: błąd selekcji biobanków w stronę guzów podatnych na szczepienie, ograniczona prospektywna walidacja kliniczna oraz brak zdefiniowanej ścieżki regulacyjnej dla przedklinicznych dowodów pochodzących z AI33,55.
Platformy ksenoprzeszczepowe odpowiadają na różne pytania translacyjne na różnych etapach rozwoju, zamiast konkurować o jedną rolę. Modele CDX pozostają kluczowe dla wczesnych prac nad mechanizmami i wysokoprzepustowych przesiewów; modele PDX zapewniają wierność genomiczną i heterogeniczność między pacjentami, niezbędną do walidacji biomarkerów i modelowania odpowiedzi klinicznej; konfiguracje humanizowane i autologicznie humanizowane pozwalają rozwiązać kwestie specyficzne dla immunoterapii, których nie można wyjaśnić za pomocą konwencjonalnych ksenoprzeszczepów; a platformy oparte na organoidach zwiększają przepustowość ex vivo w przypadku ograniczonej ilości tkanki; platformy te wspólnie umożliwiają przedkliniczną ocenę nowych, uznanych oraz alternatywnych metod terapii nowotworów57,58,59. Struktury AI i uczenia maszynowego, takie jak TRANSPIRE-DRP, oraz translacyjne modele PK/PD łączą obecnie dane o odpowiedzi leków w modelach PDX z przewidywaniami odpowiedzi na poziomie pacjenta, jednak ich użyteczność kliniczna zależy od jakości i standaryzacji adnotacji podstawowego modelu. Głównymi nierozstrzygniętymi kwestiami są trafność prognostyczna, powtarzalność raportowania, reprezentatywność biobanków oraz status regulacyjny dowodów przedklinicznych uzyskanych za pomocą AI. Postęp będzie zależał w mniejszym stopniu od wprowadzania nowych kategorii modeli, a w większym od zdyscyplinowanego wykorzystania istniejących, wspartego zharmonizowanymi metadanymi, podłużną oceną wierności oraz przejrzystą integracją międzyplatformową.
Wnioski
Modele ksenoprzeszczepów ewoluowały z prostych implantów podskórnych ustalonych linii komórkowych w wieloaspektowy system eksperymentalny obejmujący modele CDX i PDX, warianty ortotopowe i przerzutowe oraz humanizowane systemy z odtworzonym układem odpornościowym, w tym konfiguracje autologiczne. Ewolucja ta była napędzana przez stopniowe uznanie, że wierność biologii nowotworów ludzkich pod kątem krajobrazu genomicznego, heterogeniczności wewnątrzguźlowej oraz mikrośrodowiska guza jest głównym czynnikiem warunkującym wartość prognostyczną badań przedklinicznych.
Modele CDX pozostają kluczowe w onkologii przedklinicznej jako najszerzej stosowana i najbardziej efektywna kosztowo platforma in vivo do oceny leków we wczesnych fazach, dostarczając powtarzalnych i skalowalnych danych do optymalizacji dawkowania, charakterystyki PK/PD, oceny hamowania wzrostu guza oraz analizy punktów końcowych przeżywalności. Modele PDX zapewniają wierność niezbędną do odkrywania biomarkerów, projektowania badań współklinicznych oraz zastosowań farmakologicznych zależnych od zachowania genomowych i histologicznych cech dawcy. Hierarchia niedoborów odporności – od myszy nude i SCID, przez NSG, NOG, NRG i BRG, aż po pojawiającego się szczura SRG – odzwierciedla stopniowe udoskonalanie podatności na przyjmowanie przeszczepów. Konfiguracje humanizowane i autologiczne rozszerzają te platformy o ocenę inhibitorów punktów kontrolnych układu odpornościowego, przeciwciał bispecyficznych oraz terapii komórkami CAR-T, choć ograniczenia immunologiczne na poziomie gatunkowym nadal występują.
Poprawa translacji przedklinicznej wymaga rygorystycznego projektu badań oraz standaryzowanego raportowania. Rekomendacje konsensusowe PDX-MI, MISHUM, OBSERVE oraz NCI PDXNet dostarczają niezbędnych ram raportowania; konsekwentne wdrażanie ich przez badaczy, czasopisma i agencje finansujące pozostaje kluczowym czynnikiem wpływającym na ich znaczenie. Trajektoria nauki o ksenoprzeszczepach zbiega się w czterech priorytetach: standaryzacja raportowania we wszystkich platformach, racjonalny wybór platformy dostosowany do pytania translacyjnego, ciągłe udoskonalanie inżynierii modeli humanizowanych oraz oparte na AI ramy translacyjne, które przekładają wielkoskalowe zbiory danych PDX na klinicznie istotne przewidywania odpowiedzi.
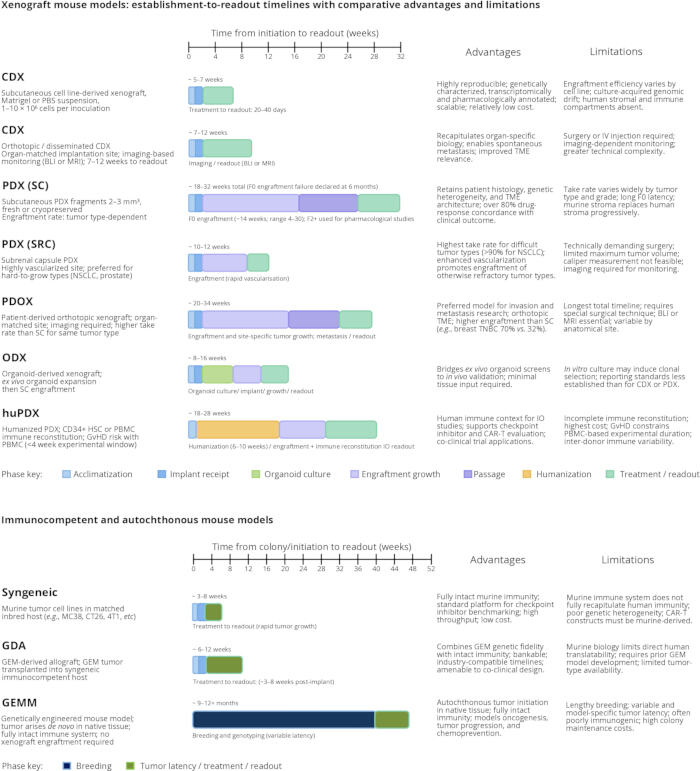
Rycina 1: Ksenograftowe modele mysie: osie czasu od ustanowienia do odczytu wyników wraz z porównawczymi zaletami i ograniczeniami. Osie czasu od inicjacji do eksperymentalnego odczytu wyników przedstawiono dla głównych platform przedklinicznych stosowanych w rozwoju leków onkologicznych, pogrupowanych według statusu immunologicznego gospodarza. Górny panel obejmuje modele ksenograftowe u gospodarzy z niedoborem odporności: podskórne oraz ortotopowe lub rozsiane ksenoprzeszczepy pochodzące z linii komórkowych (CDX), podskórne ksenoprzeszczepy pochodzące od pacjentów (PDX), PDX podtorebkowe nerek (PDX-SRC), ortotopowe ksenoprzeszczepy pochodzące od pacjentów (PDOX), ksenoprzeszczepy pochodzące z organoidów (ODX) oraz humanizowane PDX (huPDX). Dolny panel obejmuje platformy immunokompetentne i autochtoniczne: modele syngeniczne, allografty pochodzące z genetycznie modyfikowanych modeli mysich (GDA) oraz genetycznie modyfikowane modele mysie (GEMM). Dla każdej platformy fazy eksperymentalne są zakodowane kolorami (aklimatyzacja, otrzymanie implantu, hodowla organoidów, przyjęcie przeszczepu i wzrost, pasażowanie, humanizacja oraz leczenie/odczyt; lub rozród i latencja guza/leczenie/odczyt dla modeli autochtonicznych), a przybliżony całkowity czas trwania wskazano w tygodniach. Zalety i ograniczenia specyficzne dla danej platformy podsumowano w prawym panelu. Osie czasu reprezentują standardowe procedury operacyjne wdrożone w Altogen Labs i są zgodne z opublikowanymi zakresami w tej dziedzinie (https://altogenlabs.com/xenograft-models); rzeczywisty czas trwania różni się w zależności od typu guza, szczepu gospodarza, projektu badania i kinetyki przyjęcia przeszczepu. BLI, obrazowanie bioluminescencyjne; GvHD, choroba przeszczep kontra gospodarz; HSC, hematopoetyczna komórka macierzysta; IO, immuno-onkologia; MRI, obrazowanie rezonansem magnetycznym; NSCLC, niedrobnokomórkowy rak płuca; PBMC, mononuklearne komórki krwi obwodowej; SC, podskórnie; TME, mikrośrodowisko guza; TNBC, potrójnie ujemny rak piersi. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
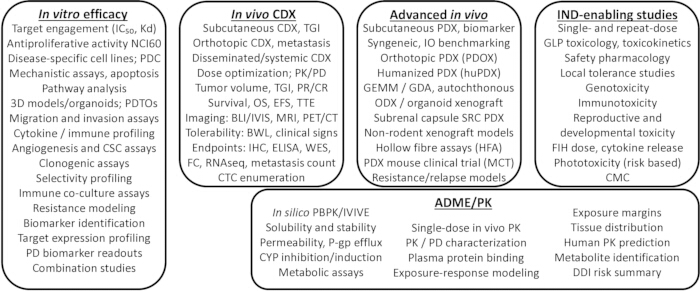
Rycina 2: Zintegrowany przedkliniczny proces badawczy w onkologii: od skuteczności in vitro po badania umożliwiające złożenie wniosku o dopuszczenie nowego leku do badań klinicznych (IND). Schemat wieloetapowego procesu rozwoju leków przedklinicznych, zorganizowanego w czterech następujących po sobie etapach. Skuteczność in vitro obejmuje oddziaływanie z celem (IC50, KD), aktywność antyproliferacyjną w panelach linii komórkowych, w tym NCI-60 i linie specyficzne dla danej choroby, komórki pochodzące od pacjenta (PDC), testy mechanistyczne i szlakowe, modele trójwymiarowe oraz organoidy nowotworowe pochodzące od pacjentów (PDTO), testy migracji i inwazji, profilowanie cytokin i odpornościowe, testy angiogenezy i komórek macierzystych nowotworu, testy klonogenne, profilowanie selektywności, testy kokultury immunologicznej, modelowanie oporności, identyfikację biomarkerów, profilowanie ekspresji celu, odczyty biomarkerów farmakodynamicznych oraz badania kombinowane. Modele in vivo CDX obejmują podskórne, ortotopowe oraz rozsiane lub systemowe CDX w celu optymalizacji dawki, charakterystyki PK/PD, oceny objętości guza i TGI, klasyfikacji odpowiedzi częściowej i całkowitej (PR/CR), punktów końcowych przeżywalności (OS, EFS, TTE), obrazowania multimodalnego (BLI/IVIS, MRI, PET/CT), odczytów tolerancji, w tym utraty masy ciała (BWL) i objawów klinicznych, punktów końcowych molekularnych (IHC, ELISA, WES, cytometria przepływowa, RNA-seq, liczba przerzutów) oraz liczenie krążących komórek nowotworowych (CTC). Zaawansowane platformy in vivo obejmują podskórne i ortotopowe PDX, PDX podtorebkowy (SRC), humanizowane PDX, modele syngeniczne do benchmarkingu immuno-onkologicznego, GEMM i GDA, ODX, modele ksenoprzeszczepów u zwierząt innych niż gryzonie, testy w pustych włóknach (HFA), kliniczne badania na myszach PDX (MCT) oraz modele oporności/nawrotu. Badania umożliwiające IND obejmują toksykologię GLP przy pojedynczej i wielokrotnej dawce, toksykokinetykę, farmakologię bezpieczeństwa, tolerancję miejscową, genotoksyczność, immunotoksyczność, toksyczność rozrodczą i rozwojową, projekcję pierwszej dawki u ludzi (FIH), ocenę uwalniania cytokin oraz ocenę fototoksyczności w zależności od ryzyka. Równoległa charakterystyka chemii, produkcji i kontroli (CMC) oraz absorpcji, dystrybucji, metabolizmu i wydalania/farmakokinetyki (ADME/PK) obejmuje modelowanie in silico PBPK i IVIVE, rozpuszczalność i stabilność, przepuszczalność i ef luks P-glikoproteiny (P-gp), inhibicję i indukcję cytochromu P450 (CYP), testy metaboliczne, PK in vivo, wiązanie z białkami osocza, modelowanie zależności ekspozycja–odpowiedź, dystrybucję tkankową, przewidywanie PK u ludzi, identyfikację metabolitów oraz ocenę ryzyka interakcji lek–lek (DDI). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Oświadczenia
Autor jest zatrudniony w Altogen Labs (Austin, TX, USA), organizacji badawczej świadczącej usługi w zakresie przedklinicznych badań onkologicznych. Rysunek 1 oraz Rysunek 2 to oryginalne schematy opracowane przez autora. Rysunki zawierają harmonogramy i schematy blokowe opracowane na podstawie standardowych procedur operacyjnych Altogen Labs. Nie zadeklarowano konfliktu interesów.
Bibliografia
- Sung H, Ferlay J, Siegel RL, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-249.
- Islami F, Wiese D, Schafer EJ, Sung H, Jemal A. Stage-specific cancer survival in Black and White persons by urbanicity of county of residence, United States, 2015-2021. Cancer. 2025:e70073.
- Johnson JI, Decker S, Zaharevitz D, et al. Relationships between drug activity in NCI preclinical in vitro and in vivo models and early clinical trials. Br J Cancer. 2001;84(10):1424-1431.
- Voskoglou-Nomikos T, Pater JL, Seymour L. Clinical predictive value of the in vitro cell line, human xenograft, and mouse allograft preclinical cancer models. Clin Cancer Res. 2003;9(11):4227-4239.
- Jung J. Human tumor xenograft models for preclinical assessment of anticancer drug development. Toxicol Res. 2014;30(1):1-5.
- Liu Y, Wu W, Cai C, et al. Patient-derived xenograft models in cancer therapy: technologies and applications. Signal Transduct Target Ther. 2023;8:160.
- Okada S, Vaeteewoottacharn K, Kariya R. Application of highly immunocompromised mice for the establishment of patient-derived xenograft (PDX) models. Cells. 2019;8(8):889.
- Blanchard Z, Brown EA, Ghazaryan A, et al. PDX models for functional precision oncology and discovery science. Nat Rev Cancer. 2025;25(3):153-166.
- Shultz LD, Brehm MA, Garcia-Martinez JV, et al. Humanized mice for immune system investigation: progress, promise and challenges. Nat Rev Immunol. 2012;12(11):786-798.
- Hidalgo M, Amant F, Biankin AV, et al. Patient-derived xenograft models: an emerging platform for translational cancer research. Cancer Discov. 2014;4(9):998-1013.
- Dobrolecki LE, Airhart SD, Alferez DG, et al. Patient-derived xenograft (PDX) models in basic and translational breast cancer research. Cancer Metastasis Rev. 2016;35(4):547-573.
- Gao H, Korn JM, Ferretti S, et al. High-throughput screening using patient-derived tumor xenografts to predict clinical trial drug response. Nat Med. 2015;21(11):1318-1325.
- Izumchenko E, Paz K, Ciznadija D, Sloma I, Katz A, Vasquez-Dunddel D, et al. Patient-derived xenografts effectively capture responses to oncology therapy in a heterogeneous cohort of patients with solid tumors. Ann Oncol. 2017;28(10):2595-2605.
- Khanna C, Hunter K. Modeling metastasis in vivo. Carcinogenesis. 2005;26(3):513-523.
- Ribatti D. The chick embryo chorioallantoic membrane (CAM) assay. Reprod Toxicol. 2017;70:97-101.
- Fazio M, Ablain J, Chuan Y, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Drost J, Clevers H. Organoids in cancer research. Nat Rev Cancer. 2018;18(7):407-418.
- Conte N, Mason JC, Halmagyi C, et al. PDX Finder: a portal for patient-derived tumor xenograft model discovery. Nucleic Acids Res. 2019;47(D1):D1073-D1079.
- Meehan TF, Conte N, Goldstein T, et al. PDX-MI: minimal information for patient-derived tumor xenograft models. Cancer Res. 2017;77(21):e62-e66.
- Stripecke R, Münz C, Schuringa JJ, et al. Innovations, challenges, and minimal information for standardization of humanized mice. EMBO Mol Med. 2020;12(7):e8662.
- Brehm MA, Wiles MV, Greiner DL, et al. Generation of improved humanized mouse models for human infectious diseases. J Immunol Methods. 2014;410:3-17.
- King MA, Covassin L, Brehm MA, et al. Human peripheral blood leucocyte non-obese diabetic-severe combined immunodeficiency interleukin-2 receptor gamma chain gene mouse model of xenogeneic graft-versus-host-like disease and the role of host major histocompatibility complex. Clin Exp Immunol. 2009;157(1):104-118.
- Percie du Sert N, Hurst V, Ahluwalia A, et al. The ARRIVE guidelines 2.0: updated guidelines for reporting animal research. Br J Pharmacol. 2020;177(16):3617-3624.
- Sajjad H, Imtiaz S, Noor T, et al. Cancer models in preclinical research: a chronicle review of advancement in effective cancer research. Anim Models Exp Med. 2021;4(2):87-103.
- Mosely SI, Prime JE, Sainson RC, et al. Rational selection of syngeneic preclinical tumor models for immunotherapeutic drug discovery. Cancer Immunol Res. 2017;5(1):29-41.
- Flanagan SP. "Nude", a new hairless gene with pleiotropic effects in the mouse. Genet Res. 1966;8(3):295-309.
- Rygaard J, Povlsen CO. Heterotransplantation of a human malignant tumour to "Nude" mice. Acta Pathol Microbiol Scand. 1969;77(4):758-760.
- Chen J, Liao S, Xiao Z, et al. The development and improvement of immunodeficient mice and humanized immune system mouse models. Front Immunol. 2022;13:1007579.
- Shoemaker RH. The NCI60 human tumour cell line anticancer drug screen. Nat Rev Cancer. 2006;6(10):813-823.
- Barretina J, Caponigro G, Stransky N, et al. The Cancer Cell Line Encyclopedia enables predictive modelling of anticancer drug sensitivity. Nature. 2012;483(7391):603-607.
- Liu M, Yang X. Patient-derived xenograft models: current status, challenges, and innovations in cancer research. Genes Dis. 2025;12(5):101520.
- Rubio-Viqueira B, Jimeno A, Cusatis G, et al. An in vivo platform for translational drug development in pancreatic cancer. Clin Cancer Res. 2006;12(15):4652-61.
- Bertotti A, Migliardi G, Galimi F, et al. A molecularly annotated platform of patient-derived xenografts ("xenopatients") identifies HER2 as an effective therapeutic target in cetuximab-resistant colorectal cancer. Cancer Discov. 2011;1(6):508-23.
- Sartore-Bianchi A, Lonardi S, Martino C, et al. Pertuzumab and trastuzumab emtansine in patients with HER2-amplified metastatic colorectal cancer: the phase II HERACLES-B trial. ESMO Open. 2020;5(5):e000911.
- Ovcharenko D, Chitjian C, Kashkin A, et al. Two dichloric compounds inhibit in vivo U87 xenograft tumor growth. Cancer Biol Ther. 2019;20(9):1281-1289.
- Hernandez MC, Bergquist JR, Leiting JL, et al. Patient-derived xenografts can be reliably generated from patient clinical biopsy specimens. J Gastrointest Surg. 2019;23(4):818-824.
- Noto FK, Sangodkar J, Adedeji BT, et al. The SRG rat, a Sprague-Dawley Rag2/Il2rg double-knockout validated for human tumor oncology studies. PLoS One. 2020;15(10):e0240169.
- De La Rochere P, Guil-Luna S, Decaudin D, et al. Humanized mice for the study of immuno-oncology. Trends Immunol. 2018;39(9):748-763.
- Hoffman RM. Patient-derived orthotopic xenografts: better mimic of metastasis than subcutaneous xenografts. Nat Rev Cancer. 2015;15(8):451-2.
- Okano M, Oshi M, Butash A, et al. Orthotopic implantation achieves better engraftment and faster growth than subcutaneous implantation in breast cancer patient-derived xenografts. J Mammary Gland Biol Neoplasia. 2020;25(1):27-36.
- Scott CL, Becker MA, Haluska P, et al. Patient-derived xenograft models to improve targeted therapy in epithelial ovarian cancer treatment. Front Oncol. 2013;3:295.
- De Vleeschauwer SI, van de Ven M, Oudin A, et al. OBSERVE: guidelines for the refinement of rodent cancer models. Nat Protoc. 2024;19(9):2571-2596.
- Meric-Bernstam F, Lloyd MW, Koc S, et al. Assessment of patient-derived xenograft growth and antitumor activity: the NCI PDXNet consensus recommendations. Mol Cancer Ther. 2024;23(7):924-938.
- Woo XY, Giordano J, Srivastava A, et al.; PDXNET Consortium; EurOPDX Consortium. Conservation of copy number profiles during engraftment and passaging of patient-derived cancer xenografts. Nat Genet. 2021;53(1):86-99.
- Hynds RE, Huebner A, Pearce DR, et al. Representation of genomic intratumor heterogeneity in multi-region non-small cell lung cancer patient-derived xenograft models. Nat Commun. 2024;15(1):4653.
- Wunderlich M, Chou FS, Sexton C, et al. Improved multilineage human hematopoietic reconstitution and function in NSGS mice. PLoS One. 2018;13(12):e0209034.
- Chiorazzi M, Martinek J, Krasnick B, et al. Autologous humanized PDX modeling for immuno-oncology recapitulates features of the human tumor microenvironment. J Immunother Cancer. 2023;11(7):e006921.
- Phoon YP, Lopes JE, Pfannenstiel LW, et al. Autologous human preclinical modeling of melanoma interpatient clinical responses to immunotherapeutics. J Immunother Cancer. 2024;12(4):e008066.
- Tsimafeyeu I, Makhov P, Ovcharenko D, et al. A novel anti-FGFR1 monoclonal antibody OM-RCA-01 exhibits potent antitumor activity and enhances the efficacy of immune checkpoint inhibitors in lung cancer models. Immunooncol Technol. 2024;23:100725.
- Jespersen H, Lindberg MF, Donia M, et al. Clinical responses to adoptive T-cell transfer can be modeled in an autologous immune-humanized mouse model. Nat Commun. 2017;8(1):707.
- Morton JJ, Bird G, Refaeli Y, et al. Humanized mouse xenograft models: narrowing the tumor-microenvironment gap. Cancer Res. 2016;76(21):6153-6158.
- Fløe LVB, Pedersen MG, Møller BK. Animal models in preclinical evaluation of CAR-T cell therapy: advantages and limitations. Biochim Biophys Acta Rev Cancer. 2025;1880(6):189455.
- Andreu-Sanz D, Gregor L, Carlini E, et al. Predictive value of preclinical models for CAR-T cell therapy clinical trials: a systematic review and meta-analysis. J Immunother Cancer. 2025;13(6):e011698.
- Duncan BB, Dunbar CE, Ishii K. Applying a clinical lens to animal models of CAR-T cell therapies. Mol Ther Methods Clin Dev. 2022;27:17-31.
- Yang J, Wu T, Xue F, et al. TRANSPIRE-DRP: a deep learning framework for translating patient-derived xenograft drug response to clinical patients via domain adaptation. J Transl Med. 2025;23(1):1340.
- Tosca EM, Ronchi D, Rocchetti M, et al. Predicting tumor volume doubling time and progression-free survival in untreated patients from patient-derived-xenograft (PDX) models: a translational model-based approach. AAPS J. 2024;26(5):92.
- Ovcharenko D, Mukhin D, Ovcharenko G. Alternative cancer therapeutics: unpatentable compounds and their potential in oncology. Pharmaceutics. 2024;16(9):1237.
- Altogen Labs. Xenograft models in oncology: CDX, PDX, organoids, and humanized immuno-oncology platforms. Austin (TX): Altogen Labs; https://altogenlabs.com/xenograft-models/
- Sirotkin AV, Ovcharenko D, Mlyncek M. Identification of protein kinases that control ovarian hormone release by selective siRNAs. J Mol Endocrinol. 2010;44(1):45-53.