Ten protokół opisuje metody pomiaru efektów leków podawanych za pomocą implantowalnych osmotycznych minipomp na morfologię mitochondriów w starzejących się modelach mysich. Przeprowadza się trójwymiarowe (3D) superrozdzielcze obrazowanie konfokalne wątrobek mysich i opracowuje się ścieżkę nieuprzednionego segmentowania, klasyfikacji oraz ilościowej analizy struktur mitochondriów.
Artykuł metodologiczny
Ocena wpływu związków farmakologicznych na morfologię mitochondriów w modelach starzenia się myszy
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Akumulację uszkodzeń molekularnych związanych ze starzeniem może przyczyniać się do zmian w morfologii mitochondriów i dysfunkcji metabolicznej, szczególnie w tkankach o wysokim zużyciu energii. Związki farmaceutyczne, które poprawiają dysfunkcję metaboliczną i przywracają zdrowe, 'młode' morfologię mitochondriów, mogą więc stanowić skuteczne metody przedłużenia długości zdrowia (czyli części życia wolnej od obciążenia chorobami przewlekłymi związanymi ze starzeniem) u ssaków. Niniejszy opis metod wykonywania podskórnych implantacji pomp osmotycznych u starszych myszy w celu stabilnego dostarczania hydrofobowych związków farmaceutycznych. Następnie tkanki są fiksowane, wykonywane krojenia kryogeniczne, barwienie i obrazowanie przy użyciu super-rozdzielczej mikroskopii konfokalnej. Wreszcie przedstawiono zautomatyzowany proces segmentacji trójwymiarowej, klasyfikacji i pomiaru ilościowego struktur mitochondriów. Zatem te metody mogą być przydatne do ilościowej oceny zmian w trójwymiarowej strukturze mitochondriów w różnych tkankach w całym okresie życia myszy. Co więcej, te techniki mogą pomóc w reprodukowalnym identyfikowaniu leków małocząsteczkowych, które łagodzą dysfunkcję metaboliczną związaną ze starzeniem.
Wprowadzenie
Mitochondria są organellami o podwójnej błonie, która jest zorganizowana przestrzenno-czasowo w taki sposób, aby dostosować się do bieżących zapotrzebowań metabolicznych ich komórki macierzystej i tkanki1. Zagłębienia w wewnętrznej błonie, zwane krystami, są formowane i zorganizowane poprzez dynamiczną koordynację między fosfolipidami wewnętrznej błony niezbiorczych takich jak kardiolipina i fosfatydyloetanolamina, rzędami dimerów ATP syntazy na końcach kryst, oligomerami wiązanymi kardiolipina, dynaminopodobną GTP-azą Optycznej Atrofii 1 (OPA1) na szczycie kryst oraz kompleksami Układu Organizującego Kontakty Mitochondriów i Krysty (MICOS) na stykach kryst1. Te struktury wewnętrznej błony poddzielają mitochondria na pojedyncze funkcjonalne jednostki2 i zapewniają większą powierzchnię, na której mogą składać się mitochondrialne kompleksy oddechowe wytwarzające potencjał transbłonowy1. Jako dynamiczne organelle o wtórze funkcji komórkowych związanych z sygnałowaniem apoptozy3, homeostazą Ca2+ i gatunków reaktywnych tlenu3 oraz biosyntezą lipidów4, morfologiczne struktury mitochondrialne są wysoce wrażliwe na zmiany środowiskowe takie jak zmniejszona dostępność tlenu5 oraz zwiększone uwalnianie Ca2+ z retikulum endoplazmatycznego6,7.
Akumulacja uszkodzeń molekularnych przyczynia się do zmian w strukturze i funkcji mitochondriów podczas starzenia8. Pionierskie badania tomografii kriogenicznej z elektronami (cryo-ET) przeprowadzone przez grupę Kühlbrandt na kilku organizmach modelowych wykazały wyraźną korelację między gęstością kryst a zdolnością do oddychania, jak również zależne od wieku zmniejszenie gęstości kryst i związaną z tym utratą dimerów ATP syntazy9,10. Ponadto, zmiany w objętości mitochondriów mogą wynikać z upośledzonej dynamiki podziału i fuzji mitochondriów11, zwiększonego gromadzenia się lipidów12 oraz zwiększonego obrzęku13. W mięśniach szkieletowych, maksymalna konsumpcja tlenu (VO2 max), która jest silnym predyktore średniego czasu życia14,15, może być dokładnie przewidywana na podstawie stopnia fragmentacji mitochondriów pomiędzy miofibrilami i gęstości kryst16.
Nie jest zaskakujące, że związane ze starzeniem się zmiany strukturalne i funkcjonalne w mitochondriach mogą przyczyniać się do patogenezy wielu przewlekłych chorób17,18,19,20. Zwiększona fragmentacja mitochondriów oraz zmiany w biogenezie i morfologii mitochondriów są związane zarówno z chorobą Alzheimera jak i chorobą Parkinsona20. Zmiany te prowadzą do dysfunkcji kompleksów fosforylacji oksydacyjnej, upośledzając generowanę siłę motywującą protony i prowadząc do nadmiernej produkcji reaktywnych gatunków tlenu20,21,22. W związanych ze starzeniem się dysfunkcjach serca i niewydolności serca, zwiększona fragmentacja mitochondriów, obrzęk, wakuolizacja i utrata gęstości kryst przyczyniają się do zmniejszonej produkcji ATP23,24. Te strukturalne zmiany mogą być częściowo związane ze zmienionym działaniem mitochondrialnego Ca2+ oraz zwiększoną aktywnością poru przejściowego mitochondrialnej przepuszczalności6,7,13,25. Jako możliwy regulator mitofagii, nadmiernie otwieranie poru przejściowego mitochondrialnej przepuszczalności podczas starzenia się może zamiast tego być destrukcyjne i prowadzić do niekontrolowanej śmierci komórki13. Wreszcie, wiadomo, że związane ze starzeniem się niedobory w mitochondrialnym metabolizmie lipidów i mitofagii mogą również przyczyniać się do rozwoju niealkoholowej choroby wątroby26. W szczególności, stwierdzono, że steatoza wątroby jest towarzyszona zwiększonym stresem oksydacyjnym i zwiększonym tworzeniem struktur mitochondrialnych przypominających pączki3,27.
W związku z tym, istnieje znaczne zainteresowanie opracowaniem leków przeciwstarzeniowych, które działają na związane ze starzeniem się upośledzenie funkcji mitochondriów w celu poprawy jakości życia osób cierpiących na określone przewlekłe choroby. Forzinity (elamipretyd), peptyd działający na lipidy, który zmniejsza potencjał powierzchni wewnętrznej błony28 i zwiększa produkcję ATP mitochondrialnego29,30
Protokół
Wszystkie procedury z udziałem zwierząt laboratoryjnych zostały przeprowadzone zgodnie z instytucjonalnymi wytycznymi dotyczącymi stosowania zwierząt laboratoryjnych i zostały zatwierdzone przez Brigham and Women's Hospital oraz Harvard Medical School Institutional Animal Care and Use Committees w ramach Protokołu nr. 2016N000368. Badacze zainteresowani zastosowaniem tego protokołu w innych krajach powinni skonsultować się z lokalnymi instytucjami i organami regulacyjnymi, aby zapewnić zgodność z obowiązującymi przepisami dotyczącymi opieki nad zwierzętami.
1. Podskórna implantacja pompy osmotycznej
UWAGA: Operacje na zwierzętach powinny być wykonywane tylko przez doświadczony, przeszkolony personel, i należy zachować ogromną ostrożność, aby zminimalizować stres i/lub cierpienie zwierząt. Procedury z udziałem zwierząt laboratoryjnych powinny być wykonywane wyłącznie zgodnie z zatwierdzonymi protokołami badawczymi. Wszelkie badania z udziałem zwierząt powinny ściśle przestrzegać zasady 3R – Zastępowanie, Redukowanie i Rafinowanie. Ten protokół opisuje podskórną implantację pompy osmotycznej, która jest klasyfikowana jako mała procedura chirurgiczna. Można również wykonać implantację pompy osmotycznej do jamy brzusznej, ale jest to bardziej skomplikowana procedura klasyfikowana jako większa procedura chirurgiczna. Dlatego zaleca się wykonanie procedury podskórnej, chyba że istnieją mocne naukowe uzasadnienia na korzyść implantacji do jamy brzusznej.
- Wypełnienie pomp osmotycznych
UWAGA: Przygotowanie roztworów leków i napełnianie pomp osmotycznych należy wykonywać w szafce bezpieczeństwa biologicznego z zachowaniem techniki sterylnej. Modele pomp należy wybierać w oparciu o pożądaną objętość rezerwuaru i długość dostarczania leczenia. W tym badaniu zastosowano model 2004 (~200 μL objętość rezerwuaru, dostarczanie leczenia przez 4 tygodnie).- Przygotuj roztwór leku w rozpuszczalniku zgodnym z pompami osmotycznymi. Odnoś się do https://alzet.com/formulating-the-solution/. Użyj przepływu (μL/h) wymienionego na partii zamówionych pomp osmotycznych, aby określić stężenie leku potrzebne do osiągnięcia docelowanego dziennego dawki.
UWAGA: Roztwór 50% v/v DMSO i 50% v/v PEG300 stabilnie uwalnia związki hydrofobowe i jest zgodny z pompami osmotycznymi. Wszystkie związki i rozpuszczalniki powinny mieć jakość farmaceutyczną, jeśli to możliwe. - Przefiltruj sterylnie roztwór leku przez 0,22 μm filtr strzykawkowy i przechowuj w temperaturze pokojowej.
- Umieść moderator przepływu w pompie i wciśnij go na dół, aż wpasuje się do mikrofugowej probadkowiczka. Nie wciszaj moderatora przepływu do końca.
- Ustaw wagę analityczną na pustej mikrofugowej probadkowiczce, a następnie odnotuj wagę pompy osmotycznej.
- Dołącz rurkę wypełniającą do 1 mL strzykawki i zasysz co najmniej 1,5 razy więcej niż objętość rezerwuaru pompy. Usuń bąbelki powietrza, ciągnąc tłok w dół, przetrząsając strzykawkę i popychając w górę, aż płyn uformuje się na szczycie rurki wypełniającej.
- Wyjmij moderator przepływu, trzymając pompę pionowo.
- Wsuń rurkę wypełniającą przez otwór na szczycie pompy, aż nie będzie można jej wsunąć dalej.
- Powoli wciśnij tłok w dół, trzymając pompę pionowo. Kontynuuj napełnianie, aż roztwór pojawi się na wylocie. Następnie usuń rurkę wypełniającą i zetrzyj nadmiar roztworu delikatnym ściereczkiem.
- Wsuń moderator przepływu, aż czapka będzie na wysokości szczytu pompy.
- Umieść wypełnioną pompę z powrotem w mikrofugowej probadkowiczce i waży. Określ wagę roztworu i upewnij się, że objętość wypełnienia wynosi co najmniej 90% objętości rezerwuaru (różnica wag w miligramach ≈ objętość w mikrolitrach).
- Wypełnij 15 mL stożkową probówkę 5 mL sterylnego 1x fosforanowego buforu salinowskiego (PBS) i dodaj wstępnie wypełnioną pompę. Uszczelnij folią parafinową i wypełnij pompę(y) przez inkubację w 37 °C przez czas wymagany przez model pomp osmotycznych. W przypadku modelu 2004 wynosi to 40 h.
- Przygotuj roztwór leku w rozpuszczalniku zgodnym z pompami osmotycznymi. Odnoś się do https://alzet.com/formulating-the-solution/. Użyj przepływu (μL/h) wymienionego na partii zamówionych pomp osmotycznych, aby określić stężenie leku potrzebne do osiągnięcia docelowanego dziennego dawki.
- Przygotowanie meloksikam
UWAGA: Powinno to być wykonywane w szafce bezpieczeństwa biologicznego z zachowaniem techniki sterylnej. Meloksykam, niesteroidowy lek przeciwzapalny (NLPZ), nie jest substancją kontrolowaną, ale może wymagać licencji na substancję kontrolowaną do jej uzyskania.- Za pomocą igły 27-G i strzykawki Luer-lok o pojemności 3 mL, rozcieńcz 5 mg/mL stoks meloksikam do 1 mg/mL za pomocą sterylnego PBS w 5 mL sterylnej szklanej flaszce. Przygotuj w dzień i przechowuj w temperaturze pokojowej.
- Przygotowanie miejsca operacji
UWAGA: Nie jest konieczne wykonywanie implantacji pompy osmotycznej w szafce bezpieczeństwa biologicznego, ani nie jest możliwe utrzymanie sterylności podczas procedur chirurgicznych. Jednak miejsce operacji powinno nadal przestrzegać surowych standardów czystości i praktyki aseptycznej. Miejsce operacji powin
Wyniki
Opisany powyżej protokół został przeprowadzony (Rysunek 1) na 20-miesięcznych samcach myszy UM-HET3. Myszy otrzymały albo nośnik (Grupa kontrolna), albo koktajl do przeprogramowania chemicznego (Grupa traktowana) za pomocą minipomp osmotycznych model 200453. Następnie wątroby zostały pocięte na sekcje i obrazowane za pomocą mikroskopu konfokalnego Airyscan2, a uzyskane stosy obrazów z (z-stacks) przetworzono przy użyciu potoku analizy.
Trójwymiarowe obrazy fluorescencyjne zostały przetworzone i przeanalizowane przy użyciu oprogramowania ZEISS arivis Pro Software 4.1.2. Przed segmentacją mitochondriów zastosowano algorytm wzmacniania cząsteczek (particle enhancement), aby odszumić obrazy i usunąć tło, światło poza ogniskową, autofluorescencję oraz/lub fluorescencję wynikającą z niespecyficznego wiązania. Wzmacnianie cząsteczek selektywnie potęguje sygnał o określonej średnicy. Po odszumianiu poszczególne mitochondria zostały poddane segmentacji 3D przy użyciu algorytmu Blob Finder, który wykrywa obiekty na podstawie lokalnych maksimów intensywności w zadanym zakresie wielkości. Na koniec segmentacja obiektów redukuje każdy przekrój 2D do obrazu binarnego.
Aby zilustrować przebieg procesu segmentacji, Rysunek 2 przedstawia reprezentatywne przekroje optyczne na każdym etapie potoku przetwarzania dla próbek kontrolnych i traktowanych. Surowy obraz fluorescencyjny ukazuje nieprzetworzony sygnał Tom20, który zawiera mieszaninę specyficznej fluorescencji mitochondriów oraz niepożądanego tła, światła poza ogniskową i autofluorescencji. Po zastosowaniu odszumiania z wzmocnieniem cząstek sygnał tła został znacząco zredukowany, a pozostała fluorescencja ogranicza się do dyskretnych, dobrze zdefiniowanych struktur (Rysunek 2). Skutkuje to czystszym odwzorowaniem granic mitochondriów, co ułatwia dokładną segmentację.
Wynik segmentacji Blob Finder przedstawiono w kolorze zielonym. Aby potwierdzić, że stosy z (z-stacks) zostały precyzyjnie wysegmentowane, nałożono na siebie odszumione przekroje 2D wraz z powiązanymi binarnymi obrazami segmentacyjnymi (Rysunek 2). Jeśli proces segmentacji jest wystarczająco zoptymalizowany, powinna być obserwowana silna i spójna kolokalizacja fluorescencji mitochondriów z obiektami binarnymi. W przypadku nadmiernej segmentacji (tzn. podziału pojedynczych mitochondriów na wiele obiektów) lub niedostatecznej segmentacji (tzn. łączenia wielu mitochondriów w jeden obiekt), należy dostosować parametry segmentacji. Inspekcja wizualna powiększeń potwierdza wysoką jakość segmentacji: wykryte obiekty kolokalizują precyzyjnie z odszumionym sygnałem fluorescencji Tom20, bez oznak nadmiernej segmentacji, zbyt dużego rozmiaru obiektów, niewłaściwego łączenia przestrzennie sąsiadujących mitochondriów w pojedyncze obiekty lub generowania artefaktów w obszarach pozbawionych sygnału Tom20. Taki poziom dokładności segmentacji osiągnięto konsekwentnie zarówno w próbkach kontrolnych, jak i traktowanych, co dowodzi, że parametry potoku zoptymalizowane w oprogramowaniu ZEISS arivis są odporne i uniwersalne dla grup eksperymentalnych. Wspólnie wyniki te walidują podejście do segmentacji i potwierdzają wiarygodność wynikających z niej pomiarów morfologicznych.
W odsegmentowanych obiektach można zmierzyć parametry mitochondrialne, takie jak objętość, sferyczność i powierzchnia (Rysunek 3). Aby uwzględnić dużą liczbę mitochondriów wykrytych w jednej próbce biologicznej oraz brak niezależności poszczególnych organelli w obrębie komórki, obliczono wartości mediany dla każdej próbki, które posłużyły jako jednostka porównania statystycznego. Różnice między grupami oceniono za pomocą testu Wilcoxona. Próbki poddane działaniu preparatu wykazały istotnie większą objętość i powierzchnię mitochondriów w porównaniu z grupą kontrolną, co wskazuje, że przeprogramowanie chemiczne indukuje znaczną przebudowę morfologii mitochondriów.
Na koniec, pofragmentowane mitochondria można sklasyfikować na różne podtypy54,55 (Rysunek 4). Metoda łokcia (elbow method)56 została wykorzystana do określenia optymalnej liczby klastrów dla grupowania k-średnich (k-means clustering)57,58 (Rysunek 4A). Następnie, przy użyciu k = 4 klastrów, losowe podpróbki mitochondriów dla grup kontrolnej (Control) i badanej (Treated) zostały przedstawione za pomocą redukcji wymiarowości UMAP (uniform manifold approximation and projection) (Rysunek 4B), z kolorowaniem według podtypu mitochondriów (lewo) oraz grupy badawczej (prawo). Na koniec wykreślono proporcje każdego podtypu mitochondriów (Rysunek 4C) dla grup kontrolnej i badanej. W grupie badanej zaobserwowano mniej mitochondriów pofragmentowanych, jednak nie stwierdzono istotnej zmiany w proporcji mitochondriów sieciowatych lub wydłużonych.
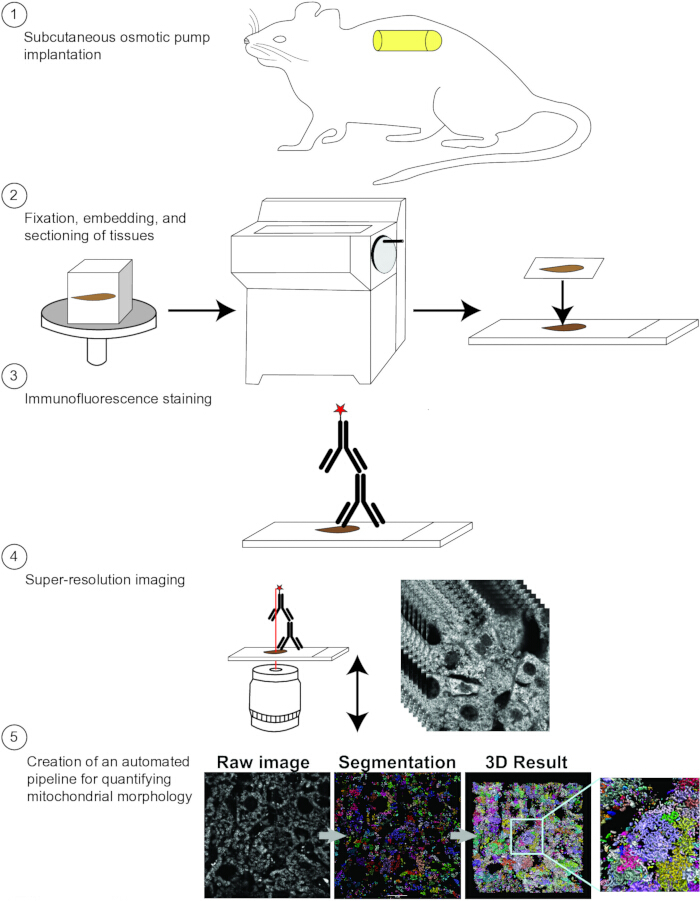
Rysunek 1: Przegląd protokołu. Myszy są leczone lekami lub nośnikiem przez okres do 6 tygodni przy użyciu podskórnej implantacji osmotycznej minipompy (1). Po zakończeniu leczenia tkanki myszy są utrwalane, nasycane sacharozą, zatapiane w związku OCT i cięte kriotomem (2). Przekroje tkanek są następnie barwione przeciwciałami przeciwko Tom20 oraz przeciwciałami wtórnymi znakowanymi Alexa Fluor 568 (3). Seria obrazów z-stack o superrozdzielczości jest zbierana przy użyciu punktowego skaningowego mikroskopu konfokalnego Airyscan2 (4), a odszumione, przetworzone serie z-stack są segmentowane w programie arivis w celu ilościowego określenia morfologii mitochondriów (5). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
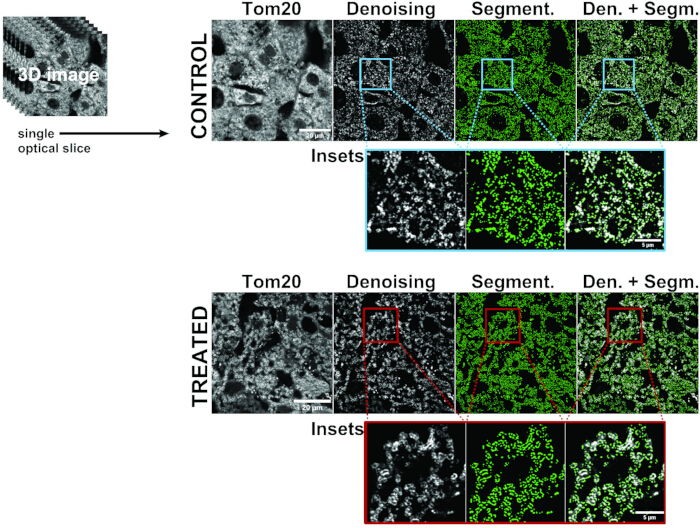
Rysunek 2: Zautomatyzowany proces segmentacji i analizy morfologii mitochondriów.
Reprezentatywne pojedyncze przekroje optyczne z próbek kontrolnych (panele górne) i traktowanych (panele dolne). Sygnał immunofluorescencji Tom20 przedstawiono w kolorze szarym (lewo). Ten sam obraz po odszumianiu wyświetlono w kolorze szarym, a następnie przedstawiono wynik segmentacji, wyróżniając wykryte obiekty mitochondrialne na zielono. Obraz scalony pokazuje nakładanie się odszumionego sygnału i zsegmentowanych obiektów. Wstawki przedstawiają powiększone widoki wskazanych obszarów, ilustrując efekty odszumiania oraz dokładność segmentacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
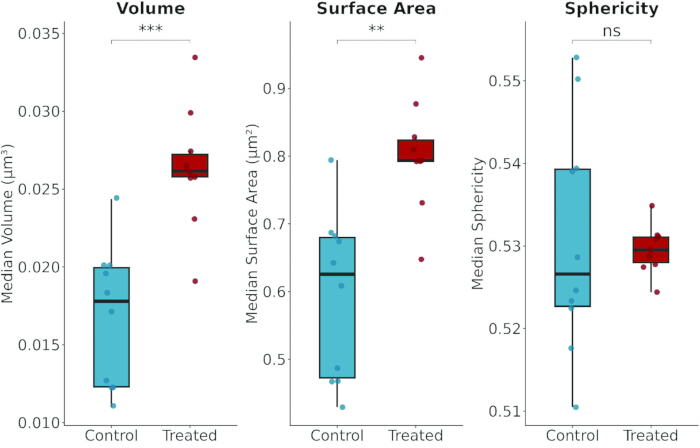
Rycina 3: Morfologia mitochondriów w grupach kontrolnej i traktowanej. Wykresy pudełkowe przedstawiają medianę ± rozstęp międzykwartylowy median wartości dla każdej próbki (n = 10 na grupę). Każda kropka reprezentuje jedną próbkę biologiczną, podsumowaną jako mediana dla wszystkich mitochondriów wykrytych w danej próbce. Objętość i powierzchnia są przedstawione w skali log10. Grupy porównano za pomocą testów suma rang Wilcoxona. Poziomy istotności: ns p ≥ 0,05, **p < 0,01, ***p < 0,001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
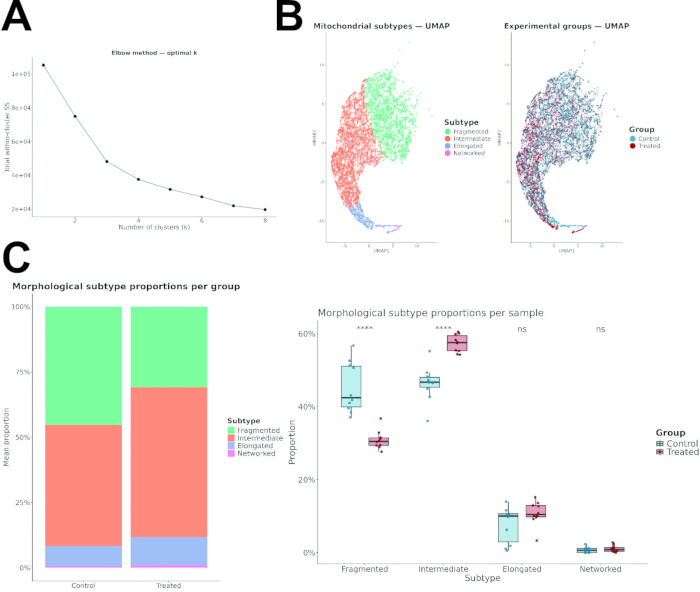
Rycina 4: Nienadzorowana klasyfikacja morfometryczna subtypów mitochondriów. (A) Wykres łokcia przedstawiający całkowitą sumę kwadratów wewnątrz klastrów (WSS) jako funkcję liczby klastrów (k), obliczoną na losowej podpróbce 10 000 mitochondriów. Punkt przegięcia przy k = 4 wybrano jako optymalną liczbę klastrów do dalszych analiz. (B) (Lewo) Redukcja wymiarowości UMAP cech morfometrycznych mitochondriów (n = 20 000 losowo wybranych mitochondriów), z kolorowaniem według przypisanego subtypu. Zidentyfikowano cztery morfologicznie odrębne subtypy: pofragmentowane (małe, wysoka sferyczność), wydłużone (długie, niska sferyczność), sieciowe (duże, nieregularne) oraz pośrednie. (Prawo) Projekcja UMAP z kolorowaniem według grupy eksperymentalnej (Kontrola vs. Traktowane), pokazująca rozkład każdej grupy w przestrzeni morfologicznej. (C) Proporcje każdego subtypu mitochondriów w każdej próbce dla poszczególnych grup eksperymentalnych. Każdy punkt danych reprezentuje jedną próbkę biologiczną (n = 10 na grupę). Wykresy pudełkowe przedstawiają rozstęp międzykwartylowy i medianę, z wąsami sięgającymi 1,5 raza rozstępu międzykwartylowego. Proporcje subtypów porównano między grupami za pomocą testu sum rang Wilcoxona, a wartości p skorygowano dla wielokrotnych porównań metodą Benjamini-Hochberga. ns p ≥ 0,05, ****p < 0,0001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Plik uzupełniający 1: Przykład potoku arivis. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Skrypt R do ilościowego określania morfologii mitochondriów i populacji podtypów.Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Dwie najważniejsze kroki dla pomyślnego wykonania tego protokołu to (i) zamknięcie nacięcia podczas implantacji pompy osmotycznej oraz (ii) dokładna segmentacja. W pierwszym przypadku, należy szczególnie zadbać o stworzenie kieszonki podskórnej, która jest wystarczająco duża dla pompy, ale nie za duża, aby pompa mogła się ślizgać wzdłuż boku zwierzęcia. Po zamknięciu nacięcia, pompa powinna być umieszczona wystarczająco daleko, aby nie wywołać napięcia na otaczającej skórze, co może prowadzić do rozejścia się nacięcia. Upewnij się, że pociągasz za skórę otaczającą zamknięte nacięcie we wszystkich kierunkach, aby zweryfikować, że rana jest wystarczająco zamknięta przed rozpoczęciem odzyskiwania zwierzęcia. Zastawki ranne są korzystne, ponieważ są szybkie do założenia i zdjęcia. Jednak jeśli pojawią się jakiekolwiek problemy z niemożnością prawidłowego zamknięcia nacięć, można zastosować szycie przerywane. W drugim przypadku, dokładna segmentacja wymaga ciągłego porównywania wyników segmentacji z obrazami bezgłosowymi, aż osiągnie się wystarczające podobieństwo obrazu. Zdjęcia Z-stacks od zwierząt kontrolnych i leczonych muszą być zbierane przy użyciu tych samych parametrów zbierania i najlepiej podczas tej samej sesji obrazowania. Podobnie, wszystkie kroki przetwarzania muszą być zastosowane do wszystkich obrazów przy użyciu dokładnie tych samych parametrów. Parametr segmentacji średnicy definiuje oczekiwaną wielkość obiektów do wykrycia. Dobrym punktem wyjściowym jest zmierzona średnia szerokość mitochondria z kilku obiektów sprawdzonych ręcznie przy użyciu jednego optycznego skrawka. Próg prawdopodobieństwa kontroluje minimalne prawdopodobieństwo wykrycia wymagane dla obiektu, aby został zaakceptowany. Niższe wartości zwiększają czułość i wykrywają więcej obiektów, ale niektóre z tych obiektów mogą być fałszywe. Z kolei wyższe wartości poprawiają swoistość, ale mogą powodować utratę obiektów o niższym sygnale. Zalecana początkowa zakres to 25%–30%. Wreszcie, czułość podziału określa, jak agresywnie są rozdzielane stykające się lub nakładające się obiekty na pojedyncze obiekty. Niska czułość podziału pozostawi skupiska mitochondria jako pojedyncze połączone obiekty. Z drugiej strony, wysoka czułość podziału może prowadzić do nadmiernego podziału wydłużonych lub rozgałęzionych mitochondria na fragmenty. Wartości między 15%–30% są rozsądne dla typowych badań morfologicznych mitochondria. Jeśli dokładna segmentacja nadal stanowi wyzwanie, segmentację można wykonać przy użyciu Analizatora Mitochondriów59 w FIJI60. Semi-zautomatyzowana metoda kwantyfikacji morfologii mitochondria w komórkach i tkankach przy użyciu oprogramowania Huygens Professional i niestandardowego skryptu Pythona została również niedawno opisana61.
Jednym z ograniczeń jest limit rozdzielczości konfokalnego mikroskopu Airyscan2, który wynosi ~150 nm w XY i ~350 nm w płaszczyźnie Z. Uniemożliwia to wykonywanie wysokorozdzielczych obrazów chropowatej mitochondrialnej, ponieważ odległości między pojedynczymi chropowatościami wynoszą ~40–120 nm62,63,64. W przeciwieństwie do tego, stymulowane wyczerpywanie emisji (STED) może osiągnąć limity rozdzielczości ~20–50 nm w kierunku bocznym i może wyraźnie rozróżnić pojedyncze mitochondrialne chropowate62,63,64. Kilka barwników STED zostało niedawno opracowane, które pozwalają na efektywne barwienie i obracanie mitochondrialnej błony wewnętrznej zarówno w komórkach żywych, jak i fiksowanych63,64,65. Biorąc pod uwagę, że analiza morfologii chropowatej może dać wgląd w zdrowotny stan bioenergiczny mitochondria10, takie dane są zatem pożądane. Jednak morfologię mitochondrialną różni mocno między tkankami ssaków a hodowlą komórkową (omówione w głębi poniżej), i obecnie nie ma metodyki do barwienia wewnętrznej błony tkanek dla obracania i analizy struktur chropowatej STED.
Ilościowe określenie morfologii mitochondrialnej w całym tkankach stanowi unikalne wyzwania w porównaniu do systemów hodowlany komórkowych. W hodowanych komórkach, mitochondria są zazwyczaj rozmieszczone w całym cytoplazmie w dobrze rozdzielonych sieciach z minimalnym nakładaniem się między komórkami. W sekcjach tkankowych lub preparatach całoci, komórki są gęsto upakowane, a ich granice nie są dobrze określone. Jeśli wymagana jest analiza na poziomie komórki, należy włączyć dodatkową fluorescencyjną etykietę ukierunkowaną na błonę plazmatyczną lub marker specyficzny dla typu komórki, wraz z odpowiednią krokami segmentacji w rurociągu analizy obrazów, aby zdefiniować pojedyncze granice komórek przed kwantyfikacją morfologii mitochondrialnej. Druga ważna różnica polega na tym, że w hodowanych komórkach, mitochondria często tworzą ciągłe, powiązane siatki siatkowe, które są łatwe do wizualiza
Oświadczenia
Autorzy nie mają żadnych konfliktów interesów do zadeklarowania.
Podziękowania
Autorzy chcą podziękować zasobom Mikroskopii na North Quad (MicRoN) w Harvard Medical School za zapewnienie dostępu i szkolenia z mikroskopow konfokalnych oraz zasobów obliczeniowych wykorzystanych w tej pracy. Badania te były sfinansowane przez granty NIA przyznane VNG.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Airyscan2 point scanning confocal microscope | ZEISS | LSM 980 with Airyscan2 | ZEISS point scanning LSM 980 confocal built around a ZEISS Axio Observer Z1 and equipped with two multi-alkali PMTs and a GaASP 32 channel spectral detector, an environmental enclosure, and a Plan Apo 63×/1.4 Oil DIC III objective. The microscope used in this study is also equipped with two external NIR detectors, as well as the following laser lines: 405, 458, 488, 514, 561, 594, 639, and 730 nm. |
| Aluminum foil | Essendant | BWK7112 | |
| Analytical balance | Mettler Toledo | MR204 | |
| Anti-roll glass plate | Gel Company | LGI70 | |
| Arivis Pro Software | ZEISS | Version 4.1.2 | |
| Bath sonicator | Branson Ultrasonics | 71020-MT | |
| Bovine serum albumin | Research Products International | A30075 | |
| Centrifuge tubes, 15 mL | CELLTREAT | 229411 | |
| Charged microscope slides | Globe Scientific | 1358W | |
| Clip remover | Alzet | 0009976 | |
| CO2 | Airgas | CD 50 | |
| Contrad 70 | Decon Labs | 1003 | |
| Cotton-tipped applicators | Puritan Medical | 25-8061WC | |
| Cryostat | Leica Biosystems | CM3050 S | |
| Cryostat blades | Sakura Finetek USA Inc | 4689 | |
| DAPI | Sigma-Aldrich | D9542 | Prepare to 5 mg/mL in ddH2O, aliquot, and store at -20 °C protected from light |
| Dimethyl sulfoxide | Sigma-Aldrich | D2650 | |
| EasyDip slide staining system | Electron Microscopy Services | 71388-01 | |
| Electro-Gel | Bio-Serv | EGS-1 | |
| Embedding molds, 22 mm × 22 mm × 20 mm | Polysciences | 18646A-1 | |
| Ethanol, 200 proof | Decon Labs | V1001 | |
| Fenestrated sterile drape sheets | Dukal | 20001 | |
| Fine forceps | Fine Science Tools | 11445-12 | |
| Glass bead sterilizer | VWR | 75999-324 | |
| Goat anti-rabbit Alexa Fluor 568 | Invitrogen | A-11036 | |
| Heating pad | CVS | 215313 | |
| Hemostatic forceps | World Precision Instruments | 501705 | |
| Immersion oil Immersol 518 F | ZEISS | 433802-9010-000 | |
| Induction chamber | World Precision Instruments | EZ178 | |
| Insulin syringes, 0.3 mL | BD | 328431 | |
| Iris surgical scissors | Sklar Surgical Instruments | 47-1135 | |
| Isoflurane | Patterson Veterinary | 07-890-8115 | |
| Kimwipes | Kimberly-Clark | 34120 | |
| Luer-Lok 1 mL syringes | BD | 309628 | |
| Luer-Lok 3 mL syringes | BD | 309657 | |
| Luer-Lok 50 mL syringes | BD | 309653 | |
| Meloxivet (meloxicam) | Patterson Veterinary | 07-894-8524 | |
| Microcentrifuge tubes, 1.5 mL | CELLTREAT | 229443 | |
| Microscope slide box | Heathrow Scientific | 15994E | |
| Microscope slide cover glass, #1.5, 22 mm × 50 mm | Electron Microscopy Services | 72204-04 | |
| Non-CO2 incubator | Benchmark Scientific | H2200-H | |
| Non-fenestrated sterile drape sheets | Dukal | 20-002 | |
| OCT Compound | Sakura Finetek USA Inc | 4583 | |
| Opthalmic ointment | Patterson Veterinary | 07-888-2572 | |
| Osmotic minipumps | Alzet | 2004 | |
| Parafilm | Bemis | PM999 | |
| Paraformaldehyde, 4% w/v | Santa-Cruz Biotechnology | sc-281692 | |
| PBS, 1× | Thermo Scientific | 10010023 | |
| PEG300 | Sigma-Aldrich | 90878 | |
| PES syringe filters, 0.22 μm | CELLTREAT | 229747 | |
| Povidone iodine 10% USP swabsticks | Medline | MDS093901ZZ | |
| ProLong Glass Antifade | Invitrogen | P36980 | |
| Rabbit anti-Tom20 antibody | Novus Biologicals | NBP2-67501 | |
| Razor blades, 0.22 mm | VWR | 55411-050 | |
| Rotator/rotisserie | Labnet | H5500 | |
| RStudio | The R Project for Statistical Computing | version 4.3.2 | |
| Scale | Fisher Scientific | S72422 | |
| SomnoSuite low-flow anesthesia system | Kent Scientific | SS-01 | |
| Steam sterilization indicator strips | Crosstex | SIS-250 | |
| Sterile glass vials, 5 mL | Thermo Scientific | ST5 | |
| Sterile needles, 0.5", 23 G | BD | 305145 | |
| Sterile needles, 0.5", 27 G | BD | 305109 | |
| Sterilization pouches | Cardinal Health | 92510 | |
| Sucrose | Sigma-Aldrich | S9378 | Prepare a solution of 30% w/v in 1× PBS |
| Surgical clippers | 3M | 9680 | |
| Surgical gloves | Cardinal Health | 2D73DP75 | |
| Tissue forceps | Sklar Surgical Instruments | 47-1447 | |
| Toploading balance | Cole-Parmer | EW-55000-14 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| Vetbond tissue adhesive | 3M | 1469SB | |
| Weighing boats, 85 mL | Heathrow Scientific | 14 |
Bibliografia
- Iovine JC, Claypool SM, Alder NN. Mitochondrial compartmentalization: Emerging themes in structure and function. Trends Biochem Sci. 2021;46(11):902-917.
- Wolf DM, et al. Individual cristae within the same mitochondrion display different membrane potentials and are functionally independent. EMBO J. 2019;38(22):e101056.
- Jenkins BC, et al. Mitochondria in disease: Changes in shapes and dynamics. Trends Biochem Sci. 2024;49(4):346-360.
- Mesmin B. Mitochondrial lipid transport and biosynthesis: A complex balance. J Cell Biol. 2016;214(1):9-11.
- Fuhrmann DC, Brüne B. Mitochondrial composition and function under the control of hypoxia. Redox Biol. 2017;12:208-215.
- Strubbe-Rivera JO, et al. The mitochondrial permeability transition phenomenon elucidated by cryo-EM reveals the genuine impact of calcium overload on mitochondrial structure and function. Sci Rep. 2021;11(1):1037.
- Vercesi AE, et al. Mitochondrial calcium transport and the redox nature of the calcium-induced membrane permeability transition. Free Radic Biol Med. 2018;129:1-24.
- Chistiakov DA, et al. Mitochondrial aging and age-related dysfunction of mitochondria. Biomed Res Int. 2014;2014:238463.
- Daum B, Walter A, Horst A, Osiewacz HD, et al. Age-dependent dissociation of ATP synthase dimers and loss of inner-membrane cristae in mitochondria. Proc Natl Acad Sci U S A. 2013;110(38):15301-15306.
- Brandt T, et al. Changes of mitochondrial ultrastructure and function during ageing in mice and Drosophila. eLife. 2017;6:e24662.
- Liu YJ, McIntyre RL, Janssens GE, Houtkooper RH. Mitochondrial fission and fusion: A dynamic role in aging and potential target for age-related disease. Mech Ageing Dev. 2020;186:111212.
- Zhang X, et al. Mitochondrial dysfunction in the regulation of aging and aging-related diseases. Cell Commun Signal. 2025;23(1):290.
- Rottenberg H, Hoek JB. The mitochondrial permeability transition: Nexus of aging, disease and longevity. Cells. 2021;10(1):79.
- Ekblom-Bak E, et al. Sex- and age-specific associations between cardiorespiratory fitness, cardiovascular disease morbidity and all-cause mortality in 266,109 adults. Prev Med. 2019;127:105799.
- Harber MP, et al. Impact of cardiorespiratory fitness on all-cause and disease-specific mortality: Advances since 2009. Prog Cardiovasc Dis. 2017;60(1):11-20.
- Goulding RP, et al. Skeletal muscle mitochondrial fragmentation predicts age-associated decline in physical capacity. Aging Cell. 2025;24(2):e14386.
- Amorim JA, et al. Mitochondrial and metabolic dysfunction in ageing and age-related diseases. Nat Rev Endocrinol. 2022;18(4):243-258.
- Srivastava S. The mitochondrial basis of aging and age-related disorders. Genes (Basel). 2017;8(12):398.
- Toescu EC, Myronova N, Verkhratsky A. Age-related structural and functional changes of brain mitochondria. Cell Calcium. 2000;28(5-6):329-338.
- Reed AL, Mitchell W, Alexandrescu AT, Alder NN. Interactions of amyloidogenic proteins with mitochondrial protein import machinery in aging-related neurodegenerative diseases. Front Physiol. 2023;14:1263420.
- Reeve AK, et al. Mitochondrial dysfunction within the synapses of substantia nigra neurons in Parkinson's disease. NPJ Parkinsons Dis. 2018;4:9.
- Chen C, et al. Astrocytic changes in mitochondrial oxidative phosphorylation protein levels in Parkinson's disease. Mov Disord. 2022;37(2):302-314.
- Patyal P, et al. Mitochondrial dynamics in aging heart. Biomedicines. 2025;13(11):2603.
- Hinton A, et al. Mitochondrial structure and function in human heart failure. Circ Res. 2024;135(2):372-396.
- Bernardi P, et al. Identity, structure, and function of the mitochondrial permeability transition pore: Controversies, consensus, recent advances, and future directions. Cell Death Differ. 2023;30(8):1869-1885.
- Wang D, Ji DC, Yu CY, Wu DN, Qi L. Research progress on the mitochondrial mechanism of age-related non-alcoholic fatty liver. World J Gastroenterol. 2023;29(13):1982-1993.
- Lionetti L, et al. High-lard and high-fish-oil diets differ in their effects on function and dynamic behaviour of rat hepatic mitochondria. PLoS One. 2014;9(3):e92753.
- Mitchell W, et al. The mitochondria-targeted peptide SS-31 binds lipid bilayers and modulates surface electrostatics as a key component of its mechanism of action. J Biol Chem. 2020;295(21):7452-7469.
- Roshanravan B, et al. In vivo mitochondrial ATP production is improved in older adult skeletal muscle after a single dose of elamipretide in a randomized trial. PLoS One. 2021;16(7):e0253849.
- Sabbah HN, et al. Chronic therapy with elamipretide (MTP-131), a novel mitochondria-targeting peptide, improves left ventricular and mitochondrial function in dogs with advanced heart failure. Circ Heart Fail. 2016;9(2):e002206.
- Finsterer J. Barth syndrome: Mechanisms and management. Appl Clin Genet. 2019;12:95-106.
- Mitchell W, et al. The mitochondria-targeted peptide therapeutic elamipretide improves cardiac and skeletal muscle function during aging without detectable changes in tissue epigenetic or transcriptomic age. Aging Cell. 2025;24(6):e70026.
- Pharaoh G, et al. The mitochondrially targeted peptide elamipretide (SS-31) improves ADP sensitivity in aged mitochondria by increasing uptake through the adenine nucleotide translocator (ANT). GeroScience. 2023;45(6):3529-3548.
- Campbell MD, et al. Improving mitochondrial function with SS-31 reverses age-related redox stress and improves exercise tolerance in aged mice. Free Radic Biol Med. 2019;134:268-281.
- Campbell MD, et al. Intermittent treatment with elamipretide preserves exercise tolerance in aged female mice. GeroScience. 2023;45(4):2245-2255.
- Ryu D, et al. Urolithin A induces mitophagy and prolongs lifespan in C. elegans and increases muscle function in rodents. Nat Med. 2016;22(8):879-888.
- Liu S, et al. Effect of urolithin A supplementation on muscle endurance and mitochondrial health in older adults: A randomized clinical trial. JAMA Netw Open. 2022;5(1):e2144279.
- Singh A, et al. Urolithin A improves muscle strength, exercise performance, and biomarkers of mitochondrial health in a randomized trial in middle-aged adults. Cell Rep Med. 2022;3(5):100633.
- Liu S, et al. Urolithin A provides cardioprotection and mitochondrial quality enhancement preclinically and improves human cardiovascular health biomarkers. iScience. 2025;28(2):111814.
- Fontaine E. Metformin-induced mitochondrial complex I inhibition: Facts, uncertainties, and consequences. Front Endocrinol (Lausanne). 2018;9:753.
- Martin-Montalvo A, et al. Metformin improves healthspan and lifespan in mice. Nat Commun. 2013;4(1):2192.
- Lee SH, Min KJ. Caloric restriction and its mimetics. BMB Rep. 2013;46(4):181-187.
- Pal RS, et al. Metformin's anticancer odyssey: Revealing multifaceted mechanisms across diverse neoplastic terrains—a critical review. Biochimie. 2025;233:109-121.
- Zhang JH, et al. Metformin use is associated with a reduced risk of cognitive impairment in adults with diabetes mellitus: A systematic review and meta-analysis. Front Neurosci. 2022;16:984559.
- Keys MT, Hallas J, Miller RA, Suissa S, Christensen K. Emerging uncertainty on the anti-aging potential of metformin. Ageing Res Rev. 2025;111:102817.
- Khan NA, et al. Effective treatment of mitochondrial myopathy by nicotinamide riboside, a vitamin B3. EMBO Mol Med. 2014;6(6):721-731.
- Cantó C, et al. The NAD+ precursor nicotinamide riboside enhances oxidative metabolism and protects against high-fat diet-induced obesity. Cell Metab. 2012;15(6):838-847.
- Lapatto HAK, et al. Nicotinamide riboside improves muscle mitochondrial biogenesis, satellite cell differentiation, and gut microbiota in a twin study. Sci Adv. 2023;9(2):eadd5163.
- Zhou Q, et al. Nicotinamide riboside enhances mitochondrial proteostasis and adult neurogenesis through activation of mitochondrial unfolded protein response signaling in the brain of ALS SOD1(G93A) mice. Int J Biol Sci. 2020;16(2):284-297.
- Harrison DE, et al. 17-α-Estradiol late in life extends lifespan in aging UM-HET3 male mice; nicotinamide riboside and three other drugs do not affect lifespan in either sex. Aging Cell. 2021;20(5):e13328.
- Wu J, et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 2021;11(5):e3988.
- Wehrl HF, et al. Assessment of murine brain tissue shrinkage caused by different histological fixatives using magnetic resonance and computed tomography imaging. Histol Histopathol. 2015;30(5):601-613.
- Mitchell W, et al. In vivo chemical reprogramming is associated with a toxic accumulation of lipid droplets hindering rejuvenation. Aging Cell. 2026;25(2):e70390.
- Liaw A, Wiener MC. Classification and regression by randomForest. R News. 2002;2(3):18-22.
- Kuhn M. Building predictive models in R using the caret package. J Stat Softw. 2008;28(5):1-26.
- Thorndike RL. Who belongs in the family? Psychometrika. 1953;18(4):267-276.
- MacQueen J. Some methods for classification and analysis of multivariate observations. Proceedings of the 5th Berkeley Symposium on Mathematical Statistics and Probability Oakland, CA, USA. 1967:281-297.
- Hartigan JA, Wong MA. Algorithm AS 136: A K-means clustering algorithm. J R Stat Soc Ser C Appl Stat. 1979;28(1):100-108.
- Chaudhry A, Shi R, Luciani DS. A pipeline for multidimensional confocal analysis of mitochondrial morphology, function, and dynamics in pancreatic β-cells. Am J Physiol Endocrinol Metab. 2020;318(2):E87-E101.
- Schindelin J, et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-682.
- Negri E, Fernández V, Borrell V. MitoLandscape, a semi-automated pipeline for subcellular localization and quantification of mitochondria. Front Cell Dev Biol. 2025;13:1668779.
- Ng EL, Reed AL, O'Connell CB, Alder NN. Using live-cell STED imaging to visualize mitochondrial inner membrane ultrastructure in neuronal cell models. J Vis Exp. 2023;196:e65561.
- Yang X, et al. Mitochondrial dynamics quantitatively revealed by STED nanoscopy with an enhanced squaraine variant probe. Nat Commun. 2020;11(1):3699.
- Liu T, et al. Multi-color live-cell STED nanoscopy of mitochondria with a gentle inner membrane stain. Proc Natl Acad Sci U S A. 2022;119(52):e2215799119.
- Chen J, et al. An aldehyde-crosslinking mitochondrial probe for STED imaging in fixed cells. Proc Natl Acad Sci U S A. 2024;121(19):e2317703121.
- Das S, et al. Mitochondrial morphology and dynamics in hepatocytes from normal and ethanol-fed rats. Pflugers Arch. 2012;464(1):101-109.
- McCarron JG, et al. From structure to function: Mitochondrial morphology, motion and shaping in vascular smooth muscle. J Vasc Res. 2013;50(5):357-371.
- Lea PJ, Hollenberg MJ. Mitochondrial structure revealed by high-resolution scanning electron microscopy. Am J Anat. 1989;184(3):245-257.
- McMillan JD, Eisenback MA. Transmission electron microscopy for analysis of mitochondria in mouse skeletal muscle. Bio Protoc. 2018;8(10):e2455.
- Teixeira P, Galland R, Chevrollier A. Super-resolution microscopies: Technological breakthrough to decipher mitochondrial structure and dynamic. Semin Cell Dev Biol. 2024;159-160:38-51.
- Neikirk K, et al. Systematic transmission electron microscopy-based identification and 3D reconstruction of cellular degradation machinery. Adv Biol (Weinh). 2023;7(6):2200221.
- Lam J, et al. A universal approach to analyzing transmission electron microscopy with ImageJ. Cells. 2021;10(9):2177.
- Jang C, Lee H, Yoo J, Yoon H. Deep learning-driven automated mitochondrial segmentation for analysis of complex transmission electron microscopy images. Sci Rep. 2025;15(1):19076.
- Conrad R, Narayan K. Instance segmentation of mitochondria in electron microscopy images with a generalist deep learning model trained on a diverse dataset. Cell Syst. 2023;14(1):58-71.e5.
- Garcia GC, et al. Mitochondrial morphology provides a mechanism for energy buffering at synapses. Sci Rep. 2019;9(1):18306.
- López-Otín C, Blasco MA, Partridge L, Serrano M, et al. Hallmarks of aging: An expanding universe. Cell. 2023;186(2):243-278.
- Mannella CA, Lederer WJ, Jafri MS. The connection between inner membrane topology and mitochondrial function. J Mol Cell Cardiol. 2013;62:51-57.
- Glancy B, Kim Y, Katti P, Willingham TB. The functional impact of mitochondrial structure across subcellular scales. Front Physiol. 2020;11:541040.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny