W niniejszej pracy przedstawiamy protokół sekcji pozwalający na zachowanie szyszynki, która często zostaje utracona podczas usuwania mózgu z oczodołu czaszki. Protokół ten zapewnia zachowanie szyszynki w preparatach embrionalnych i wczesnopostnatalnych mózgów myszy do dalszych zastosowań, w tym immunohistochemii, hybrydyzacji in situ oraz transkryptomiki przestrzennej.
Artykuł metodologiczny
Konserwacja szyszynki w preparatach mózgu myszy w okresie okołoporodowym
122 wyświetleń
⸱
11 września 2026
W tym artykule
Podsumowanie
Streszczenie
Szyszynka, struktura neuroendokrynna wydzielająca melatoninę, powstaje z zawiązka w linii środkowej grzbietowej embrionalnego przedmózgowia. W 14,5 dniu embrionalnym (E) u myszy widoczne jest wypuklenie dywertikulum szyszynkowego z dachuwągu między sparowanymi pęcherzykami telencephalicznymi. Dywertikulum to znajduje się w bliskim kontakcie z nadległą tkanką chrzęstną, oponową i naczyniową. Jest ono łatwo uszkadzane podczas otwierania sklepienia czaszki w celu wyjęcia mózgu w późnych stadiach embrionalnych lub wczesnych stadiach postnatalnych. Pomimo jej istotnej roli neuroendokrynnej, wczesny rozwój szyszynki oraz mechanizmy sygnalizacyjne regulujące ten proces pozostają słabo poznane, co wynika częściowo z trudności w zachowaniu tej struktury w całości podczas embrionalnych etapów rozwoju mózgu myszy.
Niniejszy artykuł przedstawia innowacyjną procedurę sekcji, która pozwala na zachowanie szyszynki przy jednoczesnym utrzymaniu jej integralności strukturalnej oraz przytwierdzenia do dachu diencefalonu podczas izolacji mózgu od etapów embrionalnych aż do 7. dnia postnatalnego (P7). Procedura została zademonstrowana na mózgu myszy w stadium E18.5 i jest zatem odpowiednia do dalszych zastosowań wymagających zachowania architektury tkankowej, w tym hybrydyzacji in situ, immunohistochemii oraz transkryptomiki przestrzennej. Protokół może być również wykorzystany do izolacji rozwijającej się szyszynki, co pozwala na poprawę reprezentacji specyficznej dla szyszynki w analizach transkryptomicznych i proteomicznych, co w przeciwnym razie jest trudne ze względu na jej niewielki rozmiar.
Wprowadzenie
Szyszynka jest małą strukturą neuroendokrynną położoną w linii środkowej grzbietowej mózgu kręgowców i odgrywa centralną rolę w regulacji fizjologii okołodobowej poprzez rytmiczne wydzielanie melatoniny1,2. Podczas embriogenezy ssaków szyszynka powstaje z linii środkowej grzbietowej rozwijającego się przedmózgu. U myszy rozwój szyszynki rozpoczyna się, gdy wyspecjalizowany obszar grzbietowego neuroepithelium wzdółgłowia tworzy zrąb szyszynki/recessus pinealis, który następnie wyewaginuje, tworząc dywertikulum szyszynki w 14,5 dniu embrionalnym (E)3,4,5. Dywertikulum to jest przytwierdzone do dachu wzdółgłowia i widoczne między sparowanymi pęcherzykami końcowomózgu. W miarę postępu rozwoju dywertikulum to ściśle wiąże się z nadkładającymi go strukturami w linii środkowej grzbietowej mózgu, w szczególności z zatoką sagitalną górną (SSS) oraz zatoką poprzeczną (TS), czyli kanałami żylnymi biegnącymi wzdłuż powierzchni grzbietowej przedmózgu6. Rozwijająca się szyszynka znajduje się bezpośrednio pod przecięciem SSS i TS, a jej delikatne przytwierdzenie do grzbietowego wzdółgłowia jest szczególnie narażone na uszkodzenie podczas usuwania nadkładających struktur naczyniowo-oponowych w celu wydobycia mózgu z kopuły czaszki7. Sprawia to, że szyszynka jest szczególnie podatna na urazy, gdyż może zostać oderwana podczas otwierania kopuły czaszki w celu ekstrakcji mózgu. W rezultacie szyszynka jest często tracona podczas rutynowych sekcji, co ogranicza analizę jej struktury i składu molekularnego w preparatach nienaruszonych.
W niniejszym opracowaniu przedstawiamy szczegółowy protokół sekcji mózgu myszy z zachowaniem szyszynki oraz jej połączenia z dachem diencefalonu. Metoda ta znajduje zastosowanie w etapach embrionalnych od E16.5 aż do wczesnych etapów postnatalnych (P7) i jest odpowiednia do badań rozwoju szyszynki z wykorzystaniem hybrydyzacji in situ, immunohistochemii oraz transkryptomiki przestrzennej. Jako przykład zastosowań następczych zaprezentowano hybrydyzację in situ oraz immunohistochemię dla markeru CRX, który wykazuje wysoką ekspresję w szyszynce.
Kluczową innowacją w tej metodzie jest zminimalizowanie naprężeń struktur linii środkowej poprzez staranne usunięcie fizycznych połączeń, które w przeciwnym razie spowodowałyby oderwanie szyszynki podczas wyjmowania mózgu z czaszki. Stanowi to ulepszenie w stosunku do standardowej procedury.
Ta metoda sekcji jest ograniczona do etapów do P7, ponieważ postępująca kostnienie sklepienia czaszki podczas wczesnego rozwoju ponatalnego zwiększa sztywność czaszki i wzmacnia jej połączenie ze strukturami oponowymi i naczyniowymi. Chociaż w kilku badaniach opisano procedury sekcji szyszynki u dorosłych gryzoni8, bardzo niewiele z nich skupiało się na zachowaniu szyszynki podczas etapów embrionalnych i wczesnych etapów ponatalnych, kiedy gruczoł ten jest szczególnie kruchy i podatny na uszkodzenia podczas izolacji mózgu.
Protokół
Wszystkie procedury zostały zatwierdzone i przeprowadzono zgodnie z wytycznymi Instytucjonalnej Komisji Etyki Badań na Zwierzętach w Tata Institute of Fundamental Research.
1. Przygotowanie materiałów
- Przed rozpoczęciem procedury należy upewnić się, że wszystkie niezbędne instrumenty do mikrodysekcji (patrz Tabela Materiałów) są przygotowane. Wszystkie instrumenty należy wysterylizować za pomocą 70% etanolu. W przypadku zbierania preparatów do dalszych zastosowań, takich jak transkryptomika przestrzenna/hybrydyzacja in situ, instrumenty należy przetrzeć roztworem do dekontaminacji RNaz.
- Stolik mikroskopu dysekcyjnego należy wyczyścić roztworem do dekontaminacji RNaz, a w pobliżu stanowiska dysekcyjnego należy przygotować butelkę lodowatego 1× PBS.
- Przed przystąpieniem do tej procedury należy przygotować następujące instrumenty i wyroby plastikowe:
- Do przygotowania zwierzęcia: 2 pary pęset tępych, 1 para nożyczek chirurgicznych, 2 szalki Petriego (10 cm), kilka szalek Petriego (6 cm; w zależności od potrzeb, jedna dla każdej głowy).
- Do izolacji mózgu: 1 para pęset nr 5, 1 para pęset nr 5, 1 para nożyczek do mikrodysekcji oraz probówki/szalki do zbierania próbek, dostosowane do dalszego zastosowania.
- UWAGA: Jeśli dalsze zastosowanie obejmuje hybrydyzację in situ lub transkryptomikę przestrzenną, przed użyciem należy wyczyścić instrumenty do dysekcji roztworem do dekontaminacji RNaz.
2. Przygotowanie zwierząt
- Postępuj zgodnie z krokami (2.1.1– 2.1.6) dla zwierząt w stadiach E14.5–P0
- Uśmierć ciężarną samicę zgodnie z wytycznymi Instytucjonalnej Komisji Etyki ds. Doświadczeń na Zwierzętach. W przedstawionym przykładzie samica została uśmiercona poprzez zwichnięcie stawów szyjnych.
- Wykonaj nacięcie w linii środkowej w jamie brzusznej ciężarnej samicy, aby odsłonić macicę. Używając pęsety tępej, ostrożnie wyciągnij rogi macicy i umieść je w sterylnej szalce 10 cm zawierającej lodowaty 1× PBS.
- Ostrożnie wyizoluj poszczególne płody, oddzielając je od otaczającego pęcherzyka płodowego i łożyska.
- Przenieś płody do nowej szalki Petriego 10 cm zawierającej lodowaty 1× PBS i utrzymuj na lodzie do momentu pobrania każdego z nich w celu izolacji mózgu. Przenieś pojedynczy płód do szalki Petriego 6 cm zawierającej lodowaty PBS.
- W przypadku etapów postnatalnych do P7, uśmierć szczenię zgodnie z wytycznymi Instytucjonalnej Komisji Etyki ds. Doświadczeń na Zwierzętach. Następnie przejdź do kroku 2.1.6.
- Używając nożyczek chirurgicznych, oddziel głowę od ciała w taki sposób, aby móżdżek i rdzeń przedłużony pozostały w części głowy, co ochroni przedmózgowie przed przypadkowym uszkodzeniem.
- Przemyj głowę zimnym PBS, aby usunąć krew. Przenieś ją do nowej szalki Petriego 6 cm zawierającej lodowaty 1× PBS. Utrzymuj głowę zanurzoną w PBS, aby krew i zanieczyszczenia były wypłukiwane podczas kolejnych etapów sekcji.
3. Procedura sekcji w celu wyizolowania mózgu z nienaruszoną szyszynką
UWAGA: Wszystkie poniższe kroki należy wykonać przy użyciu mikroskopu stereoskopowego. Dostosuj powiększenie do co najmniej 2× (lub według potrzeb), aby wyraźnie widzieć mózg i otaczające go struktury podczas całej sekcji. Cały proces sekcji powinien być przeprowadzany w lodowatym PBS, aby zminimalizować degradację RNA i białek. W krokach 3.1–3.10 używaj niedominującej ręki do mocnego trzymania i stabilizacji głowy przez cały czas trwania procedury, zgodnie z instrukcjami w kroku 3.1. Kroki 3.2–3.9 należy wykonywać, stabilizując głowę niedominującą ręką, natomiast do precyzyjnych czynności używaj ręki dominującej, zaczynając od pęsety nr 5, a następnie zmieniając ją na pęsetę nr 5 lub nożyczki do mikrosekcji, zgodnie z opisem dla każdego kroku.
- W niedominującej dłoni użyj pęsety nr 5. Wsuń oba ramiona pęsety w oczodoły zdecydowanym ruchem w dół. Utrzymuj nacisk w dół, aby przytwierdzić mózg do dna szalki Petriego aż do zakończenia kroku 3.9.
UWAGA: Mózg spoczywa powyżej oczodołów i nie jest dotknięty wprowadzeniem pęsety do oczodołów. Utrzymywanie stałego nacisku w dół stabilizuje mózg podczas całej sekcji. - Używając dominującej dłoni, odщиp i usuń skórę pokrywającą głowę za pomocą pęsety nr 5.
UWAGA: Na tym etapie widoczna jest gładka chalastruka (chondrokranium) pokrywająca mózg. - Usuń część chondrokranium nadlegającą nad śródmózgowie i tylny mózg w następujący sposób:
- Użyj pęsety nr 5, aby wykonać dwa nacięcia penetrujące w chondrokranium po obu stronach śródmózgowia, dokładnie w miejscu jego połączenia z końcem mózgu (telencephalon).
- Wsuń jedno ramię pęsety nr 5 stycznie pod chondrokranium wzdłuż wyobrażonej linii stycznej oddzielającej telencephalon od śródmózgowia. Mocno chwyć i rozerwij chondrokranium.
- Kontynuuj usuwanie chondrokranium tak, aby odsłonić śródmózgowie i tylny mózg.
- Zmień narzędzie na pęsetę nr 5. Wsuń jedno ramię tuż pod krawędź tylnego brzegu chondrokranium nadlegającego nad telencephalon. Delikatnie oddziel chondrokranium, odrywając wszelkie połączenia z tkankami naczyniowymi i oponowymi.
- Używając nożyczek do mikrodysekcji, przetnij wzdłuż grzbietowej linii środkowej telencephalonu w kierunku opuszki węchowej. Używając zamkniętej pęsety nr 55, delikatnie usuń wszelkie przyczepy chondrokranium do mózgu. Rozdziel dwie połowy chondrokranium pokrywające półkule telencephalonu za pomocą pęsety nr 5.
UWAGA: Na tym etapie SSS jest widoczna jako ciemnoczerwona żyła wzdłuż górnego brzegu chondrokranium w mózgu, a TS jest widoczna prostopadle do SSS. - Szyszynka znajduje się tuż pod SSS. Wykonaj nacięcie na przednim (rostralnym) końcu SSS za pomocą nożyczek do mikrodysekcji.
- Używając pęsety nr 55, całkowicie usuń grzbietową część chondrokranium z każdej strony, aby lepiej odsłonić szyszynkę, SSS oraz TS.
- Wykonaj dwa nacięcia w TS po obu stronach szyszynki za pomocą nożyczek do mikrodysekcji. Używając pęsety nr 5, odłącz boczne przyczepy TS.
- Używając zamkniętej pęsety nr 5, delikatnie oddziel przednią część mózgu od brzusznej sklepienia czaszki. Wsuń zamkniętą pęsetę pod stronę brzuszną mózgu, całkowicie go uwalniając.
- Przechowuj mózg z nienaruszoną szyszynką w sposób odpowiedni dla dalszych zastosowań.
4. Krytyczne etapy protokołu
UWAGA: Powodzenie tego protokołu sekcji zależy od ostrożnego obchodzenia się z połączeniami naczyniowymi otaczającymi szyszynkę. Poniższe punkty są kluczowe dla zachowania nienaruszonej struktury szyszynki podczas całej procedury sekcji:
- Ustabilizuj głowę, wkładając zęby pęsety nr 5 w oba oczodoły, i utrzymuj silny nacisk w dół przez cały czas trwania kroków 3.1–3.9. Zapewnia to stabilne podparcie, unikając jednoczesnego bezpośredniego nacisku na mózg.
- Podczas usuwania chondrokranium (krok 3.3) unikaj nadmiernego ciągnienia lub odrywania, ponieważ czynności te mogą doprowadzić do oddzielenia szyszynki od grzbietowej części diencefalonu.
- Podczas usuwania przyczepów oponowych i naczyniowych (krok 3.4) oraz podczas otwierania grzbietowej części chondrokranium telencefalonu (krok 3.5) używaj wyłącznie końcówek pęsety nr 5. Głębokie wprowadzenie pęsety może uszkodzić szyszynkę, która znajduje się bezpośrednio pod kaudalnym dachem telencefalonu.
- Przed wyjęciem mózgu wykonaj całkowite przecięcie zatoki strzałkowej górnej (krok 3.6) oraz obustronne przecięcie zatoki poprzecznej (krok 3.8). Cięcia te zmniejszają napięcie w grzbietowej sieci żylnej i zapobiegają odrywaniu szyszynki podczas usuwania mózgu.
- W kroku 3.9 delikatnie odsuń mózg za pomocą zamkniętej pęsety, nie dopuszczając do naruszenia grzbietowej linii środkowej. Mózg powinien swobodnie oddzielić się od sklepienia czaszki po zwolnieniu wszystkich przyczepów oponowych i naczyniowych.
Wyniki
Niniejszy protokół sekcji umożliwia spójną izolację embrionalnych i wczesnych postnatalnych mózgów myszy od E16.5–P7 z zachowaniem szyszynki w jej naturalnej pozycji anatomicznej (Rysunek 1).
Stopniowe usuwanie chondrokranium, połączone z ostrożnym oddzieleniem przylepów oponowych i naczyniowych, zapobiega przypadkowemu wystąpieniu sił ścinających działających na szyszynkę. Ponadto kontrolowane przerwanie zatoki strzałkowej górnej (SSS) na jej końcu rostralnym, wraz z obustronnymi cięciami w zatokach poprzecznych (TS), skutecznie znosi napięcie w grzbietowej sieci naczyniowej. Chroni to szyszynkę przed oderwaniem podczas późniejszej ekstrakcji mózgowia. W rezultacie szyszynka pozostaje nienaruszona i przytwierdzona do linii środkowej diencephalon po wyizolowaniu mózgowia z oczodołu czaszkowego (Rycina 2A).
Aby przetestować integralność zakonserwowanej szyszynki oraz jej przydatność do dalszych zastosowań, przeprowadzono hybrydyzację in situ dla markera szyszynki Crx oraz immunohistochemię dla białka CRX9,10(Ryc. 2B–D). Potwierdziło tożsamość i integralność strukturalną szyszynki.
Protokół sekcji został zwalidowany na wielu etapach rozwojowych, a szyszynka pozostała nienaruszona w zdecydowanej większości prób: E16.5 (N = 10), E18.5 (N = 15), P0 (N = 10) oraz P7 (N = 6). Dowodzi to, że metoda jest niezawodna i wysoce powtarzalna w zakresie zachowania szyszynki podczas izolacji mózgu w okresie embrionalnym i wczesnym postnatalnym (Ryc. 2E).
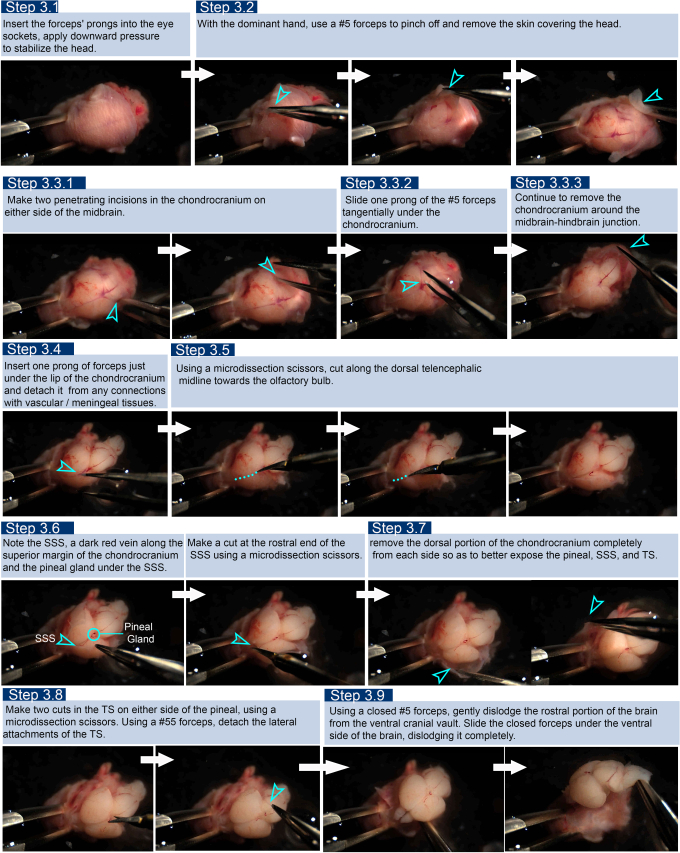
Rycina 1: Klatki z filmu przedstawiające procedurę krok po kroku izolacji mózgu myszy w stadium E18.5 z zachowaniem nienaruszonej szyszynki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
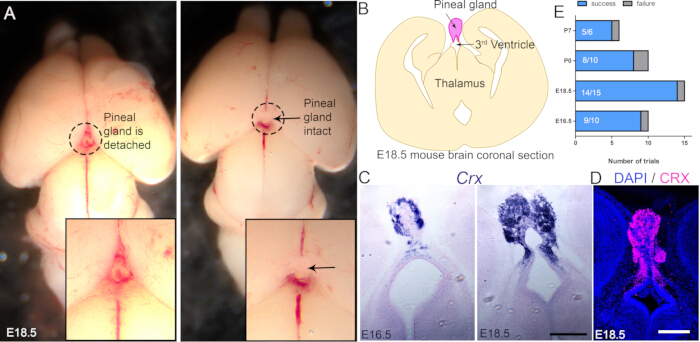
Rycina 2Reprezentatywne wyniki. (A) Reprezentatywne przykłady dwóch mózgów mysich w stadium E18.5, w których szyszynka została oddzielona podczas standardowej procedury sekcji (lewo), w porównaniu z mózgiem, w którym szyszynka pozostała nienaruszona dzięki zastosowaniu opisaną metodą (prawo). (B) Schematyczny rysunek przekroju czołowego embrionu w dniu E18.5, na którym szyszynka zaznaczona jest kolorem różowym. (C) In situ hybrydyzacja dla Crx w dniach E16.5 i E18.5, co wykazuje ekspresję specyficzną dla szyszynki. (D) Barwienie immunohistochemiczne białka CRX w dniu E18,5. (E) Wykres słupkowy przedstawiający odsetek sukcesów (mózg wyizolowany z nienaruszoną szyszynką) i niepowodzeń (szyszynka uszkodzona lub utracona) protokołu w embrionalnych (E16,5 i E18,5) oraz postnatalnych (P0 i P7) etapach rozwoju. Paski skali: 100 µmN = 6 powtórzeń biologicznych dla A, C i D. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Dyskusja
Opracowano zestandaryzowane metody sekcji szyszynki dla ludzkiego mózgu płodowego i niemowlęcego, co pomaga patomorfologom sądowym w zrozumieniu przyczyn zespołu nagłej śmierci łóżeczkowej1. Wcześniejsze protokoły wykazały usuwanie szyszynki wraz z naczyniami powierzchniowymi, oponami mózgowymi i splotem naczyniowym12; jednak nie opisano metod pozwalających na niezawodne zachowanie nienaruszonej szyszynki przymocowanej do dachu Zwischenhirn (diencefalonu) podczas wczesnych etapów jej rozwoju u myszy lub innych gryzoni.
Większość klasycznej literatury anatomicznej i metodologicznej opisującej pinealektomię oraz analizę została opracowana z wykorzystaniem modeli szczurzych13, u których gruczoł jest większy i łatwiejszy do zidentyfikowania. W przeciwieństwie do nich, szyszynka myszy jest znacznie mniejsza i bardziej delikatna, co czyni ją szczególnie podatną na zagubienie lub uszkodzenie podczas rutynowych procedur wyjmowania mózgu. W niektórych badaniach próbowano rozwiązać ten problem poprzez utrwalanie mózgu wraz z całą głową. Wprowadza to jednak dodatkowe ograniczenia techniczne podczas przygotowywania tkanki do sekcjonowania. Na przykład podczas krioprotekcji w 30% sacharozy po utrwaleniu w 4% paraformaldehydzie, sklepienie czaszki może wywierać nacisk na leżącą pod nim tkankę mózgową, co prowadzi do kompresji lub zniekształcenia struktur grzbietowych przedmózgowia. Takie artefakty mogą zaburzyć morfologię mózgu i utrudnić analizy opierające się na dokładnej organizacji anatomicznej. Ponadto utrwalanie tkanki może nie być odpowiednie dla wszystkich zastosowań. W związku z tym, aby ułatwić badania rozwojowe i molekularne szyszynki u myszy, konieczne są metody, które chronią gruczoł szyszynkowy i zachowują jego przytwierdzenie do dachu diencefalonu, nie naruszając przy tym ogólnej integralności mózgu.
Niezawodne zachowanie szyszynki w nienaruszonych preparatach mózgu jest istotne dla wielu zastosowań eksperymentalnych. Metody histologiczne i molekularne, takie jak immunohistochemia i hybrydyzacja in situ, wymagają zachowania architektury tkanki w celu zbadania ekspresji genów i organizacji komórkowej w obrębie gruczołu. W ostatnim czasie rozwijające się technologie, takie jak transkryptomika przestrzenna i inne metody profilowania molekularnego z rozdzielczością przestrzenną, opierają się również na nienaruszonej morfologii tkanki, aby mapować ekspresję genów w konkretnych kontekstach anatomicznych. Do tej pory nie opisano żadnej mapy transkryptomicznej przestrzennej szyszynki zarodka myszy. Może to częściowo wynikać z trudności technicznych związanych z zachowaniem nienaruszonej szyszynki podczas konwencjonalnej sekcji mózgu. W związku z tym metody, które niezawodnie utrzymują integralność szyszynki, prawdopodobnie ułatwią zastosowanie nowoczesnych podejść transkryptomiki przestrzennej w badaniach nad biologią szyszynki. Ponadto, ponieważ szyszynka stanowi bardzo niewielką część całkowitej tkanki mózgowej, izolacja mózgu z nienaruszoną szyszynką umożliwia późniejszy dodatkowy etap specyficznego pobrania szyszynki, a łączenie takich próbek znacznie poprawiłoby wzbogacenie reprezentacji specyficznej dla szyszynki w analizach zbiorczych (bulk analysis) w badaniach transkryptomicznych i proteomicznych.
Należy dokładnie ustabilizować głowę za pomocą pęsety nr 5 trzymanej w niedominującej dłoni. Stabilizacja ta musi być utrzymana przez cały proces sekcji; w związku z tym dominująca dłoń musi zarządzać zmianą instrumentów w zależności od potrzeb. Dostosuj oświetlenie, aby lepiej widzieć przyczepy szyszynki do nadległej tkanki naczyniowo-oponowej, które należy usunąć.
Oświadczenia
Wszyscy autorzy oświadczają, że nie istnieją żadne konflikty interesów.
Podziękowania
Dziękujemy dr Shital Suryavanshi oraz pracownikom domu dla zwierząt w Tata Institute of Fundamental Research za doskonałe wsparcie. Dziękujemy dr Sundar Naganathan za uprzejme udostępnienie stereoskopowego makroskopowego mikroskopu zoom Olympus MVX10 w jego laboratorium w celu nagrania wideo z procedury. Praca ta została sfinansowana z grantu Departamentu Energii Atomowej (DAE) Rządu Indii, numery identyfikacyjne projektu RTI403 i RTI4015 (ST); grantu ICMR-DHR SUG, GAP0303 oraz grantu ANRF PMECRG GAP0313 (AP).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Mikroskop w świetle przechodzącym | Olympus | IX73 | Odpowiedni jest dowolny mikroskop w świetle przechodzącym z kamerą kolorową. |
| Mikroskop konfokalny | Olympus | FV30 | W zależności od wymaganej rozdzielczości odpowiedni jest dowolny mikroskop konfokalny lub epifluorescencyjny |
| Przeciwciało CRX | Invitrogen | PA5-32182 | Protokół immunobarwienia opisany w Parichha et al.9. |
| Sonda CRX | Custom made | Custom made | Protokół hybrydyzacji in situ Parichha et al.10. |
| Precyzyjna pęseta # 5 | F.S.T | 1251-23 | Można zastąpić podobnymi narzędziami dowolnego producenta. |
| Precyzyjna pęseta # 5 | F.S.T | 125-20 | Można zastąpić podobnymi narzędziami dowolnego producenta. |
| PBS, pH 7.4 | Gibco | 101023 | Można zastąpić podobnymi produktami dowolnego producenta. |
| Szalka Petriego | Corning | CLS351029 | Można zastąpić podobnymi produktami dowolnego producenta. |
| RNaseZap | Invitrogen | AM9782 | RNaseZap RNase Decontamination Solution to roztwór do dekontaminacji powierzchni, który niszczy RNazy w kontakcie z nimi |
| Nożyczki sprężynowe (nożyczki do mikrodyssekcji) | F.S.T | 15020-15 | Można zastąpić podobnymi narzędziami dowolnego producenta. |
| Stereomikroskop z zoomem | Nikon | SMZ745 | Odpowiedni jest dowolny mikroskop do dyssekcji |
Bibliografia
- Nakahara D, Nakamura M, Iigo M, Okamura H. Bimodal circadian secretion of melatonin from the pineal gland in a living CBA mouse. Proc Natl Acad Sci U S A. 2003;100(16):9584-9.
- Christ E, Pfeffer M, Korf HW, von Gall C. Pineal melatonin synthesis is altered in Period1-deficient mice. Neuroscience. 2010;171(2):398-406.
- Rath MF. Homeobox gene-encoded transcription factors in development and mature circadian function of the rodent pineal gland. J Pineal Res. 2024;76(3):e12950.
- Rath MF, Rohde K, Klein DC, Møller M. Homeobox genes in the rodent pineal gland: roles in development and phenotype maintenance. Neurochem Res. 2013;38(6):1100-12.
- Estivill-Torrús G, Vitalis T, Fernández-Llebrez P, Price DJ. The transcription factor Pax6 is required for development of the diencephalic dorsal midline secretory radial glia that form the subcommissural organ. Eur J Neurosci. 2001;14(6):1011-22.
- Dias M, et al. Transection of the superior sagittal sinus enables bilateral access to the rodent midline brain structures. eNeuro. 2021;8(4):ENEURO.0146-21.2021.
- Matsunaga MM, et al. Morphologic analysis of mice's pineal gland. J Morphol Sci. 2011;28(3):157-60.
- Boeckmann D. Morphological investigation of the deep pineal of the rat. Cell Tissue Res. 1980;210(2):283-94.
- Parichha A, et al. Constitutive activation of canonical Wnt signaling disrupts choroid plexus epithelial fate. Nat Commun. 2022;13:633.
- Parichha A, et al. Dentate gyrus morphogenesis is regulated by β-catenin function in hem-derived fimbrial glia. Development. 2022;149(21):dev200953.
- Sparks DL, Coyne CM, Sparks LM, Hunsaker JC 3rd. Recommended technique for brain removal to retain anatomic integrity of the pineal gland in order to determine its size in sudden infant death syndrome. J Forensic Sci. 1997;42(1):100-2.
- Bowyer JF, et al. A visual description of the dissection of the cerebral surface vasculature and associated meninges and the choroid plexus from rat brain. J Vis Exp. 2012;69:e4285.
- Calvo J, Boya J. Embryonic development of the rat pineal gland. Anat Rec. 1981;200(4):491-500.
Przedruki i uprawnienia
