Niniejszy przegląd syntetyzuje dowody dotyczące kontroli jakości mitochondriów (biogenezy, dynamiki i mitofagii) w poszczególnych etapach spermatogenezy, łącząc zmiany metaboliczne i przebudowę strukturalną z męską niepłodnością oraz identyfikując luki metodologiczne w celu wyznaczenia kierunków przyszłych badań.
Artykuł przeglądowy
Kontrola jakości mitochondriów: strażnik spermatogenezy
W tym artykule
Podsumowanie
Streszczenie
Męska niepłodność wzrasta na całym świecie. Spermatogeneza jest procesem wymagającym energetycznie i ściśle powiązanym z kontrolą jakości mitochondriów (MQC)—obejmującą biogenezę, dynamikę fuzji i fisji oraz mitofagię. W niniejszej pracy syntetyzujemy aktualne dowody dotyczące poszczególnych etapów rozwoju komórek linii zarodkowej, podkreślając specyficzne dla danych stadiów przejście z produkcji ATP wspieranej przez glikolizę na metabolizm zdominowany przez fosforylację oksydacyjną (OXPHOS) oraz przebudowę architektury mitochondriów w osłonkę części środkowej. Podsumowujemy dane genetyczne i funkcjonalne wskazujące na udział OPA1/MFN1-2 w fuzji błon wewnętrznej i zewnętrznej, DRP1/FIS1/MFF w fisji i organizacji osłonki, a także rolę mitofagii zależnej i niezależnej od PINK1–Parkin w kontroli jakości mitochondriów, przyjmując jednocześnie, że usuwanie cytoplazmy i utrzymanie akrosomu podczas spermiogenezy mogą angażować ogólną autofagię, a nie konkretnie mitofagię. Dysfunkcja mitochondriów—nadmiar reaktywnych form tlenu (ROS), spadek potencjału błony mitochondrialnej (MMP), zaburzona dynamika lub wadliwa mitofagia—upośledza spermatogenezę i funkcje plemników. Identyfikujemy również luki metodologiczne, które ograniczają możliwości translacyjne, w szczególności brak standaryzowanego fenotypowania i dowodów genetycznych u ludzi. Wyjaśnienie przyczynowości MQC oraz możliwości zastosowania leków może wesprzeć przyszłe badania diagnostyczne lub terapeutyczne w zakresie męskiej niepłodności.
Wprowadzenie
Jakość nasienia spada na całym świecie, a zapadalność na męską niepłodność spowodowaną nieprawidłową jakością plemników rośnie1. Jedna z niedawnych metaanaliz wykazała, że w latach 1973–2011 liczba plemników u mężczyzn z Ameryki Północnej, Europy, Australii i Nowej Zelandii spadła o 50–60%2, a spadek ten przyspieszył po 2000 roku3. Przyspieszony spadek jakości nasienia odnotowano na całym świecie2,3,4,5,6. Przyczyny tego zjawiska wymagają dalszych badań oraz wprowadzenia ukierunkowanych działań w celu ochrony męskiej płodności.
Spermatogeneza zachodzi w kanalikach nasiennych jądra. Jest to proces falowy, obejmujący specyficzne kombinacje komórek spermatogennych wzdłuż długiej osi kanalików nasiennych, prowadzący ostatecznie do proliferacji i różnicowania się macierzystych komórek spermatogennych (SSCs) w plemniki7. Spermatogeneza u ssaków jest jednym z najbardziej złożonych i długotrwałych procesów różnicowania w biologii. U ludzi pełen cykl spermatogenetyczny trwa 64–74 dni, przy czym każdy cykl nabłonka kanalików nasiennych trwa 16 dni. Ten skomplikowany proces wiąże się ze znacznymi zmianami w kształcie, liczbie i rozmieszczeniu mitochondriów8.
Kontrola jakości mitochondriów (MQC)—koordynowane procesy biogenezy, fuzji, fisji i selektywnej mitofagii mitochondriów—utrzymuje integralność organelli w obliczu zmiennego zapotrzebowania bioenergetycznego8,9. W jądrach MQC jest zależna od stadium i wspiera przejście od proliferujących spermatogonii do mejozy i spermiogenezy, co kulminuje w utworzeniu gęsto upakowanej osłonki mitochondrialnej w części środkowej plemnika9. Rysunek 1 przedstawia mechanizm MQC podczas spermatogenezy. Zaburzenia komponentów MQC mogą prowadzić do wadliwej spermatogenezy i obniżonej płodności u organizmów modelowych oraz u ludzi. Niniejszy przegląd integruje aktualne spostrzeżenia mechanistyczne i zarysowuje możliwości translacyjne.
Przegląd i perspektywa
Spermatogeneza i mitochondrialny metabolizm energetyczny
Spermatogeneza obejmuje trzy następujące po sobie etapy: proliferację mitotyczną, mejozę oraz spermiogenezę, co wiąże się z proliferacją spermatogonii, ich różnicowaniem w spermatocyty, podziałami mejotycznymi, dojrzewaniem spermatyd oraz spermiacją do światła kanalików nasiennych. Spermatogonia są podzielone na typy rezerwowe i odnawiające się. Część spermatogonii pozostaje jako komórki macierzyste, podczas gdy inne uczestniczą w spermatogenezie poprzez różnicowanie. Ponadto niektóre z nich ulegają programowanej śmierci komórkowej, takiej jak apoptoza. Diploidalne spermatocyty pierwszego rzędu przechodzą dwa cykle podziałów mejotycznych, aby zróżnicować się w haploidalne spermatydy. Podczas spermiogenezy okrągłe spermatydy przestają się dzielić i przekształcają w silnie wydłużone spermatydy, które ostatecznie przekształcają się w dojrzałe plemniki.
Spermatogeneza wymaga skoordynowanych interakcji między komórkami linii płciowej (w tym spermatogoniami, spermatocytami, spermatydami i spermatozoami) a wspierającymi je komórkami Sertolego, a także utrzymania integralności bariery krew-jądro10,11. Bariera krew-jądro, tworzona przez połączenia ścisłe między sąsiadującymi komórkami Sertolego, dzieli nabłonek kanalików nasiennych na przedział podstawny i przedział adluminalny, tworząc i utrzymując w ten sposób wyspecjalizowane mikrośrodowisko niezbędne do rozwoju komórek linii płciowej11,12. W konsekwencji spermatogeneza – od macierzystych spermatogoni po dojrzałe spermatozoa – zachodzi w tym unikalnym mikrośrodowisku jądra. Proces produkcji plemników w dużym stopniu opiera się na funkcji mitochondriów13. Jako centra metabolizmu energetycznego w komórkach eukariotycznych, mitochondria są uważane za niezbędne dla produkcji plemników. Generowanie plemników jest silnie zależne od dostaw energii i funkcji sygnałowych mitochondriów. W rozwijających się komórkach linii płciowej mitochondria nie tylko dostarczają niezbędnego ATP do spermatogenezy, ale także wpływają na ten proces, uczestnicząc w sygnalizacji wewnątrzkomórkowej, regulacji cyklu komórkowego i programowanej śmierci komórki13. W komórkach Leydiga mitochondria odgrywają kluczową rolę w produkcji hormonów steroidowych, a mitochondrialna synteza ATP jest niezbędna do produkcji testosteronu w tych śródmiąższowych komórkach jądra14. Ponadto, jako jedyny organellum z niezależnym DNA, mitochondrialne DNA jest ściśle powiązane z jakością nasienia. Dlatego zrozumienie stanu mitochondriów i ich mechanizmów regulacyjnych jest ważne dla wyjaśnienia procesu spermatogenezy i utrzymania męskiej płodności.
Metabolizm energetyczny ma kluczowe znaczenie dla spermatogenezy, która wymaga znacznej ilości ATP. Dwiema głównymi drogami produkcji ATP są mitochondrialna fosforylacja oksydacyjna (OXPHOS) oraz glikoliza. Podaż ATP jest zależna od etapu rozwoju; podczas gdy OXPHOS staje się coraz ważniejsza podczas mejozy i formowania części środkowej, glikoliza w znacznym stopniu przyczynia się do produkcji ATP, szczególnie w dojrzałych spermatozoach. Glikoliza wspiera również dojrzewanie, ruchliwość oraz przemieszczanie się plemników przez żeńskie drogi rodne, zapewniając elastyczne i szybkie źródło energii.
Jednakże w spermatogoniach i wczesnych spermatocytach mitochondria są stosunkowo małe i wykazują ograniczoną aktywność OXPHOS. W miarę postępu spermatogenezy do późniejszych etapów, takich jak spermatocyty, spermatydy i spermatozoa, mitochondria ulegają przebudowie, a ich aktywność OXPHOS staje się bardziej skoncentrowana przestrzennie i efektywniejsza. Ponadto, ze względu na barierę krew-jądro, dostępne substraty różnią się w zależności od stadium. Spermatogonie, znajdujące się w przedziale podstawnym nabłonka kanalików nasiennych, mają dostęp do krążącej glukozy i wytwarzają energię poprzez glikolizę. Z kolei spermatocyty i spermatydy w przedziale adluminalnym są oddzielone od krwi i śródmiąższu barierą krew-jądro i polegają na komórkach Sertoliego, które absorbują glukozę poprzez transportery glukozy (GLUTs), przekształcając ją w pirogronian w procesie glikolizy. Pirogronian jest następnie przekształcany w mleczan przez dehydrogenazę mleczanową (LDH). Mleczan jest transportowany do spermatocytów za pomocą transporterów monokarboksylanowych (MCTs), gdzie zostaje ponownie przekształcony w pirogronian przez LDH, który może następnie zostać przekształcony w acetylo-CoA przez dehydrogenazę pirogronianową (PDH) w celu wejścia w cykl kwasu trójkarboksylowego (TCA). Ostatecznie pirogronian jest transportowany do mitochondriów za pomocą mitochondrialnego transportera pirogronianu, aby wspomóc proces OXPHOS.
Upośledzenie spermatogenezy spowodowane dysfunkcją mitochondriów
Podczas spermiacji dojrzałe plemniki są uwalniane z komórek Sertoliego do światła kanalików nasiennych, a następnie transportowane do najądrza. Proces ten wymaga znacznych dostaw energii z mitochondriów. Gdy funkcja mitochondriów jest zaburzona, spermatogeneza zostaje zahamowana. Do głównych oznak dysfunkcji mitochondrialnej należą: nadmierna produkcja reaktywnych form tlenu (ROS), zmiany potencjału błony mitochondrialnej (MMP), zaburzenia dynamiki podziału i łączenia mitochondriów, upośledzona biogeneza mitochondriów, wadliwa mitofagia oraz zaburzenie homeostazy jonów wapnia.
Proces, w którym mitochondria produkują ATP poprzez OXPHOS, wiąże się również z produkcją ROS. Mitochondria są głównym źródłem ROS, które powstają przede wszystkim w kompleksach oddechowych I i III mitochondrialnego łańcucha transportu elektronów (ETC)15. W normalnych warunkach fizjologicznych odpowiednie poziomy ROS uczestniczą w szlakach sygnalizacyjnych regulujących spermatogenezę. Jednak nadmiar ROS może prowadzić do zaburzeń równowagi redoks, wywołując stres oksydacyjny i upośledzając spermatogenezę. Zatem równowaga między mitochondrialnym metabolizmem energetycznym a produkcją ROS jest kluczowym czynnikiem zapewniającym prawidłową spermatogenezę.
Efektywne mitochondrialne OXPHOS wymaga przedostania się oddechowych substratów węglowych (np. pirogronianu, kwasów tłuszczowych) przez zewnętrzną błonę mitochondrialną do przestrzeni międzybłonowej. Substraty te są następnie transportowane do macierzy za pomocą transporterów zlokalizowanych w wewnętrznej błonie mitochondrialnej, gdzie uczestniczą w cyklu TCA. W cyklu TCA substraty węglowe ulegają rozkładowi oksydacyjnemu, w wyniku czego powstaje nikotynamidoadeninowy dinukleotyd (NADH) oraz flawinoadeninowy dinukleotyd (FADH2). Produkty te przekazują elektrony do ETC i napędzają proces OXPHOS w celu syntezy ATP z ADP i fosforanu nieorganicznego (Pi). Zaburzenia w cyklu TCA lub szlakach ETC mogą upośledzać produkcję plemników16. Wykazano, że MMP, będący wskaźnikiem stanu energetycznego komórki i funkcji mitochondriów, jest powiązany z ruchliwością plemników17 oraz ogólną zdolnością zapładniającą18.
W warunkach stresu mitochondrialnego podział może prowadzić do odseparowania uszkodzonych segmentów mitochondriów, podczas gdy fuzja może sprzyjać mieszaniu zawartości i komplementacji funkcjonalnej. Uszkodzone lub nadmiarowe mitochondria mogą być następnie degradowane i recyklingowane w procesie mitofagii. Biogeneza, podział, fuzja oraz mitofagia mitochondriów wspólnie tworzą system kontroli jakości mitochondriów (MQC), który wspiera funkcję i przebudowę mitochondriów19.
Spermatogeneza obejmuje różnicowanie spermatogonii w spermatozoa, co skutkuje nie tylko znacznymi zmianami w morfologii komórek, ale także wymaga wsparcia i regulacji metabolizmu energetycznego. Mitochondria, będące centrami energetycznymi komórek, odgrywają kluczową rolę w istotnych aspektach spermatogenezy, w tym w dostarczaniu energii, transdukcji sygnału oraz programowanej śmierci komórki. W przebiegu spermatogenezy zapotrzebowanie metaboliczne komórek linii płciowej różni się w zależności od stadium rozwoju. Liczba i morfologia mitochondriów ulegają znacznym zmianom podczas spermatogenezy. W trakcie formowania się plemników wiele mitochondriów jest usuwanych, natomiast te, które zostają zachowane, organizują się w części pośredniej plemnika, tworząc osłonkę mitochondrialną wokół aksonemy i powiązanych struktur wici. W związku z tym, podczas spermatogenezy mitochondria w różnych komórkach jądra stale ulegają fuzji i fisji, co wymaga wydajnego i precyzyjnego mechanizmu MQC w celu zapewnienia ich prawidłowego funkcjonowania i zaspokojenia wysokiego zapotrzebowania energetycznego spermatogenezy. Wraz z produkcją plemników zarówno morfologia, jak i liczba mitochondriów ulegają znacznym zmianom, a MQC odgrywa krytyczną rolę w tym procesie. Kluczowe białka docelowe zaangażowane w MQC wymieniono w Tabeli 1.
Spermiogeneza i dynamika mitochondriów
Mitochondria to wysoce dynamiczne organelle, których morfologia, rozmiar i rozkład wewnątrzkomórkowy są nieustannie przebudowywane poprzez skoordynowane procesy fuzji i fisji — procesy te określa się zbiorczo mianem dynamiki mitochondrialnej. W normalnych warunkach fizjologicznych fuzja i fisja znajdują się w dynamicznej równowadze, która utrzymuje homeostazę mitochondrialną, ułatwia komplementację funkcjonalną i zapewnia prawidłowe dziedziczenie mitochondriów podczas podziału komórki. Zaburzenie tej równowagi — czy to w wyniku ablacji genetycznej, defektów modyfikacji potranslacyjnych, czy stresu patologicznego — upośledza funkcje mitochondriów, ogranicza produkcję energii i w konsekwencji hamuje spermatogenezę. Precyzyjna regulacja dynamiki mitochondrialnej jest szczególnie istotna w komórkach linii zarodkowej, ponieważ spermatogeneza wiąże się z gwałtownymi zmianami metabolicznymi i rozległą przebudową morfologiczną, co wymaga etapowej adaptacji architektury i aktywności mitochondriów.
Fuzja mitochondrialna jest pośredniczona przez białka MFN1 i MFN2 w zewnętrznej błonie mitochondrialnej oraz OPA1 w błonie wewnętrznej, co umożliwia mieszanie zawartości, komplementację funkcjonalną i utrzymanie integralności mitochondrialnego DNA. Fuzja nie jest jedynie odpowiedzią obronną, lecz mechanizmem zależnym od kontekstu, który wspiera dziedziczenie mitochondriów i adaptację metaboliczną podczas różnicowania komórek płciowych. W trakcie różnicowania spermatogoniów wzrasta ekspresja MFN, a utrata białka MFN1 lub MFN2 prowadzi do utleniania DNA i apoptozy w spermatogoniach i spermatocytach, co skutkuje męską niepłodnością20,21. Mutacje MFN1 powodują zanik jąder w badanych myszach, objawiający się wyraźnym zmniejszeniem liczby spermatocytów i brakiem produkcji plemników, podczas gdy nieróżnicujące się spermatogonia pozostają niezakłócone, co sugeruje, że MFN1 jest niezbędny do postępu mejozy20. Z kolei MFN2 reguluje funkcje zarówno mitochondriów, jak i retikulum endoplazmatycznego, pełniąc odrębną rolę w spermatogenezie21.
Podział mitochondriów jest kierowany przez DRP1, który jest rekrutowany do zewnętrznej błony mitochondrialnej za pośrednictwem białek adaptorowych, takich jak FIS1, MFF, MID49 i MID51. Po rekrutacji DRP1 tworzy pierścieniowate oligomery, które w sposób zależny od GTP zwężają i dzielą mitochondria. Proces ten obejmuje trzy główne etapy: aktywację DRP1 poprzez fosforylację, rekrutację do zewnętrznej błony poprzez oddziaływania z FIS1, MFF, MID49 i MID51 oraz montaż w strukturę pierścienia, która otacza i zwęża mitochondria, zużywając GTP i tworząc dwa oddzielne organella. Podział nie jest jedynie mechanizmem usuwania zdepolaryzowanych mitochondriów lub zaspokajania zwiększonego zapotrzebowania na energię; jest to raczej skoordynowany proces regulujący dystrybucję mitochondriów, segregację uszkodzonych komponentów, dziedziczenie podczas podziału komórki oraz przebudowę architektury mitochondrialnej. Myszy z niedoborem DRP1 wykazują letalność zarodkową22,23; myszy z niedoborem MFF charakteryzują się obniżoną płodnością i liczbą plemników, co stanowi cenny model do badania podziału mitochondriów w rozwoju męskich komórek płciowych24. Podział mitochondriów jest niezbędny do prawidłowego uformowania osłonki mitochondrialnej podczas spermiogenezy.
Spermatogeneza jest procesem energochłonnym, opierającym się przede wszystkim na glikolizie w spermatogoniach oraz na OXPHOS w spermatocytach i spermatydach. OXPHOS jest szczególnie istotny podczas mejozy, a jego efektywność zależy od nienaruszonej dynamiki mitochondrialnej25,26. Po mejozie białko MFF oraz inne białka odpowiedzialne za podziały regulują fragmentację mitochondriów i uczestniczą w tworzeniu pochewki mitochondrialnej plemnika24. Podczas spermiogenezy niektóre mitochondria są selektywnie zatrzymywane i przekształcane w pochewkę, podczas gdy nadmiar mitochondriów i komponentów cytoplazmatycznych jest eliminowany poprzez autofagię27. Białka takie jak OPA1, DRP1 i MFF mogą stanowić potencjalne cele badawcze w celu poprawy funkcji plemników, jednak ich znaczenie terapeutyczne wymaga dalszej walidacji. Dalsze badanie MQC w ludzkiej spermatogenezie może ułatwić przyszłe badania diagnostyczne lub terapeutyczne w zakresie męskiej niepłodności.
Spermatogeneza i autofagia mitochondrialna
Mitofagia odgrywa krytyczną rolę w spermatogenezie28. Mitofagia polega przede wszystkim na otaczaniu uszkodzonych mitochondriów przez autofagosomy. Autofagosomy zawierające uszkodzone mitochondria łączą się następnie z lizosomami, a mitochondria są degradowane poprzez działanie lizosomalne, co pozwala na usunięcie uszkodzonych mitochondriów i zapewnia kontrolę jakości. Klasyczną ścieżką autofagii mitochondriów jest szlak PINK1/Parkin, choć opisano również szlaki niezależne od PINK1/Parkin29.
Autofagia pomaga utrzymać integralność akrosomu, polaryzację spermatyd oraz degradację komponentów cytoplazmatycznych podczas spermatogenezy, choć procesy te odzwierciedlają ogólną autofagię, a nie selektywną mitofagię, chyba że wykazano konkretnie usuwanie mitochondriów. Badania wykazały, że mitofagia jest ściśle powiązana z dynamiką mitochondriów, a rozszczepianie mitochondriów może ułatwiać mitofagię w celu usunięcia nadmiarowych lub uszkodzonych mitochondriów30. FIS1, mimo że jest białkiem rozszczepiania mitochondriów, bierze również udział w mitofagii podczas spermatogenezy31. RAB7A uczestniczy w tworzeniu mitofagosomów i dojrzewaniu autofagosomów32. FIS1 oddziałuje z białkiem aktywującym GTPazę mitochondrialną TBC1D1533,34. TBC1D15 reguluje aktywność RAB7A, który bierze udział w fuzji pęcherzyków z lizosomami oraz w dojrzewaniu autofagosomów34,35. W przypadku dezaktywacji FIS1, RAB7A może pozostać aktywny na powierzchni mitochondriów, co prowadzi do rozregulowania wzrostu błony autofagosomu i tubulacji; agregację LC3 można zaobserwować za pomocą mikroskopii optycznej35. Mitofagia może również zachodzić niezależnie od rozszczepiania mitochondriów zależnego od DRP1, zatem rozszczepiania nie należy traktować jako obligatoryjnego procesu dla usuwania mitochondriów35.
Podczas spermiogenezy spermatydy są pozbawiane nadmiaru komponentów komórkowych, a badania wykazały, że autofagosomy występują w nich najliczniej36. Kluczowy gen autofagii Atg7 został powiązany z polaryzacją spermatyd i usuwaniem cytoplazmy podczas spermatogenezy; jednak wczesne typy komórek zarodkowych wydają się być w tym kontekście mniej dotknięte27,36. Ponadto mityfagia jest nasilona w uszkodzonych modelach jąder, w tym w komórkach Leydiga29, komórkach macierzystych/progenitorach spermatogonialnych37,38, komórkach Sertoliego39 oraz w niedojrzałych jądrach szczura narażonych na działanie toksyn40. W spermatogenezie autofagia mitochondriów jest powiązana z apoptozą i innymi formami zaprogramowanej śmierci komórki, co wpływa na produkcję plemników w jądrach41,42.
Kontekst bibliometryczny
Przeprowadzono ukierunkowaną analizę bibliometryczną bazy Web of Science Core Collection z lat 1970–2023, wykorzystując terminy wyszukiwania „spermatogenesis” oraz „MQC”; wykluczono badania nad organizmami nie ssącymi oraz nieistotne rekordy, a do wizualizacji wykorzystano oprogramowanie VOSviewer 1.6.2043. Po przesiewie zachowano 1019 artykułów pochodzących z 1217 instytucji w 66 krajach, których autorami było 5705 osób. Liczba publikacji rosła w sposób stały (Rycina 2A). Najwięcej artykułów wniosły Stany Zjednoczone i Chiny (odpowiednio 212 i 196), a Stany Zjednoczone odnotowały najwyższą liczbę cytowań (12 295; Rycina 2B). Sieci instytucjonalne i autorskie przedstawiono podsumowująco na Rycini 2C,D.
Analiza współwystępowania słów kluczowych (częstość > 7) wykazała nacisk na ruchliwość plemników, stres oksydacyjny, apoptozę/programowaną śmierć komórki, uszkodzenia DNA, peroksydację lipidów oraz jakość nasienia (Rysunek 3). Te wzorce bibliometryczne wspierają, lecz nie zastępują, przeglądu mechanistycznego: dziedzina ta koncentruje się wokół uszkodzeń oksydacyjnych i wyników ruchliwości, podczas gdy bezpośrednie dowody u ludzi łączące specyficzne dla stadium ścieżki MQC z niepłodnością pozostają ograniczone.
Wnioski
Wraz z rozwojem biotechnologii badania nad męską płodnością przesunęły się z opisowej morfologii i ruchliwości w stronę molekularnych i komórkowych mechanizmów spermatogenezy. Mitochondria odgrywają centralną rolę w tym procesie: generują ATP, wspierają przebudowę podczas mejozy i spermiogenezy oraz są wysoce wrażliwe na uszkodzenia oksydacyjne i środowiskowe44. Aby zachować funkcjonalność w warunkach takiego stresu, mitochondria polegają na MQC, która integruje biogenezę, dynamikę fuzji–fisyj oraz mitofagię. Zaburzenia tych szlaków upośledzają rozwój komórek zarodkowych, architekturę części pośredniej plemników, a w konsekwencji płodność. Podsumowując, dostępne dowody wspierają model specyficzny dla poszczególnych etapów, w którym dynamika mitochondrialna i mitofagia pomagają koordynować produkcję energii, przebudowę organelli oraz usuwanie uszkodzonych komponentów podczas spermatogenezy. Niemniej jednak, bezpośrednie dowody u ludzi oraz standaryzowane fenotypowanie pozostają ograniczone, dlatego białka związane z MQC należy traktować jako potencjalne cele badawcze wymagające dalszej walidacji, a nie jako ustalone cele terapeutyczne.
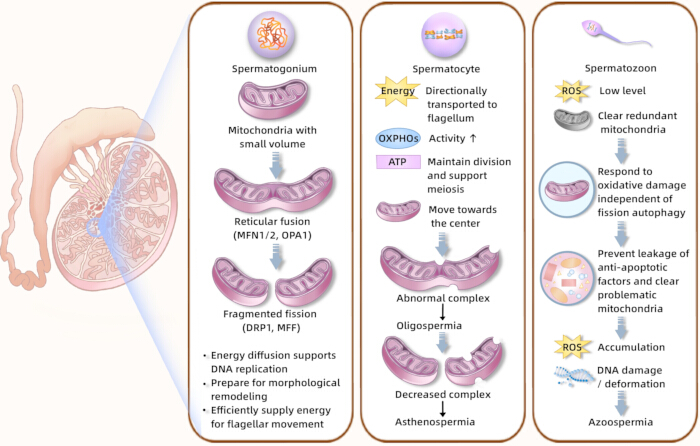
Rysunek 1. Mechanizm kontroli jakości mitochondriów podczas spermatogenezy. Metabolizm energetyczny i przebudowa mitochondriów w zależności od stadium spermatogenezy. Schemat przedstawia sprzężenie metaboliczne między komórkami Sertolego a komórkami linii płciowej, transportery glukozy, transportery monokarboksylanów, produkcję ATP, przejście z metabolizmu opartego na glikolizie do fosforylacji oksydacyjnej podczas mejozy i spermiogenezy oraz uszkodzenia mitochondriów związane z reaktywnymi formami tlenu. Skróty: ATP = adenozynotrifosforan; OXPHOS = fosforylacja oksydacyjna; ROS = reaktywne formy tlenu. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
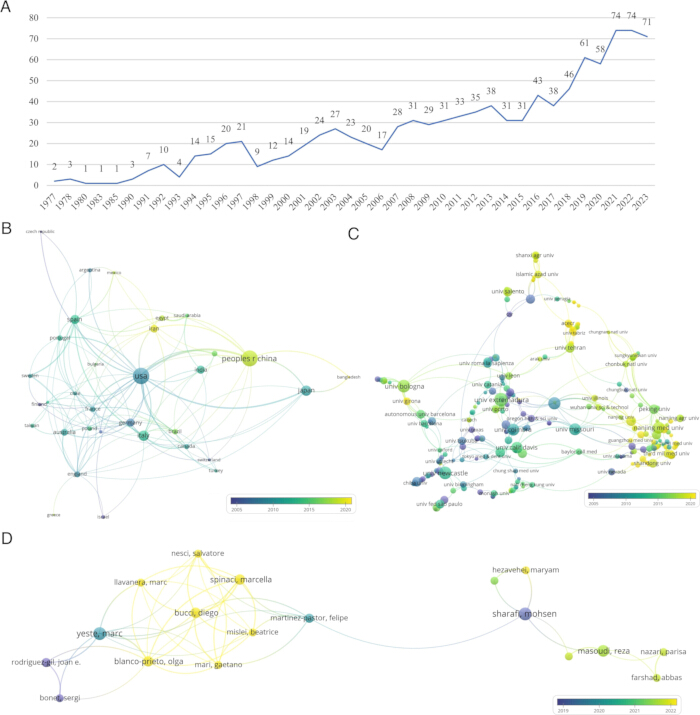
Rysunek 2. Publikacje krajowe, instytucjonalne i autorskie oraz analiza współpracy. (A) Roczna liczba publikacji w dziedzinie spermatogenezy i MQC. (B) Mapa rozkładu czasowego międzynarodowych publikacji kolaboracyjnych w dziedzinie spermatogenezy i MQC. (C) Mapa rozkładu czasowego współpracy instytucjonalnej w dziedzinie spermatogenezy i MQC. (D) Mapa rozkładu czasowego publikacji autorskich w dziedzinie spermatogenezy i MQC. Węzły wskazują liczbę publikacji; kolor węzła oznacza czas publikacji (od wcześniejszych do nowszych); a linie reprezentują relacje współpracy, gdzie grubsze linie wskazują ściślejszą współpracę. Skrót: MQC = mitochondrial quality control. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
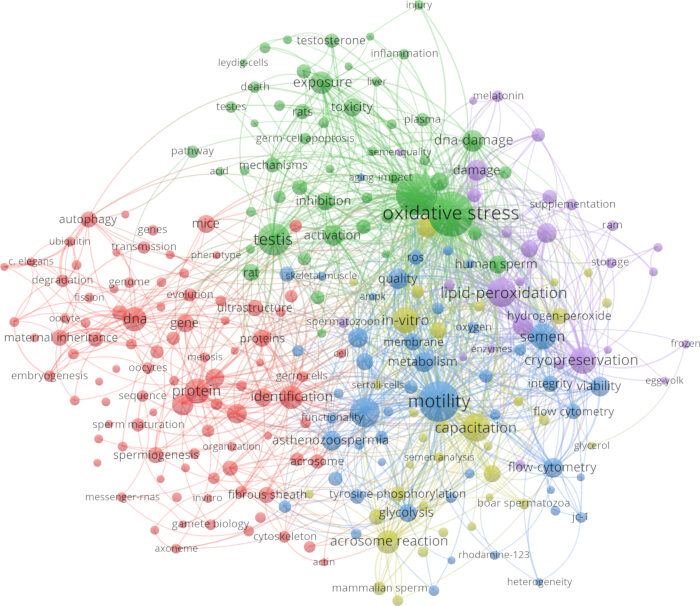
Rysunek 3. Wykres współwystępowania słów kluczowych o wysokiej częstotliwości. Węzły reprezentują słowa kluczowe o wysokiej częstotliwości; rozmiar węzła odpowiada częstotliwości; kolor węzła wskazuje na klastrowanie, gdzie ten sam kolor oznacza tematy ściślej powiązane; a linie reprezentują relacje między słowami kluczowymi, przy czym grubsze linie wskazują na bliższe powiązania. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| proces MQC | Białko docelowe |
| Fuzja mitochondrialna | Zanik nerwu wzrokowego 1 (OPA1) |
| Mitofuzyna 1 (MFN1) | |
| Mitofuzyna 2 (MFN2) | |
| Podział mitochondriów | Białko 1 związane z dynaminą (DRP1) |
| Białko podziału mitochondrialnego 1 (FIS1) | |
| Czynnik podziału mitochondriów (MFF) | |
| Mitofagia | kinaza 1 potencjalnie indukowana przez PTEN (PINK1) |
| Ubikwityno-ligaza białkowa Parkin (E3 ubikwityno-ligaza białkowa Parkin) |
Tabela 1: Kluczowe białka docelowe w kontroli jakości mitochondriów. Tabela przedstawia reprezentatywne białka zaangażowane w fuzję mitochondriów, podział mitochondriów oraz mitofagię podczas spermatogenezy.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Praca ta była wspierana przez Ningxia Natural Science Foundation Project (2025AAC030481, 2024AAC03715), National Natural Science Foundation of China (82560939, 82505601), Ningxia Key Research and Development Program (2025FRG05005, 2025BEG2008), Beijing Natural Science Foundation (7254520), China Postdoctoral Science Foundation (2025T181076), Young Elite Scientists Sponsorship Program by China Association of Science and Technology (YESS20240193), Young Talents Support Program of the China Association of Chinese Medicine (CACM-2024-QNRC2-B17) oraz High-Level Key Discipline Construction Project of Traditional Chinese Medicine by the National Administration of Traditional Chinese Medicine (zyyzdxk-2023238).
Bibliografia
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.