Opisujemy mikroskopię konfokalną i metody śledzenia zastosowane do dwóch strategii reporterowych: mozaikowych organoidali do rozdzielania zachowania i losu poszczególnych komórek oraz organoidali reporterowych typu komórkowego do monitorowania przemian typów komórek w ludzkich i mysich organoidach jelitowych.
Artykuł metodologiczny
Obrazowanie żywych komórek i śledzenie pojedynczych komórek w celu monitorowania dynamiki klonalnej i przejść losu w ludzkich i mysich organoidach jelitowych
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Nabłonek jelitowy podlega szybkiej samo-odnowie poprzez dzielenie komórek macierzystych, różnicowanie komórek i migrację. Zrozumienie, jak pojedyncze komórki decydują się na określone losy i jak powstają dynamiki klonalne w tym tkankach, wymaga metod, które uchwycą zachowanie komórki w czasie rzeczywistym i na poziomie pojedynczej komórki. Organoidy jelitowe odtwarzają kluczowe cechy samoorganizacji nabłonka i różnorodności typów komórek, czyniąc je potężnym systemem do badania tych procesów w kontrolowanym otoczeniu. Przedstawiamy tu protokół długotrwałego konfokalnego obrazowania na żywo (do 72 h) i śledzenia pojedynczych komórek w ludzkich i mysich organoidach jelitowych, oparty na dwóch uzupełniających się strategiach raportowania. Po pierwsze, opisujemy generowanie organoidów mozaikowych poprzez łączenie różnicująco oznaczonych populacji komórek, umożliwiające rozdzielczość na poziomie pojedynczej komórki dla raporterów zlokalizowanych w błonach i cytoszkielecie, które inaczej nie mogłyby być przypisane do pojedynczych komórek w gęstym nabłonku. Po drugie, stosujemy raportery losów specyficznych dla typu komórki (MUC2 dla komórek kryptowych i DEFA5 dla komórek Panetha), aby monitorować przemiany typów komórek wydzielniczych w czasie rzeczywistym. Protokół obejmuje hodowlę organoidów, formowanie mozaikowych organoidów, przygotowanie próbek z strategiami minimalizującymi fototoksyczność, zdobywanie obrazów przez kilka dni i półautomatyczne śledzenie pojedynczych komórek za pomocą OrganoidTracker, który rekonstruuje trajektorie i linie komórkowe w czasie. Chociaż zademonstrowano go na organoidach jelitowych, ten szkic jest łatwo przystosowywalny do innych systemów organoidów nabłonkowych, w tym żołądkowych, trzustkowych i jelitowych, poszerzając jego przydatność do badań nad biologią nabłonka, homeostazą i chorobami.
Wprowadzenie
Nabłonek jelitowy jest jednym z najszybciej się odnawiających tkanek w organizmie, przy czym większość komórek zostaje zastąpiona w ciągu trzech do pięciu dni. Ta ciągła wymiana jest utrzymywana przez pozytywne na receptor sprzężony z białkiem G, zawierające powtórzenia bogate w leucynę (Lgr5) komórki macierzyste, znajdujące się u podstawy krypt jelitowych, które dają początek komórkom przodującym w przemieszczaniu, które różnicują się na specjalistyczne typy komórek wyściółki jelita podczas migracji w kierunku końcówki kosmówki1. Główne zróżnicowane linie obejmują absorpcyjne enterocyty, komórki wydzielnicze śluzu, komórki enteroendokrynne wytwarzające hormony oraz przeciwdrobnoustrojowe komórki Panetha2. Jak pojedyncze komórki decydują się na określone losy, jak zbiorcze zachowanie komórek powstaje z dynamiki pojedynczych komórek oraz jak osiągana jest koordynacja na poziomie tkanki, to nadal fundamentalne pytania w biologii jelita. Odpowiedź na te pytania wymaga podejść eksperymentalnych, które rejestrują zachowanie komórek z rozdzielczością pojedynczych komórek, w czasie rzeczywistym oraz na skalach czasowych odpowiednich dla różnicowania i migracji3.
Organoidy jelitowe, trójwymiarowe (3D) struktury samoorganizujące się, rosnące z pojedynczych komórek macierzystych lub fragmentów tkankowych, powtarzają kluczowe aspekty architektury nabłonkowej, samoorganizacji i różnorodności typów komórek4,5,6. Od czasu ich opracowania organoidy stały się niezastąpionym narzędziem do badań nad biologią jelita, modelowaniem chorób i odpowiedzi na leki. Zarówno mysie, jak i ludzkie organoidy jelitowe mogą być utrzymywane długoterminowo w hodowli, genetycznie modyfikowane za pomocą podejść opartych na klastrowanych regularnie rozmieszczanych krótkich palindromowych powtórzeniach (CRISPR) oraz łączone w mozaikowe struktury poprzez miksowanie dissociowanych pojedynczych komórek o różnych genotypach lub raportujących tłach przed ponownym zatopieniem w ekstraktach błony podstawnej7,8,9. Mozaikowe organoidy łączą komórki o odrębnych tłach genetycznych lub fluorescencyjnych w jednej strukturze, tak że populacje doświadczają identycznych sygnałów niszowych i kontekstu mechanicznego oraz mogą być porównywane z wbudowanymi wewnętrznymi kontrolami. Ta genetyczna łatwość użycia sprawia, że są szczególnie odpowiednie do badań live-imaging, które wymagają precyzyjnego znaczenia określonych populacji komórek6,10,11,12. Reportery, które znaczą komórki sporadycznie, takie jak znaczniki losów specyficznych dla typu komórki, produkują izolowanych fluorescencyjnych komórek, które mogą być śledzone i analizowane indywidualnie poprzez metody śledzenia pojedynczych komórek. Jednakże, stałe wyzwanie powstaje, gdy białka zlokalizowane w błonie i cytoszkielecie, takie jak złącza komórkowe lub kortykalna Myozyna-II, są znaczone jednolicie w całym nabłonku. Ich sygnały nie mogą być przypisane do pojedynczych komórek, ponieważ sąsiednie komórki dzielą ich granice na poziomie mikroskopii konfokalnej. Mozaikowe organoidy pokonują tę ograniczność: gdy komórka ekspresująca fluorescencyjnego reportera jest otoczona przez nieznaczone sąsiadów, jej złącza i cytoszkieleczne sygnały mogą być jednoznacznie przypisane do tej pojedynczej komórki, ujawniając jak remodeluje ona swój cytoszkielet podczas migracji, podziału lub ekstruzji9,13. Regulacja proporcji znaczenia odwraca ten widok, pozwalając na przechwycenie odpowiedzi sąsiedztwa wokół nieznaczonej komórki. Reportery jądrowe histonu H2B takie jak H2B-mCherry czy H2B-iRFP służą jako narzędzia do identyfikacji wzorca mozaikowego i lokalizacji pouczających konstelacji komórek dla analizy. Poza rozdzielczością pojedynczych komórek, mozaikowe organoidy również umożliwiają bezpośrednie porównania dostosowania między genotypami: ponieważ obie populacje dzielą tę samą niszę, różnice w czasie życia komórki lub współczynniku ekstruzji dostarczają wewnętrznie kontrolowanego odczytu konkurencyjnego dostosowania9,14,15.
Live-cell imaging organoidów, jednakże, prezentuje specyficzne wyzwania techniczne. Ich 3D geometria wymaga mikroskopii konfokalnej lub warstwy świetlnej dla sekcjonowania optycznego16,17,18,19. Rejestrowanie powolnych procesów takich jak różnicowanie i migracja wymaga czasu trwania obrazu od 24 godzin lub więcej, z staranną optymalizacją mocy lasera, czasu ekspozycji i interwałów obrazu, aby ograniczyć fototoksyczność16,18. Macierz osadzająca i medium kulturowe muszą wspierać zdrowie organoidów, pozostając kompatybilnymi z optiką mikroskopu.
Protokół
Wszystkie eksperymenty z udziałem zwierząt przeprowadzono zgodnie z wytycznymi instytucjonalnymi zatwierdzonymi przez Centralny Komitet ds. Eksperymentów na Zwierzętach (CCD) holenderskiego rządu oraz Komisję ds. Opieki nad Zwierzętami KNAW/Hubrecht Institute (IvD). Organoidy jelitowe człowieka wyhodowano z tkanki pacjenta uzyskanej w University Medical Center Utrecht (UMCU) za pisemną zgodą pacjenta. Badanie zatwierdził komitet etyczny UMCU (Utrecht, Holandia) i przeprowadzono zgodnie z Deklaracją Helsińskiej i holenderskim prawem.
1. Hodowla i utrzymanie organoidów
- Przygotuj medium do wzrostu Epidermal growth factor, Noggin i R-spondin (ENR) na jelitowe organoidy mysie (Tabela 1).
- Przygotuj Medium do ekspansji (Tabela 2), Medium do paternizacji (Tabela 3) i Medium do dojrzewania (Tabela 4) na jelitowe organoidy człowieka.
- Roztapiaj strzykawkę z redukowanego czynnika wzrostu wyciągu z błony podstawnej (BME) na lodzie przez noc przed użyciem.
- Zawsze trzymaj BME na lodzie, aby zapobiec przedwczesnemu żelowaniu.
- Hoduj jelitowe organoidy mysie w medium ENR osadzone w BME, przesadzając co 7 dni w proporcji 1:4 do 1:8 poprzez mechaniczne dysocjację4.
- Hoduj jelitowe organoidy człowieka w Medium do ekspansji osadzone w BME, przesadzając co 7-10 dni5.
UWAGA: W celu ekspansji lub odzyskiwania organoidów mysich po pojedynczej dysocjacji komórkowej, hoduję w medium ENR uzupełnionym o medium warunkujące Wnt (uzupełnione o 10 mM nikotynamidu i 10 µM Y-27632 dihydrochlorku) przez pierwsze 2-3 dni, aby promować wzrost i żywotność organoidów. - Aby wywołać różnicowanie jelitowych organoidów człowieka, sekwencyjnie hoduję organoidy w Medium do paternizacji przez 14 dni, a następnie w Medium do dojrzewania przez 7-10 dni6.
UWAGA: Szczegółowe protokoły dotyczące tworzenia i hodowli organoidów, patrz Sato et al.4 dla jelitowych organoidów mysich, Sato et al.5 i He et al6 dla jelitowych organoidów człowieka.
2. Tworzenie transgennych organoidów jelitowych
- Przesadzej organoidy, aby zapewnić aktywnie proliferujące kultury w momencie elektroporacji: trzy dni przed elektroporacją w przypadku organoidów mysich i pięć do siedmiu dni w przypadku organoidów człowieka. Na każdą reakcję elektroporacyjną używaj organoidów z 4-8 dołków płytki 24-dołkowej (około 200-400 μL BME zawierającego organoidy, dając około 500-1000 organoidów). Dysocjuj organoidy na pojedyncze komórki za pomocą rekombinowanego reagentu dysocjującego podobnego do trypsyny przez 5-10 min w 37 °C.
- Uzyskaj linie reporterów jądrowych organoidów poprzez współelektroporację konstruktu ekspresyjnego opartego na transpozonach (p2T-H2B-mCherry-IRES-BlastR lub p2T-H2B-iRFP-IRES-PuroR; po 5 μg każdy) razem z wektorem transpozycyjnym (p2T-CAG-mT2TP; 5 μg) do dysocjowanych komórek przy użyciu systemu elektroporacyjnego zgodnie z ustalonymi protokołami24.
UWAGA: Ilości DNA plazmidowego określone w kroku 2.2 (5 μg na konstrukcję) są zoptymalizowane dla około 500-1000 organoidów na reakcję elektroporacji. Podczas elektroporacji zweryfikuj, czy impedancja zmierena przez elektroporator mieści się w zakresie 25-55 Ω. Impedancja poniżej 25 Ω wskazuje na nadmierną gęstość komórek lub problemy z przewodnością buforu; impedancja powyżej 55 Ω wskazuje na niedostateczną liczbę komórek lub złą żywotność komórek. Dostosuj stężenie komórek lub wymień bufor elektroporacji, jeśli impedancja wypada poza ten zakres. - Po elektroporacjach hoduj komórki w warunkowym medium Wnt uzupełnionym o 10 μM Y-27632 dihydrochlorku przez 3 dni, aby wspomóc odzyskanie komórek i reformację organoidów.
- Rozpocznij selekcję antybiotyczną dla konstrukcji nadekspresji (puromycyna (2 μg/mL) dla linii H2B-iRFP lub blastycydyna (10 μg/mL) dla linii H2B-mCherry) tydzień po elektroporacjach, aby zapewnić wystarczające odzyskanie przed naciskiem selekcyjnym.
- Kontynuuj selekcję przez dwa tygodnie.
- Wybierz fluorescencyjne klony organoidów pod stereomikroskopem wyposażonym w epifluorescencyjne światło za pomocą odpowiednich zestawów filtrów.
- Dysocjuj wybrane klony na pojedyncze komórki za pomocą rekombinowanego reagentu dysocjującego podobnego do trypsyny i rozwijaj w warunkowym medium Wnt przez dwa tygodnie przed przejściem do medium ENR.
- Zwaliduj linie reporterów, potwierdzając jednorodne lokalizowanie nuklearne fluorescencyjnego sygnału i stabilną ekspresję przez przebieg przekazów.
- Weryfikuj, czy introdukcja reporter
Wyniki
Zgodnie z protokołem opisanym w sekcji 4, mozaikowe organoidy zawierające populacje komórek znakowanych H2B-mCherry oraz H2B-iRFP tworzą się w ciągu 48 h od wysiania. Prawidłowa formacja mozaiki charakteryzuje się rozkładem typu „sól i pieprz” lub wyraźnymi granicami między dwiema populacjami, w zależności od zastosowanego stopnia dysocjacji. Rozkład typu „sól i pieprz” odnosi się do losowego, pojedynczo-komórkowego wymieszania obu populacji, w którym komórki każdej z nich są przeplatane na poziomie pojedynczych komórek, bez tworzenia dużych domen klonalnych. Z kolei wyraźne granice skutkują powstaniem spójnych skupisk każdej z populacji komórek w obrębie tego samego organoidu. Stopień rozproszenia komórek jest kontrolowany przez czas trwania etapu dysocjacji oraz intensywność pipetowania: dokładna dysocjacja do pojedynczych komórek prowadzi do powstania mozaik typu „sól i pieprz”, natomiast delikatna fragmentacja pozwala zachować małe klastry klonalne (Rysunek 3A).
Mozaikowe znakowanie umożliwia analizę pojedynczych komórek w procesach, których nie można rozstrzygnąć w tkankach znakowanych jednolicie. Gdy pojedyncza komórka koekspresująca interesujący nas reporter (np. fluorescencyjny reporter miozyny-II) jest otoczona przez nieznakowane sąsiadujące komórki, dynamikę jej cytoszkieletu podczas migracji, podziału lub ekstruzji można jednoznacznie przypisać tej konkretnej komórce (Rycina 3B). Reportery nuklearne H2B ułatwiają identyfikację informatywnych konstelacji komórek w obrębie mozaiki, a z danych z trackingu można wyodrębnić pomiary dla poszczególnych komórek, takie jak czas życia, tempo podziałów oraz dynamika intensywności reportera (Rycina 3C). W przypadku zmieszania dwóch genotypów, te wskaźniki dla poszczególnych komórek można porównać między populacjami w celu oceny różnic w sprawności konkurencyjnej.
W ludzkich organoidach jelitowych niosących reportery przeznaczenia MUC2-mNeonGreen oraz DEFA5-dsRed, różnicowanie w kierunku komórek wydzielniczych objawia się jako stopniowy wzrost fluorescencji reporterów w ciągu wielu dni. Organoidy hodowane w Maturation Medium przeniesiono na płytki z szklanym dnem w 7. dniu i obrazowano za pomocą konfokalnej mikroskopii żywych komórek (Rycina 4A). Obrazowanie time-lapse ujawniło dwie odrębne dynamiki reporterów: komórki kubkowe aktywują i utrzymują wysoką ekspresję MUC2-mNeonGreen przez cały okres obrazowania, podczas gdy komórki Panetha wykazują początkową aktywację MUC2-mNeonGreen, po której następuje stopniowy spadek sygnału i późniejsza aktywacja DEFA5-dsRed6 (Rycina 4A). Ilościowa analiza pojedynczych komórek potwierdza to sekwencyjne przejście na poziomie poszczególnych komórek (Rycina 4B), co sugeruje, że różnicowanie komórek Panetha przebiega poprzez przejściowy stan pośredni wykazujący ekspresję MUC2, a nie bezpośrednio z nieoznaczonego prekursora. Uśrednione krzywe intensywności dla wielu śledzonych komórek potwierdzają, że wzorzec ten jest spójny na poziomie populacji, a prekursory komórek Panetha wykazują charakterystyczną odwrotną zależność między sygnałami MUC2-mNeonGreen a DEFA5-dsRed (Rycina 4C). Wspólnie dane te wykazują, że podwójny system reporterowy pozwala rozróżnić odrębne trajektorie przeznaczenia komórek wydzielniczych w rozdzielczości pojedynczych komórek.
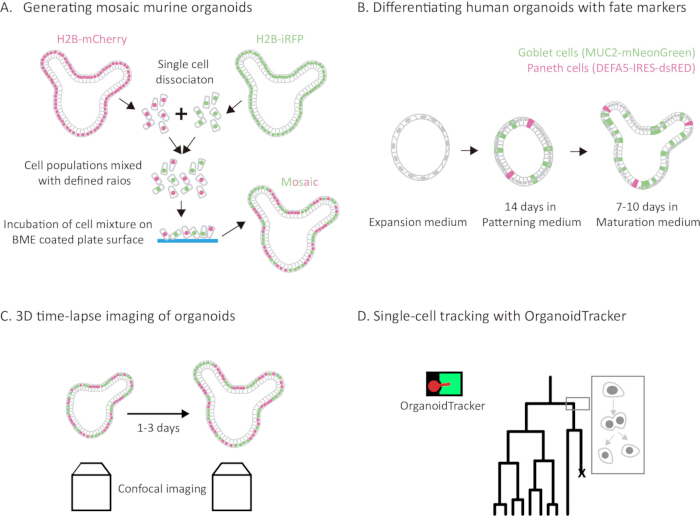
Rycina 1: Schemat przepływu pracy integrujący konfokalne obrazowanie żywych komórek i śledzenie pojedynczych komórek z dwiema komplementarnymi strategiami reporterowymi w ludzkich i mysich organoidach jelitowych. (A) Schematyczny przegląd procesu generowania mozaikowych organoidów. Mysie organoidy jelitowe wykazujące ekspresję H2B-mCherry (magenta) lub H2B-iRFP (zielony) są dysocjowane do pojedynczych komórek, mieszane w określonych proporcjach i wysiewane na płytkę powlekaną BME w celu formowania agregatów przez 24 h przed ponownym osadzeniem w BME. (B) Schematyczny przegląd różnicowania ludzkich organoidów jelitowych. Ludzkie organoidy wykazujące ekspresję endogennych reporterów typu knock-in MUC2-mNeonGreen (komórki kubkowe, zielone) oraz DEFA5-dsRed (komórki Panetha, magenta) są różnicowane przy użyciu dwuetapowego protokołu. Organoidy są najpierw hodowane w pożywce do kształtowania (Patterning Medium) przez 14 dni, a następnie w pożywce do dojrzewania (Maturation Medium) przez 7–10 dni. Podczas różnicowania organoidy przechodzą z cystycznej, sferycznej morfologii w strukturę o rozbudowanych wypustkach, w której znajdują się główne typy komórek jelitowych, w tym komórki kubkowe dodatnie dla MUC2-mNeonGreen oraz komórki Panetha dodatnie dla DEFA5-dsRed. (C) Konfokalne obrazowanie 3D w trybie time-lapse mysiego mozaikowego organoidu jelitowego wykazującego ekspresję reporterów jądrowych. (D) Śledzenie pojedynczych komórek i rekonstrukcja linii komórkowych przy użyciu półautomatycznego oprogramowania do śledzenia komórek w organoidach. Wykryte jądra są łączone w kolejnych punktach czasowych w celu rekonstrukcji trajektorii komórek i drzew linii komórkowych, co umożliwia kwantyfikację zdarzeń podziału, migracji i ekstruzji komórek. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
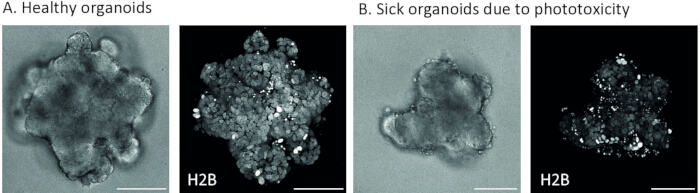
Rycina 2: Porównanie zdrowych i fototoksycznych ludzkich organoidów jelitowych podczas obrazowania konfokalnego na żywo. (A) Reprezentatywne obrazy w polu jasnym i fluorescencyjne zdrowego ludzkiego organoidu jelitowego. Zdrowe organoidy wykazują wyraźną morfologię torbielowatą lub pączkującą, bez obecności detrytusu komórkowego w otaczającym medium. (B) Reprezentatywne obrazy w polu jasnym i fluorescencyjne ludzkiego organoidu jelitowego wykazującego uszkodzenia fototoksyczne. Objawy fototoksyczności obejmują gromadzenie się detrytusu komórkowego w otaczającym medium, kondensację jąder komórkowych oraz zahamowanie podziałów komórkowych. Obrazy fluorescencji H2B-mCherry przedstawiono jako projekcje maksymalnej intensywności. Paski skali, 100 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
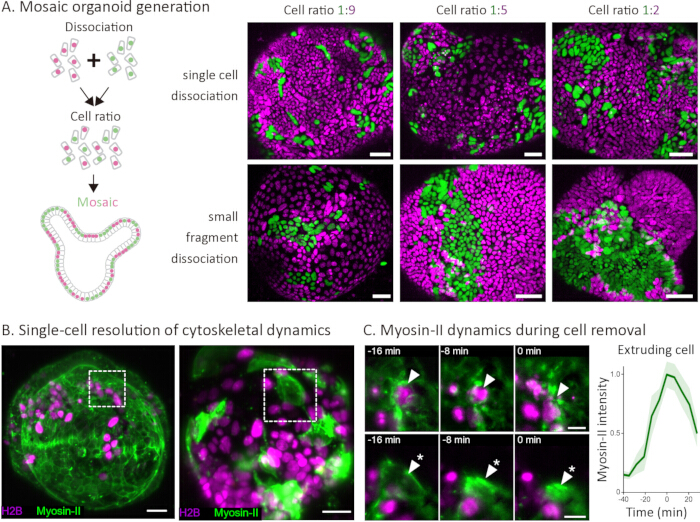
Rysunek 3: Generowanie mozaikowych organoidów i rozdzielczość pojedynczych komórek w dynamice cytoszkieletu w mysich organoidach jelitowych. (A) Schemat generowania mozaikowych organoidów poprzez dysocjację, mieszanie w określonych proporcjach i ponowną agregację. Reprezentatywne obrazy konfokalne mozaikowych organoidów wygenerowanych przy proporcjach komórek 1:9, 1:5 i 1:2 (H2B-mCherry, zielony; H2B-iRFP, magenta) przy użyciu dysocjacji do pojedynczych komórek (górny rząd) lub dysocjacji do małych fragmentów (dolny rząd). Dysocjacja do pojedynczych komórek daje wzór mieszania typu „sól i pieprz”, podczas gdy dysocjacja do małych fragmentów skutkuje powstaniem większych plam klonalnych. Paski skali, 50 µm. (B) Obrazy konfokalne mozaikowych organoidów, w których gęsta (lewo) lub rzadka (prawo) populacja wykazuje ekspresję Myosin-II-mNeonGreen (zielony), podczas gdy druga populacja wykazuje ekspresję jedynie H2B-iRFP (magenta). Przerywane ramki wskazują obszary powiększone w (C). Paski skali, 20 µm. (C) Seria time-lapse pokazująca ekstruzję komórek w odstępach 8 min, wyrównana do momentu usunięcia komórki (t = 0 min). Górny rząd (groty strzałek): ekstruzja nieoznaczonej komórki otoczonej przez sąsiadów wykazujących ekspresję Myosin-II-mNeonGreen, co ujawnia reakcję otoczenia. Dolny rząd (gwiazdki): ekstruzja pojedynczej komórki wykazującej ekspresję Myosin-II-mNeonGreen otoczonej przez nieoznaczone sąsiady, co umożliwia jednoznaczne przypisanie dynamiki miozyny kortykalnej do ekstrudowanej komórki. Paski skali, 10 µm. Po prawej: znormalizowana intensywność fluorescencji Myosin-II-mNeonGreen w czasie dla komórek ekstrudowanych, wyrównana do momentu usunięcia komórki (t = 0 min). Myosin-II gromadzi się stopniowo w minutach poprzedzających ekstruzję, osiągając szczyt w momencie usunięcia. Obszar zacieniowany wskazuje odchylenie standardowe. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
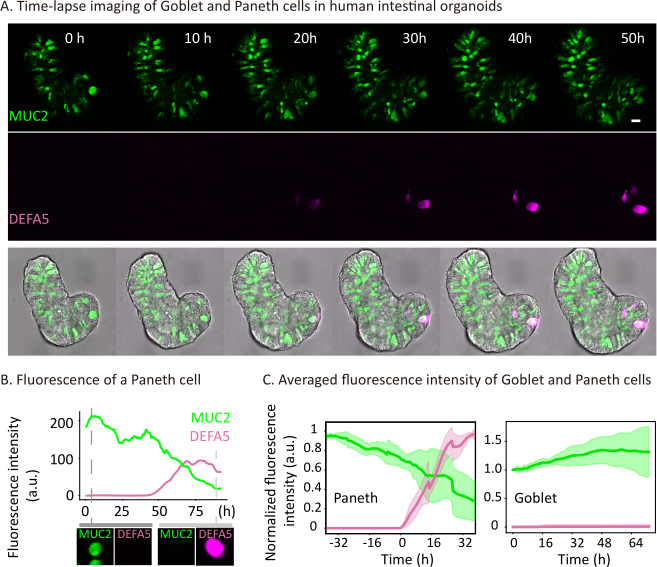
Rysunek 4: Monitorowanie w czasie rzeczywistym przejść losów komórek wydzielniczych w ludzkich organoidach jelitowych przy użyciu reporterów losu MUC2-mNeonGreen i DEFA5-dsRed. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
(A) Reprezentatywne obrazy konfokalne time-lapse ludzkiego organoidu jelitowego hodowanego w Medium do Dojrzewania, obrazowanego od 7. dnia dojrzewania. MUC2-mNeonGreen (zielony) oznacza komórki kubkowe, a DEFA5-dsRed (magenta) oznacza komórki Panetha. Pasek skali, 20 µm. (B) Ilościowa analiza pojedynczych komórek w zakresie intensywności fluorescencji MUC2-mNeonGreen (zielony) i DEFA5-dsRed (magenta) w czasie dla reprezentatywnej komórki Panetha, wykazująca początkową aktywację MUC2-mNeonGreen, a następnie stopniowy spadek sygnału i późniejszy początek ekspresji DEFA5-dsRed. Intensywność fluorescencji przedstawiono w jednostkach arbitralnych (a.u.). (C) Średnie krzywe intensywności fluorescencji dla komórek kubkowych (n = 7 komórek) i prekursorów komórek Panetha (n = 8 komórek) pokazujące dynamikę sygnałów MUC2-mNeonGreen (zielony) i DEFA5-dsRed (magenta) w czasie6. Dla prekursorów komórek Panetha czas został wyrównany do pierwszego pojawienia się sygnału DEFA5-dsRed (t = 0 h). Komórki kubkowe utrzymują konsekwentnie wysoką intensywność MUC2-mNeonGreen w czasie, podczas gdy prekursory komórek Panetha wykazują charakterystyczną odwrotną zależność między sygnałami MUC2-mNeonGreen i DEFA5-dsRed. Zacieniowane obszary oznaczają odchylenie standardowe.
| Komponent | Stężenie roztworu zapasowego | Stężenie końcowe |
| Zaawansowane modyfikowane pożywką Eagle'a podłoże Dulbecco/F12 (Advanced DMEM/F12) | Pożywka podstawowa | |
| HEPES | 1 M | 10 mM |
| Glutamax | 200 mM | 2 mM |
| suplement N2 | 100x | 1x |
| suplement B27 | 50x | 1x |
| N-acetylocysteina | 500 mM | 1 mM |
| Penicylina/Streptomycyna | 10000 U/ml, 10000 µg/ml | 100 U/ml, 100 µg/ml |
| Rekombinowany mysi EGF | 50 ng/ml | |
| Rekombinowany mysi Noggin | 100 ng/ml | |
| Rekombinowana ludzka R-spondyna 1 | 500 ng/ml |
Tabela 1: Pożywka wzrostowa dla mysich organoidów jelitowych.
| Składnik | Stężenie zapasu | Stężenie końcowe |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Pożywka podstawowa | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplement B27 | 50x | 1x |
| Penicylina/Streptomycyna | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Pożywka kondycjonowana R-spondin (U-Protein Express) | 2% | |
| Pożywka kondycjonowana Noggin (U-Protein Express) | 2% | |
| N-acetylocysteina | 500mM | 1mM |
| Nikotynamid | 1M | 10mM |
| Rekombinowany ludzki EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| SB202190 (inhibitor p38) | 30mM | 3uM |
| Prostaglandyna E2 | 10mM | 1uM |
| Substytut Wnt | 1000x |
Tabela 2: Pożywka do ekspansji ludzkich organoidów jelita.
| Składnik | Stężenie zapasu | Stężenie końcowe |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Pożywka podstawowa | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplement B27 | 50x | 1x |
| Penicylina/Streptomycyna | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Pożywka warunkowana R-spondin (U-Protein Express) | 2% | |
| Pożywka warunkowana Noggin (U-Protein Express) | 2% | |
| N-acetylocysteina | 500mM | 1mM |
| Rekombinowany ludzki EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Substytut Wnt | 1000x | |
| CHIR99021 | 3mM | 3uM |
| Rekombinowany ludzki IL-22 | 10 ug/ml | 2ng/ml |
Tabela 3: Pożywka do różnicowania ludzkich organoidów jelita.
| Składnik | Stężenie zapasu | Stężenie końcowe |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Pożywka podstawowa | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| Suplement B27 | 50x | 1x |
| Penicylina/Streptomycyna | 10000U/ml, 10000U/ml | 100U/ml, 100U/ml |
| Primocin | 50mg/ml | 100ug/ml |
| Pożywka kondycjonowana R-spondin (U-Protein Express) | 2% | |
| Pożywka kondycjonowana Noggin (U-Protein Express) | 2% | |
| N-acetylocysteina | 500mM | 1mM |
| Rekombinowany EGF człowieka | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Substytut Wnt | 30000x | |
| Rekombinowana IL-22 człowieka | 10 ug/ml | 2ng/ml |
Tabela 4: Pożywka do dojrzewania ludzkich organoidów jelitowych.
Dyskusja
Ten protokół zapewnia krok po kroku przepływ pracy dla konfokalnego obrazowania na żywo i śledzenia pojedynczych komórek w ludzkich i mysich organoidach jelitowych, zbudowany wokół dwóch uzupełniających się systemów eksperymentalnych: mozaikowych organoidów, które rozdzielają zachowanie pojedynczych komórek w gęstym nabłonku oraz organoidów reporterów losu wyrażających MUC2-mNeonGreen i DEFA5-dsRed do monitorowania przejść typu komórek wydzielniczych w czasie rzeczywistym.
W porównaniu z metodami o ustalonym czasie, takimi jak immunofluorescencja czy sekwencjonowanie RNA jednokomórkowego, obrazowanie na żywo rejestruje dynamikę przejść, a nie chwilowe ujęcia. W porównaniu z śledzeniem linii opartym na Cre, zapewnia ono rozdzielczość czasową do identyfikacji indywidualnych decyzji losowych. Podejście mozaikowe dodaje wewnętrznie kontrolowane porównania w tym samym kontekście tkankowym, unikając zakłócającej zmienności między organoidami.
Kilka kroków w protokole jest kluczowych dla sukcesu. W przypadku mozaiki o rozkładzie typu sól i pieprz dysocjacja organoidów do pojedynczych komórek musi być dokładna, ale delikatna: niekompletna dysocjacja powoduje duże klonalne plamy, podczas gdy nadmierna dysocjacja zmniejsza żywotność (Sekcja 4.3). 24-godzinny krok agregacji na płaskiej powierzchni przed ponownym zatopieniem w BME jest niezbędny do prawidłowego mieszania dwóch populacji; pominięcie go prowadzi do słabo zintegrowanych mozaik (Sekcja 4.6–4.8). Zarządzanie fototoksycznością podczas obrazowania wymaga starannej kalibracji, zaczynając od konserwatywnych ustawień lasera i zwiększając ich intensywność tylko jeśli oprogramowanie do śledzenia generuje zbyt wiele fałszywych negatywów (Sekcja 6.8).
Główne ograniczenia dotyczą zarówno wbudowanych ograniczeń systemów organoidowych, jak i obrazowania na żywo. Organoidy nie mają składników stromalnych, wydzielniczych i immunologicznych, które mogą wpływać na zachowanie komórek in vivo. W przypadku mikroskopii konfokalnej głębokość obrazowania jest ograniczona do około 100 μm od szkła pokrywowego, powyżej której rozpraszanie światła pogarsza jakość sygnału i dokładność śledzenia. Mikroskopia wielofotonowa i przestrzenna może znacznie zwiększyć ten zakres głębokości, jednak za wyceny dodatkowego sprzętu i adaptacji protokołu. Półautomatyczne podejście do śledzenia, choć znacznie wydajniejsze niż ręczne oznaczanie, nadal wymaga znacznego czasu korekcji, szczególnie w gęstych tkankach (Sekcja 7.4).
Obie strategie są łatwo rozszerzalne. Poprzez zmienianie reportera współwyrażanego z markerem jądra, można badać różne aspekty zachowania jednokomórkowego, od miozyny-II kortykalnej dla dynamiki mechanicznej po E-kaderyna stykowa dla remodelacji adhezyjnej, biosensorów wapnia takich jak tq-Ca-FLITS i ColBD-Twitch, lub biosensorów metabolicznych takich jak SoNar dla komórkowego stanu redoks NAD+/NADH, umożliwiając jednoczesne odczytywanie tożsamości komórki, linii i stanu fizjologicznego w obrębie tego samego organoidu9,25,26,27. Dostosowanie stosunku mieszania dostosowuje analizę: rzadko oznaczone komórki umożliwiają przypisanie membranowych sygnałów do pojedynczych komórek, podczas gdy rzadko nieoznakowane komórki ujawniają reakcje sąsiedztwa. Strategia reporterów losu jest rozszerzalna na dowolne endogenne lokusy dostosowanych do znaczników CRISPR-HOT lub HDR. Połączenie obu podejść w obrębie tego samego organoidu pozwoliłoby na jednoczesne śledzenie zobowiązań linii i dynamiki jednokomórkowej.
Szerzej rzecz biorąc, potok obrazowania i analizy może być stosowany do organoidów pochodzących z innych tkanek nabłonkowych, w tym modeli żołądkowych, jelitowych, wątrobowych i trzustkowych. Pochodzące z komórek pluripotentnych indukowanych (iPSC) organoidy są obiecującym rozszerzeniem, ponieważ etykieta jądra oparta na H2B i generowanie mozaiki przez mieszanie komórek są bezpośrednio przenoszone, a potok może umożliwić pacjenckie badania losu komórek i dynamiki konkurencyjnej. Syntetyczne modele zarodka, takie jak gastruloidy i pochodzące z komórek macierzystych embrioidy, są również nadające się do śledzenia jednokomórkowego, choć ich bardziej złożona geometria i wyższa gęstość jąder mogą wymagać ponownego trenowania modelu sieci neuronowej narzędzia do półautomatycznego śledzenia komórek organoidów i dostosowania parametrów obrazowania. Organoidy mózgowe stanowią dodatkowe wyzwania ze względu na ich dużą wielkość i gęstość optyczną, które ogranicza głębokość obrazowania konfokalnego. Co więcej, organoidy mózgowe wymagają tygodni do miesięcy na różnicowanie przed wykonaniem znaczących eksperymentów obrazowania, co znacznie zwiększa czas eksperymentu w porównaniu z organoidami jelitowymi. Niektóre protokoły organoidów mózgowych polegają na hodowli w zawiesinie zamiast na osadzaniu w BME, co jest niekompatybilne z opisanym tu podejściem do przygotowania próbki i wymagałoby adaptacji do formatów osadzanych w matrycy lub przymocowanych do powierzchni przed obrazowaniem.
Oświadczenia
H.C. jest wynalazcą patentów związanych z technologią organoidów. Wszyscy pozostali autorzy deklarują brak konfliktu interesów.
Podziękowania
To badania są finansowane przez Ministerstwo Edukacji, Kultury i Nauki Rządu Holandii poprzez projekt NWO Gravitation Material Driven Regeneration (024.003.013 ZWK MDR) oraz przez Europejską Radę Badawczą poprzez grant ERC Advanced Grant GutHormones (nr 101020405)
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | z kontrolą klimatu dla temperatury i CO2 |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | open source | open source https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | far-red live-cell nuclear dye | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | open source | open source https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | homemade | protocol to generate the plasmid DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | far-red live-cell DNA dye | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | custom order | |
| Wnt3A conditioned medium | homemade | The production of Wnt3A conditioned medium can be found here: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
Bibliografia
- Barker N, et al. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 2007;449(7165):1003-7.
- Clevers H. Shifting paradigms in tissue stem cell biology: insights from the intestine. Cell. 2026;189(3):706-24.
- Betjes MA, Kok RNU, Tans SJ, van Zon JS. Cell tracking with accurate error prediction. Nat Methods. 2025;22(11):2400-10.
- Sato T, et al. Single Lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche. Nature. 2009;459(7244):262-5.
- Sato T, et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 2011;141(5):1762-72.
- He GW, et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of Paneth cell formation. Cell Stem Cell. 2022;29(9):1333-45.e6.
- Artegiani B, et al. Fast and efficient generation of knock-in human organoids using homology-independent CRISPR-Cas9 precision genome editing. Nat Cell Biol. 2020;22(3):321-31.
- Celotti M, et al. Protocol to create isogenic disease models from adult stem cell-derived organoids using next-generation CRISPR tools. STAR Protoc. 2024;5(3):103189.
- Krueger D, et al. Epithelial tension controls intestinal cell extrusion. Science. 2025;389(6764).
- Buissant des Amorie JR, et al. Intestinal tuft cell subtypes represent successive stages of maturation driven by crypt-villus signaling gradients. Nat Commun. 2025;16(1):6765.
- Huang L, et al. Tuft cells act as regenerative stem cells in the human intestine. Nature. 2024;634(8035):929-35.
- Wang D, et al. Interferon-responsive intestinal BEST4/CA7+ cells are targets of bacterial diarrheal toxins. Cell Stem Cell. 2025;32(4):598-612.e5.
- Jain A, et al. Morphodynamics of human early brain organoid development. Nature. 2025;644(8078):1010-9.
- Krotenberg Garcia A, van Rheenen J, Suijkerbuijk SJE. Generation of mixed murine organoids to model cellular interactions. STAR Protoc. 2021;2(4):100997.
- Krotenberg Garcia A, et al. Active elimination of intestinal cells drives oncogenic growth in organoids. Cell Rep. 2021;36(1):109307.
- Serra D, et al. Self-organization and symmetry breaking in intestinal organoid development. Nature. 2019;569(7754):66-72.
- de Medeiros G, et al. Multiscale light-sheet organoid imaging framework. Nat Commun. 2022;13(1):4864.
- Huelsz-Prince G, et al. Mother cells control daughter cell proliferation in intestinal organoids to minimize proliferation fluctuations. eLife. 2022;11.
- Zheng X, et al. Organoid cell fate dynamics in space and time. Sci Adv. 2023;9(33).
- Okkelman IA, Foley T, Papkovsky DB, Dmitriev RI. Live cell imaging of mouse intestinal organoids reveals heterogeneity in their oxygenation. Biomaterials. 2017;146:86-96.
- Gros A, et al. A quantitative pipeline for whole-mount deep imaging and analysis of multi-layered organoids across scales. eLife. 2026;14.
- Nagarajan S, Naganathan SR. Pushing the limits of automated cell tracking. Nat Methods. 2025;22(11):2236-8.
- Kok RNU, et al. OrganoidTracker: efficient cell tracking using machine learning and manual error correction. PLoS One. 2020;15(10).
- Martinez-Silgado A, et al. Differentiation and CRISPR-Cas9-mediated genetic engineering of human intestinal organoids. STAR Protoc. 2022;3(3):101639.
- van der Linden FH, Okkelman IA, Ioannou M, Dmitriev RI. A turquoise fluorescence lifetime-based biosensor for quantitative imaging of intracellular calcium. Nat Commun. 2021;12(1):7159.
- Okkelman IA, Foley T, Papkovsky DB, Dmitriev RI. Extracellular Ca2+-sensing fluorescent protein biosensor based on a collagen-binding domain. ACS Appl Bio Mater. 2020;3(8):5310-21.
- Nguyen NTB, et al. Lactate controls cancer stemness and plasticity through epigenetic regulation. Cell Metab. 2025;37(4):903-19.e10.
Przedruki i uprawnienia
