Niniejsze badanie ocenia skuteczność leczenia preparatem Qi-fu-yin (QFY) u myszy 5xFAD. Wyniki wskazują, że podawanie QFY wiąże się z poprawą procesów uczenia się i pamięci, zmniejszeniem odkładania się Aβ w mózgu oraz redukcją starzenia się komórek, a także złagodzeniem uszkodzeń strukturalnych synaps w korze mózgowej.
Artykuł badawczy
Wpływ preparatu Qi-fu-yin na poprawę upośledzenia poznawczego i redukcję starzenia się komórek w mózgach myszy 5xFAD
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Choć mechanizm działania Qi-fu-yin (QFY), tradycyjnej receptury medycyny chińskiej, nie jest jeszcze w pełni poznany, wykazano jego potencjał terapeutyczny w chorobie Alzheimera (AD). Celem niniejszego badania było zbadanie związku między leczeniem QFY a upośledzeniem poznawczym u myszy 5xFAD. Wykorzystano pomiar siły chwytu, analizę chodu, test budowania gniazd, test pudełka wahadłowego, test wodnego labiryntu Morrisa oraz metodę ELISA do oceny poziomów białka Amyloid-β 1-42 (Aβ1-42), Aβ1-40, białka GAP-43 (Growth-associated protein 43), synaptofizyny (SYN) oraz białka gęstości postsynaptycznej 95 (PSD-95) w mózgach myszy 5xFAD. Do ilościowego oznaczenia poziomu fenotypu wydzielniczego związanego ze starzeniem (SASP) w korze mózgowej zastosowano analizę cytokin metodą Luminex. Ilość β-galaktozydazy związanej ze starzeniem (SA-β-Gal), odkładanie Aβ oraz gęstość kolców dendrytycznych w mózgach zwierząt zmierzono odpowiednio za pomocą barwienia SA-β-Gal, immunohistochemii oraz barwienia metodą Golgiego-Coxa. Testy immunofluorescencyjne wykazały, że leczenie QFY drastycznie zredukowało obciążenie kory blaszkami Aβ oraz zmniejszyło ekspresję p21 u myszy 5xFAD. Terapia QFY znacząco poprawiła zdolność uczenia się i pamięć, złagodziła procesy starzenia oraz zwiększyła zawartość białek GAP-43, PSD-95 i SYN w korze mózgowej myszy. Po zastosowaniu leczenia QFY odnotowano istotny spadek liczby blaszek Aβ i aktywności SA-β-Gal w mózgu, a także obniżenie poziomów Aβ1-42 oraz stosunku Aβ1-42/Aβ1-40 w hipokampie. Poziomy IL-1α, IL-1β, IL-6, IL-17A i IFN-γ uległy znacznemu obniżeniu w korze myszy 5xFAD. Analizy PCA i korelacji Pearsona wykazały silną ujemną korelację między cytokinami SASP a poziomami białek synaptycznych. Wyniki te sugerują związek między leczeniem QFY a poprawą w zakresie związanego z wiekiem pogorszenia funkcji poznawczych i fenotypów starzenia komórkowego u myszy 5xFAD, wraz z łagodzeniem uszkodzeń struktury synaptycznej. Otrzymane dane stanowią podstawę do dalszych badań nad QFY jako potencjalnym kandydatem terapeutycznym w leczeniu choroby Alzheimera.
Wprowadzenie
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Protokół
Wszystkie eksperymenty na zwierzętach zostały zatwierdzone przez Komisję Etyki ds. Dobrostanu Zwierząt Doświadczalnych Uniwersytetu Medycyny Tradycyjnej Chińskiej w Shandong (SDUTCM20221101001).
Leki
Proszek do suchego kremu z granulatem QFY został przygotowany i przetestowany przez Lunan Pharmaceutical Houpu Research and Development Center. Donepezil oraz Memantyna zostały zakupione w Shanghai Yuanye Technology. W badaniu wykorzystano samce myszy 5xFAD o początkowej masie ciała w zakresie 19–27 g. Dawkowanie QFY wyliczono na podstawie klinicznej dawki dla ludzi wynoszącej 43 g/d, co po uwzględnieniu proszku do suchego kremu z granulatem QFY odpowiada 16,297 g/d. Średnią dawkę dla niniejszego eksperymentu obliczono na podstawie klinicznej dawki dla ludzi (16,297 g/70 kg x 9,1 = 2,11861 g/kg/d). Dawkę wysoką ustalono na poziomie dwukrotności dawki średniej (4,24 g/kg/d), a dawkę niską na połowę dawki średniej (1,06 g/kg/d). Wszystkie roztwory leków podawano w objętości 0,1 mL na 10 g masy ciała.
Jako kontrolę pozytywną zastosowano połączoną administrację donepezilu i chlorowodorku memantyny. Dawki określono w odniesieniu do ich aktualnych dawek stosowanych w klinice (odpowiednio 10 mg/d i 20 mg/d) oraz wcześniejszych danych z naszej grupy badawczej, co pozwoliło ustalić schemat podawania donepezilu w dawce 1,0 mg/kg/d oraz memantyny w dawce 2,8 mg/kg/d, co dało łączną dawkę 3,8 mg/kg/d. Końcowe stężenie mieszaniny donepezilu i memantyny przygotowano jako 0,38 mg/mL, obliczone jako 3,8 mg/kg podzielone przez objętość administracji wynoszącą 0,1 mL na 10 g masy ciała.
Roztwory QFY w niskich, średnich i wysokich dawkach przygotowano w następujący sposób: 5,3 g, 10,6 g i 21,2 g suchego proszku QFY umieszczono w oddzielnych zlewkach o pojemności 100 mL, wymieszano z 30 mL wody oczyszczonej przy intensywnym mieszaniu, przeniesiono do cylindrów miarowych i dopełniono wodą oczyszczoną do końcowej objętości 50 mL, co pozwoliło uzyskać końcowe stężenia masowe odpowiednio 0,106 g/mL, 0,212 g/mL i 0,424 g/mL. W celu przygotowania kontroli pozytywnej 5 mg donepezilu oraz 14 mg memantyny rozpuszczono w wodzie oczyszczonej i dopełniono do końcowej objętości 50 mL. Zwierzęta w każdej grupie otrzymywały odpowiedni roztwór leku raz dziennie drogą gavage'ową.
Zwierzęta
Myszy transgeniczne 5xFAD [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] były hodowane w laboratorium. Zwierzęta utrzymywano w warunkach SPF na Uniwersytecie Tradycyjnej Medycyny Chińskiej w Shandong, przy temperaturze 22–24 oC, wilgotności 50–60% i 12-godzinnym cyklu światła i ciemności. Zwierzęta miały stały dostęp do pożywienia i wody.
Samce myszy 5xFAD w wieku 2,5 miesiąca zostały losowo przydzielone do pięciu grup: nieleczonych 5xFAD, grupy otrzymującej donepezil z memantyną, grupy otrzymującej niską dawkę QFY, średnią dawkę QFY oraz wysoką dawkę QFY. W roli grupy kontrolnej WT wystąpiły samce myszy typu dzikiego (WT) z tego samego miotu, w tym samym wieku. Leczenie podawano raz dziennie przez 220 dni (Rysunek 1).
Testy behawioralne
Test siły uścisku dłoni
Siłę mięśni szkieletowych przednich kończyn myszy zmierzono za pomocą dynamometru siły chwytu23. Podczas eksperymentu urządzenie pomiarowe ustawiono poziomo, zapewniając, aby mysz pozostawała równolegle do powierzchni stołu. Po włączeniu urządzenia mysz delikatnie umieszczono na płytce chwytnej. Gdy mysz pewnie chwyciła płytkę, jej ogon odciągano do tyłu z równą siłą, aż do momentu puszczenia chwytu przez zwierzę. Odnotowano maksymalną siłę chwytu. Pomiar ten powtórzono trzykrotnie, a średnią z tych wartości wykorzystano do określenia siły chwytu myszy.
Test chodu
Regularność chodu myszy mierzono za pomocą systemu CatWalk XT. Eksperyment podzielono na okres treningowy oraz okres testowy24. Na dzień przed badaniem myszy eksperymentalne przeniesiono do pomieszczenia doświadczalnego, aby umożliwić im adaptację do nowego środowiska. Podczas okresu treningowego myszy umieszczano w punkcie startowym, skąd biegły wzdłuż kanału do punktu końcowego. Każda mysz przechodziła trening trzy razy dziennie. Po 3 dniach treningu (do momentu, gdy każda mysz była w stanie szybko przejść przez kanał), zwierzęta wracały do klatek. Przebieg okresu testowego był analogiczny do okresu treningowego, a oprogramowanie komputerowe automatycznie analizowało trajektorię każdego ruchu. Wyświetlane były zielone kropki w przypadku prawidłowej trajektorii oraz pomarańczowe kropki w przypadku trajektorii nieprawidłowej; dla każdej myszy wymagano co najmniej trzech zielonych kropek, aby dane zostały uznane za kwalifikujące się do analizy w oprogramowaniu CatWalkXT 10.0.
Test skrzynki wahadłowej (shuttle box test)
Do oceny zdolności warunkowego aktywnego unikania u myszy wykorzystano test skrzynki wahadłowej25. Aparatura składała się ze skrzynki wahadłowej (18 cm x 18 cm) umieszczonej w komorze dźwiękochłonnej. Eksperyment obejmował 4-dniowy okres uczenia się, po którym nastąpił 1-dniowy okres testowy. Każdego dnia uczenia myszy miały 120-s okres adaptacji w skrzynce wahadłowej przed rozpoczęciem treningu. Każda próba rozpoczynała się od 6-s bodźca warunkowego (ton o natężeniu 70 dB i częstotliwości 1000 Hz połączony ze światłem o natężeniu 500 lux), po którym następował 3-s wstrząs elektryczny o natężeniu 0,3 mA podawany przez kratkę podłogową, a kończyła się 12-s przerwą między próbami. Jeśli mysz przeszła do przeciwległej komory podczas bodźca warunkowego, wstrząs był pomijany, a reakcję zapisywano jako aktywne unikanie. Jeśli mysz nie przeszła podczas bodźca warunkowego, lecz zrobiła to podczas wstrząsu elektrycznego, zapisywano to jako reakcję pasywnego unikania. Jeśli mysz nie przeszła przez cały czas trwania próby, zapisywano to jako brak ucieczki. Trening powtarzano przez 4 kolejne dni, wykonując 30 prób dziennie. W okresie testowym (dzień 5.) pominięto wstrząsy elektryczne, podczas gdy wszystkie pozostałe parametry pozostały takie same jak w okresie uczenia się. Liczbę reakcji aktywnego unikania zapisano jako główny miernik uczenia się i pamięci.
Labirynt wodny Morrisa
Do oceny zdolności uczenia się przestrzennego i pamięci zwierząt doświadczalnych wykorzystano test wodnego labiryntu Morrisa26. Eksperyment przeprowadzono w zbiorniku o średnicy 120 cm i głębokości 50 cm. Zbiornik napełniono mętna białą wodą, a temperaturę utrzymano na poziomie 21 °C. Platformę o średnicy 10 cm zainstalowano 1 cm poniżej powierzchni wody w jednym z kwadrantów. Wokół basenu rozmieszczono wskazówki wizualne służące myszom jako punkty orientacyjne w przestrzeni. Proces uczenia się trwał cztery kolejne dni, a sesje każdego dnia rozpoczynały się w jednym z trzech kwadrantów. Pozycje startowe zmieniały się pseudolosowo pomiędzy czterema kierunkami kardynalnymi. W każdej próbie procedurę kończono w momencie, gdy zwierzę pomyślnie dotarło do platformy. Ustalono maksymalny czas trwania próby wynoszący 60 s; jeśli zwierzę nie zdołało zlokalizować platformy w tym czasie, było ostrożnie do niej prowadzone. Po dotarciu do platformy zwierzę otrzymało krótką, 10 s przerwę przed powrotem do klatki domowej. Po zakończeniu okresu uczenia się, 24 h później rozpoczynał się okres testowy. W dniu 5. myszy umieszczano w kwadrancie przeciwległym do platformy. Odnotowano czas ucieczki w okresie testowym, czas przebywania w kwadrancie docelowym oraz liczbę przekroczeń obszaru, w którym pierwotnie znajdowała się podwodna platforma.
Test gniazdowania kolonii
Dzienną aktywność zwierząt doświadczalnych oceniano za pomocą testu budowy gniazd kolonii27. Eksperyment trwał 24 h, w każdej grupie znajdowały się trzy zwierzęta. Po podaniu leku w tym samym dniu przygotowano nowe klatki, wyścielone 6 g miękkiego papieru do budowy gniazd, a zdjęcia wykonywano po 6 h, 12 h i 24 h. Na koniec eksperymentu przyjęto następującą punktację: papier był rozrzucony po całej klatce i nie wykazano żadnych śladów gryzienia – 1 punkt; kawałki papieru zostały zgromadzone z boku klatki, lecz luźno, bez uformowanego gniazda i bez wyraźnego rozrywania lub składania – 2 punkty; kawałki papieru zostały zebrane i złożone w uformowane, lecz stosunkowo płaskie gniazdo bez wyraźnego rozrywania – 3 punkty; głębokie gniazdo z intensywnie poszarpanym papierem – 4 punkty. Na koniec eksperymentu pozostałą nierwaną tkanką (zdefiniowaną jako fragmenty papieru o masie >0,1 g, które nie zostały poszarpane ani włączone do gniazda) starannie zebrano, wysuszono na powietrzu i zważono przy użyciu wagi elektronicznej (precyzja: 0,01 g).
Próbkowanie i pobieranie próbek
Próbki pobrano wyłącznie z grup WT, 5xFAD oraz QFY (2,12 g/kg/d). Po uduszeniu CO2 odcięto głowy, a następnie szybko otwarto prawą półkulę, aby wyizolować hipokamp i korę, wypłukano je w roztworze soli fosforanowej (PBS) i umieszczono w zamrożonych probówkach o pojemności 1,5 mL w ciekłym azocie. Próbki przechowywano w temperaturze -80 oC do badań biochemicznych. Lewą półkulę utrwalono poprzez zanurzenie w 4% paraformaldehydzie na 24 h, odwodniono w etanolu absolutnym, zatopiono w parafinie, wykonano skrawki o grubości 5 µm i przeprowadzono deparafinizację w celu detekcji immunohistochemicznej.
Test immunoenzymatyczny (ELISA)
Testy ELISA przeprowadzono w celu ilościowego oznaczenia poziomu białek docelowych w tkankach mózgowych. Zawartość Aβ1–40 i Aβ1–42 w homogenatach hipokampa zmierzono przy użyciu zestawów komercyjnych, natomiast poziomy GAP-43, PSD-95 i SYN w korze określono za pomocą zestawów pochodzących od Jiangsu Enzyme Immunoassay Industry. Wszystkie procedury przeprowadzono ściśle zgodnie z protokołami producentów. Seria standardów została przygotowana poprzez rozcieńczenia seryjne zgodnie z instrukcją dołączoną do zestawu. Układ mikropłytki obejmował dołki kontrolne (blank), dołki ze standardami, dołki z próbkami 5xFAD, dołki z próbkami traktowanymi QFY (2,12 g/kg/d) oraz dołki z próbkami typu dzikiego. Przed naniesieniem wszystkie próbki rozcieńczono dwukrotnie w dostarczonym roztworze rozcieńczającym. Odczynniki dodawano, trzymając końcówkę pipety prostopadle do dna dołka, a następnie delikatnie mieszano w celu zapewnienia pełnego połączenia składników.
Po uszczelnieniu płytki przeprowadzono wstępną inkubację w temperaturze 37 °C przez 30 min. W tym czasie przygotowano bufor płuczący poprzez rozcieńczenie stężonego roztworu zapasowego wodą ultrapurystyczną w stosunku 1:29 (1 mL koncentratu na 29 mL wody). Po inkubacji usunięto folię uszczelniającą, odlano ciecz i osuszono płytkę. Każdy dołek napełniono następnie 200 µL buforu płuczącego, pozostawiono na 30 s, a następnie opróżniono; cykl ten powtórzono 5 razy. Do wszystkich dołków, z wyjątkiem próbek ślepych, dodano odczynnik znakowany enzymem (50 µL), po czym płytkę ponownie uszczelniono i inkubowano w temperaturze 37 °C przez 30 min, a następnie przeprowadzono identyczny pięciokrotny etap płukania.
W celu wywołania barwy do każdego dołka dodano 50 µL roztworu chromogenu A, a następnie 50 µL roztworu chromogenu B, delikatnie mieszając po każdym dodaniu. Płytkę inkubowano w ciemności w temperaturze 37 °C przez 10 min. Reakcję enzymatyczną przerwano poprzez dodanie 50 µL roztworu stopującego do każdego dołka, co spowodowało natychmiastową zmianę barwy z niebieskiej na żółtą. Absorbancję (gęstość optyczną) zmierzono przy 450 nm przy użyciu czytnika mikro płytek, wykorzystując dołki kontrolne (blank) jako referencję; wszystkie pomiary wykonano w ciągu 15 min od zatrzymania reakcji.
Luminex
Poziomy czynników SASP w korze mózgowej zmierzono przy użyciu zestawu Bio‑Plex Pro Mouse Cytokine 23‑plex Assay, wykonując wszystkie procedury zgodnie z instrukcjami producenta. Odczynniki wyjęto z przechowywania w 4 °C i pozostawiono na 30 min w celu wyrównania temperatury do temperatury pokojowej przed użyciem. Roztwory stokowe standardów rozcieńczano szeregowo w celu wygenerowania siedmiopunktowej krzywej wzorcowej oraz jednego dołka kontrolnego (blank), zgodnie z protokołem zestawu. Kulki magnetyczne wymieszano wstępnie i rozcieńczono do zalecanego stężenia roboczego; przeciwciała detekcyjne przygotowano w formie roztworów roboczych; a koncentrat buforu piorącego rozcieńczono do 1x wodą dejonizowaną. Konjugat PE‑streptawidyny rozcieńczono również do 1x, używając dołączonego buforu do rozcieńczania.
Do analizy, do wyznaczonych dołków zgodnie z układem płytki, dodawano sekwencyjnie 50 µL zawiesiny kuleczek, standardy, kontrole jakości oraz rozcieńczone próbki tkanek (5,6 µg/µL). Następnie płytkę szczelnie zamknięto i inkubowano przez noc w temperaturze 4 °C przy wytrząsaniu orbitalnym z prędkością 800 rpm. Po inkubacji kuleczki przemywano trzykrotnie 200 µL buforu do mycia na dołek. Następnie do każdego dołka dodano 50 µL przygotowanego przeciwciała detekcyjnego, a płytkę inkubowano w temperaturze pokojowej przez 1 h przy wytrząsaniu z prędkością 800 rpm. Po kolejnych trzech cyklach mycia wprowadzono 50 µL roztworu roboczego PE‑streptawidyny, a płytkę inkubowano przez dodatkowe 30 min w temperaturze pokojowej w tych samych warunkach wytrząsania. Przeprowadzono końcowy etap mycia (trzykrotnie 200 µL buforu do mycia), po czym do każdego dołka dodano 150 µL buforu do mycia i wytrząsano płytkę w temperaturze pokojowej przez 2 min przy 800 rpm przed odczytem na urządzeniu Bio‑Plex.
Barwienie SA-β-Gal i immunohistochemia
Barwienie SA-β-Gal przeprowadzono zgodnie z instrukcją zestawu Senescence β-Galactosidase Staining Kit. Po barwieniu SA-β-Gal sekcje poddano odsłanianiu antygenów poprzez ogrzewanie w buforze cytrynianowym (pH 6.0). Endogenną aktywność peroksydazy zablokowano, inkubując sekcje w roztworze blokującym peroksydazę przez 10 min w temperaturze pokojowej. Następnie sekcje inkubowano z króliczym przeciwciałem monoklonalnym anty‑Aβ₁-₄₂ (1:400) przez noc w temperaturze 4 °C. Po przemyciu sekcje inkubowano z wtórnym przeciwciałem anty‑króliczym/mysim IgG przez 20 min w temperaturze pokojowej. Po kolejnym przemyciu immunoreaktywność wizualizowano za pomocą DAB przez 2 min. Na koniec sekcje odwodniono, przejrzystowano i zamontowano w żywicy neutralnej do badania mikroskopowego.
Immunofluorescencja
Do barwienia immunofluorescencyjnego wykorzystano skrawki parafinowe, które odparafinowano w ksylenie (3 x 15 min) i rehydratowano w szeregu stężeń etanolu (100%, 95% i 75%; 2 x 5 min dla każdego stężenia). Odmaskowanie antygenów przeprowadzono poprzez zanurzenie skrawków w 1x buforze cytrynianu sodu w temperaturze 95 °C przez 30 min, a następnie stopniowe schładzanie do temperatury pokojowej. Po trzykrotnym płukaniu w soli fizjologicznej z Tween 20 (PBST) (po 5 min każde), skrawki permeabilizowano i blokowano w 10% prawidłowej surowicy koziej zawierającej 0,3% Triton X‑100 przez 90 min w temperaturze pokojowej. Następnie skrawki inkubowano z przeciwciałami pierwszorzędowymi przeciwko p21/CIP1/CDKN1A (1:200) oraz Aβ₁‑₄₂ (1:400) w 37 °C przez 2 h. Po czterokrotnym przemyciu w PBST (po 5 min każde), skrawki inkubowano z dopasowanymi gatunkowo przeciwciałami wtórnymi sprzężonymi z Alexa Fluor (1:500) w 37 °C przez 2 h w ciemności. Po dodatkowym przemyciu (4 x 5 min w PBST), skrawki zamontowano w medium montażowym antifade zawierającym DAPI i obrazowano za pomocą mikroskopu fluorescencyjnego.
Barwienie metodą Golgiego-Coxa
Barwienie metodą Golgiego-Coxa przeprowadzono przy użyciu komercyjnego zestawu zgodnie z instrukcją producenta. Roztwory A i B wymieszano 24 h przed eksperymentem. Po uśmierceniu myszy tkanki mózgowe szybko wyjęto, przepłukano w PBS i zanurzono w mieszaninie roztworów A i B. Tkanki przechowywano w temperaturze pokojowej w ciemności przez 6 h, po czym roztwór impregnujący wymieniono na świeży i kontynuowano inkubację przez kolejne 2 tygodnie w temperaturze pokojowej w ciemności (stosując co najmniej 2 mL roztworu impregnującego na jedną tkankę mózgu). Następnie tkanki przeniesiono do roztworu C i inkubowano przez 24 h, po czym wymieniono go na świeży roztwór C i inkubowano przez kolejne 7 dni w temperaturze pokojowej w ciemności. Tkanki mózgowe pocięto na skrawki o grubości 100 µm przy użyciu wibratomu. Skrawki naniesiono na szkiełka pokryte żelatyną i pozostawiono do wyschnięcia w temperaturze pokojowej na 3 dni. Szkiełka przepłukano dwukrotnie wodą destylowaną (po 5 min), a następnie zanurzono w mieszaninie roztworu D, roztworu E i wody destylowanej (w stosunku 1:1:2) na 15 min. Po dwóch dodatkowych płukaniach wodą destylowaną (po 5 min), skrawki odwodniono w szeregu roztworów etanolu o rosnącym stężeniu (50%, 75% i 95%; po 5 min każdy), a następnie przepłukano czterokrotnie w etanolu absolutnym (po 4 min) i trzykrotnie w ksylenie (po 5 min). Na koniec skrawki przykryto szkiełkami dekrywacyjnymi z użyciem medium montażowego. Obrazy zarejestrowano za pomocą mikroskopu, a gęstość kolców dendrytycznych oznaczono ilościowo w programie ImageJ.
Analiza statystyczna
Wszystkie wyniki przedstawiono jako średnią ± OD. Dane przeanalizowano i przedstawiono na wykresach za pomocą programu GraphPad Prism 8.1.0. Test t-Studenta tdo porównania dwóch grup wykorzystano test t. W przypadku porównań z udziałem wielu grup zastosowano jednoczynnikową analizę wariancji (ANOVA), a porównania parowe przeprowadzono za pomocą testu Dunnetta. Istotność statystyczną określono na poziomie p < 0.05.
Analizy wielowymiarowe i korelacyjne
Analizę głównych składowych (PCA) przeprowadzono przy użyciu programu GraphPad Prism 8.0.1 w celu wizualizacji grupowego klastrowania czynników SASP (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 i CCL5) w grupach WT, 5xFAD oraz QFY (2,12 g/kg/dobę) (n = 8 na grupę). Wykres wyników (score plot) wygenerowano na podstawie dwóch pierwszych głównych składowych. Przed analizą PCA nie zastosowano żadnej transformacji danych. Analizę korelacji Persona przeprowadzono w celu oceny liniowych zależności między czynnikami SASP a białkami synaptycznymi (PSD-95, GAP-43 i SYN), a także Aβ₁₋₄₀, Aβ₁₋₄₂ i stosunkiem Aβ₁₋₄₂/Aβ₁₋₄₀. Analizę wykonano za pomocą programu GraphPad Prism, przyjmując dwustronny próg istotności p < 0,05. Aby zwizualizować siłę i kierunek powiązań, wygenerowano macierze korelacji oraz mapę ciepła (heatmap).
Wyniki
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
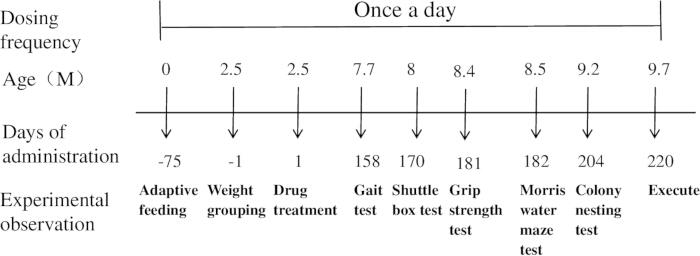
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
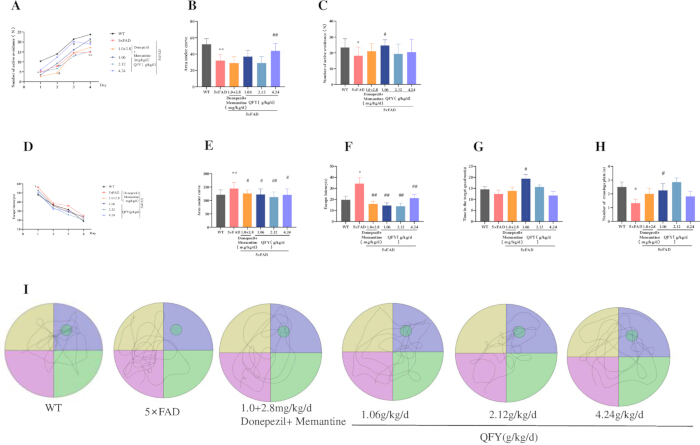
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
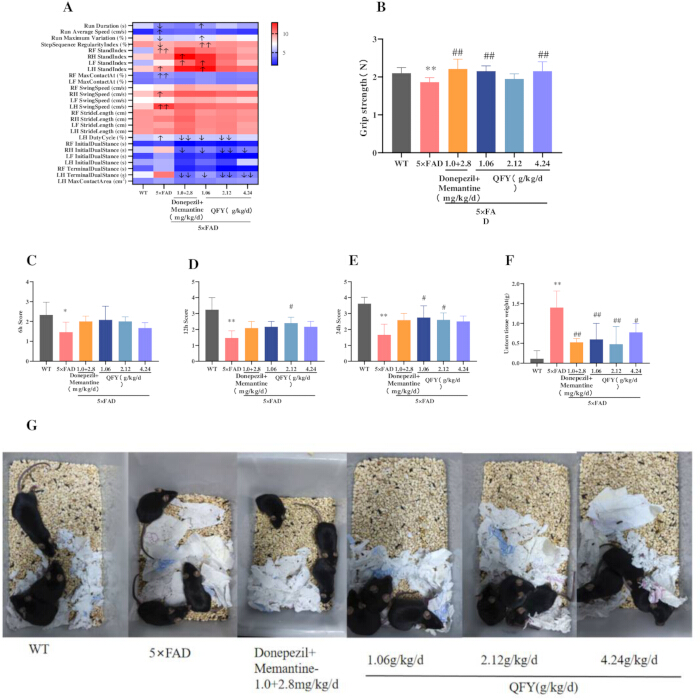
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
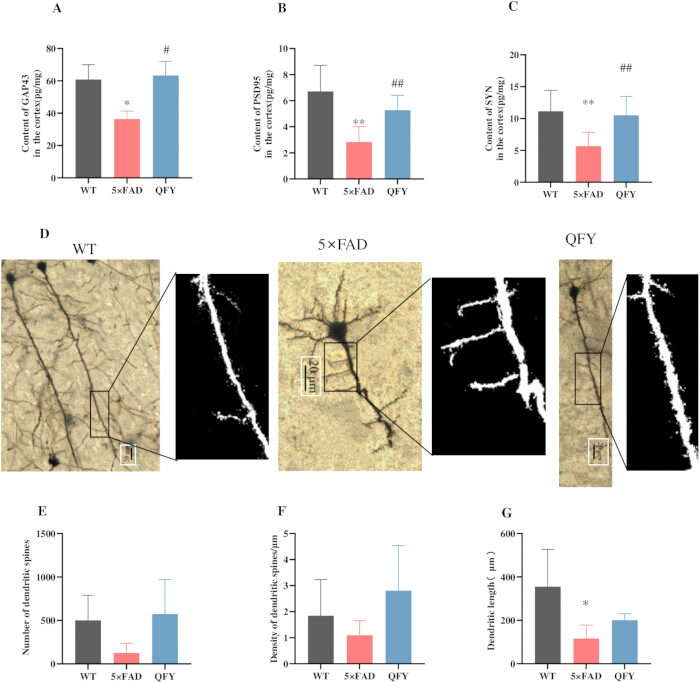
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
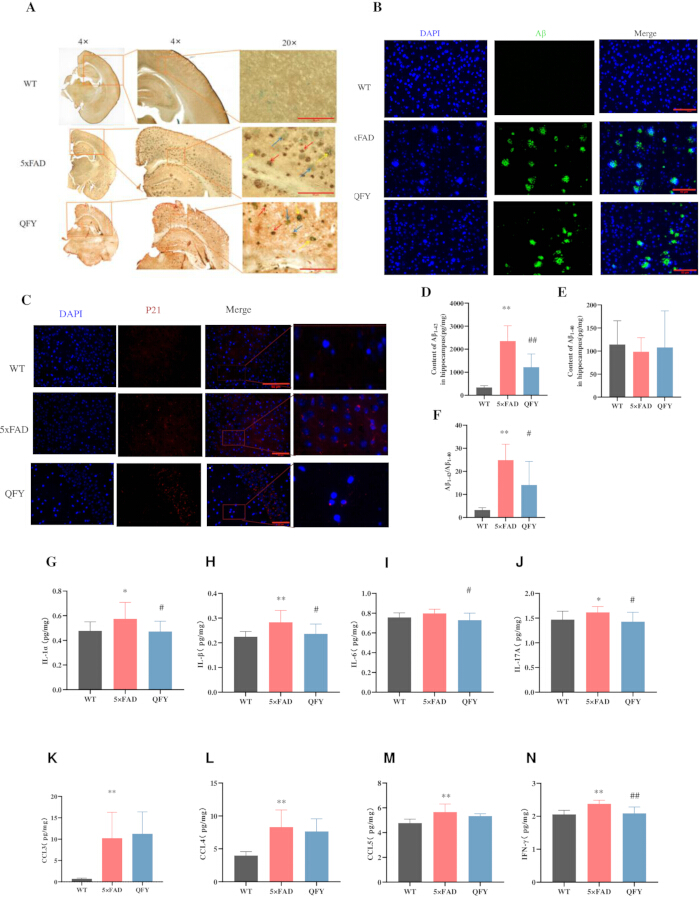
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
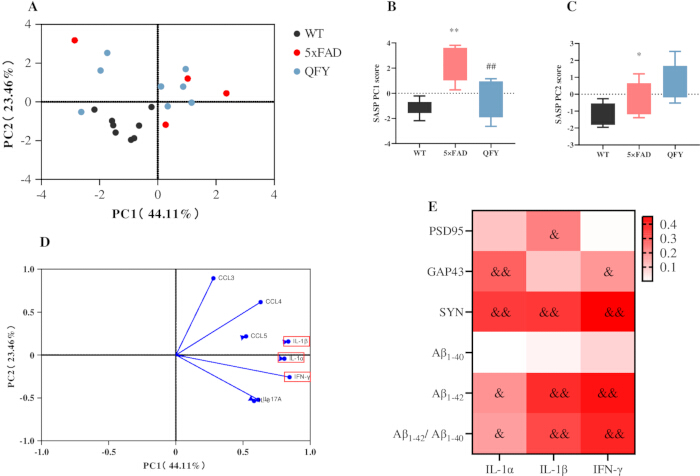
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
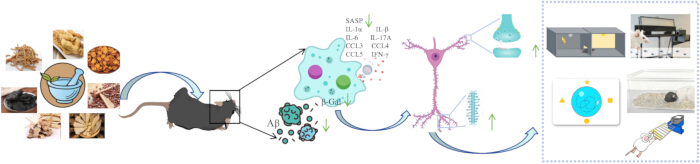
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Dyskusja
Plastyczność synaptyczna neuronów odgrywa kluczową rolę w funkcjach poznawczych. W mózgach pacjentów z AD złogi Aβ rozprzestrzeniają się w różnych obszarach, bezpośrednio powodując uszkodzenia strukturalne synaps, utratę synaps pobudzających oraz spadek funkcji poznawczych28. GAP-43 (białko błony presynaptycznej)29, PSD-95 (białko rusztowaniowe zlokalizowane w błonie postsynaptycznej)30 oraz SYN (fosfobiałko związane z pęcherzykami synaptycznymi)31 odgrywają istotną rolę w plastyczności struktury synaptycznej i patogenezie AD32. Niniejsze badanie wykazało, że leczenie QFY poprawiło procesy uczenia się i pamięci, zmniejszyło obciążenie blaszkami Aβ oraz przywróciło strukturę synaptyczną poprzez zwiększenie liczby kolców dendrytycznych oraz poziomu białek GAP-43, PSD-95 i SYN w mózgach myszy 5xFAD.
Starzenie się jest kluczowym czynnikiem ryzyka w rozwoju AD i sprzyja produkcji Aβ. Do charakterystycznych cech starzenia się należą zmniejszona siła mięśni, zaburzenia chodu oraz upośledzenie podstawowych czynności życia codziennego33,34. Wykazano, że starzenie się komórek, charakteryzujące się obecnością SA-β-Gal, jest powiązane ze starzeniem organizmu oraz występowaniem chorób związanych z wiekiem, takich jak AD11,35. Selektywna eliminacja starzejących się komórek przedłuża okres życia w zdrowiu i opóźnia rozwój chorób związanych z wiekiem36. Usuwanie senescencyjnych komórek za pomocą metod genetycznych lub farmakologicznych złagodziło odkładanie się Aβ oraz poprawiło funkcje uczenia się i pamięci u myszy w modelu AD37. Terapia skojarzona z zastosowaniem Dasatinibu i Kwercetyny (D+Q) zmniejsza starzenie się komórek progenitorowych oligodendrocytów, łagodzi neurostan zapalny, redukuje blaszki Aβ oraz aktywność SA-β-Gal, a także zapobiega akumulacji Aβ i upośledzeniu poznawczemu u myszy APP/PS137. Leczenie memantyną znacząco zredukowało aktywność SA-β-Gal w mózgach myszy SAMP8 i poprawiło przestrzenną zdolność uczenia się i pamięć; podobny efekt zaobserwowano przy zastosowaniu kombinacji memantyny i donepezilu38. Niniejsze badanie wykazało, że leczenie QFY poprawiło chód, wzmocniło mięśnie kończyn przednich oraz poprawiło sprawność w podstawowych czynnościach życia codziennego, przede wszystkim poprzez łagodzenie starzenia się komórek, co potwierdzono barwieniem SA-β-Gal w mózgach myszy 5xFAD.
Zarówno u pacjentów z AD, jak i w modelach zwierzęcych stwierdza się obecność starzejących się astrocytów, mikrogleju, komórek śródbłonka oraz neuronów39,40. Wydzielanie SASP, obejmującego chemokiny i cytokiny zapalne, jest charakterystyczną cechą starzenia się komórek; nadmierna sekrecja SASP może prowadzić do przewlekłego stanu zapalnego, skutkując uszkodzeniem tkanek i starzeniem się komórek41. Ciągła sekrecja SASP, w tym IL-1α, IL-1β, IL-6, IL-8, IFN-γ, CCL2, CCL3, CCL4, CCL5, CXCL1 itp., sprzyja przewlekłemu zapaleniu, starzeniu się prawidłowych komórek drogą parakrynną, zmianom w metabolizmie komórkowym i regulacji epigenetycznej, a także ciągłej produkcji Aβ42,43,44,45. Poziomy IL-1α, IL-1β, IL-6, IL-17A i IFN-γ są znacząco podwyższone w mózgach pacjentów z AD oraz w modelach AD46. Badania wykazały, że D+Q może hamować wydzielanie czynników zapalnych, w tym IL-1α i IFN-γ, oraz redukować blaszki Aβ i aktywność SA-β-Gal u myszy APP/PS137. W badaniu stwierdzono, że QFY obniżyło ekspresję kilku czynników SASP, w tym IL-1α, IL-1β, IL-6, IL-17A i IFN-γ, łagodząc tym samym zapalny fenotyp starzenia.
p21 należy do rodziny inhibitorów kinaz zależnych od cyklin CIP/KIP i działa jako bezpośredni hamulec kompleksów cyklina-CDK2/4, wymuszając tym samym zatrzymanie cyklu komórkowego w fazach G1/G2 w przypadku wystąpienia stresu komórkowego, uszkodzeń DNA oraz starzenia. Trwały wzrost poziomu p21 jest powszechnie interpretowany jako wejście w stabilny program senescencji47,48. Nowe dane wykazują, że myszy 5xFAD charakteryzują się wyjątkowo wysokim obciążeniem mózgu białkiem p21, które ulega znacznemu osłabieniu po jednoczesnym leczeniu D+Q49. Zgodnie z tym, niniejsze badanie wykazało, że podawanie QFY znacząco zredukowało blaszki Aβ w korze mózgowej i osłabiło ekspresję p21 u tych zwierząt.
łącznie wyniki te sugerują powiązanie między leczeniem QFY a poprawą w zakresie związanego z wiekiem pogorszenia funkcji poznawczych oraz fenotypów starzenia komórkowego u myszy 5xFAD, wraz z łagodzeniem uszkodzeń strukturalnych synaps (Rysunek 7).
Należy wskazać na kilka ograniczeń niniejszego badania. Po pierwsze, wykorzystano wyłącznie samce myszy 5xFAD, w związku z czym kwestia tego, czy zaobserwowane efekty są zależne od płci, pozostaje do ustalenia. Po drugie, choć przedstawione dane wykazują silne powiązania między złagodzeniem fenotypów związanych ze starzeniem a poprawą funkcji poznawczych, nie przeprowadzono bezpośrednich eksperymentów z interwencją mechanistyczną w celu ustalenia związku przyczynowo-skutkowego. Po trzecie, znaczenie translacyjne otrzymanych wyników w odniesieniu do ludzkiej choroby Alzheimera jest ograniczone przez różnice międzygatunkowe oraz brak klinicznych danych farmakokinetycznych. W celu rozszerzenia uzyskanych wyników zasadne jest przeprowadzenie przyszłych badań z uwzględnieniem samic, specyficznych interwencji przeciwstarzeniowych oraz odpowiednio zaprojektowanych badań klinicznych.
Oświadczenia
Autorzy nie deklarują żadnych konfliktów interesów.
Podziękowania
Praca ta była wspierana przez granty z National Natural Science Foundation of China (82205078, 82374062), Shandong Provincial Natural Science Foundation (ZR2026MS1293, ZR2021QH157), Shandong Province Traditional Chinese Medicine Science and Technology Project (M20251730), Science and Technology Projects of Xizang Autonomous Region, China (XZ202601ZY0167) oraz Shandong Province Technology Innovation Guidance Program (Central Government-Guided Local Science and Technology Development Fund) (YDZX2023137), w ramach projektu zatytułowanego „Development and Industrialization Research of Tongli Enteric‑Coated Capsules as a Class 1 New Traditional Chinese Medicine”.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Leki | |||
| Donepezil | Shanghai Yuanye Technology | lot.J15HB188725 | |
| Memantyna | Shanghai Yuanye Technology | partia J21HB189391 | |
| Qi-fu-yin | Centrum Badawczo-Rozwojowe Houpu firmy Lunan Pharmaceutical | partia 2209001 | |
| Testy behawioralne | |||
| CatWalk XT | Noldus | oprogramowanie CatWalkXT 10.0 | |
| Dynamometr do pomiaru siły uścisku dłoni | Biologia | BLD-ZL-20 | |
| Labirynt wodny Morrisa | Shanghai Xinruan Information Technology Co., Ltd | 120 cm | |
| Klatka typu shuttle box | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Przeciwciała | |||
| anty-Aβ1-42 przeciwciało | Abcam | Kat# ab201061 | |
| Przeciwciało anty-p21/CIP1/CDKN1A | Novus Biologicals | Kat# NBP3-15661 | |
| Zestawy do analiz | |||
| Aβ1-40 zestaw ELISA | Thermo Fisher Scientific | Nr kat. KHB3482 | |
| Aβ1-42 zestaw ELISA | Thermo Fisher Scientific | Kat# KHB3442 | |
| Zestaw do analizy Bio-Plex Pro Mouse Cytokine 23-plex Assay | R&Systemy D | Kat# LXLBM23-1 | |
| zestaw ELISA GAP-43 | Przemysł testów immunoenzymatycznych w prowincji Jiangsu | Kat# MM-47506M1 | |
| zestaw do barwienia metodą Golgiego-Coxa | BeiJing Biolead Biology Sci & Tech Co | Nr kat. PK401 | |
| Zestaw ELISA do oznaczania PSD-95 | Przemysł testów immunoenzymatycznych w prowincji Jiangsu | Nr kat. MM-45953M1 | |
| Starzenie się komórkowe βzestaw do barwienia na beta-galaktozydazę | Beyotime | Kat. nr C0602 | |
| Zestaw ELISA do oznaczania synaptofizyny (SYN) | Przemysł testów immunoenzymatycznych w prowincji Jiangsu | Kat# MM-46504M1 | |
| Odczynniki chemiczne & Odczynniki | |||
| Przeciwciała wtórne anty-królicze i anty-mysie przeciw IgG | Starter | Kat. nr S0C1001 | |
| chromogen DAB | Starter | Kat. nr S0C1001 | |
| Oprogramowanie | |||
| CatWalk XT | Noldus Information Technology | Wersja 10.0 | |
| ImageJ | National Institutes of Health (NIH) | Wersja 1.53 |
Bibliografia
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.