Niniejszy protokół opisuje pozakomórkowe rejestrowanie elektrofizjologiczne sygnałów rozrusznika pływania wywołanych wzrokowo z izolowanego rhopalium sześciościennej meduzy Tripedalia cystophora, co zapewnia ilościowy odczyt zachowania unikania przeszkód w celu precyzyjnego zbadania przetwarzania informacji wzrokowych i integracji sensoryczno-motorycznej.
Artykuł metodologiczny
Pozakomórkowa rejestracja elektrofizjologiczna sygnałów rozrusznika pływania wywołanych bodźcami wzrokowymi z izolowanego ropalium Tripedalia cystophora
W tym artykule
Podsumowanie
Streszczenie
Meduza pudełkowa Tripedalia cystophora łączy w sobie posiadanie soczewkowych oczu tworzących obraz i dobrze scharakteryzowane zachowania sterowane wzrokowo z łatwym do badania układem nerwowym rhopalium, składającym się z około 100 neuronów, co czyni ją nowym modelem do badań na poziomie systemowym nad przetwarzaniem informacji wzrokowych i integracją sensoromotoryczną. Neurony rozrusznika ruchu generują polecenia motoryczne bezpośrednio kontrolujące skurcze dzwonu, a sygnały te mogą być rejestrowane zewnątrzkomórkowo z nerwu szypułkowego naskórka wyizolowanego rhopalium, co stanowi ilościowy wskaźnik wzrokowo sterowanej odpowiedzi motorycznej. Siła odpowiedzi rozrusznika, określona jako zestandaryzowana aktywność neuronalna wyliczona z liczby sygnałów rozrusznika i częstotliwości chwilowej, skaluje się wraz z kontrastem bodźca powyżej progu przejścia decyzyjnego (DTT), co umożliwia stopniową ocenę wzrokowo sterowanej integracji sensoromotorycznej. W niniejszym protokole opisujemy wykonanie zewnątrzkomórkowych elektrod ssących, izolację rhopalium, konfigurację komory rejestracyjnej, dostarczanie bodźców wzrokowych do dolnego oka soczewkowego, weryfikację czasu trwania bodźca na poziomie sprzętowym, rozmieszczenie elektrod na nerwie szypułkowym naskórka oraz zsynchronizowaną akwizycję danych elektrofizjologicznych i bodźcowych przy użyciu standardowego sprzętu laboratoryjnego.
Wprowadzenie
Zrozumienie, w jaki sposób układy nerwowe przetwarzają informacje sensoryczne i przekładają je na zachowania adaptacyjne, stanowi centralne wyzwanie w neuronauce. Znaczne postępy poczyniono w badaniach nad dużymi, złożonymi organizmami modelowymi, takimi jak Drosophila melanogaster, której mózg składający się z około 200 000 neuronów umożliwił szczegółową analizę organizacji obwodów neuronalnych1, obok innych modeli podatnych genetycznie, dysponujących zaawansowanymi narzędziami obrazowania i mapowania obwodów. Jednakże sama złożoność tych systemów utrudnia pełne zrozumienie na poziomie systemowym zależności między bodźcem sensorycznym, obliczeniami neuronalnymi a wynikiem behawioralnym. Z drugiej strony spektrum złożoności znajdują się małe, w pełni zmapowane systemy, takie jak układ Caenorhabditis elegans, obejmujący 302 neurony2, oraz inne modele o minimalnej liczbie neuronów, które oferują przystępną skalę, lecz nie posiadają oczu tworzących obraz ani zależnych od nich zachowań kierowanych wzrokowo.
Tripedalia cystophora, karaibska osa morska (Rysunek 1A), wyłania się jako system modelowy dla przetwarzania informacji wizualnych na poziomie systemowym oraz integracji sensoryczno-motorycznej, zajmując charakterystyczną pozycję pomiędzy tymi ekstremami3. Opisany tutaj protokół (Rysunek 1) został opracowany, aby udostępnić pełen potencjał eksperymentalny tego zwierzęcia szerszemu środowisku neuronaukowemu.
T. cystophora posiada system wzrokowy o zdumiewającym stopniu zaawansowania jak na zwierzę o takiej złożoności neuronalnej. Każda z czterech struktur sensorycznych, zwanych rhopaliani, posiada sześć oczu, w tym dwa soczewkowe oczy tworzące obraz: górne oko soczewkowe (ULE) oraz dolne oko soczewkowe (LLE)4 (Rysunek 1B). Nie są to proste organy fotorecepcyjne – są one wyposażone w soczewkę o stopniowalnym współczynniku załamania typu Matthiessena (konstrukcja soczewki występująca również w oczach kręgowców) oraz wyewaginowaną siatkówkę, w której około 600 fotoreceptorów w LLE i 400 w ULE łączy się bezpośrednio z neuronami drugiego rzędu5,6,7. Skład molekularny mechanizmu fotorecepcyjnego, obejmujący opsyny cnidops homologiczne do c-opsyn kręgowców oraz powiązane komponenty fototransdukcji8,9,10, silnie sugeruje, że są to fotoreceptory hiperpolaryzacyjne, co plasuje system wzrokowy T. cystophora w tej samej szerokiej kategorii funkcjonalnej co oko kręgowców, pomimo jego niezależnego pochodzenia ewolucyjnego.
Co istotne, te inwestycje w układ optyczny są uzupełnione przez złożone, eksperymentalnie charakteryzowalne zachowania sterowane wzrokowo. T. cystophora porusza się w optycznie złożonym środowisku namorzynowym, wykorzystując nawigację dalekobieżną oraz detekcję słupów światła w celu utrzymania pozycji w siedlisku11,12, a także zachowanie unikania przeszkód, aby omijać zanurzone korzenie podporowe12,13,14. Neuroetologiczne ramy tej pracy zakładają, że zachowanie jest jedynym wiarygodnym wskaźnikiem przetwarzania sensorycznego u zwierząt nieposługujących się językiem. Ponieważ nie możemy zapytać zwierząt, co postrzegają, projekt eksperymentalny musi zostać dostosowany do bodźców, które zwierzę potrafi wykryć i zrozumieć, oraz do zachowań, które jest w stanie wykonać. Oznacza to, że pytania badawcze muszą być sformułowane w kategoriach dostępnych dla zwierzęcia, a nie badacza. Zachowanie unikania przeszkód u T. cystophora egzemplifikuje tę zasadę. Epidermis ośmiornicy skrzydlatej składa się tylko z jednej warstwy komórek, co sprawia, że kolizja z zanurzonym korzeniem podporowym może być śmiertelna ze względu na uszkodzenie delikatnego ciała. Ponieważ integracja międzyropalialna zachodzi jedynie w dalszych etapach za pośrednictwem nerwu pierścieniowego15, żaden pojedynczy układ nerwowy ropalium (RNS) nie otrzymuje nakładających się sygnałów binokularnych wymaganych do obliczenia głębi na podstawie dysproporcji stereoskopowej. Zamiast tego zwierzę wykorzystuje fundamentalną właściwość optyki podwodnej: kontrast między obiektem a otaczającą go wodą szybko zanika wraz ze wzrostem odległości. Przeszkoda o wysokim kontraście jest zatem przeszkodą bliską, stanowiącą bezpośrednie zagrożenie, podczas gdy przeszkoda o niskim kontraście znajduje się daleko i nie jest jeszcze groźna. Zwierzę wykorzystuje kontrast jako wskaźnik odległości16. U zwierząt w warunkach swobodnego zachowania reakcja unikania przeszkód (OAB) opiera się na decyzji typu „idź/nie idź”; zdarzenie jest wyzwalane, gdy zwierzę wykryje podwodną przeszkodę, której kontrast przekracza próg przejścia decyzyjnego (DTT) — próg, powyżej którego przeszkoda znajduje się wystarczająco blisko, by stanowić zagrożenie — i inicjuje reakcję „idź”: 3–5 szybkich skurczów dzwonu, obrót o 120–180° i szybkie odpłynięcie od przeszkody14 (Rysunek 1C). Stopniowana odpowiedź rozrusznika powyżej DTT odzwierciedla stopniowaną pilność zagrożenia16. OAB stanowi zatem wysoce podatny na analizę test behawioralny integracji sensoromotorycznej: jeden, dobrze zdefiniowany parametr wizualny (kontrast) kontroluje stereotypową, mierzalną odpowiedź motoryczną, co czyni go idealnym systemem do badania neuronowych podstaw procesów podejmowania decyzji sterowanych wzrokowo.
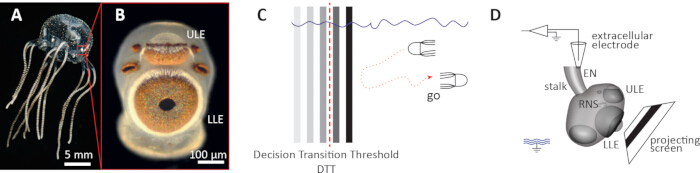
Rysunek 1: Przegląd preparatu izolowanego rhopalium Tripedalia cystophora do zewnątrzkomórkowych pomiarów elektrofizjologicznych. (A) Dorosła meduza T. cystophora. Pasek skali: 5 mm. Czerwona ramka wskazuje położenie jednego rhopalium na krawędzi dzwonu. (B) Powiększenie izolowanego rhopalium. Górne oko soczewkowate (ULE) i dolne oko soczewkowate (LLE) są oczami tworzącymi obraz. Pasek skali: 100 µm. Zdjęcie autorstwa Dan-Erica Nilssona, przedrukowane za zgodą autora. (C) Schematyczne przedstawienie zachowania unikania przeszkód (OAB). Poniżej progu przejścia decyzji (DTT, czerwona przerywana linia), zwierzę nadal płynie w stronę przeszkody (brak reakcji). Powyżej DTT inicjowane jest zachowanie unikania przeszkód (reakcja). (D) Schemat elektrofizjologicznego preparatu izolowanego rhopalium. Rhopalium jest ustawione przodem do nachylonego ekranu projekcyjnego. Elektroda zewnątrzkomórkowa rejestruje sygnały rozrusznika pływania z nerwu szypułkowego naskórkowego (EN). RNS: układ nerwowy rhopalium; ULE: górne oko soczewkowate; LLE: dolne oko soczewkowate; EN: nerw szypułkowy naskórkowy. Symbol uziemienia oznacza elektrodę referencyjną kąpieli. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Podłożem neuronalnym pośredniczącym w tym przetwarzaniu wizualnym jest RNS, składający się z około 1000 neuronów na rhopalium17. Pomimo tak niewielkiej liczby neuronów, RNS charakteryzuje się wyrafinowaną architekturą. Dowody immunohistochemiczne sugerują, że jest on zorganizowany w oddzielne klastry neuronów wykazujące odmienne profile neuropeptydowe18, co jest zgodne z przedziałową architekturą przetwarzania. Przypuszcza się, że informacje wizualne są przetwarzane przez podrzędne klastry oscylacyjne (subOCs), z których każdy jest powiązany z konkretnym okiem na rhopalium; klastry te zbiegają się w końcowym klastrze oscylacyjnym (trmOC) — który prawdopodobnie odpowiada populacji komórek rozrusznikowych generujących sygnał wyjściowy sterujący skurczami dzwonu3. Proponujemy, że trmOC integruje przetworzone informacje sensoryczne z subOCs i generuje sygnał rozrusznika pływania, który napędza behawioralną odpowiedź ruchową, oraz że synchronizacja między subOCs a trmOC leży u podstaw transformacji bodźca wizualnego w wyjściowy sygnał kontroli behawioralnej3 (Rysunek 2).
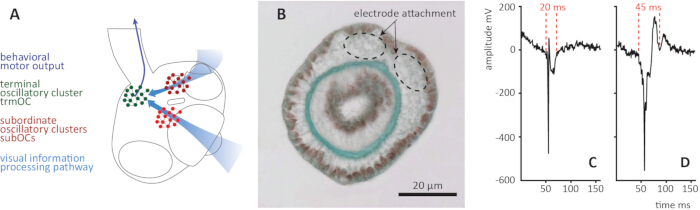
Rysunek 2: Pochodzenie obwodu neuronalnego i identyfikacja elektrofizjologiczna sygnału rozrusznika pływania u Tripedalia cystophora. (A) Schemat układu nerwowego rhopalii. Informacje wizualne są przetwarzane przez podrzędne klastry oscylacyjne (subOCs, czerwone) powiązane z poszczególnymi oczami i zbiegają się w końcowym klastrze oscylacyjnym (trmOC, zielony). Przypuszcza się, że trmOC integruje przetworzone informacje sensoryczne z subOCs i generuje sygnał rozrusznika pływania, który steruje motorycznym wyjściem behawioralnym. Jasnoniebieskie strzałki wskazują ścieżkę przetwarzania informacji wizualnych; ciemnoniebieska strzałka wskazuje motoryczne wyjście behawioralne. (B) Mikrofotografia TEM przekroju powierzchni trzonka epidermy. Przerywane okręgi wskazują dwa punkty przyczepienia rozwidlonego nerwu trzonka epidermy na powierzchni adoralnej trzonka, odpowiadające miejscom umieszczenia elektrod rejestrujących. (C) Sygnał przypominający potencjał czynnościowy. Postać fali charakteryzuje się gwałtownym, wąskim odchyleniem o czasie trwania około 20 ms (wskazane czerwonymi przerywanymi liniami). (D) Sygnał rozrusznika pływania pochodzący z trmOC. Postać fali jest szersza, o charakterystycznym czasie trwania około 45 ms (wskazane czerwonymi przerywanymi liniami) i wykazuje morfologię złożoną, odzwierciedlającą sumaryczną aktywność wielu neuronów trmOC. Chociaż amplitudy sygnałów są porównywalne dla obu typów sygnału, czas trwania i morfologia fali są wiarygodnymi kryteriami różnicującymi w dalszej analizie. Wszystkie wartości elektrofizjologiczne są wartościami po wzmocnieniu (×1000). Zmodyfikowano za zgodą Bieleckiego i wsp.24. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Taka architektura stwarza wyjątkową okazję eksperymentalną. Sygnał rozrusznika pływania generowany przez trmOC napędza skurcze dzwonu w ścisłej relacji jeden do jednego19 i może być rejestrowany zewnątrzkomórkowo z nerwu epidermalnego łodyżki wyizolowanego rhopalium13,20. Oznacza to, że wzrokowo wywołane komendy motoryczne, a co za tym idzie, sterowane wzrokiem reakcje behawioralne, mogą być monitorowane za pomocą metod elektrofizjologicznych w preparacie, z którego całkowicie usunięto same efektory motoryczne14. Wyizolowane rhopalium zajmuje zatem metodologiczną pozycję pośrednią, którą trudno osiągnąć w innych systemach: oferuje kontrolę eksperymentalną właściwą dla preparatów zredukowanych, w tym precyzyjne określanie czasowo-przestrzennych bodźców wzrokowych, zachowując jednocześnie bezpośredni, ilościowy odczyt wyjściowy aktywności neuronalnej istotnej dla zachowania. W warunkach niezakłóconych sygnały rozrusznika występują z częstotliwością 0,5–1 Hz; wzrokowo wywołane reakcje unikania przeszkód charakteryzują się wzrostem do 2–3 Hz, co zapewnia wyraźne okno sygnałowe do analizy14 (Rysunek 1D).
Kombinacja tych właściwości sprawia, że preparat izolowanego rhopaliów T. cystophora jest odpowiedni do badań przetwarzania wizualnego i integracji sensoryczno-motorycznej na poziomie systemowym. Preparat ten jest właściwy dla badaczy chcących zgłębić przetwarzanie wizualne, integrację sensoryczno-motoryczną lub dynamikę sieci oscylacyjnych w łatwym do analizy układzie nerwowym z oczami tworzącymi obraz i dobrze scharakteryzowanymi zachowaniami sterowanymi wzrokowo4. Do jego przygotowania wymagany jest standardowy sprzęt elektrofizjologiczny, zmodyfikowany projektor komercyjny oraz mikroskop sekcyjny; może on zostać opracowany w laboratorium bez specjalistycznej infrastruktury. Paradygmat asocjacyjnego uczenia się mechano-wizualnego — polegający na asocjacyjnym parowaniu jednoczesnej stymulacji wizualnej i mechanosensorycznej — opisany wcześniej dla tego preparatu14, może zostać wdrożony jako rozszerzenie podstawowego protokołu rejestracji opisanego w niniejszej pracy.
Protokół
W przypadku niniejszego badania nie wymagano zgody komisji etyki ds. zwierząt. Parzygnowce, w tym Tripedalia cystophora, wykraczają poza zakres dyrektywy 2010/63/UE w sprawie ochrony zwierząt wykorzystywanych do celów naukowych, która dotyczy wyłącznie głowonogów i kręgowców. Zwierzęta wykorzystane w badaniu zostały zebrane z namorzynowych potoków u wybrzeży La Parguera w Puerto Rico (USA), który nie jest stroną Protokołu z Nagoi w sprawie dostępu do zasobów genetycznych i sprawiedliwego i sprawiedliwego podziału korzyści; w związku z tym nie wymagano uprzedniej świadomej zgody ani umowy o dostępie i podziale korzyści. Tripedalia cystophora nie jest wymieniona jako gatunek zagrożony ani chroniony przez CITES ani żadne właściwe krajowe przepisy dotyczące ochrony przyrody.
1. Przygotowanie stanowiska i łańcucha sygnałowego
UWAGA: Wszystkie komponenty sprzętowe oraz ich połączenia przedstawiono na Ryc. 3. Należy odnosić się do Ryc. 3 w trakcie całej tej sekcji. Wszystkie kroki w tej sekcji muszą zostać wykonane przed przystąpieniem do pracy ze zwierzęciem. Na tym etapie komora rejestracyjna nie jest wypełniona wodą morską.
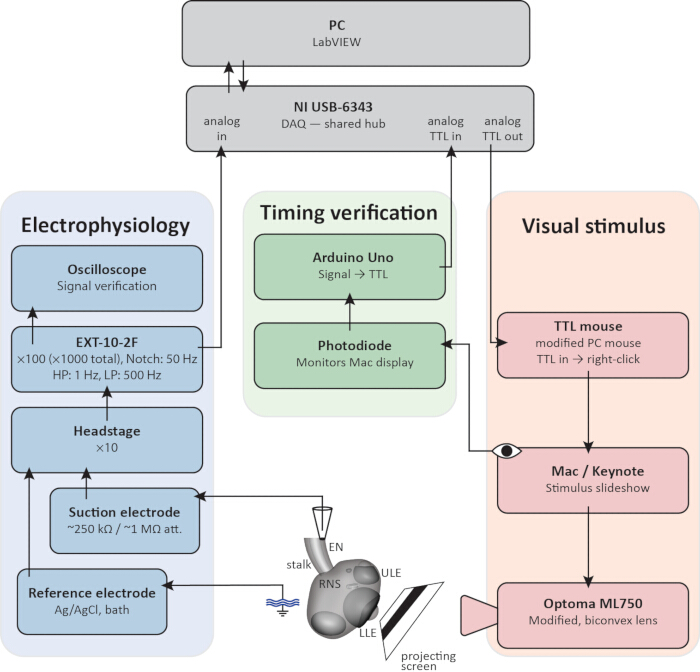
Rysunek 3: Schemat połączeń dla preparatu do zewnątrzkomórkowej elektrofizjologii izolowanego rhopalium. Komputer z uruchomionym programem VI oraz karta DAQ (góra, kolor szary) służą jako wspólny węzeł integracyjny dla wszystkich trzech łańcuchów sygnałowych. Łańcuch elektrofizjologii (niebieski): Sygnały rozsądu pływaniowego są rejestrowane z nerwu naskórkowego szypułki (EN) za pomocą elektrody ssącej (~250 kΩ wolna końcówka, ~1 MΩ po podłączeniu) oraz referencyjnej elektrody z granulatu Ag/AgCl umieszczonej w kąpieli, wzmacniane przez przedwzmacniacz EXT-10-2F (×10) i wzmacniacz główny (×100, łącznie ×1000) z filtrem pasmowym (HP: 1 Hz, LP: 500 Hz) i filtrem zaporowym 50/60 Hz, monitorowane na oscyloskopie i rejestrowane przez DAQ. Łańcuch stymulacji wizualnej (czerwony): Impuls TTL z DAQ przesuwa pokaz slajdów stymulujących za pomocą zmodyfikowanej myszy komputerowej (mysz TTL), sterując projektorem DLP (zmodyfikowany, soczewka biconvex), który rzutuje bodziec na nachyloną ścianę ekranu komory rejestracyjnej przed dolnym okiem soczewkowym (LLE). Łańcuch weryfikacji czasowej (zielony): Fotodioda monitoruje czarno-biały kwadrat wskaźnika na ekranie komputera, który zmienia kolor z białego na czarny w momencie rozpoczęcia stymulacji i powraca do białego po jej zakończeniu; układ Arduino Uno konwertuje ten sygnał na impuls TTL rejestrowany przez DAQ jako zweryfikowane okno stymulacji. RNS: rhopalial nervous system (układ nerwowy rhopalium); ULE: górne oko soczewkowe; LLE: dolne oko soczewkowe; EN: epidermal stalk nerve (nerw naskórkowy szypułki). Wszystkie wartości amplitudy podano po wzmocnieniu (×1000). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
- Konstrukcja komory rejestracyjnej
- Zaprojektuj lub wydrukuj w technologii 3D komorę rejestracyjną o wystarczających wymiarach wewnętrznych, aby pomieścić preparat, końcówkę mikropipety trzymającej oraz końcówkę elektrody rejestrującej.
UWAGA: Krytycznymi z punktu widzenia funkcjonalności elementami konstrukcyjnymi są krawędź pod szybkiem, która pozycjonuje rhopalium przy krawędzi szybka w odległości 2 mm od ekranu projekcyjnego, oraz wymiary ekranu (16 mm × 12 mm, nachylony pod kątem 60°), co wspólnie określa kąt widzenia bodźca wizualnego w oku z dolną soczewką. Opisana tutaj komora ma podstawę o wymiarach 30 mm × 30 mm i grubość ścianek wynoszącą około 5 mm. Rysunki techniczne znajdują się w Rysunek 4. - Umieść szkiełko nakrywkowe do hemacytometru Roth o wymiarach 20 mm × 26 mm na krawędziach dla szkiełek nakrywkowych w komorze rejestracyjnej. Szkiełko nakrywkowe utrzymuje się na miejscu dzięki wyporności ujemnej i nie wymaga mocowania za pomocą kleju.
- Zamocuj komorę rejestracyjną na stoliku mikroskopu, korzystając z otworów przelotowych M6. Zaleca się zastosowanie stolika translacyjnego x-y-z, ponieważ ułatwia on precyzyjne ustawienie rzutowanego obrazu na ścianie ekranu projekcyjnego komory rejestracyjnej.
- Podłącz porty wlotowy i wylotowy kanałów przepływowych komory rejestracyjnej (Rycina 4A) do kąpieli wodnej z kontrolowaną temperaturą i cyrkulacją wody w 28 °C.
UWAGA: Temperaturę komory rejestracyjnej należy utrzymać w zakresie 28–30 °C przez cały czas trwania eksperymentu.
- Zaprojektuj lub wydrukuj w technologii 3D komorę rejestracyjną o wystarczających wymiarach wewnętrznych, aby pomieścić preparat, końcówkę mikropipety trzymającej oraz końcówkę elektrody rejestrującej.
- Konfiguracja optyczna (Rysunek 3, łańcuch bodźców wzrokowych)
OSTRZEŻENIE: Nie należy patrzeć bezpośrednio w światło projektora, szczególnie przed zainstalowaniem filtrów neutralnych (Sekcja 4). Usunięcie systemu soczewek producenta eliminuje wbudowane tłumienie światła i może spowodować uszkodzenie wzroku.- Zdejmij system soczewek producenta z projektora.
- Zamocuj pojedynczą soczewkę dwupukłą (f = 30 mm) przed otworem wyjściowym projektora, aby skupić rzutowany obraz na ścianie pełniącej funkcję ekranu projekcyjnego w komorze rejestracyjnej.
- Ustaw projektor w taki sposób, aby rzutowany obraz był ostry na ścianie ekranowej komory rejestracyjnej i wypełniał wymiary ekranu (16 mm × 12 mm).
UWAGA: Na tym etapie nie należy wkładać filtrów neutralnych. Odpowiednia siła filtra zostanie określona empirycznie podczas kalibracji biologicznej w Sekcji 4.
- Montaż łańcucha sygnałowego (Rycina 3, elektrofizjologię i łańcuchy weryfikacji czasu)
- Podłącz uchwyt elektrody do ramienia przedwzmacniacza (headstage) dostarczonego wraz z wzmacniaczem EXT-10-2F, a następnie zamocuj ramię przedwzmacniacza w mikromanipulatorze MM33.
- Podłącz przedwzmacniacz (headstage) do wzmacniacza głównego. Wzmocnienie przedwzmacniacza wynosi ×10. Ustaw wzmocnienie wzmacniacza głównego na ×100, co daje całkowite wzmocnienie wynoszące ×1000.
- Podłącz wyjście wzmacniacza do analogowego kanału wejściowego przetwornika analogowo-cyfrowego (DAQ).
- Podłącz moduł DAQ do komputera z uruchomionym programem LabVIEW (wersja 2018 lub podobna) za pomocą złącza USB.
- Podłącz wyjście TTL Arduino Uno do dedykowanego kanału wejściowego analogowego modułu DAQ.
- Umieść fotodiodę nad czarno-białym kwadratem wskaźnikowym na ekranie komputera (krok 1.4.2). Podłącz terminal dodatni fotodiody do analogowego wejścia A0 kontrolera Arduino Uno, a terminal ujemny do masy. Program Arduino implementujący monitorowanie fotodiody oraz logikę progu wyjściowego TTL został udostępniony jako materiał uzupełniający (Plik uzupełniający 1).
- Projekt geometria bodźca (Rysunek 3, łańcuch bodźców wzrokowych)
- Zaprojektuj bodziec wizualny w oprogramowaniu do prezentacji jako poruszający się pionowy szary pasek na białym tle, imitujący przeszkodę w postaci podporowej korzeni namangrowca. Ustaw tło na maksymalną biel.
UWAGA: Poziom szarości paska względem białego tła określa kontrast bodźca i jest ustalany podczas charakteryzacji natężenia promieniowania w sekcji 4. Pasek powinien rozpiąć 30° kąta widzenia dolnego oka z soczewką (mierzonego w centrum pola widzenia) i poruszać się z 10° s-1 na całej szerokości pola widzenia, pozostając przez cały czas w polu widzenia. Kąt widzenia rzutowanej przeszkody można wyznaczyć za pomocą:
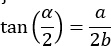
gdzie α to kąt widzenia, a to szerokość cechy obrazu, a b to odległość od dolnej soczewki oka do ekranu. Ruch paska jest zaimplementowany jako pojedyncza ciągła animacja obiektu (np. efekt „Przesuń” w programie Keynote) zastosowana do obiektu paska w obrębie jednego slajdu, a nie jako sekwencja oddzielnych slajdów. Reprezentatywny plik bodźca implementujący tę animację został dostarczony jako materiał uzupełniający (Plik uzupełniający 2). Ponieważ szerokość i prędkość paska określone są w kącie widzenia, a nie w jednostkach fizycznych, obie wartości muszą zostać przeliczone na milimetry i mm/s przy użyciu powyższego równania, w oparciu o konkretną odległość roboczą i wymiary ekranu komory rejestracyjnej, przed wprowadzeniem ich jako rozmiar obiektu i czas trwania animacji w oprogramowaniu do prezentacji. - W rogu slajdu należy umieścić mały czarno-biały kwadrat wskaźnikowy, który zmienia kolor z białego na czarny w momencie rozpoczęcia ruchu paska i powraca do koloru białego po zakończeniu bodźca. Kwadrat ten należy monitorować na ekranie komputera za pomocą fotodiody w celu weryfikacji czasu trwania bodźca w kroku 3.3.
UWAGA: Czarno-biały kwadrat wskaźnika musi znajdować się w obrębie obrazu rzutowanego na ekran komory rejestracyjnej, ponieważ musi być częścią slajdu, aby był widoczny na wyświetlaczu komputera podczas prezentacji. Kwadrat ten ma jednak taki rozmiar, aby wypełniać jedynie obszar recepcyjny fotodiody na wyświetlaczu komputera. Po rzutowaniu na ekran komory jest on na tyle mały, że nie jest rozróżnialny jako odrębna cecha wizualna przez oko z dolną soczewką, a jego wpływ na całkowitą luminancję ekranu jest pomijalny i nie wywołuje odpowiedzi na włączanie/wyłączanie światła (light ON/OFF).4,13,20. - Przełącz slajdy oprogramowania do prezentacji za pomocą wyzwalacza automatycznego lub ręcznego.
- Opcja A (zautomatyzowana): Konstrukcja myszy z logiką tranzystorowo-tranzystorową (TTL) poprzez modyfikację standardowej myszy komputerowej w taki sposób, aby krótki impuls TTL o napięciu 5 V otrzymany z wyjścia DAQ zastępował sygnał kliknięcia prawym przyciskiem. Podłącz mysz TTL do komputera prezentacyjnego za pomocą portu USB. Skonfiguruj oprogramowanie do prezentacji tak, aby przejście do następnych slajdów następowało po sygnale kliknięcia prawym przyciskiem.
- Opcja B (manualna): Ręczne wyzwalanie przejścia do następnego slajdu w zamierzonym momencie rozpoczęcia bodźca. Ponieważ do analizy (krok 6.2.1) jako ostateczny zapis czasowy wykorzystuje się weryfikowane przez Arduino okno bodźca (Kanał 3), a nie sam sygnał wyzwalający, ręczne wyzwalanie nie wpływa negatywnie na dokładność pomiaru czasu, choć wymaga precyzyjnego wyczucia czasu przez operatora podczas akwizycji i jest mniej wygodne niż opcja zautomatyzowana.
- Zaprojektuj bodziec wizualny w oprogramowaniu do prezentacji jako poruszający się pionowy szary pasek na białym tle, imitujący przeszkodę w postaci podporowej korzeni namangrowca. Ustaw tło na maksymalną biel.
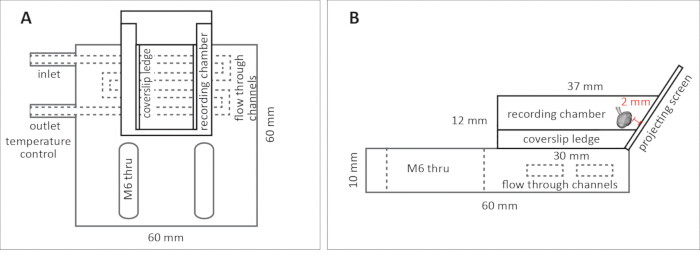
Rysunek 4: Komora rejestracyjna dla izolowanego preparatu rhopolium. (A) Schemat z widokiem z góry. Komora rejestracyjna jest flankowana przez kanały przepływowe do kontroli temperatury za pomocą płaszcza wodnego, z zaznaczonymi portami wlotowymi i wylotowymi (OD 4.2 mm, ID 2.5 mm). Podstawki pod szkiełko nakrywowe biegną wzdłuż obu wewnętrznych ścian komory, podtrzymując szkiełko nakrywowe hemacytometru na wysokości połowy komory. Przelotowe otwory M6 stanowią punkty montażowe do mocowania komory do stolika mikroskopu. Wymiary całkowite: 60 mm × 60 mm. (B) Schemat z widokiem z boku wraz z wymiarami. Komora rejestracyjna ma wysokość wewnętrzną 12 mm i szerokość górną 37 mm. Jedna ze ścian komory tworzy ekran projekcyjny, nachylony pod kątem 60° względem pionu, aby zrównać się z osią optyczną dolnego okularu soczewki. Podstawka pod szkiełko nakrywowe pozycjonuje rhopalium przy krawędzi szkiełka skierowanej w stronę ekranu projekcyjnego. Przedstawiony 2 mm odstęp roboczy odzwierciedla specyficzną konfigurację komory, ekranu i projektora opisaną w niniejszym protokole; czytelnicy adaptujący tę konstrukcję do innego sprzętu powinni przeliczyć odpowiedni odstęp roboczy dla własnej konfiguracji, korzystając z równania w kroku 1.4.1. Kanały przepływowe do kontroli temperatury przebiegają w podstawie komory rejestracyjnej i nie mają kontaktu z preparatem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Wykonanie elektrod
UWAGA: Pozakomórkowe elektrody ssące składają się ze szklanych rurek kapilarnych z zbieżnymi końcówkami, które zostały wyciągnięte w celu utworzenia otworu odpowiedniego do adhezji poprzez ssanie i rejestracji potencjałów elektrycznych. Kapilara szklana służy jako izolacja elektryczna, zapewniając rejestrację potencjałów wyłącznie na końcówce. Wprowadzony do kapilary srebrny drut łączy ją z wzmacniaczem. Taka konfiguracja umożliwia rejestrację wielojednostkową, przechwytując potencjały elektryczne z grup komórek rozsądrzenia na końcówce elektrody, mierzone względem elektrody odniesienia umieszczonej w kąpieli. Elektrody powinny być wykonane w dniu użycia, przed sesją rejestracyjną. Przechowywane elektrody są podatne na zatkanie końcówki, co uniemożliwia zassanie wody morskiej do kapilary i sprawia, że elektroda staje się niefunkcjonalna. Wyciągnięte kapilary szklane mają ostre, kruche końcówki. Należy z nimi obchodzić się ostrożnie podczas przygotowania, aby uniknąć obrażeń od nakłucia, a uszkodzone, odrzucone lub zużyte kapilary należy utylizować w wyznaczonym pojemniku na odpady ostre.
- Wyciąganie szklanej rurki kapilarnej
- Włożyć borokrzemianową rurkę kapilarną (1,16 mm ID × 2,00 mm OD × 80 mm L) do wyciągacza mikropipet.
- Uruchomić następujący program wyciągania: Linia 1 (×1): heat 535, pull 0, velocity 12, time 200, pressure 600, ramp 540. Linie 2–4 (×3): heat 532, pull 0, velocity 12, time 100.
UWAGA: Parametry te są specyficzne dla użytego urządzenia, szkła i włókna i mogą wymagać dostosowania w przypadku innego urządzenia lub po zużyciu włókna; należy traktować je jako punkt wyjścia, a nie stałą specyfikację. - Ostrożnie wyjąć wyciągniętą elektrodę i przechowywać ją końcem do góry, aby zapobiec uszkodzeniom mechanicznym.
- Polerowanie końcówki elektrody
- Wypolerować końcówkę, aby stworzyć gładką powierzchnię uszczelnioną próżniowo, prostopadłą do osi kapilary. Należy zapoznać się z dwiema poniższymi opcjami; zaleca się Opcję A (mikrokuźnia).
- Opcja A: Polerowanie za pomocą mikrokuźni (zalecane)
- Zamocować wyciągniętą elektrodę w mikrokuźni.
- Pod powiększeniem 600× (obiektyw 40×, okular 15×) ustawić końcówkę w pobliżu włókna grzejnego.
- Nagrzewać i polerować końcówkę, aż otwór osiągnie oporność około 250 kΩ (co odpowiada ~1 MΩ w kontakcie z tkanką). Przy powiększeniu 600× odpowiada to około trzem podziałkom na skali siatki okularowej.
UWAGA: Aby zmierzyć oporność elektrody, należy połączyć multimetrem rdzeń BNC (podłączony do srebrnego drutu elektrody) i elektrodę odniesienia kąpieli (pellet Ag/AgCl), gdy elektroda zostanie wypełniona wodą morską. Pomiar oporności elektrycznej nie jest wymagany dla standardowych rejestracji wywołanych wzrokowo, gdzie głównym kryterium przydatności elektrody jest jakość sygnału (krok 6.1.5); staje się on konieczny, gdy preparat ten jest wykorzystywany w paradygmacie uczenia się asocjacyjnego wymagającym obliczonego dostarczenia prądu, co wykracza poza zakres niniejszego protokołu14. - Pozostawić elektrodę do całkowitego ochłodzenia przed wyjęciem z mikrokuźni.
- Opcja B: Ręczne polerowanie bez użycia mikrokuźni
OSTRZEŻENIE: Ten krok wykorzystuje otwarty płomień (palnik etanolowy). Należy trzymać materiały łatwopalne z dala od płomienia i przestrzegać standardowych środków ostrożności przy pracy z otwartym ogniem w laboratorium.- Krótko przytrzymać końcówkę wyciągniętej kapilary w płomieniu palnika etanolowego, aż szkło się stopi i zamknie końcówkę w formie drobnej kropelki.
- Pozostawić uszczelnioną końcówkę do całkowitego ochłodzenia.
- Nanieść kroplę wody dejonizowanej na arkusz drobnego papieru ściernego (ziarnistość 1200) i trzymać kapilarę prostopadle do powierzchni papieru.
- Szlifować końcówkę małymi ruchami okrężnymi, naprzemiennie zgodnie i przeciwnie do ruchu wskazówek zegara.
- Kontynuować ostrożne szlifowanie, aż niewielka ilość wody z zanieczyszczeniami szklanymi zostanie wciągnięta do końcówki przez działanie kapilarne.
- Zamocować gumową rurkę do przeciwległego końca kapilary i podłączyć ją do strzykawki.
- Zastosować delikatne ssanie, aby przepłukać końcówkę wodą dejonizowaną, usuwając pozostałości szkła.
- Jeśli zanieczyszczenia nie zostaną usunięte, delikatnie szlifować przez krótki czas i powtórzyć krok płukania.
UWAGA: Docelowa szybkość przepływu przez gotową końcówkę wynosi około 1 cm słupa wody na 10 s przy delikatnie zastosowanym ssaniu. Sukces wykonania końcówki definiuje wynik rejestracji (sygnał o niskim poziomie szumów i wysokiej amplitudzie), a nie wygląd końcówki. Około 40%–50% wykonanych elektrod dla obu opcji polerowania pozwala na uzyskanie takich rejestracji, choć czynnik ograniczający różni się między nimi. W przypadku polerowania w mikrokuźni (Opcja A) niepowodzenie najczęściej wynika z nierównomiernej geometrii porów powstałej podczas etapu wyciągania (krok 2.1), czego późniejsze polerowanie termiczne nie może w pełni skorygować. W przypadku polerowania ręcznego (Opcja B) sukces zależy przede wszystkim od umiejętności operatora; najczęstszym błędem jest zbyt duży por powstały w wyniku nadmiernego szlifowania. Gładki, odpowiednio wielki i okrągły por znacznie zwiększa prawdopodobieństwo uzyskania wysokiej jakości rejestracji, ale jej nie gwarantuje — jedynym kryterium, które ostatecznie ma znaczenie, jest wynik funkcjonalny.
- Montaż elektrody
- Wsunąć wypolerowaną rurkę kapilarną do uchwytu elektrody, upewniając się, że drut Ag/AgCl (srebro/chlorek srebra) jest wyprostowany i nie posiada zagięć wewnątrz szklanej kapilary, a następnie zamontować go w ramieniu headstage dostarczonym z wzmacniaczem EXT-10-2F. Zabezpieczyć ramię headstage w mikromanipulatorze MM33.
UWAGA: Jeśli drut srebrny nie jest chlorowany, należy go schlorować elektrochemicznie, zanurzając zarówno srebrny drut elektrody, jak i oddzielną solidną elektrodę srebrną w roztworze 2 M KCl, połączonych za pomocą izolowanych przewodów z 12 V źródłem prądu stałego DC. Prąd należy przykładać w odstępach około 2 min, wizualnie kontrolując drut pomiędzy cyklami; drut jest wystarczająco schlorowany, gdy widocznie ściemnieje, zazwyczaj w ciągu łącznie 5 min. Po chlorowaniu dokładnie wypłukać wodą dejonizowaną. Nieschlorowany drut może wprowadzić duże i niestabilne przesunięcie DC.
OSTRZEŻENIE: Elektrolityczne chlorowanie w roztworze KCl generuje gazowy chlor i wodór. Należy przeprowadzać tę czynność w wentylowanym pomieszczeniu. Zużyty roztwór KCl do chlorowania należy utylizować zgodnie z instytucjonalnymi wytycznymi dotyczącymi odpadów niebezpiecznych. - Wypełnić elektrodę bezpośrednio przed rejestracją, wciągając wodę morską bezpośrednio z wypełnionej komory rejestracyjnej do kapilary, aż roztwór wewnętrzny osiągnie połowę wysokości srebrnego drutu. Procedurę napełniania przedstawiono w kroku 3.1.
UWAGA: Mikropipety utrzymujące nie wymagają specyfikacji optycznej ani elektrycznej właściwej dla elektrod rejestrujących. Elektrody odrzucone podczas wykonania (krok 2.2) z powodu nadmiernej średnicy końcówki (oporność poniżej 250 kΩ) lub niesymetrycznej geometrii końcówki nadają się do tego celu i powinny zostać zachowane. Fabrykowanie dedykowanych mikropipet utrzymujących jest niepotrzebne.
- Wsunąć wypolerowaną rurkę kapilarną do uchwytu elektrody, upewniając się, że drut Ag/AgCl (srebro/chlorek srebra) jest wyprostowany i nie posiada zagięć wewnątrz szklanej kapilary, a następnie zamontować go w ramieniu headstage dostarczonym z wzmacniaczem EXT-10-2F. Zabezpieczyć ramię headstage w mikromanipulatorze MM33.
3. Walidacja systemu
W tej sekcji weryfikuje się, czy cały system rejestracji — elektroda, tor sygnałowy, dostarczanie bodźców oraz weryfikacja czasowa — działa prawidłowo przed wprowadzeniem preparatu eksperymentalnego. Kompletny tor sygnałowy przedstawiono na Rysunku 3. Przed przejściem dalej należy sprawdzić, czy wszystkie połączenia zostały wykonane.
- Napełnianie komory i przygotowanie elektrod
- Napełnij komorę rejestracyjną wodą morską przefiltrowaną przez membranę 0,20 µm, pobraną ze zbiornika hodowlanego. Zapewnia to ciągłość składu chemicznego między środowiskiem hodowlanym a komorą rejestracyjną, zapobiegając narażeniu rhopalium na obce związki lub zmiany w chemii wody, które mogłyby wpłynąć na aktywność rozrusznika lub żywotność preparatu.
- Napełnij ssącą elektrodę rejestracyjną, wciągając wodę morską bezpośrednio z komory rejestracyjnej do kapilary, aż roztwór wewnętrzny osiągnie połowę wysokości srebrnego drutu. Napełnij mikropipetę trzymającą odpowiednią ilością wody morskiej z komory rejestracyjnej, aby umożliwić przyssanie do kryształu.
- Umieść spiekaną elektrodę Ag/AgCl (srebro/chlorek srebra) w kąpieli rejestracyjnej i podłącz ją do wejścia referencyjnego wzmacniacza przedwzmacniacza (headstage).
- Uziemienie i weryfikacja szumów
UWAGA: Układ ten wykorzystuje sprzęt elektryczny w bliskim sąsiedztwie wody morskiej. Należy trzymać wszystkie połączenia i urządzenia elektryczne z dala od komory oraz wszelkich rozlanych cieczy i przestrzegać instytucjonalnych zasad bezpieczeństwa elektrycznego podczas pracy w środowisku mokrym.- Uziem wszystkie instrumenty do jednego wspólnego punktu uziemienia (konfiguracja uziemienia gwiazdy), aby zapobiec powstawaniu pętli masy.
- Monitoruj sygnał na oscyloskopie. Przed kontynuacją upewnij się, że linia bazowa jest czysta i wolna od szumów.
UWAGA: Klatki Faradaya nie są zazwyczaj stosowane w naszym laboratorium podczas rejestracji zewnątrzkomórkowej, ponieważ rygorystyczne uziemienie gwiazdy okazuje się konsekwentnie skuteczniejsze w eliminowaniu szumów elektrycznych (50/60 Hz) niż ekranowanie fizyczne.
- Łańcuch weryfikacji czasu
- Uruchom wirtualny instrument (VI) LabVIEW (dostarczony jako materiał uzupełniający, Supplementary File 3). Uruchom VI podczas walidacji systemu. Przesyła on impuls TTL do myszy TTL w celu wyzwolenia generowania bodźca oraz tworzy plik wyjściowy .txt, który pozwala zweryfikować, czy wszystkie kanały — sygnał elektrofizjologiczny, TTL LabVIEW i TTL Arduino — są poprawnie rejestrowane przed wprowadzeniem preparatu eksperymentalnego.
UWAGA: Opóźnienie między zarejestrowanym w LabVIEW poleceniem TTL a zweryfikowanym przez Arduino początkiem bodźca zmienia się nieprzewidywalnie między poszczególnymi pomiarami i nie jest rozwiązywane na tym etapie; jest ono zamiast tego wyznaczane i korygowane indywidualnie dla każdego pomiaru podczas analizy (krok 7.2.1). - Zweryfikuj, czy impuls TTL z DAQ poprawnie wyzwala generowanie bodźca i czy bodziec wizualny jest dostarczany na ekran projekcyjny zgodnie z projektem.
- Zweryfikuj, czy Arduino Uno wykrywa zmianę czarno-białego kwadratu wskaźnikowego na wyświetlaczu komputera i wysyła impuls TTL do DAQ.
UWAGA: Arduino Uno próbkuje napięcie fotodiody za pomocą funkcji analogRead(A0). Gdy próbkowana wartość spadnie poniżej empirycznie wyznaczonego progu (61 w zakresie analogRead od 0 do 1023 w tej konfiguracji), cyfrowy pin wyjściowy 5 zostaje ustawiony na 5 V (TTL high); gdy wartość powróci powyżej progu, wyjście wraca do 0 V. Próg ten zależy od konfiguracji sprzętowej i musi być rekalibrowany dla każdego ekranu i konfiguracji oświetlenia otoczenia. - Potwierdź, że TTL okna bodźca z Arduino Uno jest poprawnie zapisywany w pliku .txt generowanym przez VI LabVIEW, obok kanału elektrofizjologicznego i cyfrowego kanału TTL VI.
UWAGA: Sygnał z fotodiody nie jest rejestrowany bezpośrednio przez DAQ, ponieważ surowe wyjście z fotodiody jest zbyt zaszumione dla niezawodnego wykrywania bodźców na wejściu DAQ. Konwersja na czysty impuls TTL przez Arduino Uno zapewnia niezawodny, niskoszumowy sygnał czasowy. Szkic Arduino implementujący monitorowanie fotodiody i wyjście TTL jest dostarczony jako materiał uzupełniający (Supplementary File 1). Częstotliwość odświeżania Arduino wynosząca 1 kHz odpowiada częstotliwości próbkowania DAQ, co gwarantuje, że żadne informacje o czasie nie zostaną utracone. - Po zweryfikowaniu wszystkich kanałów opróżnij komorę rejestracyjną i wyjmij z niej elektrodę w przygotowaniu do sekcji 4.
- Uruchom wirtualny instrument (VI) LabVIEW (dostarczony jako materiał uzupełniający, Supplementary File 3). Uruchom VI podczas walidacji systemu. Przesyła on impuls TTL do myszy TTL w celu wyzwolenia generowania bodźca oraz tworzy plik wyjściowy .txt, który pozwala zweryfikować, czy wszystkie kanały — sygnał elektrofizjologiczny, TTL LabVIEW i TTL Arduino — są poprawnie rejestrowane przed wprowadzeniem preparatu eksperymentalnego.
4. Kalibracja światła i określanie kontrastu
UWAGA: Ta sekcja służy do ustanowienia prawidłowej konfiguracji optycznej dla stymulacji wizualnej oka z soczewką dolną oraz wyznaczenia wartości natężenia promieniowania niezbędnych do obliczeń kontrastu. W kroku kalibracji biologicznej wykorzystywany jest rhopalium poświęcalne. Charakterystyka natężenia promieniowania jest przeprowadzana bez żadnych preparatów w komorze. Ta sekcja jest czasochłonna. Kalibracja biologiczna, charakterystyka natężenia promieniowania dla wszystkich poziomów szarości oraz obliczenia kontrastu mogą wymagać oddzielnej sesji przed dniem rejestracji. Rhopalium użyte do kalibracji biologicznej musi zostać utylizowane po zakończeniu tej sekcji i nie może być wykorzystane do rejestracji.
- Kalibracja biologiczna
- Napełnij komorę rejestracyjną przefiltrowaną wodą morską (0,20 µm) z zasobnika hodowlanego.
- Wyizoluj rhopalium i przenieś je do komory rejestracyjnej zgodnie z procedurą opisaną w Sekcji 5.
- Za pomocą holdingowej mikropipety umieść rhopalium na krawędzi szkiełka zakrycia, skierowane w stronę ekranu projekcyjnego (Ryc. 1D).
UWAGA: Umieszczenie rhopalium na krawędzi szkiełka zakrycia zamiast na jego powierzchni służy dwóm celom: po pierwsze, krawędź szkiełka może być ustawiona w stałej, powtarzalnej odległości od ekranu projekcyjnego, co zapewnia spójną odległość roboczą dla wszystkich pomiarów; po drugie, dolne oko soczewkowe nie musi patrzeć przez szklane szkiełko zakrycia, aby widzieć ekran, co pozwala uniknąć zniekształceń kątowych bodźca wzrokowego. Odległość od krawędzi szkiełka zakrycia do ekranu projekcyjnego determinuje kąt widzenia wszystkich projektowanych bodźców przez dolne oko soczewkowe i musi pozostać stała we wszystkich pomiarach. W komorze opisanej w niniejszym protokole odległość ta wynosi 2 mm. - Przymocuj elektrodę rejestrującą do nerwu zdzierzgłego naskórka zgodnie z procedurą opisaną w kroku 6.1.
- Zaprezentuj przeszkodę o maksymalnym kontraście (c ≈ 1,0, czarny pasek na białym tle), poruszającą się przez pełną szerokość pola widzenia, i oceń odpowiedź sygnału rozrusznika (Ryc. 1C; Ryc. 5).
UWAGA: Pomiar fotometryczny potwierdził maksymalny osiągalny kontrast c ≈ 0,99 między najjaśniejszym a najciemniejszym poziomem szarości w używanym systemie projekcyjnym, co wynika z resztkowej luminancji punktu czerni projektora, a nie z ograniczeń projektu bodźca; stanowi to podstawę do stosowania zapisu przybliżonego (c ≈ 1,0) w całym niniejszym protokole dla bodźców o maksymalnym kontraście.
UWAGA: (KRYTYCZNE) Satysfakcjonująca odpowiedź polega na wyraźnym wzroście częstotliwości sygnału rozrusznika powyżej 2 Hz, występującym jako krótka, zsynchronizowana czasowo seria impulsów w momencie, gdy krawędź natarcia przeszkody dociera do centrum pola widzenia, a nie jako odpowiedź utrzymująca się przez cały czas prezentacji bodźca, przy czym podczas tej serii występuje około 5–15 sygnałów rozrusznika (Ryc. 5B). Siła odpowiedzi, zarówno pod względem częstotliwości, jak i liczby sygnałów, skaluje się wraz z kontrastem bodźca; zatem odpowiedź na bodziec o maksymalnym kontraście (c ≈ 1,0) powinna być jak najsilniejsza, ponieważ odzwierciedla to prawidłową orientację LLE, przymocowanie elektrody oraz kalibrację projektora i zapewnia odpowiedni zakres dynamiczny do rozróżniania odpowiedzi przy niższych poziomach kontrastu. Potwierdza to, że fotoreceptory pracują w swoim zakresie dynamicznym i nie są nasycone nadmiernym natężeniem promieniowania. Jeśli mimo zdrowego preparatu wykazującego spontaniczną aktywność rozrusznika na poziomie 0,5–1 Hz nie zaobserwowano modulacji częstotliwości rozrusznika, należy podejrzewać nasycenie fotoreceptorów spowodowane nadmiernym natężeniem promieniowania. Wstaw filtr neutralnego zagęszczenia (np. Thorlabs NE01A, gęstość optyczna = 0,1, w razie potrzeby) do układu soczewek i powtórz kalibrację. Zwiększ tłumienie stopniowo, aż do uzyskania wyraźnej odpowiedzi częstotliwości rozrusznika. Wszystkie kolejne pomiary muszą być wykonywane z tą konfiguracją filtra. - Po uzyskaniu satysfakcjonującej odpowiedzi biologicznej zapisz konfigurację filtra neutralnego zagęszczenia. Konfiguracja ta jest stała dla wszystkich kolejnych pomiarów przy użyciu tego ustawienia optycznego.
- Usuń rhopalium z komory rejestracyjnej i wyrzuć. Rhopalium użyte do kalibracji biologicznej nie może być wykorzystane do pomiarów ze względu na czas, który upłynął podczas procedury kalibracyjnej.
- Charakterystyka natężenia promieniowania
- Opróżnij komorę rejestracyjną i upewnij się, że powierzchnia ekranu projekcyjnego jest sucha. Umieść światłowód spektrometru bezpośrednio na powierzchni ekranu projekcyjnego, prostopadle do niej.
UWAGA: Większość światłowodów spektrometrycznych nie jest wodoodporna. Komora musi być pusta, a powierzchnia ekranu sucha przed umieszczeniem światłowodu na ekranie. - Używając oprogramowania do prezentacji, równomiernie oświetl ekran projekcyjny każdym poziomem szarości przeznaczonym do pomiaru i zarejestruj natężenie promieniowania (350–700 nm) za pomocą spektrometru.
UWAGA: Zaleca się pracę od maksymalnego do minimalnego poziomu szarości (od białego do czarnego), ponieważ przy wysokich poziomach natężenia promieniowania spektrometr jest najbardziej narażony na prześwietlenie. W różnych punktach zakresu poziomów szarości może być wymagana ponowna kalibracja czasu całkowania, aby uniknąć zarówno prześwietlenia, jak i niedoświetlenia. Proces ten dla wszystkich poziomów szarości jest czasochłonny i powinien zostać odpowiednio zaplanowany. - Skoryguj każdą zmierzoną wartość natężenia promieniowania o widmo absorpcji opsyny 500 nm T. cystophora obecnej w dolnym oku soczewkowym21,22.
UWAGA: Korekcja opsyny jest wykonywana poprzez pomnożenie zmierzonego natężenia promieniowania dla każdej długości fali przez odpowiadający współczynnik receptancji z szablonu pigmentu wzrokowego Govardovskii dla λmax = 500 nm21, a następnie zsumowanie wyników w zmierzonym zakresie długości fali w celu uzyskania pojedynczej wartości natężenia promieniowania skorygowanego o opsynę. Obliczenia te można wykonać w dowolnym standardowym oprogramowaniu arkuszowym po uzyskaniu surowych danych o widmowym natężeniu promieniowania. - Oblicz kontrast dla każdego poziomu szarości, korzystając z poprawionych wartości natężenia promieniowania:

gdzie Iw to skorygowane o opsynę natężenie promieniowania białego tła, a Ig to skorygowane o opsynę natężenie promieniowania szarego lub czarnego paska. Wartości kontrastu wahają się od 0 (pasek nieodróżnialny od tła) do 1 (maksymalny kontrast, czarny pasek na białym tle). - Na podstawie obliczonych wartości kontrastu zidentyfikuj poziomy szarości odpowiadające poziomom kontrastu wymaganym w protokole eksperymentalnym. Zaktualizuj pokaz slajdów w oprogramowaniu do prezentacji, wprowadzając te poziomy szarości.
UWAGA: Kontrast jest stosunkiem wartości natężenia promieniowania i jest zatem niewrażliwy na jednorodne zmiany bezwzględnej mocy lampy we wszystkich poziomach szarości. Charakterystyka natężenia promieniowania nie musi być powtarzana między sesjami pomiarowymi, pod warunkiem że konfiguracja optyczna pozostanie niezmieniona. Zaleca się jednak weryfikację stabilności natężenia promieniowania w przypadku zaobserwowania nieoczekiwanych zmian w odpowiedzi na bodziec pomiędzy sesjami.
- Opróżnij komorę rejestracyjną i upewnij się, że powierzchnia ekranu projekcyjnego jest sucha. Umieść światłowód spektrometru bezpośrednio na powierzchni ekranu projekcyjnego, prostopadle do niej.
<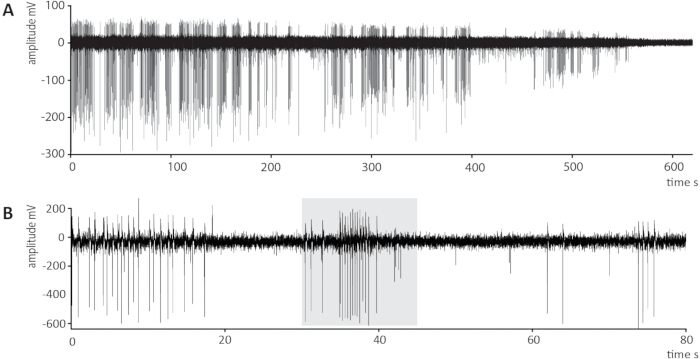
Rycina 5: Reprezentatywne rejestracje zewnątrzkomórkowe sygnałów rozrusznika pływania z izolowanego rhopalium Tripedalia cystophora. (A) Przykład postępującej utraty szczelności elektrody podczas przedłużonej sesji rejestracji. Amplituda sygnału rozrusznika zaczyna spadać w okolicach 200–250 s, co odzwierciedla pogarszający się kontakt elektryczny między końcówką elektrody a nerwem łodygowym naskórka, a sygnał zostaje całkowicie utracony około 580–600 s. Zarówno amplituda sygnału, jak i szum tła maleją równolegle, co jest charakterystyczną cechą utraty szczelności. (B) Reprezentatywna rejestracja wzrokowo wywołanej reakcji unikania przeszkody nad DTT. Szary obszar zacieniowany wskazuje okno stymulacji, zdefiniowane przez sygnał TTL Arduino, podczas którego wysoko kontrastowy (c = 0.80) pionowy pasek przeszkody był przemieszczany przez pełną szerokość pola widzenia oka z dolną soczewką. Częstotliwość sygnału rozrusznika wyraźnie wzrasta podczas okna stymulacji, co jest zgodne z wzrokowo wywołaną reakcją unikania przeszkody, i powraca do częstotliwości bazowej po zakończeniu stymulacji. Spontaniczne sygnały rozrusznika występujące poza oknem stymulacji są oczekiwane i nie stanowią reakcji wzrokowo wywołanych. Należy zauważyć, że różnica w skali osi y między panelami odzwierciedla pokazaną różną jakość rejestracji i nie oznacza różnicy w sile sygnału; w elektrofizjologii zewnątrzkomórkowej amplituda sygnału zależy od jakości szczelności elektrody, a nie od wielkości odpowiedzi fizjologicznej. Wszystkie wartości są po wzmocnieniu (×1000). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
5. Izolacja i przenoszenie rhopaliów
UWAGA: Tę procedurę wykonuje się za każdym razem, gdy wymagane jest rhopalium: raz z rhopalium poświęconym do kalibracji biologicznej w Sekcji 4, a następnie dla każdego eksperymentalnego rhopalia wykorzystanego w Sekcji 6. Przy każdej okazji cały sprzęt musi zostać w pełni zmontowany i sprawdzony przed kontaktem ze zwierzęciem. Liczba eksperymentalnych rhopaliów jest określona przez plan doświadczenia.
- Za pomocą jednorazowej plastikowej pipety transferowej z końcówką przyciętą tak, aby otwór miał średnicę około 8 mm, przenieś pojedyncze zwierzę z zasobnika hodowlanego do szalki Petriego o średnicy 35 mm zawierającej wodę morską z zasobnika hodowlanego, przefiltrowaną przez filtr 0,20 µm.
- Usuń nadmiar wody morskiej, aż zwierzę zostanie przyciśnięte do dna szalki i unieruchomione, ale nie doprowadź do jego wyschnięcia.
- Używając precyzyjnych nożyczek (nożyczki Vannasa, ostrze 0,025 mm × 0,015 mm), przetnij szypułkę łączącą rhopalium z dzwonkiem, mniej więcej w dwóch trzecich długości szypułki mierzonej od miejsca przyczepu rhopalia (tj. dystalnie względem rhopalia). Natychmiast po przecięciu ponownie napełnij szalkę Petriego wodą morską z zasobnika hodowlanego, przefiltrowaną przez filtr 0,20 µm.
OSTROŻNIE: Nożyczki Vannasa są niezwykle ostre. Podczas sekcji należy obchodzić się z nimi ostrożnie, aby uniknąć obrażeń.
UWAGA: Po przecięciu rhopalium może wciągnąć się do niszy rhopalialnej. Ponowne napełnienie szalki Petriego przefiltrowaną wodą morską w większości przypadków spowoduje wypłukanie rhopalia. Jeśli tak się nie stanie, użyj pipety Pasteura, aby delikatnie je wypłukać.
Za pomocą pipety Pasteura (150 mm) przenieś odizolowane rhopalium do komory rejestracji elektrofizjologicznej umieszczonej na stoliku mikroskopu. (KRYTYCZNE) Upewnij się, że rhopalium przez cały czas podczas i po transferze pozostaje zanurzone w wodzie morskiej. Ekspozycja na powietrze nieodwracalnie uszkodzi preparat. - Za pomocą pipety transferowej zwróć zwierzę do zasobnika hodowlanego.
UWAGA: Utrata pojedynczego rhopalia nie upośledza znacząco normalnego zachowania ośmiornicy skrzynkowej; zwierzęta zachowujące nawet jedno rhopalium nadal wykazują normalne zachowania żerowania i interakcje z wiązką światła. Rhopalia dodatkowo regenerują pełną funkcjonalność, w tym przywrócenie sygnałów rozrusznika i normalne reakcje fotoreceptorów, w ciągu dwóch tygodni od usunięcia23. Zwierzę może być ponownie wykorzystane w kolejnych sesjach, dopóki nie zostaną usunięte wszystkie rhopalia. Po usunięciu wszystkich czterech rhopaliów zwierzę nie jest już w stanie generować sygnałów rozrusznika pływania ani skurczów dzwonka i zostaje w humanitarny sposób zutylizowane poprzez standardowy zlew laboratoryjny, zgodnie z procedurą utylizacji tkanki rhopalia (krok 6.2.5).
6. Rejestracja
- Pozycjonowanie rhopalium i mocowanie elektrod
- Napełnij rejestrującą elektrodę ssącą, pobierając wodę morską bezpośrednio z komory pomiarowej do kapilary, aż roztwór wewnętrzny osiągnie połowę długości srebrnego drutu. Napełnij mikropipetę utrzymującą odpowiednią ilością wody morskiej z komory pomiarowej, aby umożliwić przyssanie do kryształu.
- Zamocuj mikropipetę trzymającą w mikromanipulatorze. Przytwierdź końcówkę mikropipety trzymającej do kryształu siarczanu wapnia (CaSO₄) znajdującego się na dystalnym końcu rhopaliów, stosując delikatne ssanie za pomocą podłączonej strzykawki z systemem Luer-lock. Kryształ zapewnia stabilny punkt zakotwiczenia mechanicznego bez uszkadzania tkanki nerwowej.
- Za pomocą mikropipety trzymającej należy umieścić rhopalium na krawędzi szkiełka nakrywki, przodem do ekranu projekcyjnego (Rysunek 1D).
UWAGA: (KRYTYCZNE) Należy zmierzyć i odnotować odległość między dolnym okiem soczewkowym a ekranem projekcyjnym, ponieważ jest ona niezbędna do obliczenia kąta widzenia (kąta akceptacji) cech obrazu projektowanego w dolnym oku soczewkowym przy użyciu wzoru:
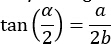
gdzie α to kąt widzenia, a to szerokość cechy obrazu, a b to odległość od dolnej soczewki oka do ekranu. Przy odległości roboczej 2 mm obraz rzutowany o wymiarach 16 mm × 12 mm (szer. × wys.) rozpiętość kątową wynosi w przybliżeniu 150° poziomo i 120° pionowy przebieg 170° okrągłe pole widzenia dolnej soczewki oka. Odległość robocza musi pozostać stała we wszystkich pomiarach, ponieważ jakiekolwiek odchylenie unieważnia obliczenia kątowe dla prezentowanych bodźców i uniemożliwia bezpośrednie porównanie wyników między pomiarami. - Podczas utrzymywania pozycji rhopalia za pomocą mikropipety trzymającej, przesunąć elektrodę rejestrującą w stronę przekrojonej powierzchni szypuły, korzystając z drugiego mikromanipulatora.
UWAGA: Nerw łodygi epidermalny przebiega podłużnie przez całą długość łodygi, od punktu przyczepu rhopalium do nerwu pierścieniowatego15Na przeciętej powierzchni końcówki nerwowe rozwidlonego nerwu łodygi epidermalnej są odsłonięte i dostępne do kontaktu z elektrodą na powierzchni adoralnej łodygi — stronie skierowanej ku oczom soczewkowym (Rycina 2B). - Stosuj delikatne ssanie za pomocą strzykawki z końcówką Luer-lock aż do uzyskania stabilnego sygnału.
UWAGA: Zakończenia nerwowe nie zawsze są wyraźnie widoczne na powierzchni przekroju. Należy umieścić końcówkę elektrody nad obszarem, w którym spodziewane jest występowanie nerwu łodygi epidermalnej, opierając się na punktach orientacyjnych anatomii, a następnie zastosować delikatne ssanie. Prawidłowe przytwierdzenie elektrody sygnalizowane jest pojawieniem się dużych, wyraźnych sygnałów rozrusznika o stałym kształcie fali i spodziewanej częstotliwości 0,5–1 Hz (Rycina 5). Sygnały stymulatora odróżnia się od sygnałów przypominających potencjały czynnościowe na podstawie czasu trwania i morfologii przebiegu (Rycina 2C,D)13,20,24Pojawienie się stabilnych sygnałów stymulatora jest rozstrzygającym kryterium prawidłowego umieszczenia elektrody, a nie wizualne potwierdzenie kontaktu z nerwem. W przypadku braku sygnału należy zwolnić ssanie, nieznacznie zmienić położenie końcówki elektrody na przekroju powierzchni i ponownie ją przyłożyć. Nadmierne ssanie grozi zatkaniem końcówki przez resztki tkanek lub mechanicznym uszkodzeniem zakończenia nerwowego. Postępujący spadek amplitudy sygnału oraz wzrost szumu w tle podczas rejestracji świadczą o utracie szczelności uszczelnienia elektrody (Rycina 5A). - Po przymocowaniu elektrod należy odczekać co najmniej 10 min, aby preparat zaaklimatyzował się przed rozpoczęciem pomiarów. W tym czasie ekran projekcyjny powinien pozostać oświetlony białym tłem, a szary pasek powinien być nieruchomy po jednej stronie pola widzenia, poza jego centrum.
UWAGA: Przed rozpoczęciem aklimatyzacji należy potwierdzić reaktywność preparatu, prezentując pojedynczy bodziec o maksymalnym kontraście (c ≈ 1,0); rhopalia, które nie reagują, są wykluczane z zestawu danych. Okres aklimatyzacji pozwala na stabilizację preparatu po zaburzeniach mechanicznych wynikających z mocowania elektrod. Wyświetlanie białego ekranu ze stacjonarnym paskiem zapewnia adaptację fotoreceptorów do warunków bazowych, które będą panować podczas stymulacji wizualnej, oraz stabilność początkowej częstotliwości bazowej rozrusznika przed prezentacją pierwszego bodźca. Jest to kolejna praktyczna zaleta stosowania oprogramowania do prezentacji w celu kontroli bodźców. Treść ekranu podczas aklimatyzacji oraz pomiędzy pomiarami jest bezpośrednio widoczna i w pełni kontrolowana bez konieczności dodatniego programowania. - Po uzyskaniu stabilnego sygnału stymulatora należy zoptymalizować ustawienia filtra pasmowoprzepustowego wzmacniacza zewnątrzkomórkowego, aby maksymalnie zwiększyć stosunek sygnału do szumu oraz zachować amplitudę i morfologię kształtu sygnału, monitorując efekt na wyświetlaczu oscyloskopu. Należy zastosować następujące ustawienia początkowe: filtr górnoprzepustowy 1 Hz i filtr dolnoprzepustowy 500 Hz; należy włączyć filtr notch 50/60 Hz (zintegrowany moduł dodatkowy EXT-10-2F). W zależności od obserwowanego sygnału należy wprowadzić niezbędne korekty.
UWAGA: Podniesienie wartości odcięcia filtra górnoprzepustowego powyżej 1 Hz będzie prowadzić do stopniowego tłumienia niskoczęstotliwościowych składowych sygnału stymulatora, co zmniejszy jego amplitudę i może utrudnić detekcję sygnału. Docelowa amplituda sygnału po wzmocnieniu dla czystych, łatwo identyfikowalnych sygnałów stymulatora wynosi 400–600 mV, przy maksymalnej wartości około 1 V.
- Pozyskiwanie danych
- Skonfiguruj VI (dostarczone jako materiał uzupełniający, Plik uzupełniający 3) w celu jednoczesnego pozyskania następujących kanałów za pomocą modułu DAQ przy częstotliwości próbkowania 1 kHz:
Kanał 1: Sygnał elektrofizjologiczny (wzmocniony i przefiltrowany sygnał stymulatora z EXT-10-2F)
Kanał 2: analogowy sygnał wyjściowy TTL generowany przez LabVIEW do myszy TTL)
Kanał 3: znacznik czasu TTL analogowy Arduino Uno (rejestruje zweryfikowane okno bodźca — początek zdefiniowany przez przejście sygnału TTL w stan wysoki, zakończenie zdefiniowane przez powrót sygnału TTL w stan niski — wykrywane przez fotodiodę monitorującą czarno-biały kwadrat wskaźnika na wyświetlaczu komputera).
UWAGA: Kanał 2 rejestruje zamierzony czas podania bodźca, a kanał 3 rejestruje zweryfikowane rzeczywiste okno bodźca. Kanał 3 powinien być traktowany jako ostateczny zapis czasu podania bodźca we wszystkich analizach. - Ustaw czas trwania rejestracji zgodnie z protokołem eksperymentalnym. Dla standardowej sekwencji prezentacji bodźca, składającej się z 30 s linii bazowej przed bodźcem, około 15 s stymulacji wizualnej oraz 35 s okresu po bodźcu, ustaw całkowity czas trwania rejestracji na 80 s.
UWAGA: W protokole tym zazwyczaj stosuje się 10 powtórzeń biologicznych (rhopalia), najlepiej pobranych od 10 różnych osobników, w celu oceny siły odpowiedzi, zgodnie z metodą opisaną przez Bielecki et al. (2023)14W ramach jednej preparacji to samo wyizolowane rhopalium zostaje poddane pełnemu protokołowi bodźców wzrokowych, prezentowanym sekwencyjnie od najniższego do najwyższego kontrastu; taka kolejność zapobiega habituacji zwierzęcia do braku negatywnych konsekwencji przy wysokim kontraście, co w przeciwnym razie mogłoby zmniejszyć reaktywność na następnie prezentowane bodźce o niższym kontraście. Kolejne rejestracje są rozpoczynane w stałych odstępach 2 minut, co daje 105 s przerwy między końcem jednego okresu stymulacji a początkiem następnego (czas ten jest wystarczający, aby częstotliwość rozrusznika wróciła do wartości bazowej przed kolejnym bodźcem). Nie wykonuje się powtórzeń technicznych; każde rhopalium otrzymuje jedną prezentację dla każdego poziomu kontrastu w ramach swojej sekwencji bodźców. - Instrument LabVIEW VI (dołączony jako materiał uzupełniający, Plik uzupełniający 3) automatycznie generuje impuls TTL z DAQ do myszy TTL w odpowiednim punkcie czasowym w obrębie sekwencji rejestracji, przemieszczając preparat i inicjując pojawienie się bodźca wizualnego. Nabyte dane należy zapisać w formacie pliku .txt z rozdzielaczem tabulatorów. Przy użyciu dostarczonego VI metadane rejestracji są kodowane ręcznie w nazwie pliku w momencie zapisywania.
UWAGA: Zaleca się ustalenie spójnej konwencji nazywania plików przed rozpoczęciem nagrań. Identyfikator preparatu to unikalny kod (np. numer zwierzęcia lub sesji), który umożliwia powiązanie danego nagrania z konkretnym rhopalium oraz sesją eksperymentalną, z której pochodzi. Dokładny schemat nazywania pozostaje do wyboru badacza, pod warunkiem, że jest on systematyczny i pozwala na jednoznaczne powiązanie każdego nagrania z odpowiadającym mu preparatem — na przykład nazwa pliku może łączyć datę i godzinę nagrania z odpowiednimi parametrami bodźca (np. poziomem kontrastu, wymiarami prętów i prędkością). - Po zakończeniu wszystkich pomiarów dla danego rhopalium, tkankę rhopalium należy zutylizować, wylewając ją do standardowego zlewu laboratoryjnego.
UWAGA: Zaleca się ustalenie spójnej konwencji nazywania plików przed rozpoczęciem rejestracji. Systematyczna nazwa pliku, zawierająca datę, identyfikator preparatu oraz warunki stymulacji, jest wystarczająca do późniejszej analizy. Oprogramowanie do prezentacji jest preferowane względem bodźców wizualnych generowanych przez LabVIEW z dwóch praktycznych powodów: po pierwsze, zapewnia ono, że obraz rzutowany na dolną soczewkę oka pomiędzy pomiarami jest w każdym momencie znany i kontrolowany, co zapobiega niezamierzonej stymulacji wizualnej przez interfejsy oprogramowania lub ekrany systemowe; po drugie, eliminuje to ryzyko wygaszenia ekranu pomiędzy sesjami pomiarowymi, co wywołałoby odpowiedź na brak światła (light-OFF) w fotoreceptorach i wprowadziłoby fałszywą aktywność rozrusznikową do następującego po niej okresu bazowego. Postrzegana wielkość kątowa i prędkość paska będą zmieniać się nieliniowo w polu widzenia ze względu na geometrię soczewki oka. Ta nieliniowość nie została skorygowana z dwóch powodów: po pierwsze, swobodnie pływające zwierzęta nie zbliżają się do przeszkód ze stałą prędkością ani w stałym kierunku, co sprawia, że korekta kątowa ma ograniczoną istotność w warunkach naturalnych; po drugie, korekta wielkości kątowej wymagałaby zmian całkowitej luminancji ekranu, co wywołałoby odpowiedź na włączenie/wyłączenie światła (light ON/OFF response), która bierze udział w wykrywaniu słupów światła w namorzynach.
- Skonfiguruj VI (dostarczone jako materiał uzupełniający, Plik uzupełniający 3) w celu jednoczesnego pozyskania następujących kanałów za pomocą modułu DAQ przy częstotliwości próbkowania 1 kHz:
7. Analiza danych
- Rozróżnianie sygnałów rozrusznika w programie Igor Pro
UWAGA: Sygnały rozrusznika pływania są oddzielane od sygnałów przypominających potencjały czynnościowe w surowym zapisie elektrofizjologicznym przed przeprowadzeniem analizy częstotliwości. Oba typy sygnałów mogą występować jednocześnie w zapisie i muszą zostać rozróżnione przed wyekstrahowaniem danych dotyczących czasu taktowania rozrusznika. Reprezentatywne przykłady obu typów sygnałów oraz ich wyróżniające cechy kształtu fali przedstawiono na Rysunku 2C,D.- Zaimportuj plik danych .txt do programu Igor Pro (wersja 6.37 lub nowsza) przy użyciu wtyczki Neuromatic (wersja 2.00).
- Rozróżnij sygnały rozrusznika pływania od sygnałów przypominających potencjały czynnościowe na podstawie czasu trwania sygnału i morfologii kształtu fali.
UWAGA: Sygnały rozrusznika pływania mają charakterystyczny czas trwania wynoszący około 45 ms oraz złożoną morfologię kształtu fali, odzwierciedlającą sumaryczną aktywność wielu neuronów rozrusznikowych. Sygnały przypominające potencjały czynnościowe mają krótszy czas trwania, około 10 ms, oraz ostrzejszy, pojedynczy kształt fali. Sama amplituda sygnału nie jest wiarygodnym kryterium rozróżniającym, ponieważ oba typy sygnałów mogą osiągać porównywalne amplitudy24 (Rysunek 2C,D). Przedstawiono reprezentatywny schemat ilustrujący wyróżniające cechy kształtu fali sygnałów rozrusznika pływania oraz sygnałów przypominających potencjały czynnościowe (Rysunek 2C,D). Zaleca się zapoznanie z oboma typami sygnałów przed rozpoczęciem analizy, ponieważ błędna identyfikacja wprowadzi błędy w ocenie częstotliwości rozrusznika. Charakterystyka kształtu fali sygnału jest spójna w obrębie danej preparacji, ale może się nieznacznie różnić między preparacjami; dlatego kryteria rozróżniania powinny być oceniane indywidualnie dla każdej preparacji, traktując opisane powyżej cechy kształtu fali jako ogólną wskazówkę, a nie sztywne, uniwersalne progi. W przypadku niejednoznacznych lub pośrednich kształtów fal, których nie można z pewnością zaklasyfikować, rozstrzygnij niejednoznaczność w kierunku przeciwnym do oczekiwanego lub hipotezowanego wyniku — na przykład wyklucz niejednoznaczny zdarzenie, jeśli wyższa liczba sygnałów wspierałaby testowaną hipotezę, lub włącz je, jeśli wspierałaby ją niższa liczba — aby uniknąć sztucznego zawyżania istotności wyniku. - Wyodrębnij znacznik czasu każdego zidentyfikowanego sygnału rozrusznika pływania, aby uzyskać szereg czasowy zdarzeń rozrusznika dla każdego zapisu, a następnie wyeksportuj te znaczniki czasu (np. do arkusza kalkulacyjnego lub pliku .csv) do dalszej analizy statystycznej.
- Analiza częstotliwości
- Oblicz częstotliwość sygnału rozrusznika jako odwrotność odstępu między sygnałami w całym zapisie.
- Oceń wpływ bodźca wzrokowego poprzez porównanie częstotliwości rozrusznika w okresie bazowym przed bodźcem, w okresie stymulacji oraz w okresie po bodźcu, wykorzystując znaczniki czasu sygnałów rozrusznika skorygowane o opóźnienie między zarejestrowanym przez LabVIEW poleceniem TTL (Kanał 2) a zweryfikowanym przez Arduino początkiem bodźca (Kanał 3).
UWAGA: Oko z dolną soczewką reaguje na bodziec w czasie zweryfikowanego sygnału TTL, a nie zarejestrowanego przez oprogramowanie polecenia, dlatego zweryfikowany czas rozpoczęcia każdego zapisu jest eksportowany wraz z surowymi znacznikami czasu rozrusznika i TTL do arkusza kalkulacyjnego (Tabela uzupełniająca 1) i wykorzystywany bezpośrednio przez skrypt analizujący w programie SAS do klasyfikacji każdego sygnału rozrusznika do okna przedbodźcowego, stymulacyjnego lub pobodźcowego (Rysunek 6); żadne wartości znaczników czasu nie są modyfikowane na etapie arkusza kalkulacyjnego. W niezakłóconych warunkach bazowych częstotliwość sygnału rozrusznika wynosi 0,5–1 Hz. Reakcje unikania przeszkód wywołane wzrokowo powyżej DTT charakteryzują się wzrostem częstotliwości rozrusznika do 2–3 Hz. Maksimum fizjologiczne wynosi około 4 Hz, co odpowiada minimalnemu odstępowi między sygnałami wynoszącemu 250–280 ms25. Ponieważ bazowa częstotliwość rozrusznika różni się między preparacjami, wartości częstotliwości dla każdego zapisu są standaryzowane względem średniej częstotliwości tego konkretnego zapisu, obliczonej z okresów przed- i pobodźczych (z wyłączeniem samego okresu stymulacji). Normalizacja ta pozwala na porównanie wielkości odpowiedzi między preparacjami niezależnie od różnic w bazowej częstotliwości rozrusznika. Pełne procedury statystyczne służące do oceny istotności odpowiedzi, w tym model nieliniowy użyty do porównania okresów bazowego, stymulacyjnego i pobodźczego, opisano w pracy Bielecki et al. (2023)14; odpowiadający im kod analizy SAS jest dostępny pod adresem doi: 10.17632/csgymw8kjk.1. Reprezentatywny schemat analizy, od surowego sygnału przez rozróżnianie, obliczanie częstotliwości i standaryzację aż do końcowego parametru odpowiedzi, przedstawiono na Rysunku 7.
- Oceń wpływ bodźca wzrokowego poprzez porównanie częstotliwości rozrusznika w okresie bazowym przed bodźcem, w okresie stymulacji oraz w okresie po bodźcu, wykorzystując znaczniki czasu sygnałów rozrusznika skorygowane o opóźnienie między zarejestrowanym przez LabVIEW poleceniem TTL (Kanał 2) a zweryfikowanym przez Arduino początkiem bodźca (Kanał 3).
- Oblicz częstotliwość sygnału rozrusznika jako odwrotność odstępu między sygnałami w całym zapisie.
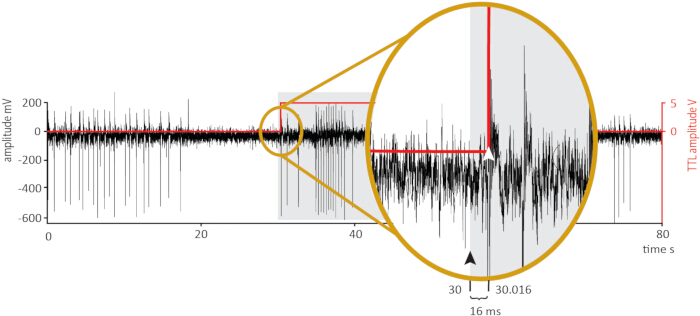
Rysunek 6Reprezentatywna demonstracja korekcji znaczników czasowych rozrusznika serca dla synchronizacji zweryfikowanej bodźcem. Przykład nagrania ilustrujący opóźnienie pomiędzy zarejestrowanym w VI poleceniem TTL a zweryfikowanym przez Arduino początkiem bodźca, potwierdzonym indywidualnie dla każdego nagrania za pomocą łańcucha czasowego Arduino/fotodioda i wyeksportowanym do arkusza kalkulacyjnego (Tabela uzupełniająca 1) do bezpośredniego wykorzystania przez skrypt analizy SAS w celu zaklasyfikowania każdego znacznika czasu sygnału z rozrusznika do okna przedstymulacyjnego, stymulacyjnego lub postymulacyjnego. Ślad czarny (lewa oś y): sygnał elektrofizjologiczny (mV). Ślad czerwony (prawa oś y): amplituda TTL (V). Szary obszar zacieniony oznacza nominalne okno stymulacji zgodnie ze znacznikiem czasu zarejestrowanego przez oprogramowanie polecenia TTL. Wstawka: powiększony widok początku sygnału TTL. Czarna grot arrowhead wskazuje czas wysłania sygnału TTL zarejestrowany przez LabVIEW (t = 30,000 s, kanał 2); biała grot arrowhead wskazuje zweryfikowany początek stymulacji wykryty przez układ Arduino/fotodioda (t = 30,016 s, kanał 3). Przedstawiony 16-msowy odstęp jest reprezentatywnym przykładem w obrębie Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
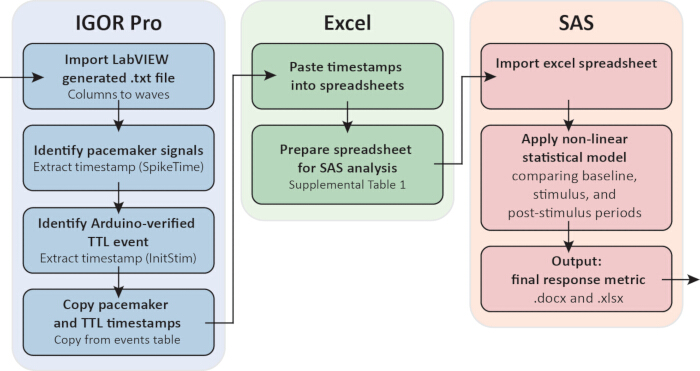
Rycina 7Reprezentatywny schemat analizy, od surowego zapisu do końcowej miary odpowiedzi. Sygnał stymulatora i znaczniki czasowe TTL są wyodrębniane z tabeli zdarzeń Igor Pro/Neuromatic: zdarzenia sygnału stymulatora są identyfikowane na podstawie czasu trwania oraz morfologii przebiegu (krok 7.1.2), a zweryfikowany przez Arduino moment rozpoczęcia stymulacji (InitStim, kanał 3) jest wyodrębniany dla każdego pomiaru jako bezwzględny znacznik czasowy, a nie obliczone opóźnienie. Znaczniki czasowe te są kopiowane do arkusza kalkulacyjnego (Tabela uzupełniająca 1), który jest przygotowany do analizy w programie SAS poprzez obliczenie odstępów między impulsami (Intval) oraz znaczników czasu środka interwału (MidTime) dla każdego zdarzenia sygnału rozrusznika. Program SAS importuje przygotowany arkusz kalkulacyjny i stosuje nieliniowy model statystyczny (Bielecki et al., 202314) porównanie częstotliwości rozrusznika w okresach przedstymulacyjnym, stymulacyjnym i postymulacyjnym, sklasyfikowanych względem zweryfikowanego momentu rozpoczęcia stymulacji dla każdego pomiaru, w celu uzyskania końcowej metryki odpowiedzi (podsumowanie w formacie .docx, tabele danych w formacie .xlsx). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wyniki
Jakość sygnału i spontaniczna aktywność rozrusznika
Po pomyślnym przymocowaniu elektrod do przeciętego nerwu łodygi naskórkowej, sygnały rozrusznika powinny być natychmiast widoczne na oscyloskopie. Wysoka jakość zapisu charakteryzuje się dużymi, wyraźnie rozdzielonymi sygnałami rozrusznika o amplitudzie po wzmocnieniu wynoszącej 40–60 mV, występującymi ze stałą częstotliwością spontaniczną 0,5–1 Hz, na tle niskiego poziomu szumów (odchylenie szczytowe około 10–15 mV po obu stronach zera, co odpowiada stosunkowi sygnału do szumu około 27–40:1 w docelowym zakresie amplitudy) (Rysunek 5B). Można analizować zapisy z amplitudą sygnału wynoszącą nawet 10 mV, ale znacząco wydłuża to czas dyskryminacji sygnału w programie Igor Pro i nie jest zalecane, szczególnie dla niedoświadczonych operatorów. Złożona morfologia kształtu fali sygnału rozrusznika, odzwierciedlająca sumaryczną aktywność wielu neuronów trmOC, odróżnia go od krótszych i ostrzejszych sygnałów przypominających potencjały czynnościowe, które mogą być również obecne w zapisie24 (Rysunek 2C,D). Jak opisano w kroku 7.1, te dwa typy sygnałów muszą zostać rozróżnione przed analizą na podstawie czasu trwania sygnału (~45 ms dla sygnałów rozrusznika w porównaniu do ~10 ms dla sygnałów przypominających potencjały czynnościowe) oraz morfologii kształtu fali. Sama amplituda nie jest wiarygodnym kryterium dyskryminacji. Dyskryminacja sygnałów w niniejszym protokole była przeprowadzana przez jednego, doświadczonego operatora; w związku z tym nie obliczono formalnych statystyk niezawodności między sędziami (patrz Dyskusja, Ograniczenia).
Wizualnie wywołana odpowiedź rozrusznika
W zdrowym, reagującym preparacie prezentacja bodźca w postaci ruchomego pionowego paska powyżej DTT do oka z dolną soczewką wywołuje wyraźną, zsynchronizowaną czasowo odpowiedź rozrusznikową. Częstotliwość sygnału rozrusznika wzrasta do 2–3 Hz, co zbiega się z przejściem przedniej krawędzi przeszkody przez środek pola widzenia, a po ustąpieniu bodźca powraca do częstotliwości bazowej14 (Rysunek 5B). Moment rozpoczęcia bodźca został zweryfikowany za pomocą łańcucha czasowego Arduino/fotodioda (krok 3.3), zamiast polegać na znaczniku czasu raportowanym przez LabVIEW. Przy użyciu myszy TTL do sterowania oprogramowaniem prezentującym, zweryfikowany zakres wynosi <20 ms; przy wyzwalaniu ręcznym (operator klikający niemodyfikowaną myszą w czasie pożądanego rozpoczęcia), zweryfikowany zakres wynosi 10–150 ms. Ponieważ analiza odpowiedzi opiera się na zweryfikowanym momencie rozpoczęcia (Kanał 3), a nie na wyzwalaczu raportowanym przez oprogramowanie (Kanał 2), zakres ten nie wpływa na kwantyfikację odpowiedzi, niezależnie od metody wyzwalania. Wzrost częstotliwości ten stanowi elektrofizjologiczny korelat zachowania unikania przeszkód obserwowanego u zwierząt pływających swobodnie, a jego obecność potwierdza zarówno żywotność preparatu, jak i prawidłowe ustawienie optyczne oka z dolną soczewką względem ekranu projekcyjnego.
Wielkość odpowiedzi rozrusznika jest oceniana przy użyciu chwilowej częstotliwości sygnału, obliczanej jako odwrotność odstępu między kolejnymi zdarzeniami rozrusznika. Podejście to wymaga minimum dwóch następujących po sobie sygnałów rozrusznika w celu ustalenia wartości częstotliwości, co stanowi wrodzone zabezpieczenie przed fałszywie dodatnim wykrywaniem odpowiedzi z pojedynczych, izolowanych sygnałów.
Kontrast bodźca w postaci poruszającego się paska determinuje wielkość wywołanej odpowiedzi. W pracy Bielecki et al. (2023)14 zastosowano trzy poziomy kontrastu (c = 0.20, 0.40 oraz 0.80), rozmieszczone w odstępach jednego stopnia przysłony (f-stop). Te konkretne wartości kontrastu wybrano, aby całkowity czas trwania protokołu zmieścił się w możliwym oknie rejestracji wynoszącym około 1 h. Badacze analizujący granice czułości kontrastowej oka z dolną soczewką lub inne specyficzne właściwości odpowiedzi wzrokowej powinni dobrać poziomy kontrastu odpowiednie do postawionego pytania badawczego, zamiast bezkrytycznie przyjmować te wartości.
Nieoptymalne pomiary i tryby awarii
W praktyce około 90% (9 na 10) preparatów spełniających kryterium żywotności po aklimatyzacji (krok 6.1.6) wykazuje następnie stabilną aktywność spontaniczną oraz mierzalną odpowiedź wywołaną wzrokowo; proporcja ta jest silnie uzależniona od doświadczenia operatora. Pozostałe preparaty najczęściej zawodzą z jednego z poniższych powodów: najczęstszym trybem awarii jest postępująca utrata szczelności elektrody podczas sesji rejestracyjnej. Objawia się to stopniowym spadkiem zarówno amplitudy sygnału rozrusznika, jak i poziomu szumu tła, co odzwierciedla pogarszający się kontakt elektryczny między końcówką elektrody a zakończeniem nerwu (Rycina 5A). Jeśli zaobserwowany zostanie taki wzorzec, należy zwolnić ssanie i przyłożyć je ponownie po lekkim przesunięciu końcówki elektrody na powierzchni przekrojonego szypułka. Jeśli amplituda sygnału nie powróci, należy ocenić żywotność preparatu, sprawdzając obecność spontanicznej aktywności rozrusznika. Całkowity brak sygnału po próbach ponownego przymocowania w preparacie, który był izolowany przez ponad 1 h, najprawdopodobniej odzwierciedla degradację preparatu, a nie awarię elektrody, w związku z czym należy użyć świeżego preparatu.
Drugim trybem awarii jest brak odpowiedzi wywołanej wizualnie pomimo stabilnej spontanicznej aktywności rozrusznika. Powinno to skłonić do ponownej oceny konfiguracji optycznej przed wyciągnięciem wniosku, że preparat nie reaguje. Najczęstszymi przyczynami są niewłaściwe ustawienie dolnej soczewki oka względem ekranu projekcyjnego oraz nasycenie fotoreceptorów spowodowane nadmiernym natężeniem promieniowania. Należy powtórzyć procedurę kalibracji biologicznej opisaną w kroku 4.1.5 i w razie potrzeby zwiększyć tłumienie za pomocą filtra neutralnego. Należy również zweryfikować, czy bodziec w postaci poruszającego się paska pozostaje w polu widzenia przez cały czas ruchu, ponieważ opuszczenie pola widzenia przez bodziec wywołałoby odpowiedź typu light-OFF i wprowadziło sztuczną aktywność rozrusznika do zapisu.
Trzeci wzorzec — wysoki poziom szumu tła przesłaniający sygnały stymulatora — najczęściej odzwierciedla problem z uziemieniem lub zakłócenia sieciowe. Należy zweryfikować konfigurację uziemienia gwiazdowego opisaną w kroku 3.2.1 oraz potwierdzić aktywację filtra notch 50/60 Hz.
Plik uzupełniający 1: Szkic Arduino. Implementuje wykrywanie początku bodźca oparte na fotodiodzie: Arduino Uno próbkuje fotodiodę, monitorując czarno-biały kwadrat wskaźnika na wyświetlaczu prezentacji (krok 1.4.2) z częstotliwością 1 kHz, konwertuje surowy sygnał analogowy na czysty cyfrowy impuls TTL poprzez porównanie z progiem i wyjmuje ten impuls jako zweryfikowany sygnał czasowy bodźca (Kanał 3, krok 6.2.1).Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Reprezentatywny plik bodźca. Przykładowy plik oprogramowania do prezentacji (Keynote) implementujący wizualny bodziec w postaci poruszającego się paska jako pojedynczą, ciągłą animację obiektu oraz czarno-biały kwadrat wskaźnika weryfikacji czasu (krok 1.4). Czytelnicy projektujący własne sekwencje bodźców powinni upewnić się, że wyświetlanie pozostaje stabilne przez odpowiedni okres akomodacji przed każdym pojawieniem się bodźca; pętla sprzężenia zwrotnego fotodioda/Arduino (krok 3.3) weryfikuje rzeczywisty czas wystąpienia bodźca, niezależnie od zastosowanego oprogramowania do prezentacji lub projektu slajdu.Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 3: Wirtualny Instrument (VI) LabVIEW. Skonfiguruj moduł NI USB-6343 DAQ z dwoma analogowymi kanałami wejściowymi — AI0 (sygnał elektrofizjologiczny z wzmacniacza) i AI1 (zweryfikowany przez Arduino sygnał TTL początku stymulacji, sygnał sprzężenia zwrotnego z fotodiody) — oraz jednym analogowym kanałem wyjściowym, AO0, który dostarcza impuls TTL do myszy TTL w zaprogramowanym czasie stymulacji w celu przejścia do następnego slajdu w oprogramowaniu do prezentacji. Wynikowy plik wyjściowy .txt rejestruje trzy kolumny: sygnał elektrofizjologiczny (AI0), zarejestrowaną w LabVIEW sygnaturę czasową polecenia wyzwalającego AO0 (zapis programowy, a nie sygnał ponownie nabyty) oraz zweryfikowany przez Arduino sygnał TTL (AI1).Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Format pliku wejściowego SAS. Definicje kolumn oraz praktyczny przykład arkusza kalkulacyjnego przesyłanego do SAS w celu przeprowadzenia analizy statystycznej (krok 7.2.1). Cztery kolejne znaczniki czasu sygnału stymulatora z reprezentatywnego zapisu ilustrują sposób wyznaczenia odstępu między impulsami (Intval) oraz znacznika czasu punktu środkowego (MidTime) wykorzystywanego do obliczeń częstotliwości; ostatnie wymienione zdarzenie nie posiada wartości Intval/MidTime, ponieważ nie istnieje kolejny znacznik czasu pozwalający na domknięcie odstępu.Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Kilka etapów w tym protokole jest krytycznych dla uzyskania wiarygodnych zapisów. Najistotniejszym z nich jest wykonanie i przygotowanie elektrody ssącej. Choć każda elektroda optymalizująca stosunek sygnału do szumu jest dopuszczalna w standardowych zapisach rozrusznika wywołanego bodźcem wzrokowym, oporność przyłącza wynosząca około 1 MΩ staje się szczególnie krytyczna, gdy preparat jest wykorzystywany do podawania elektrycznego bodźca bezwarunkowego, ponieważ jest ona niezbędna do obliczenia podanego prądu14. W przypadku samego rejestrowania głównym kryterium jest jakość sygnału, a nie konkretna wartość oporności.
Równie krytyczna jest kalibracja biologiczna układu optycznego przed rozpoczęciem rejestracji (krok 4.1.5). Ponieważ moc wyjściowa projektora, konfiguracja soczewek i odbiciowość ekranu oddziałują na siebie, determinując efektywną irradiancję w dolnej soczewce oka, nie można określić jednej, uniwersalnie stosowalnej wartości irradiancji. Kalibracja biologiczna (wykorzystująca odpowiedź częstotliwościową rozrusznika na bodziec o maksymalnym kontraście jako kryterium zakresu dynamicznego fotoreceptorów) stanowi samowalidującą, niezależną od sprzętu metodę ustalania odpowiedniego natężenia bodźca. Kroku tego nie należy pomijać, ponieważ nasycenie fotoreceptorów spowodowane nadmierną irradiancją zniesie wzrokowo wywołane odpowiedzi rozrusznika, co może zostać błędnie zinterpretowane jako brak reakcji preparatu.
Utrzymanie rhopalium w zanurzeniu podczas izolacji i przenoszenia jest krytyczne. Układ nerwowy rhopalium jest niezwykle wrażliwy na wysychanie, a nawet krótka ekspozycja na powietrze może nieodwracalnie uszkodzić preparat. Wszystkie etapy przenoszenia powinny być wykonywane w obecności wody morskiej, a komorę rejestracyjną należy napełnić wodą morską z baku hodowlanego przefiltrowaną przez filtr 0,20 µm przed wprowadzeniem rhopalium.
Na koniec, rozmieszczenie elektrod na powierzchni przekrojonej szypułki wymaga cierpliwości. Zakończenia nerwowe szypułki w warstwie naskórka nie zawsze są możliwe do zidentyfikowania wizualnie, a prawidłowe rozmieszczenie należy potwierdzić poprzez pojawienie się spontanicznych sygnałów rozrusznika na oscyloskopie.
Najczęstszą przyczyną niepowodzenia pomiaru jest utrata uszczelnienia elektrody w trakcie sesji. Aby zminimalizować to ryzyko, wszystkie protokoły powinny zostać zakończone w ciągu jednej godziny od izolacji rhopalium. Rekomendowany tutaj limit jednej godziny jest konserwatywnym wyborem praktycznym, wynikającym z ogólnego założenia, że odizolowany preparat neuronalny, odcięty od reszty organizmu, nie może być uznany za w pełni reprezentatywny dla nienaruszonej funkcji fizjologicznej w nieskończoność, nawet jeśli utrzymuje się aktywność rozrusznikowa. Izolowane rhopalia pozostają żywotne w sensie generowania wykrywalnych sygnałów rozrusznika znacznie dłużej niż okno pomiarowe zastosowane w tym protokole, do około 5 h po izolacji; jednak nie określono systematycznie, czy odpowiedzi rejestrowane późno w tym oknie pozostają w pełni reprezentatywne dla nienaruszonego preparatu, dlatego limit 1 h stosuje się jako konserwatywny margines bezpieczeństwa, a nie precyzyjnie zdefiniowany próg. Postępująca utrata uszczelnienia elektrody jest odrębną, łatwo identyfikowalną usterką techniczną i najczęstszą przyczyną utraty sygnału w obrębie jednej sesji pomiarowej (patrz poniżej), jednak nie wyklucza to wpływu stanu preparatu na subtelniejsze zmiany w reaktywności w czasie. Jeśli utrata uszczelnienia nastąpi podczas pomiaru, można zwolnić ssanie, zmienić położenie elektrody na powierzchni przeciętego szypułki i ponownie przyłożyć ssanie. Jeśli jednak preparat był izolowany przez ponad jedną godzinę, zaleca się przygotowanie nowego preparatu zamiast poświęcania czasu na rozwiązywanie problemów z preparatem o pogarszających się właściwościach.
Ustawienia filtrów należy traktować jako punkty wyjścia, a nie parametry stałe. Wartości filtrów pasmowo-przepustowych określone w tym protokole (filtr górnoprzepustowy 1 Hz, dolnoprzepustowy 50 Hz, filtr zaporowy 50/60 Hz) to takie, które optymalizują stosunek sygnału do szumu w środowisku rejestracyjnym autorów. Laboratoria z innym poziomem zakłóceń elektrycznych lub korzystające z innych modeli wzmacniaczy mogą potrzebować empirycznej korekty tych ustawień za pomocą kontrolerów wzmacniacza, monitorując sygnał na wyświetlaczu oscyloskopu na początku każdej sesji.
Jeśli po przyłączeniu elektrod nie stwierdzono spontanicznej aktywności rozrusznika, należy ocenić preparat przed rozpoczęciem usuwania usterek elektrod. Zdrowe, izolowane rhopalium wykazuje spontaniczne sygnały rozrusznika o częstotliwości 0.5–1 Hz w ciągu kilku minut od przyłączenia elektrod. Brak spontanicznej aktywności najczęściej odzwierciedla uszkodzenie preparatu podczas izolacji lub przenoszenia, a nie awarię elektrod. I odwrotnie, jeśli aktywność spontaniczna występuje, ale nie uzyskano odpowiedzi wywołanej optycznie, należy powtórzyć kalibrację optyczną przed wyciągnięciem wniosku, że preparat nie reaguje.
Laboratoria adaptujące niniejszy protokół do innego sprzętu mogą zastąpić łańcuch weryfikacji czasowej myszy TTL i Arduino Uno, opisany w kroku 3.3, dowolnym systemem zapewniającym niezależny od oprogramowania zapis okna bodźca na poziomie sprzętowym, pozyskiwany synchronicznie z zapisem elektrofizjologicznym. Specyficzna implementacja opisana w niniejszym opracowaniu została opracowana w celu połączenia środowiska akwizycji LabVIEW na komputerze PC z oprogramowaniem do prezentacji na osobnym komputerze i stanowi praktyczne rozwiązanie inżynieryjne typowego problemu integracji międzyplatformowej. Podstawowa zasada, według której same wyzwalacze programowe są niewystarczające do precyzyjnej analizy czasu reakcji na bodziec, ma zastosowanie niezależnie od wykorzystywanej platformy sprzętowej.
Głównym ograniczeniem preparatu z wyizolowanym rhopalium jest fakt, że rejestruje on sygnały z pojedynczego, odseparowanego rhopalium. U nienaruszonego zwierzęcia cztery rhopalia są połączone za pomocą nerwu pierścieniowego15, a ich sygnały wyjściowe są integrowane w celu wywołania skoordynowanego zachowania pływackiego. Komunikacja między rhopaliani nie jest dostępna w tym preparacie. Jednakże, w celu zbadania przetwarzania informacji wizualnych w obrębie pojedynczego układu nerwowego rhopalium, ta izolacja stanowi zaletę, a nie wadę. Eliminuje ona zakłócający wpływ sygnałów z innych rhopaliów i pozwala na pełną charakterystykę właściwości odpowiedzi wizualnej pojedynczego RNS.
Izolacja rhopalium wyklucza również multimodalny kontekst sensoryczny wykraczający poza samo rhopalium; domniemane chemoreceptory opisane anatomicznie na jego powierzchni17 nie zostały funkcjonalnie powiązane z odpowiedzią rozrusznikową, zatem sygnał ten można zasadnie interpretować jako odczyt przetwarzania wizualnego, w znacznym stopniu niezakłócony przez bodźce niewizualne. Bardziej fundamentalnym ograniczeniem jest fakt, że rejestracja z pozakomórkowego nerwu szypułkowego przechwytuje jedynie zintegrowany sygnał wyjściowy silnikowy trmOC. Poszczególne wkłady subOC do przetwarzania wizualnego nie mogą zostać rozróżnione elektrofizjologicznie; wymaga to zastosowania metod obrazowania in vivo z rozdzielczością przestrzenną. Opisana tutaj metoda elektrofizjologiczna jest zatem pomiarem końcowego zintegrowanego polecenia ruchowego, a nie pośrednich etapów przetwarzania w obrębie RNS.
Ma to istotne konsekwencje praktyczne: protokół elektrofizjologii izolowanego rhopalium nie jest metodą autonomiczną. Niezbędne jest przeprowadzenie analizy behawioralnej całego organizmu przed zaplanowaniem eksperymentów na izolowanym rhopalium, aby ustalić, które bodźce wzrokowe wywołują zachowania zmieniające częstotliwość skurczów dzwonu. Zachowań, które nie powodują zmiany częstotliwości sygnału rozrusznika, nie można ocenić za pomocą tego podejścia. Odczyt elektrofizjologiczny jest konkretną miarą aktywności motorycznej pływania, a projekty eksperymentalne muszą opierać się na wcześniejszej charakterystyce behawioralnej, aby zapewnić, że wybrane bodźce aktywują tę odpowiedź.
Sukces rejestracji oraz klasyfikacja sygnałów zależą od doświadczenia operatora. Około 90% preparatów spełniających kryterium żywotności po aklimatyzacji (krok 6.1.6) daje stabilną aktywność spontaniczną i mierzalną odpowiedź wywołaną wzrokowo w rękach doświadczonego operatora; spodziewany jest niższy odsetek w początkowych etapach krzywej uczenia się. Rozróżnianie sygnałów między przebiegami typu rozrusznikowego a potencjałami czynnościowymi (krok 7.1.2) było w niniejszym badaniu przeprowadzane przez jednego, doświadczonego operatora; ponieważ formalne badanie niezawodności między sędziami wymaga wielu niezależnych obserwatorów, nie było możliwe obliczenie statystyki zgodności między sędziami. Spójność wewnętrzną utrzymano zamiast tego poprzez porównywanie niejednoznacznych przebiegów z sygnałem o znanej tożsamości w obrębie tego samego pomiaru, zazwyczaj z odpowiedzią wywołaną o maksymalnym kontraście.
Wybór sprzętu i oprogramowania w niniejszym protokole — zmodyfikowany obiektyw projektora, niestandardowa mysz TTL, łańcuch czasowy Arduino oraz LabVIEW/Igor Pro/SAS — odzwierciedla wyposażenie i wiedzę dostępną w laboratorium autorów, a nie jest wymogiem samej metody. Obiektyw projektora został zmodyfikowany, ponieważ standardowa konfiguracja nie spełniała wymagań układu. Mysz TTL stanowi pomost między komputerem stymulującym a komputerem akwizycyjnym: LabVIEW wysyła impuls TTL do myszy i rejestruje czas wysyłki (Kanał 2), a kliknięcie myszy wyzwala generowanie bodźca za pomocą USB. Ponieważ opóźnienie między tym zarejestrowanym wyzwalaczem a rzeczywistą zmianą obrazu na ekranie jest zmienne, niezależny łańcuch fotodioda/Arduino weryfikuje rzeczywisty początek bodźca i przesyła drugi sygnał TTL z powrotem do DAQ (Kanał 3); może istnieć komercyjna alternatywa dla myszy, jednak nie jest ona znana autorom. Żaden z tych elementów sprzętowych nie wymaga specjalistycznych umiejętności wykonawczych ani wysokich nakładów finansowych, a każdy zamienny system akwizycji musi jedynie spełniać ten sam wymóg zsynchronizowanego próbkowania wielokanałowego o częstotliwości 1 kHz, wraz z wynikającą z tego wiedzą z zakresu elektroniki lub programowania. Z jednym wyjątkiem: dostosowanie odpowiedniego wzmacniacza analogowego wymaga wiedzy z zakresu projektowania układów niskoszumowych, której nie przypisuje się czytelnikowi.
T. cystophora łączy zaawansowanie wizualne systemów podatnych na manipulacje genetyczne, takich jak Drosophila i zebrafish, z łatwością analizy na poziomie obwodów systemów o prostej liczbie neuronów, takich jak C. elegans: układ nerwowy rhopalium składa się z około 100 neuronów, w porównaniu do rzędu 20 0 w mózgu Drosophila1 i 302 w całym układzie nerwowym C. elegans2. Kolejną zaletą tego systemu jest jego hierarchia sensoryczna: T. cystophora posiada wiele modalności sensorycznych, w tym mechanorecepcję (funkcjonalnie zaangażowaną w uczenie się asocjacyjne14) i domniemaną chemorecepcję (opisaną anatomicznie, ale nie wykazaną funkcjonalnie17), oprócz wzroku. Jednakże w izolowanym preparacie rhopalium tylko wzrok został funkcjonalnie wykazany jako czynnik sterujący odpowiedzią rozrusznika ocenianą w niniejszym protokole, co pozwala interpretować sygnał jako stosunkowo niezakłócony odczyt przetwarzania wizualnego, bez komplikacji interpretacyjnych wynikających z jednoczesnego działania wielu zmysłów kształtujących wspólnie odpowiedź behawioralną. Bodźce wizualne mogą być precyzyjnie określone w przestrzeni, czasie i kontraście, natomiast sygnał z rozrusznika może służyć jako ilościowy wskaźnik sterowanego wizualnie wyjścia motorycznego, istotnego dla zachowania całego organizmu14.
Poza elektrofizjologią wzroku, izolowany preparat rhopalium został z sukcesem zastosowany w badaniach farmakologicznych RNS poprzez testy z wykorzystaniem neuroprzekaźników i neuromodulatorów dodawanych do kąpieli, co umożliwiło identyfikację systemów przekaźnictwa modulujących aktywność rozrusznika24. Preparat ten nadaje się również do metod obrazowania wapniowego i napięciowego. Wstępne, niepublikowane prace w laboratorium autorów, z wykorzystaniem przenikającego przez błony komórkowe wskaźnika wapnia, potwierdzają wykonalność obrazowania wapniowego w tym preparacie; obrazowanie napięciowe nie zostało jeszcze przetestowane. Takie podejścia mogłyby bezpośrednio zweryfikować architekturę sieci subOC–trmOC, która pozostaje modelem roboczym, oraz zapewnić rozdzielczość przestrzenną niezbędną do niezależnej analizy aktywności subOC i trmOC podczas stymulacji wzrokowej – możliwości, której nie zapewnia samo rejestrowanie pozakomórkowe. Łącznie te uzupełniające się metody pozycjonują izolowane rhopalium T. cystophora jako wysoce przystępny preparat do badań na poziomie systemowym nad przetwarzaniem bodźców wzrokowych i integracją sensoryczno-motoryczną w układzie nerwowym o określonej i ograniczonej złożoności.
Oświadczenia
Autorzy oświadczają, że nie stwierdzono konfliktu interesów.
Podziękowania
Autorzy są wdzięczni Dan-ericowi Nilssonowi za udostępnienie obrazu rhopalium (Rysunek 1B), Mathiasowi Hoppemu, Ingo Kleinowi, Olafowi Wendtowi i Holgerowi Voigtowi (Uniwersytet w Kilonii) za pomoc techniczną oraz członkom Grupy Biologii Sensorycznej (Uniwersytet Kopenhaski) za pomoc w utrzymaniu kultur. Finansowane przez Deutsche Forschungsgemeinschaft (DFG, Niemiecka Fundacja Badawcza) – ID projektu 567357102 (J.B.)
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| szalka Petriego 35 mm | Nunc | 153066 | Każda odpowiednia szalka Petriego |
| Arduino Uno | Arduino | — | Konwertuje sygnał z fotodiody na sygnał TTL w celu weryfikacji czasu podawania bodźca; częstotliwość odświeżania 1 kHz |
| Soczewka dwuwypukła f = 30 mm | Linos | G063-02-0 | Zastąpiono soczewkę producenta; skupia obraz na ścianie ekranu projekcyjnego komory rejestracyjnej |
| Kapilara z borokrzemianowego szkła, średnica wewnętrzna 1,16 mm × 2,00 mm średnicy zewnętrznej × 80 mm L | Produkty naukowe | GB20-8P | Do wytwarzania elektrod ssących |
| Jednorazowa pipeta transferowa | Sarstedt | 86.1171 | Odciąć końcówkę tak, aby otwór miał ok. 8 mm w celu przeniesienia zwierząt |
| Uchwyt elektrody PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | uchwyt typu BNC z portem ssącym; dostarczany z drutem Ag o średnicy ~0,25 mm |
| Wzmacniacz pozakomórkowy EXT-10-2F | Elektronika NPI | — | Różnicowy wzmacniacz sprzężony pojemnościowo; przedwzmacniacz (headstage) ×10, wzmacniacz główny ×10, całkowite wzmocnienie ×10; zintegrowany filtr pasmowo-przepustowy: filtr górnoprzepustowy 1 Hz, filtr dolnoprzepustowy 50 Hz; aktywny dodatkowy filtr notch 50/60 Hz; dostarczony z ramieniem przedwzmacniacza głowicowego |
| Szkiełko nakrywkowe do komory countingowej 20 mm × 26 mm | Carl Roth | L 189 | Opiera się na krawędziach szkiełka podstawowego dzięki ujemnej wyporności; jest bardziej wytrzymałe niż standardowe szkiełka podstawowe |
| Igor Pro 6.37 | WaveMetrics Inc. | Wersja 6.37 | Lake Oswego, OR, USA; do analizy sygnałów rozrusznika serca |
| LabVIEW 2016 | National Instruments | Wersja 2016 | Oprogramowanie do akwizycji i kontroli bodźców; VI dostarczone jako materiał uzupełniający |
| strzykawka z końcówką Luer-lock | — | — | Uniwersalna; dowolna standardowa strzykawka laboratoryjna z końcówką Luer-lock |
| Microforge MF-2 | Narishige | — | Do polerowania końcówki elektrody (Opcja A) |
| Mikromanipulator MM3 | Märzhäużytkownik Wetzlar | 0-42-101-0 (prawy) / 0-42-102-00 (lewy) | Ręczny manipulator trójosiowy; wymagane dwa (do trzymania pipety i elektrody rejestrującej) |
| Wyciągacz mikropipet, Flaming/Brown P-10 | Sutter Instrument | P-100 | Program wyciągania: Linia 1×1: temp. 535, wyciąganie 0, prędkość 12, czas 20, ciśnienie 60, rampa 540; linie 2–4 × temp 532, pull 0, vel 12, czas 10 |
| Wtyczka Neuromatic v2.0 | — | Wersja 2.0 | Dla programu Igor Pro; dyskryminacja sygnałów stymulatora i ekstrakcja znaczników czasu |
| Filtr gęstości neutralnej | Thorlabs | NE10A | transmisja 10%; tłumienie do walidacji empirycznej poprzez kalibrację biologiczną (krok 4.1) |
| NI USB-6343 DAQ | National Instruments | 781438-01 | 16-bitowy wielofunkcyjny moduł DAQ; akwizycja elektrofizjologiczna, dostarczanie bodźców TTL dla myszy, wejście TTL Arduino; częstotliwość próbkowania 1 kHz |
| projektor DLP Optoma ML750 | Optoma | ML750 | Usunięto fabryczny układ soczewek; zastosowano w zamian pojedynczą soczewkę dwopukłą o ogniskowej f = 30 mm |
| Oscyloskop DS102E | Rigol | DS102E | Do monitorowania sygnału w czasie rzeczywistym podczas rozmieszczania elektrod i optymalizacji filtrów |
| pipeta Pasteura 150 mm | Carl Roth | 4518 | Do przeniesienia rhopalium |
| Fotodioda BRW21 | OSRAM | BRW21 | Fotodioda krzemowa; monitoruje czarno-biały kwadrat wskaźnikowy na wyświetlaczu komputera |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Cary, NC, USA; analiza statystyczna odpowiedzi rozrusznika serca; kod dostępny pod adresem doi: 10.17632/csgymw8kjk.1 |
| Przewody silikonowe | Erich Eydam KG | 9205000 | Do połączenia ssącego pomiędzy uchwytem elektrody a strzykawką |
| filtr strzykawkowy Filtropur S, 0.20 µm PES | Sarstedt | 83.1826.001 | Do filtrowania wody morskiej z zbiornika hodowlanego do komory rejestracyjnej i naczyń preparacyjnych |
| nożyczki Vannasa | World Precision Instruments | 500086 | 0,025 mm × ostrze 0,015 mm; do przecinania szypułki ropaliów |
| WTE var 3185 | Asystent | — | Kontroler temperatury kąpieli wodnej |
Bibliografia
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.