Zintegrowane analizy bioinformatyczne i eksperymentalne pozwoliły zidentyfikować LINC01871 jako potencjalny predyktor wrażliwości na inhibitory kinaz zależnych od cyklin 4/6 oraz wykazały, że nadekspresja LINC01871 hamuje proliferację raka piersi i wiąże się z osłabieniem sygnalizacji NF-κB.
Artykuł badawczy
Wrażliwość na inhibitory kinazy zależnej od cyklin 4/6 w raku piersi u ludzi opśredniczona przez LINC01871
W tym artykule
Podsumowanie
Streszczenie
Rak piersi pozostaje najczęściej diagnozowanym nowotworem złośliwym u kobiet, a oporność na inhibitory kinaz zależnych od cyklin 4 i 6 (CDK4/6) ogranicza długoterminową skuteczność leczenia. Celem niniejszego badania była identyfikacja długich niekodujących RNA (lncRNA) powiązanych z przewidywaną wrażliwością na inhibitory CDK4/6 oraz zbadanie ich funkcji biologicznych w raku piersi. Zintegrowano dane transkrypcyjne z projektu The Cancer Genome Atlas (TCGA) oraz dane dotyczące wrażliwości na leki z bazy Genomics of Drug Sensitivity in Cancer 2 (GDSC2), a wrażliwość na leki przewidziano przy użyciu algorytmu oncoPredict. Potencjalne cząsteczki lncRNA zidentyfikowano poprzez analizę różnicowej ekspresji, analizę ważonej sieci koekspresji genów, analizę prognostyczną oraz uczenie maszynowe. Następnie funkcje biologiczne LINC01871 oceniono w eksperymentach in vitro i in vivo. Zidentyfikowano sześćdziesiąt dwa lncRNA powiązane z przewidywaną wrażliwością na rybocyklib i palbocyklib, z których wybrano sześć kluczowych lncRNA. LINC01871 wykazał najwyższą zdolność różnicowania w odniesieniu do przewidywanej wrażliwości na leki. Nadekspresja LINC01871 wiązała się ze zwiększoną wrażliwością komórek raka piersi na rybocyklib i palbocyklib, hamowaniem proliferacji komórek, promowaniem apoptozy oraz tłumieniem sygnalizacji czynnika jądrowego kappa B (NF-κB). Analiza transkrypcyjna pojedynczych komórek wykazała wysoką ekspresję LINC01871 w limfocytach T i komórkach natural killer (NK), natomiast analizy nacieku immunologicznego w oparciu o transkryptom wykazały, że wysoka ekspresja LINC01871 wiąże się ze zwiększonym naciekiem immunologicznym. Wyniki te wskazują na LINC01871 jako potencjalny biomarker wrażliwości na inhibitory CDK4/6 i demonstrują jego działanie supresorowe w raku piersi. Dalsze badania kliniczne i mechanistyczne są niezbędne do potwierdzenia jego wartości prognostycznej i znaczenia terapeutycznego.
Wprowadzenie
Rak piersi pozostaje główną przyczyną śmiertelności z powodu nowotworów wśród kobiet na całym świecie, pomimo ciągłych postępów w jego leczeniu klinicznym1,2. Zakres leczenia sukcesywnie rozszerzano poza terapię endokrynną i chemioterapię, aby włączyć podejścia celowane molekularnie3. Wśród nich inhibitory kinaz zależnych od cyklin 4 i 6 (CDK4/6), takie jak rybocyklib, palbocyklib i abemacyklib, przyniosły znaczące korzyści kliniczne w leczeniu raka piersi z dodatnim receptorem estrogenowym i/lub progesteronowym4,5,6. Niemniej jednak długotrwałe leczenie może wiązać się z nabyciem oporności, co ogranicza trwałość korzyści terapeutycznych7.
Inhibicja CDK4/6 działa głównie poprzez oś regulacyjną cyklu komórkowego Rb–E2F. Hamowanie aktywności kompleksu CDK4/6–cyklina D zmniejsza fosforylację białka retinoblastomy (Rb), co pozwala hipofosforylowanemu białku Rb ograniczać transkrypcję zależną od E2F, a w konsekwencji promować zatrzymanie cyklu w fazie G1 i ograniczać proliferację komórek nowotworowych8. Choć opisano kilka mechanizmów przyczyniających się do oporności na inhibitory CDK4/6, nie wyjaśniają one w pełni różnic w odpowiedzi na leczenie. Mechanizmy te obejmują aberrantną aktywację szlaku fosfatydyloinozytolo-3-kinazy/kinazy białkowej B/ssaczej kinazy mTOR (PI3K/AKT/mTOR) oraz zwiększoną ekspresję kompleksów cyklina–CDK9,10. Co istotne, komponenty szlaku PI3K/AKT/mTOR są same w sobie celami terapeutycznymi w zaawansowanych stadiach choroby11. Zbiorczo obserwacje te wskazują, że dodatkowe molekularne determinanty wrażliwości i oporności na inhibitory CDK4/6 wciąż wymagają zidentyfikowania. Znaczenie kliniczne biomarkerów predykcyjnych ilustrują pojawiające się strategie kierowane biomarkerami w leczeniu przerzutowego raka piersi HR-dodatniego. Przykładowo, seryjna analiza krążącego DNA nowotworowego (ctDNA) może wykryć pojawienie się mutacji ESR1 podczas leczenia opartego na inhibitorach CDK4/6. Badania PADA-1 i SERENA-6 wykazały, że taka detekcja molekularna może stać się podstawą do wczesnej zmiany terapii endokrynnej przy jednoczesnym utrzymaniu inhibicji CDK4/612,13. Mutacje ESR1 stanowią jednak tylko jedną z determinant odpowiedzi terapeutycznej i nie mogą wyjaśnić wszystkich przypadków wrażliwości lub oporności. Ograniczenie to ma coraz większe znaczenie kliniczne, ponieważ pacjentki z przerzutowym rakiem piersi HR-dodatnim/HER2-ujemnym, u których następuje progresja podczas leczenia inhibitorami CDK4/6, mają obecnie kilka kolejnych opcji terapeutycznych, w tym doustne selektywne degradery receptora estrogenowego, inhibitory szlaku PI3K/AKT oraz koniugaty przeciwciało-lek. Zidentyfikowanie dodatkowych potencjalnych biomarkerów związanych z zróżnicowaną wrażliwością na inhibitory CDK4/6 może zatem pomóc w odróżnieniu pacjentek, które z większym prawdopodobieństwem odniosą korzyść z tych terapii, od tych, u których może być wymagana wcześniejsza adaptacja leczenia.
Długie niekodujące RNA (lncRNA) to transkrypty pozbawione zdolności kodowania białek, które uczestniczą w regulacji licznych procesów biologicznych. Kilka cząsteczek lncRNA zostało powiązanych z progresją nowotworów oraz odpowiedzią na leczenie. W przypadku raka płaskonabłonkowego jamy ustnej wykazano, że LOC100506114 promuje proliferację i migrację poprzez oddziaływanie z czynnikiem transkrypcyjnym RUNX i następczą regulację ekspresji genów downstream14. W raku piersi HISLA został powiązany ze zwiększoną glikolizą i wzmocnioną opornością na apoptozę15, natomiast LINC02568 przyczynia się do oporności endokrynnej poprzez regulację ESR1 i CA1216. Pomimo rozpoznanego udziału lncRNA w biologii nowotworów, ich związek z opornością na inhibitory CDK4/6 pozostaje niewystarczająco scharakteryzowany. W niniejszym badaniu zastosowano zintegrowaną strategię multiomiczną i uczenia maszynowego w celu zidentyfikowania lncRNA związanych z przewidywaną wrażliwością na rybocyklib i palbocyklib, spośród których kandydatem okazał się LINC01871. Następnie zbadano związek LINC01871 z wrażliwością na oba te leki oraz oceniono jego wpływ na proliferację komórek raka piersi przy użyciu podejść eksperymentalnych in vitro i in vivo.
Protokół
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Wyniki
LINC01871 jest ściśle powiązany z wrażliwością na rybocyklib i palbocyklib
Przewidywane wartości IC50 dla rybocyklibu i palbocyklibu zostały oszacowane dla pacjentów w kohorcie TCGA-BRCA z wykorzystaniem danych GDSC2 i uporządkowane rosnąco. Pacjentów z najniższego kwartyla przewidywanych wartości IC50 przypisano do grupy wrażliwej, natomiast pacjentów z najwyższego kwartyla do grupy opornej (Rysunek 1A,B). Porównanie tych grup pozwoliło zidentyfikować lncRNA o różnej ekspresji dla każdego z leków (Rysunek dodatkowy 1A,B). Analiza WGCNA pozwoliła dodatkowo zidentyfikować moduły lncRNA istotnie powiązane z przewidywaną wrażliwością na rybocyklib i palbocyklib (Rysunek 1C,D; Rysunek dodatkowy 1C,D). Integracja czterech wynikowych zestawów genów pozwoliła uzyskać 62 wspólne lncRNA (Rysunek 1E), z których 18 było istotnie powiązanych z rokowaniem zarówno w jednowymiarowej regresji Coxa, jak i w analizach przeżycia Kaplana-Meiera. Następnie zastosowano regresję LASSO w celu dalszego zawężenia tego zestawu, co doprowadziło do wyłonienia sześciu istotnych rokowniczo lncRNA: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 oraz LINC01871 (Rysunek 1F,G; Rysunek dodatkowy 2A). Ich zdolność do rozróżniania przewidywanej oporności na leki została następnie porównana za pomocą analizy AUC. spośród sześciu kandydatów LINC01871 wykazał najwyższą średnią wartość AUC dla rybocyklibu i palbocyklibu (Rysunek 1H–J; Rysunek dodatkowy 2B,C).
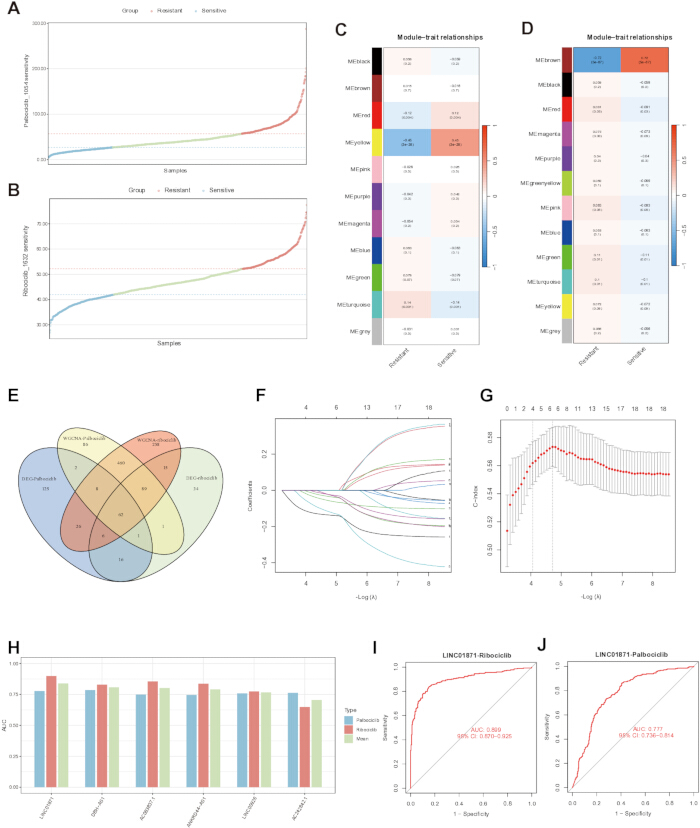
Rycina 1. Identyfikacja długich niekodujących RNA związanych z przewidywaną wrażliwością na rybocyklib i palbocyklib.
(A,B) Rozkład przewidywanych wartości połowicznego maksymalnego stężenia hamującego (IC50) dla palbocyklibu (A) i rybocyklibu (B) w kohorcie inwazyjnego raka piersi z bazy The Cancer Genome Atlas (TCGA-BRCA), oszacowany z wykorzystaniem zbioru danych Genomics of Drug Sensitivity in Cancer 2 (GDSC2). (C,D) Wagowa analiza sieci koekspresji genów (WGCNA) wykazująca powiązania między modułami a cechami dla palbocyklibu (C) i rybocyklibu (D). (E) Diagram Venna ilustrujący geny wspólne dla zestawów genów o różnej ekspresji oraz zestawów genów pochodzących z analizy WGCNA związanych z oboma lekami. (F,G) Regresja LASSO (Least absolute shrinkage and selection operator) w celu wyboru długich niekodujących RNA (lncRNA) istotnych rokowniczo. (H) Porównanie wartości pola pod krzywą charakterystyki operacyjnej odbiornika (AUC) dla sześciu lncRNA wybranych metodą LASSO. (I,J) Krzywe charakterystyki operacyjnej odbiornika (ROC) oceniające zdolność LINC01871 do rozróżniania przewidywanej wrażliwości na rybocyklib (I) i palbocyklib (J). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Nadekspresja LINC01871 zwiększyła wrażliwość na leki w komórkach raka piersi
W kohorcie TCGA-BRCA wyższa ekspresja LINC01871 wiązała się z niższymi przewidywanymi wartościami IC50 zarówno dla rybocyklibu, jak i palbocyklibu (Rycyna 2A,B). Zależność tę zbadano dalej w klinicznie istotnej podgrupie HR-dodatniej/HER2-ujemnej (n = 599). W tej podgrupie przewidywane wartości IC50 dla obu preparatów były znacząco niższe u pacjentek z wysoką ekspresją LINC01871 niż u pacjentek z niską ekspresją. Co więcej, ekspresja LINC01871 była odwrotnie skorelowana z przewidywanymi wartościami IC50 dla rybocyklibu i palbocyklibu (Rycina uzupełniająca 3A,B). Powiązanie obliczeniowe zostało następnie zweryfikowane eksperymentalnie. Testy cytotoksyczności wykazały większą wrażliwość na rybocyklib i palbocyklib w komórkach raka piersi z nadekspresją LINC01871 niż w komórkach kontrolnych z wektorem (Rycina 2C,D). Cytometria przepływowa wykazała wyższy odsetek komórek w fazie G1 i niższy odsetek w fazie S po nadekspresji LINC01871, co jest zgodne ze zwiększonym zatrzymaniem cyklu komórkowego w fazie G1 (Rycina 2E). W testach tworzenia kolonii rosnące stężenia rybocyklibu lub palbocyklibu stopniowo redukowały tworzenie kolonii (Rycina 2F,G). Przy równoważnych stężeniach leków zdolność do tworzenia kolonii była znacząco niższa w komórkach z nadekspresją LINC01871 niż w komórkach kontrolnych z wektorem. Analiza Western blot dodatkowo wykazała niższe poziomy CDK4, CDK6 i cykliny D1, którym towarzyszyło zmniejszone fosforylowanie RB w komórkach z nadekspresją LINC01871 (Rycina 2H). Te zmiany molekularne były zgodne z silniejszym zatrzymaniem w fazie G1 obserwowanym po nadekspresji LINC01871.
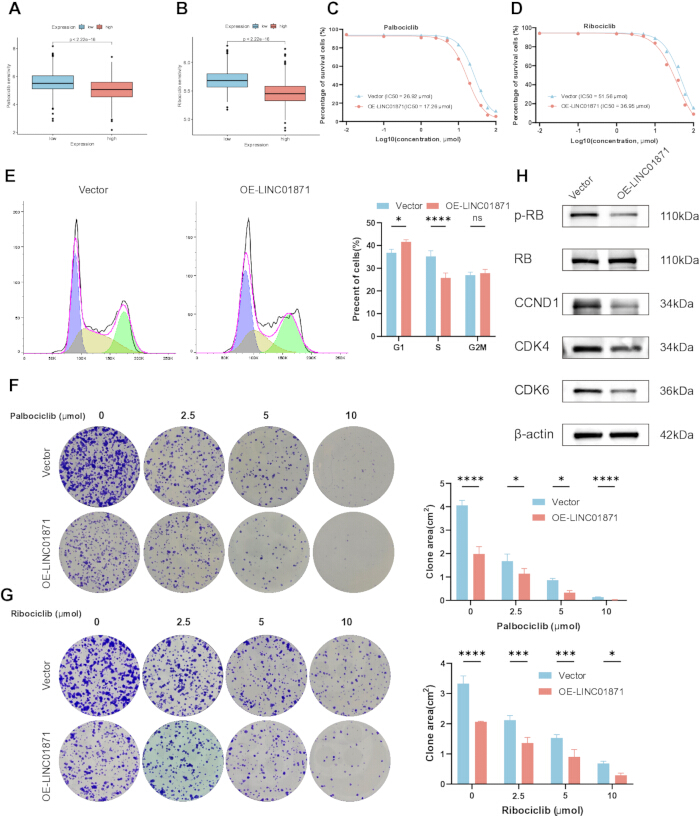
Rysunek 2Związek nadekspresji LINC01871 z wrażliwością na inhibitory kinaz zależnych od cyklin 4/6 w komórkach raka piersi. (A,B) Przewidywana wrażliwość na palbocyklib (A) i rybocyklib (B) w zależności od niskiej lub wysokiej ekspresji LINC01871. (C,D) Krzywe odpowiedź dawka–efekt dla palbocyklibu (C) i rybocyklibu (D) w komórkach z kontrolnym wektorem oraz komórkach z nadekspresją LINC01871, wraz z odpowiadającym im połowicznym maksymalnym stężeniem hamującym (IC50) wartości wskazane na każdym panelu. (E) Ocena rozkładu faz cyklu komórkowego za pomocą cytometrii przepływowej w komórkach z kontrolą wektorową oraz w komórkach z nadekspresją LINC01871. (F,G) Tworzenie kolonii po zastosowaniu zwiększających się stężeń palbocyklibu (F) i rybocyklibu (G). (H) Analiza Western blot kinazy zależnej od cyklin 4 (CDK4), kinazy zależnej od cyklin 6 (CDK6), cykliny D1 (CCND1), białka retinoblastomy (RB) oraz fosforylowanego białka RB (p-RB), z β-aktyna służąca jako kontrola ładunku. OE-LINC01871, nadekspresja LINC01871; ns, brak istotności statystycznej. Wszystkie eksperymenty przeprowadzono niezależnie w trzech powtórzeniach. Dane przedstawiono jako średnia ± SD. IC50 wartości wyznaczono za pomocą regresji nieliniowej. Dane dotyczące rozkładu cyklu komórkowego i tworzenia kolonii przeanalizowano przy użyciu dwuczynnikowej analizy wariancji (ANOVA). *P < 0,05, **P < 0,01, ***P < 0,001 oraz ****P < 0,0001; ns, nieistotne statystycznie. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
Pacjenci z wysoką ekspresją LINC01871 mieli tendencję do lepszych wyników klinicznych
Powiązanie prognostyczne LINC01871 zbadano następnie w kohorcie TCGA-BRCA. Analizy Kaplan-Meier wykazały, że wyższa ekspresja LINC01871 była ogólnie powiązana z dłuższym przeżyciem całkowitym oraz dłuższym czasem wolnym od progresji choroby (Rycina 3A; Rycina uzupełniająca 3C). Porównania próbek sparowanych i niesparowanych ujawniły również istotnie niższą ekspresję LINC01871 w tkankach nowotworowych niż w tkankach prawidłowych (Rycina 3B,C). Następnie zbadano związek między ekspresją LINC01871 a cechami kliniczno-patologicznymi. Niższa ekspresja LINC01871 miała tendencję do powiązania z większym rozmiarem guza i była obserwowana u pacjentów uznanych za zmarłych w porównaniu z tymi, którzy przeżyli (Rycina 3D,E). Wśród pacjentów poddanych radioterapii analiza podgrup wykazała ponadto istotnie korzystniejsze wyniki przeżycia u osób z wysoką ekspresją LINC01871 (Rycina uzupełniająca 3D). Następnie opracowano prognostyczny nomogram uwzględniający ekspresję LINC01871 wraz z wieloma cechami klinicznymi (Rycina uzupełniająca 3E). Analiza kalibracyjna wykazała ścisłą zgodność między prawdopodobieństwem przeżycia oszacowanym za pomocą nomogramu a wynikami obserwowanymi (Rycina uzupełniająca 3F).
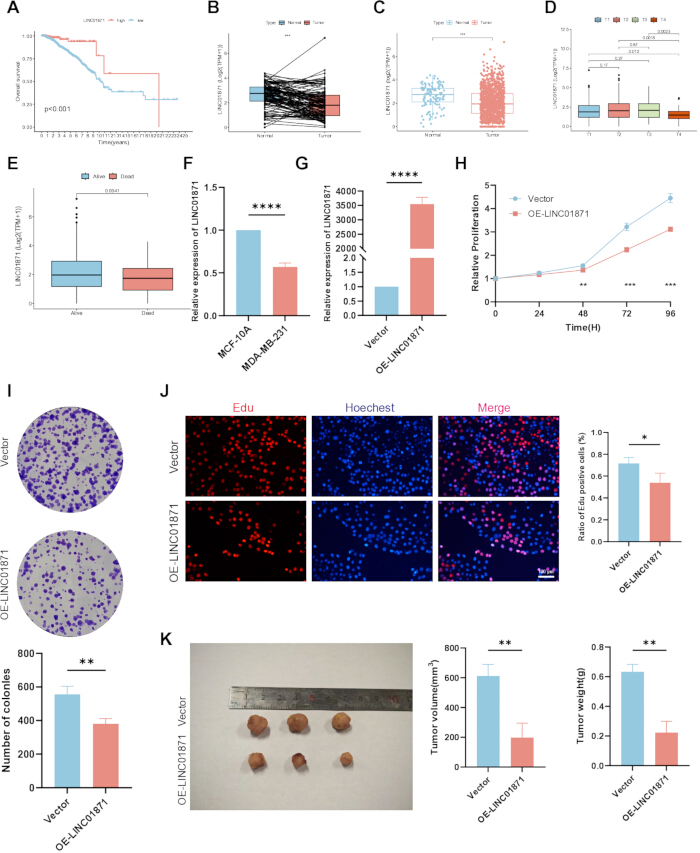
Rysunek 3Ekspresja LINC01871, powiązania prognostyczne oraz hamowanie proliferacji raka piersi.
(A) Analiza Kaplana-Meiera przeżycia całkowitego w podziale według ekspresji LINC01871. (B, C) Analizy parzyste (B) i nieparzyste (C) porównujące ekspresję LINC01871 w tkankach prawidłowych i nowotworowych. (D, E) Ekspresja LINC01871 w zależności od kategorii T guza (D) oraz stanu przeżycia (E). (F) Porównanie względnej ekspresji LINC01871 w komórkach MCF-10A i MDA-MB-231. (G) Potwierdzenie nadekspresji LINC01871 w komórkach MDA-MB-231 za pomocą ilościowej reakcji polimerazy łańcuchowej z odwrotną transkrypcją (RT-qPCR). (H–J) Ocena proliferacji komórek za pomocą testu CCK-8 (H), testu tworzenia kolonii (I) oraz 5-etynyl-2-′test wbudowywania 5-deoksyurydyny (EdU) (J). Pasek skali w panelu J reprezentuje 100 μm(K) Wygląd, objętość i masa guzów ksenoprzeszczepionych w grupach z wektorem kontrolnym oraz z nadekspresją LINC01871. TPM, liczba transkryptów na milion; OE-LINC01871, nadekspresja LINC01871. Przeżywalność całkowitą oceniono za pomocą analizy Kaplana–Meiera z testem log-rank. Porównania parowe między tkankami nowotworowymi a prawidłowymi przeprowadzono za pomocą testu znaków Wilcoxona. W przypadku pozostałych porównań dwóch grup zastosowano nieparzysty test t Student’a lub test U Manna–Whitneya po ocenie normalności rozkładu testem Shapiro–Wilka. Pomiary CCK-8 przeanalizowano za pomocą dwuczynnikowej analizy wariancji. Eksperymenty in vitro obejmowały trzy niezależne powtórzenia biologiczne, natomiast w eksperymentach z ksenoprzeszczepami w każdej grupie znajdowały się trzy myszy. Dane przedstawiono jako średnia ± odchylenie standardowe. *P < 0,05, **P < 0,01, ***P < 0,001 oraz ****P < 0,0001; ns, nieistotne statystycznie. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Nadekspresja LINC01871 hamuje proliferację komórek nowotworowych i wiąże się z osłabieniem sygnalizacji NF-κB
Hamujący wpływ LINC01871 na proliferację komórek nowotworowych został następnie zbadany z wykorzystaniem modeli in vitro i in vivo. Ekspresja LINC01871 była znacznie wyższa w normalnej linii komórkowej nabłonka piersi niż w linii komórkowej raka piersi (Rycyna 3F). Prawidłowe ustanowienie modelu nadekspresji LINC01871 potwierdzono za pomocą RT-qPCR, która wykazała wyraźnie podwyższoną ekspresję LINC01871 w stosunku do grupy kontrolnej z wektorem (Rycina 3G). Przeprowadzone następnie testy CCK-8 ujawniły istotnie zmniejszoną zdolność proliferacyjną komórek z nadekspresją LINC01871 (Rycina 3H). Zgodnie z tym wynikiem, nadekspresja LINC01871 zmniejszyła zdolność do tworzenia kolonii (Rycina 3I) oraz zredukowała odsetek komórek EdU-dodatnich (Rycina 3J). W modelu ksenoprzeszczepu guzy pochodzące z komórek z nadekspresją LINC01871 były znacznie mniejsze niż guzy pochodzące z komórek kontrolnych z wektorem (Rycina 3K).
W celu zbadania potencjalnych mechanizmów leżących u podstaw tych efektów przeprowadzono analizy wzbogacenia funkcjonalnego z wykorzystaniem dwóch zestawów genów: genów różnicowo ekspresyjnych pomiędzy grupami o wysokiej i niskiej ekspresji LINC01871 oraz genów zidentyfikowanych jako współwyrażane z LINC01871 w analizie korelacji Pearsona. Analiza GO tych zestawów genów ujawniła powiązania z kilkoma funkcjami związanymi z odpornością, w tym z wiązaniem receptora limfocytów T, wiązaniem kompleksu białek głównego układu zgodności tkankowej (MHC), pozytywną regulacją aktywacji leukocytów oraz aktywnością receptorów immunologicznych (Rycyna 4A,C). Analiza KEGG w podobny sposób zidentyfikowała szlaki związane z odpornością, w tym sygnalizację receptora limfocytów T oraz szlak punktu kontrolnego ekspresji liganda 1 programowanej śmierci (PD-L1) i białka 1 programowanej śmierci komórki (PD-1) w nowotworach. Wzbogacenie zaobserwowano również dla szlaków sygnalizacyjnych kinazy Janusa/przekaźnika sygnału i aktywatora transkrypcji (JAK-STAT) oraz NF-κB (Rycyna 4B,D). Ponieważ sygnalizacja NF-κB została zidentyfikowana w obu analizach wzbogacenia, jej aktywność zbadano dalej za pomocą western blotu. Fosforylacja P65 była wyraźnie niższa w komórkach z nadekspresją LINC01871 niż w grupie kontrolnej (Rycyna 4E), co jest wynikiem zgodnym z obniżoną aktywacją szlaku NF-κB. Oceńiono również zależność między nadekspresją LINC01871 a apoptozą. Western blot wykazał zwiększoną ekspresję proapoptotycznego białka Bax i zmniejszoną ekspresję antyapoptotycznego białka Bcl-2 po nadekspresji LINC01871 (Rycyna 4F). Cytometria przepływowa wykazała ponadto istotnie większą proporcję komórek apoptotycznych w grupie z nadekspresją LINC01871 niż w grupie kontrolnej z wektorem (Rycyna 4G).
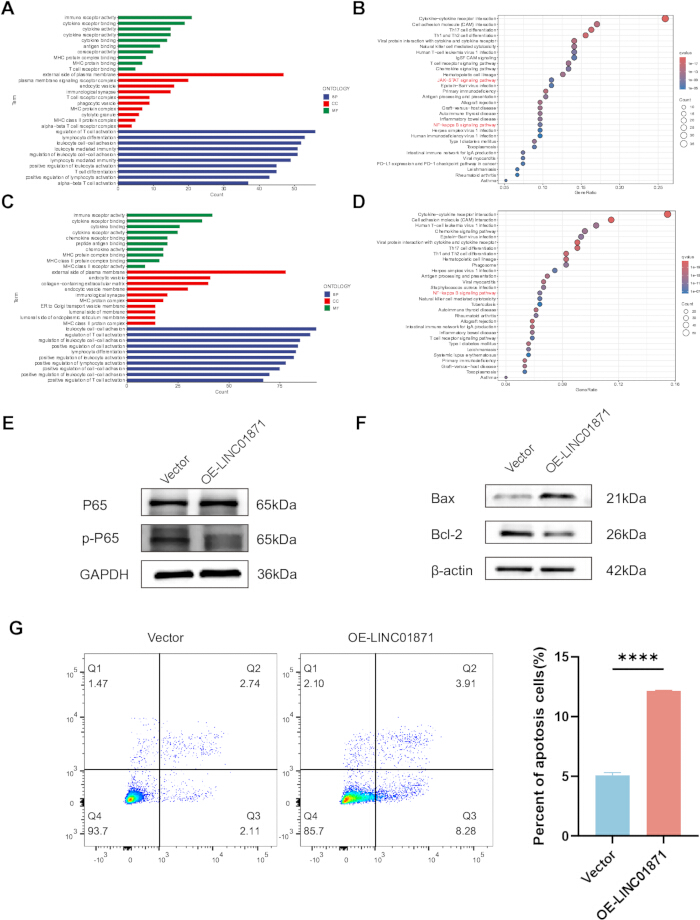
Rycina 4Związek LINC01871 z sygnalizacją jądrowego czynnika kappa B oraz apoptozą.
(A,B) Analizy wzbogacenia Gene Ontology (GO) (A) oraz Kyoto Encyclopedia of Genes and Genomes (KEGG) (B) dla genów wykazujących różnicową ekspresję pomiędzy grupami o wysokiej i niskiej ekspresji LINC01871. (C,D) Analizy wzbogacenia GO (C) i KEGG (D) dla genów współwyrażanych z LINC01871. (E) Ocena metodą Western blot czynnika jądrowego kappa B (NF-κB) białka szlaku P65 oraz fosforylowane P65 (p-P65), przy czym dehydrogenaza glikolowa 3-fosforanowa (GAPDH) posłużyła jako kontrola załadunku. (F) Ocena białek związanych z apoptozą: białka 2 chłoniaka z komórek B (Bcl-2) oraz białka Bax (Bcl-2-associated X protein) za pomocą analizy Western blot, przy użyciu β-aktyna jako kontrola ładunku. (G) Ocena i ilościowe oznaczenie apoptozy metodą cytometrii przepływowej w komórkach z wektorem kontrolnym oraz komórkach z nadekspresją LINC01871. Wszystkie eksperymenty in vitro obejmowały trzy niezależne powtórzenia biologiczne. Przedstawione obrazy western blot są reprezentatywne dla trzech niezależnych eksperymentów biologicznych. Dane przedstawiono jako średnią ± SD. Porównania między komórkami kontrolnymi z wektorem a komórkami z nadekspresją LINC01871 przeprowadzono przy użyciu nieparzystego testu t-Studenta t-test lub test U Manna–Whitneya po ocenie normalności rozkładu testem Shapiro–Wilka. *P < 0,05, **P < 0,01, ***P < 0,001 oraz ****P < 0,0001; ns, nieistotne statystycznie. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Analiza LINC01871 w różnych typach nowotworów
Biorąc pod uwagę cechy supresyjne względem guza związane z LINC01871 w raku piersi, rozszerzyliśmy analizę na wiele typów nowotworów, aby scharakteryzować jego ekspresję oraz powiązania prognostyczne. Różnicowa ekspresja LINC01871 została zaobserwowana w kilku innych typach nowotworów złośliwych poza rakiem piersi (Rysunek 5A). W gruczastem raku jelita grubego (COAD), jasnokomórkowym raku nerki (KIRC), brodawkowatym raku nerki (KIRP), płaskonabłonkowym raku płuca (LUSC) oraz raku tarczycy (THCA) wykryto istotne różnice między tkankami nowotworowymi a prawidłowymi w porównaniach sparowanych i niesparowanych (Rysunek 5B). Analizy przeżywalności pozwoliły dodatkowo zidentyfikować istotne powiązania prognostyczne dla LINC01871 w płaskonabłonkowym raku głowy i szyi (HNSC), KIRC, glejakach o niskim stopniu złośliwości (LGG), gruczolastym raku odbytnicy (READ), czerniaku skóry (SKCM), gruczolastym raku trzonu macicy (UCEC), raku urothelialnym pęcherza moczowego (BLCA), raku hepatokomórkowym wątroby (LIHC) oraz gruczolastym raku prostaty (PRAD) (Rysunek 5C–E).
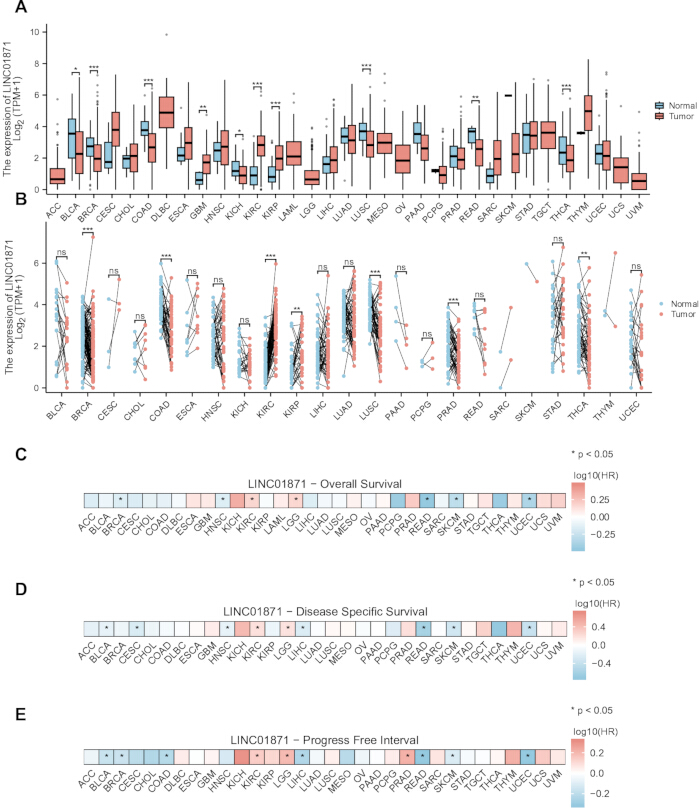
Rysunek 5. Analizy ekspresji i prognostyczne LINC01871 w wielu typach nowotworów.
(A,B) Porównanie ekspresji LINC01871 w tkankach nowotworowych i prawidłowych w wielu typach nowotworów przy użyciu analiz nieparowanych (A) oraz parowanych (B). (C–E) Związki prognostyczne LINC01871 przedstawiające logarytmicznie przekształcone współczynniki hazardu dla przeżycia całkowitego (C), przeżycia specyficznego dla choroby (D) oraz czasu wolnego od progresji (E). HR, współczynnik hazardu; TPM, liczba transkryptów na milion; ns, brak istotności statystycznej. Skróty typów nowotworów opierają się na nomenklaturze The Cancer Genome Atlas. Nieparowane dane nowotwór–tkanka prawidłowa oceniono za pomocą testu U Manna–Whitneya (A), natomiast parowane dane nowotwór–tkanka prawidłowa oceniono za pomocą testu znaków Wilcoxona (B). Związki z przeżyciem całkowitym, przeżyciem specyficznym dla choroby i czasem wolnym od progresji badano za pomocą jednowymiarowej regresji proporcjonalnych hazardów Coxa (C–E). *P < 0.05, **P < 0.01, ***P < 0.001 oraz ****P < 0.0001; ns, brak istotności statystycznej. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Korelacja między ekspresją LINC01871 a naciekiem komórek odpornościowych
Następnie scharakteryzowano rozkład komórkowy LINC01871, wykorzystując dane z sekwencjonowania RNA pojedynczych komórek z próbek raka piersi (GSE161529). Po kontroli jakości, korekcji efektów seryjnych, klasteryzacji i adnotacji typów komórek, zidentyfikowane populacje obejmowały komórki nabłonkowe, limfocyty T CD8⁺, limfocyty T, makrofagi, fibroblasty, komórki natural killer (NK) oraz limfocyty B (Rysunek 6A). Wśród tych populacji ekspresja LINC01871 była najbardziej wyraźna w limfocytach T i komórkach NK (Rysunek 6B,C). W związku z tym dalej badano związek między LINC01871 a mikrośrodowiskiem odpornościowym, stosując szacunki nacieku oparte na transkryptomie. Analiza CIBERSORT wykazała, że grupa z wysoką ekspresją LINC01871 charakteryzowała się wyższymi szacowanymi proporcjami kilku populacji odpornościowych, w tym limfocytów T CD8⁺, komórek NK i makrofagów M1, przy jednoczesnych niższych szacowanych proporcjach regulatorowych limfocytów T (Tregs) i makrofagów M2 (Rysunek 6D). Podobnie, wyniki immunologiczne uzyskane za pomocą ESTIMATE były wyższe w próbkach z wysoką ekspresją LINC01871 (Rysunek 6E). Analiza ssGSEA z wykorzystaniem wcześniej zgłoszonych genów markerowych komórek odpornościowych dostarczyła w szerokim zakresie spójnych wyników (Rysunek 6F). Rozszerzenie tej analizy na różne typy nowotworów wykazało istotne korelacje między ekspresją LINC01871 a szacowaną licznością wielu populacji komórek odpornościowych (Rysunek 6G).
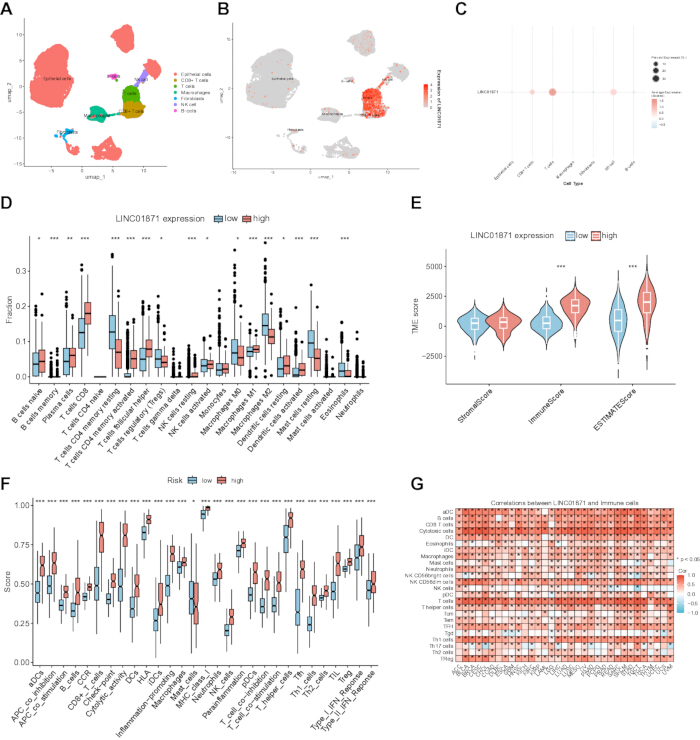
Rysunek 6Analizy ekspresji na poziomie pojedynczych komórek oraz infiltracji immunologicznej LINC01871.
(A) Reprezentacja Uniform Manifold Approximation and Projection (UMAP) adnotowanych populacji komórek zidentyfikowanych na podstawie danych z sekwencjonowania RNA pojedynczych komórek (scRNA-seq). (B) Wykres cech UMAP przedstawiający rozkład ekspresji LINC01871 w adnotowanych populacjach komórek. (C) Wykres kropkowy (dot plot) przedstawiający proporcję komórek wykazujących ekspresję LINC01871 oraz skalowaną średnią ekspresję dla każdego typu komórek. (D) Względne proporcje 22 populacji komórek odpornościowych w grupach z niską i wysoką ekspresją LINC01871, oszacowane za pomocą metody Cell-type Identification by Estimating Relative Subsets of RNA Transcripts (CIBERSORT). (E) Wyniki (scores) dla komponentu stromalnego, odpornościowego oraz mikrośrodowiska guza, uzyskane przy użyciu metody Estimation of STromal and Immune cells in MAlignant Tumour tissues using Expression data (ESTIMATE). (F) Wyniki związane z odpowiedzią odpornościową uzyskane za pomocą analizy wzbogacenia zestawów genów dla pojedynczych próbek (ssGSEA) w grupach z niską i wysoką ekspresją LINC01871. (G) Analiza panrakowa powiązań między ekspresją LINC01871 a infiltracją komórek odpornościowych oszacowana za pomocą ssGSEA. NK, komórki natural killer; TME, mikrośrodowisko guza. Skróty typów nowotworów oparto na nomenklaturze The Cancer Genome Atlas. Różnice między grupami z niską i wysoką ekspresją LINC01871 oceniano za pomocą testu U Manna-Whitneya (D–F). Powiązania panrakowe między ekspresją LINC01871 a infiltracją komórek odpornościowych oceniano za pomocą analizy korelacji Spearmana (G). *P < 0,05, **P < 0,01, ***P < 0,001 oraz ****P < 0,0001; ns, nieistotne statystycznie. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostępność danych:
Zbiory danych analizowane w niniejszym badaniu są ogólnodostępne w bazie The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) oraz Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/). Wykorzystane zbiory danych obejmują kohortę TCGA-BRCA oraz GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Supplementary Figures 1–3 zawierają dodatkowe analizy bioinformatyczne i prognostyczne. Supplementary Table 1 zawiera sekwencje starterów użytych do ilościowej reakcji polimerazy w łańcuchu z odwrotną transkrypcją (RT-qPCR), a Supplementary Table 2 zawiera listę przeciwciał pierwszorzędowych i drugorzędowych użytych do analizy western blot. Skrypty R wykorzystane do analiz bioinformatycznych i statystycznych zostały udostępnione jako Supplementary File 1.
Rycina uzupełniająca 1. Identyfikacja genów o różnym poziomie ekspresji oraz modułów ważonej sieci koekspresji genów powiązanych z przewidywaną wrażliwością na inhibitory CDK4/6.
(A,B) Wykresy wulkaniczne (volcano plots) przedstawiające geny o różnym poziomie ekspresji pomiędzy grupami z przewidywaną opornością a grupami z przewidywaną wrażliwością na rybocyklib (A) i palbocyklib (B). (C,D) Dendrogramy klastrów wygenerowane przez WGCNA, przedstawiające klastrowanie genów i przypisanie do modułów dla rybocyklibu (C) oraz palbocyklibu (D). Geny o różnym poziomie ekspresji zdefiniowano jako te, których bezwzględna wartość log2 fold change wynosiła ≥0.5, a skorygowana wartość P była <0,05. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 2. Wartość prognostyczna i predykcyjna pięciu dodatkowych kandydujących lncRNA.
(A) Analizy przeżycia Kaplana–Meiera dla pięciu dodatkowych kandydujących lncRNA zidentyfikowanych za pomocą regresji LASSO. (B,C) Analizy krzywej charakterystyki operacyjnej odbiornika (ROC) wykazujące wydajność diagnostyczną tych pięciu lncRNA w przewidywaniu oporności na rybocyklib (B) oraz palbocyklib (C). Odpowiednie analizy dla LINC01871 przedstawiono na Ryciniach 1 i 3. Kliknij tutaj, aby pobrać ten plik.
Rysunek uzupełniający 3. Ocena prognostyczna LINC01871 w raku piersi.
(A) Przewidywane wartości połowicznego maksymalnego stężenia hamującego (IC50) dla rybocyklibu i palbocyklibu w grupach z wysoką i niską ekspresją LINC01871 w podgrupie receptorów hormonalnych dodatnich/receptorów ludzkiego naskórkowego czynnika wzrostu 2 ujemnych (HR-dodatnich/HER2-ujemnych). (B) Analizy korelacji Spearmana między ekspresją LINC01871 a przewidywanymi wartościami IC50 dla rybocyklibu i palbocyklibu w podgrupie HR-dodatnich/HER2-ujemnych. (C) Analiza przeżycia Kaplan–Meier dla czasu wolnego od progresji (PFI) w zależności od ekspresji LINC01871. (D) Analiza przeżycia Kaplan–Meier dla pacjentów, którzy otrzymali radioterapię, z rozwarstwieniem według ekspresji LINC01871. (E) Nomogram integrujący ekspresję LINC01871 i cechy kliniczno-patologiczne w celu przewidywania przeżycia całkowitego w całej kohorcie TCGA-BRCA. (F) Krzywe kalibracyjne oceniające zgodność między przewidywanym a obserwowanym prawdopodobieństwem przeżycia dla nomogramu w 1., 3. i 5. roku. Porównania w panelu A analizowano za pomocą testu U Manna–Whitneya, a korelacje w panelu B oceniano za pomocą analizy korelacji Spearmana. IC50, połowiczne maksymalne stężenie hamujące; PFI, czas wolny od progresji; HR, receptor hormonalny; HER2, receptor ludzkiego naskórkowego czynnika wzrostu 2. *P < 0.05, **P < 0.01, ***P < 0.001 oraz ****P < 0.0001; ns, brak istotności statystycznej. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1. Sekwencje starterów użytych do ilościowej reakcji polimerazy łańcuchowej z odwrotną transkrypcją (RT-qPCR).
Sekwencje starterów forward i reverse (5′→3′) wykorzystane w analizie RT-qPCR dla LINC01871 oraz endogennego genu referencyjnego GAPDH. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2. Przeciwciała pierwotne i wtórne użyte do analizy western blot.
Przeciwciała pierwotne i wtórne użyte do analizy western blot, w tym białko docelowe lub swoistość przeciwciała, dostawca, numer katalogowy, gatunek gospodarza, rozcieńczenie robocze oraz identyfikator zasobów badawczych (RRID). Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 1. Skrypty R użyte do analiz bioinformatycznych i statystycznych.
Ten plik uzupełniający zawiera skrypty R wykorzystane do przeprowadzenia analiz bioinformatycznych i przygotowania rycin przedstawionych w niniejszym badaniu, w tym analizy transkryptomicznej, analizy różnicowej ekspresji, analizy sieci współekspresji genów z wagami (WGCNA), regresji LASSO (least absolute shrinkage and selection operator), analizy przeżywalności, analizy krzywej ROC (receiver operating characteristic), analizy wzbogacenia funkcjonalnego, analizy infiltracji immunologicznej, analizy sekwencjonowania RNA pojedynczych komórek oraz generowania rycin. Poszczególne skrypty odpowiadają rycinom głównym i uzupełniającym przedstawionym w manuskrypcie. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Rosnąca wiedza na temat biologii nowotworów doprowadziła do zidentyfikowania nowych celów terapeutycznych i ustanowienia terapii celowanych jako istotnego elementu leczenia raka17. Jednak rozwój oporności na leczenie nadal ogranicza ich długoterminową skuteczność. W niniejszym badaniu integracja analiz multiomicznych z podejściami uczenia maszynowego pozwoliła zidentyfikować LINC01871 jako kandydata powiązanego z przewidywaną wrażliwością na rybocyklib i palbocyklib. Analizy eksperymentalne wykazały ponadto, że nadekspresja LINC01871 zwiększyła wrażliwość na oba środki in vitro oraz zahamowała proliferację komórek raka piersi w modelach komórkowych i ksenoprzeszczepach. Efekty te towarzyszyło zmniejszenie aktywności szlaku NF-κB, co sugeruje potencjalną relację między LINC01871 a tym szlakiem sygnałowym. Obserwacje te mogą mieć znaczenie w kontekście rosnącego wykorzystania biomarkerów w celu podejmowania decyzji terapeutycznych podczas leczenia inhibitorami CDK4/6. Jednak dowody wspierające LINC01871 różnią się znacząco od tych dostępnych dla ustalonych podejść opartych na biomarkerach. Na przykład monitorowanie mutacji ESR1 w krążącym DNA nowotworowym zostało poddane ocenie prospektywnej jako strategia dostosowania leczenia hormonalnego. LINC01871 pozostaje natomiast biomarkerem kandydackim i nie powinien być jeszcze uznawany za odpowiedni do podejmowania decyzji klinicznych. Rozróżnienie to jest szczególnie istotne, ponieważ opcje leczenia po progresji w terapii inhibitorami CDK4/6 w przerzutowym raku piersi HR-dodatnim/HER2-ujemnym obejmują obecnie doustne selektywne degradery receptorów estrogenowych, inhibitory szlaku PI3K/AKT oraz koniugaty przeciwciało-lek18,19. W tym ewoluującym krajobrazie terapeutycznym biomarkery zdolne do rozróżniania różnic w wrażliwości na inhibitory CDK4/6 mogłyby potencjalnie pomóc w stratyfikacji leczenia. Chociaż nasze wyniki wspierają powiązanie między LINC01871 a wrażliwością na rybocyklib i palbocyklib, obecne dowody wynikają z obliczeniowych szacunków wrażliwości na leki wraz z eksperymentami in vitro. W związku z tym konieczne będzie przeprowadzenie badań na kohortach prospektywnych z udokumentowaną ekspozycją na inhibitory CDK4/6 i wynikami klinicznymi, aby określić, czy LINC01871 posiada wartość prognostyczną u pacjentów.
Korzyść terapeutyczna inhibitorów CDK4/6 w raku piersi z dodatnim receptorem estrogenowym i/lub progesteronowym została wykazana w wielu badaniach klinicznych4,5,6. Ich potencjalna użyteczność w raku piersi potrójnie ujemnym również stała się przedmiotem badań20,21. Na przykład Yang i wsp. stwierdzili, że jednoczesne celowanie w CDK4/6 oraz CDK7 hamowało proliferację komórek raka piersi potrójnie ujemnego22. Inne badania zidentyfikowały zmiany molekularne, które mogą modyfikować odpowiedź na inhibicję CDK4/6. Wykazano, że inhibicja GPX4 zwiększa wrażliwość na palbocyklib zarówno w raku piersi z dodatnim receptorem estrogenowym, jak i w raku piersi potrójnie ujemnym23, podczas gdy C9orf142 powiązano z opornością na inhibitory CDK4/6 w raku piersi potrójnie ujemnym20. I odwrotnie, zgłoszono, że inhibicja ACAA1 zwiększa wrażliwość komórek raka piersi na inhibitory CDK4/624. Większość istniejących prac nad molekularnymi determinantami odpowiedzi na inhibitory CDK4/6 koncentrowała się na genach kodujących białka, przez co wkład lncRNA pozostał słabiej scharakteryzowany. Nasze wyniki rozszerzają ten obszar, identyfikując LINC01871 jako potencjalne niekodujące RNA związane z odpowiedzią na inhibitory CDK4/6. Testy cytotoksyczności i tworzenia kolonii, wraz z oceną cytometryczną i analizą białek związanych z cyklem komórkowym, konsekwentnie wiązały nadekspresję LINC01871 z większą wrażliwością na rybocyklib i palbocyklib. Oddzielne testy proliferacji oraz model ksenoprzeszczepu dodatkowo potwierdziły hamujący wpływ nadekspresji LINC01871 na wzrost raka piersi.
Aby zbadać mechanizmy, które mogą leżeć u podstaw tych obserwacji, przeanalizowano profile funkcjonalne genów różnicowo wyrażanych pomiędzy grupami o wysokim i niskim poziomie LINC01871 oraz genów współwyrażanych z LINC01871. Analizy GO i KEGG powiązały oba zestawy genów z procesami związanymi z odpornością oraz sygnalizacją NF-κB. Wynik ten jest istotny dla regulacji cyklu komórkowego, ponieważ wcześniej zgłaszano, że sygnalizacja NF-κB zwiększa ekspresję cykliny D, ułatwiając tym samym progresję cyklu komórkowego25,26. Zhou i wsp. wykazali ponadto, że NF-κB może oddziaływać na promotor CDK6 i stymulować transkrypcję CDK627. Opisano również wzajemne oddziaływania (crosstalk) między NF-κB a szlakiem PI3K/AKT/mTOR28, a ten drugi szlak jest zaangażowany w oporność na inhibitory CDK4/611. Razem obserwacje te stanowią uzasadnienie dla zbadania aktywności NF-κB w kontekście LINC01871. Zgodnie z wynikami wzbogacenia, komórki z nadekspresją LINC01871 wykazywały niższy poziom fosforylacji P65. Niemniej jednak dane te wskazują na istnienie powiązania, a nie bezpośredniego mechanizmu regulacyjnego, a sposób, w jaki LINC01871 wpływa na sygnalizację NF-κB, pozostaje do ustalenia.
Mikrośrodowisko immunologiczne stanowi kolejny potencjalny czynnik wpływający na odpowiedź na inhibitory CDK4/6. Doniesiono na przykład, że limfocyty γδ T mogą ułatwiać rozwój oporności poprzez efekty pośredniczone przez makrofagi CX3CR1⁺29. Luo i wsp. zaobserwowali większą infiltrację limfocytów T CD8⁺ oraz komórek NK w guzach pacjentów, u których oporność na inhibitory CDK4/6 rozwinęła się w późniejszych punktach czasowych30. Nasza analiza pojedynczych komórek wykazała, że ekspresja LINC01871 była bardziej zaznaczona w limfocytach T i komórkach NK niż w komórkach nabłonkowych. Uzupełniające analizy oparte na transkryptomie powiązały wyższą ekspresję LINC01871 z większą szacowaną infiltracją limfocytów T CD8⁺, makrofagów M1 oraz komórek NK, a także z niższą szacowaną infiltracją makrofagów M2 i limfocytów Tregs. Limfocyty T CD8⁺, makrofagi M1 i komórki NK są kojarzone z przeciwnowotworową aktywnością immunologiczną, podczas gdy makrofagi M2 wiąże się z funkcjami promującymi wzrost guza31,32,33,34. Podsumowując, nasze wyniki sugerują, że wyższa ekspresja LINC01871 może być związana z bardziej aktywnym immunologicznie mikrośrodowiskiem guza. Interpretacja ta pozostaje jednak wstępna, ponieważ szacunki dotyczące komórek odpornościowych zostały wywnioskowane z profili transkryptomicznych, a nie zmierzone bezpośrednio, a do ustalenia, czy LINC01871 odgrywa rolę w kształtowaniu mikrośrodowiska immunologicznego, niezbędne będą badania funkcjonalne.
Przy interpretacji tych wyników należy wziąć pod uwagę kilka ograniczeń. Po pierwsze, LINC01871 został zidentyfikowany za pomocą zintegrowanej analizy multiomicznej, w której odpowiedź na lek była wnioskowana obliczeniowo, a nie uzyskana od pacjentów przyjmujących inhibitory CDK4/6. Chociaż bezpośrednie eksperymenty in vitro wykazały większą wrażliwość na palbocyklib i rybocyklib po nadekspresji LINC01871, wyniki te nie potwierdzają jego wartości prognostycznej u pacjentów. W związku z tym do oceny LINC01871 jako biomarkera prognostycznego będą wymagane niezależne kohorty z udokumentowaną ekspozycją na inhibitory CDK4/6 oraz danymi dotyczącymi odpowiedzi klinicznej. Po drugie, analiza odkrywcza była początkowo przeprowadzana na całej kohorcie TCGA-BRCA, która obejmuje klinicznie heterogeniczne podtypy raka piersi. Związek między LINC01871 a przewidywaną wrażliwością na lek zaobserwowano również w podgrupie HR-dodatniej/HER2-ujemnej; jednak konieczne pozostaje potwierdzenie tych wyników w populacjach HR-dodatnich/HER2-ujemnych leczonych klinicznie. Po trzecie, analizy odpowiedzi na leki ograniczono do palbocyklibu i rybocyklibu, ponieważ odpowiadające im dane dotyczące odpowiedzi na abemacyklib nie były dostępne w zbiorze danych GDSC2 wykorzystanym w tej badaniu. W związku z tym nie wiadomo, czy zaobserwowany związek obejmuje również abemacyklib. Po czwarte, pomimo efektów supresji nowotworu zaobserwowanych w eksperymentach na liniach komórkowych i ksenograftach, nie ustalono związku molekularnego między LINC01871 a sygnalizacją NF-κB. Nadekspresji LINC01871 towarzyszyło zmniejszone fosforylowanie P65, ale mechanizm odpowiedzialny za ten związek wymaga dalszych badań. Podobnie, obserwacje związane z odpornością immunologiczną wynikały głównie z obliczeniowych analiz opartych na transkryptomie i powinny być interpretowane jako korelacje, a nie dowody na to, że LINC01871 bezpośrednio reguluje immunologiczne mikrośrodowisko guza. Wreszcie, oporność na inhibitory CDK4/6 obejmuje wiele procesów biologicznych i jest mało prawdopodobne, aby LINC01871 wyjaśniał pełną złożoność odpowiedzi na leczenie. Dalsze badania powinny zatem obejmować kohorty specyficzne dla danego podtypu, ocenę abemacyklibu, eksperymentalną walidację powiązań immunologicznych, badania mechanistyczne relacji między LINC01871 a sygnalizacją NF-κB oraz prospektywną ocenę kliniczną w celu ustalenia, czy LINC01871 ma użyteczność jako biomarker prognostyczny.
Oświadczenia
Konflikt interesów:
Autorzy declare, że nie mają żadnych konkurencyjnych interesów.
Podziękowania
Niniejsze badanie było wspierane przez Natural Science Foundation of Fujian Province (Grant No. 2022J011056). Autorzy dziękują The Cancer Genome Atlas (TCGA) oraz Gene Expression Omnibus (GEO) za udostępnienie publicznych zbiorów danych wykorzystanych w tej pracy.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Igły do strzykawek 25 G | Beyotime | FS802-30pcs | Jednorazowe igły do strzykawek używane do rozwieraka do pyska oraz opcjonalnego wstępnego rozluźniania więzadła ozębnego |
| 4% roztwór paraformaldehydu | Solarbio | P1110 | 4% roztwór paraformaldehydu używany do utrwalania próbek |
| 75% etanol | Ouse Medical Devices Store | N/A | 75% etanol klasy medycznej używany do dezynfekcji powierzchni |
| Myszy C57BL/6 | Charles River | 213 | Samce myszy C57BL/6 w wieku 8 tygodni, o masie 22–29 g |
| Carprofen | Solarbio | C5350 | Analgetyk pooperacyjny podawany podskórnie w dawce 5 mg/kg |
| Kulki watowe | Ouning Medical Devices | N/A | Sterylne kulki watowe używane do oczyszczania jamy ustnej i hemostazy |
| CTAn v1.18.4.0+ | SkyScan | N/A | Oprogramowanie używane do analizy obrazów μCT |
| DataViewer v1.5.6.2 | SkyScan | N/A | Oprogramowanie używane do przeglądania i eksportowania zrekonstruowanych obrazów μCT |
| Nakładki na palce | LeSu Office | MEKU-1/2/3B | Nakładki na palce używane do ochrony kciuka podczas ekstrakcji |
| Płyta piankowa | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Płyta piankowa używana jako platforma operacyjna i stabilizacyjna |
| Dieta żelowa | ReadyDietech | J10001 | Dieta pooperacyjna dostarczana na dnie klatki przez 3 dni, w przypadku zastosowania |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Oprogramowanie używane do analizy statystycznej i generowania wykresów |
| Czołówka | Bazhou Pengen Protective Equipment Factory | N/A | Czołówka używana do oświetlenia pola operacyjnego |
| Mata grzewcza | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Mata grzewcza podgrzana wstępnie do około 38 °C do rekonwalescencji pooperacyjnej |
| Phantom hydroksyapatytowy | QRM | QRM-70127 | Phantom kalibracyjny używany do konwersji wartości atenuacji CT na gęstość mineralną kości |
| Urządzenie powiększające | Olympus Corporation | SZX10 | Urządzenie używane do sprawdzania końcówek pęsety ząbkowanej i zębodołu po ekstrakcji pod powiększeniem |
| Maseczka | Senlun Medical Devices Specialty Store | N/A | Maseczka chirurgiczna |
| Skaner mikrotomografii komputerowej | Bruker SkyScan | SkyScan 1276 | Skaner μCT używany przy 80 kV, 500 μA i rozdzielczości woksela 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Oprogramowanie używane do rekonstrukcji trójwymiarowej |
| Pentobarbital sodowy | Sigma-Aldrich | P3761 | Sól pentobarbitalu sodowego używana jako 1% roztwór anestetyka |
| Roztwór soli fizjologicznej buforowanej fosforanowo | Solarbio | P1010 | 0,01 M proszek soli fizjologicznej buforowanej fosforanowo, pH 7,2–7,4 |
| Antyseptyczny roztwór powidonu z jodem | Belkon Pharmacy Flagship Store | N/A | Roztwór powidonu z jodem używany do dezynfekcji brzucha |
| Gumki recepturki | Foshan Puli Rubber Products Factory | N/A | Gumki recepturki używane do montażu rozwieraka do pyska |
| Roztwór soli fizjologicznej | Thermo Fisher | BR0053G | Tabletki soli fizjologicznej używane do przygotowania roztworu do oczyszczania jamy ustnej |
| Standardowa dieta w formie granulatu | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Standardowy granulat używany do rutynowego utrzymania, zmiękczany do karmienia pooperacyjnego |
| Sterylizator parowy | Institutional facility | N/A | Urządzenie używane do sterylizacji pęsety ząbkowanej i roztworu soli fizjologicznej |
| Sterylne patyczki watowe | Kangbailai Medical Devices Store | N/A | Jednorazowe sterylne patyczki watowe |
| Sterylne rękawiczki | Senlun Medical Devices Specialty Store | N/A | Sterylne rękawiczki lateksowe |
| Sterylna tkanina niezwiązana | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Sterylna tkanina niezwiązana używana do przykrycia powierzchni operacyjnej i maty grzewczej |
| Sterylna czapka chirurgiczna | Senlun Medical Devices Specialty Store | N/A | Sterylna czapka chirurgiczna |
| Ubiór chirurgiczny | Senlun Medical Devices Specialty Store | N/A | Czysty ubiór chirurgiczny noszony podczas procedury |
| Taśma | Thermo Fisher | 15947 | Taśma klejąca używana do unieruchomienia kończyn myszy |
| Ząbkowana pęseta okulistyczna | Beyotime | FS229 | Ząbkowane kleszczyki okulistyczne używane jako kleszczyki stomatologiczne |
| Weterynaryjna maść okulistyczna | Dechra Veterinary Products | 143-16 | Maść okulistyczna nakładana po znieczuleniu w celu zapobiegania wysychaniu rogówki |
Bibliografia
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.