Przedstawiamy prosty protokół rekonstrukcji funkcjonalnych superkompleksów oddechowych mitochondriów w dobrze zdefiniowanych proteoliposomach w celu skorelowanej charakterystyki strukturalnej i funkcjonalnej.
Artykuł metodologiczny
Funkcjonalna rekonstytucja superkompleksów oddechowych mitochondriów
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Mitochondria stanowią centralne ośrodki metabolizmu bioenergetycznego i są głównym źródłem ATP. W wewnętrznej błonie mitochondrialnej znajduje się system fosforylacji oksydacyjnej, w skład którego wchodzą kompleksy łańcucha transportu elektronów (CI, CII, CIII2oraz CIV) oraz syntazę ATP (CV). U ssaków kompleksy CI, CIII2, oraz CIV tworzą struktury wyższego rzędu zwane superkompleksami (SCs), takimi jak SC I+III2+IV, SC I+III2oraz SC III2+IV. Choć czynniki fizjologiczne sprzyjające tworzeniu się superkompleksów (SC) pozostają niejasne, zasugerowano, że ich formowanie może zwiększać szybkość przeniesienia elektronów między kompleksami, redukować produkcję reaktywnych form tlenu lub zapobiegać niespecyficznej agregacji białek w gęsto upakowanej wewnętrznej błonie mitochondrialnej. Badania strukturalne i funkcjonalne oddechowych SC w dużej mierze opierały się na kompleksach ekstrahowanych detergentami. Choć badania te pogłębiły naszą wiedzę na temat łańcucha transportu elektronów, brak szczelnej dwuwarstwy błonowej ogranicza możliwość badania funkcjonalnych korzyści wynikających z montażu superkompleksów. Jednakże ostatnie osiągnięcia wykazały, że białka błonowe można charakteryzować strukturalnie w zrekonstytuowanych środowiskach błonowych naśladujących warunki natywne, co zapewnia bardziej fizjologiczny kontekst dla tych analiz. W niniejszej pracy przedstawiamy prosty, szybki i powtarzalny protokół rekonstytucji oddechowych SC w liposomach. Metoda ta pozwala na badanie wpływu zmiennego składu lipidowego, stężenia białek oraz potencjału błonowego na funkcję oddechowych SC, stanowiąc cenne narzędzie dla przyszłych badań mechanistycznych.
Wprowadzenie
Mitochondria odgrywają centralną rolę w oddychaniu komórek eukariotycznych. Wewnętrzna błona mitochondrialna (IMM) zawiera system fosforylacji oksydacyjnej, składający się z kompleksów łańcucha transportu elektronów (CI–CIV) oraz syntazy ATP (CV)1. CI i CII przenoszą elektrony z zredukowanych substratów do ubichinonu (CoQ), generując ubichinol (CoQH2), który przekazuje elektrony przez CIII2 i za pośrednictwem cytochromu c do CIV, gdzie tlen jest redukowany do wody. Pompowanie protonów przez CI, CIII2 i CIV tworzy siłę protonomotoryczną (PMF), która jest wykorzystywana przez CV do syntezy ATP z ADP i fosforanu nieorganicznego (P)1.
Oprócz niezależnego funkcjonowania, CI, CIII2 oraz CIV mogą łączyć się w struktury superkompleksów (SC) wyższego rzędu o określonej stechiometrii, takich jak SC I+III2+IV (znany również jako respirasom), SC I+III2 oraz SC III2+IV2,3,4,5. Funkcjonalne zalety tych kompleksów pozostają niejasne6. Hipotezy dotyczące ich funkcji obejmują role w procesach składania i przesyłania substratów, aż po uznanie ich za produkt uboczny wysokiego zagęszczenia białek w wewnętrznej błonie mitochondrialnej (IMM)3,7,8,9,10,11,12,13,14,15. Niedawne badania sugerują, że właściwości błony, w tym naprężenie błony wywołane niedopasowaniem hydrofobowym, oddziaływania białko-białko oraz oddziaływania białko-lipid, przyczyniają się do tworzenia i stabilności SC16.
Badania strukturalne i funkcjonalne białek błonowych opierały się tradycyjnie na kompleksach solubilizowanych detergentami, co prowadzi do zaburzenia natywnych środowisk błonowych i ogranicza możliwość badania procesów zależnych od potencjału błonowego oraz gradientów jonowych. W przeciwieństwie do tego, ostatnie postępy wykazują, że białka błonowe mogą być charakteryzowane strukturalnie w błonach zrekonstytuowanych17,18,19 lub natywnych20,21,22,23, co znacznie zwiększa nasze możliwości badania mechanizmów funkcjonalnych białek błonowych zależnych od potencjału błonowego i gradientów jonowych.
Niniejszy protokół opisuje prostą i powtarzalną metodę rekonstytucji mitochondrialnych superkompleksów (SC) łańcucha oddechowego do zdefiniowanych proteoliposomów. Otrzymany system stanowi potężną platformę do badania fundamentalnych kwestii związanych z formowaniem, stabilnością i funkcją superkompleksów oddechowych w kontrolowanym środowisku błonowym, zbliżonym do naturalnego. Poprzez wprowadzenie CoQ10 oraz cytochromu c podczas rekonstytucji wykazujemy, że superkompleksy rekonstytuowane w proteoliposomach wspierają zależne od NADH zużycie tlenu, co wskazuje na zachowanie sprawności funkcjonalnej kompleksów w obrębie dwuwarstwy lipidowej. Ponadto wykazujemy, że superkompleksy w proteoliposomach można łatwo wizualizować za pomocą kriomikroskopii elektronowej (cryo-EM), co umożliwia bezpośrednią korelację między organizacją strukturalną a aktywnością biochemiczną.
Chociaż metoda ta jest solidna i łatwo powtarzalna, pomyślna rekonstytucja zależy od starannej optymalizacji składu lipidów, stężenia detergentu, stosunku białka do lipidów oraz wydajnego uszczelniania błony w celu zachowania stabilności i aktywności superkompleksów.
Ogólnym celem tej metody jest umożliwienie zintegrowanej analizy strukturalnej i funkcjonalnej oddechowych kompleksów supernadcząsteczkowych (SC) w określonych warunkach membranowych. Podejście to eliminuje kluczowe ograniczenia systemów opartych na detergentach poprzez przywrócenie SC do szczelnej lipidowej dwuwarstwy, która pozwala na wytworzenie potencjału błonowego oraz fizjologicznie istotnych oddziaływań białko–lipid. Ponadto system ten pozwala na precyzyjną kontrolę składu lipidów, kofaktorów i zawartości białek, co czyni go odpowiednim do systematycznego badania wpływu właściwości błony na stabilność i aktywność SC. W porównaniu z preparatami solubilizowanymi detergentem lub podejściami in situ, metoda ta oferuje wyraźną zaletę w postaci połączenia testów funkcjonalnych, takich jak zużycie tlenu napędzane przez NADH, z analizą strukturalną opartą na krio-EM, co umożliwia korelacje struktura–funkcja, które są trudne do osiągnięcia przy użyciu innych systemów.
Protokół
Błonny mitochondrialny serca świńskiego wyizolowano z komercyjnie zakupionej tkanki serca pobranej od zwierząt ubitych w celu spożycia przez ludzi. Do realizacji niniejszego protokołu nie wykorzystano żywych zwierząt. Uznano, że wykorzystanie tego materiału nie wymaga zgody komisji etyki ds. zwierząt, ponieważ tkanka została pozyskana jako produkt uboczny od zwierząt ubitych w celu spożycia przez ludzi.
1. Oczyszczanie mitochondrialnego superkompleksu SC I+III2/SC I+III2+IV z wypłukanych błon mitochondriów serca świni
- Rozmrozić 40 mg (4 mL) przemytych błon mitochondrialnych w postaci alikwotów 10 mg/mL (błony przemyte przygotowuje się zgodnie z wcześniejszymi opisami24,25).
- Rozcieńczyć błony w 4 mL buforu MX (30 mM HEPES, pH 7,7, 150 mM octanu potasu, 10% glicerolu, 1 mM EDTA, 0,002% (w/v) fenylometylosulfonylofluorku, 0,1% (w/v) CHAPS (3-[(3-cholamidopropyl)dimetyloammonio]-1-propanosulfonianu, 1 mM żelazicyjanku potasu). Dodać 8 mL 2% (w/v) digitoniny w buforze MX (160 mg digitoniny w 8 mL; stosunek końcowy 4:1, (mg digitoniny: mg całkowitego białka błonowego). Objętość końcowa wynosi 16 mL.
- Uhomogenizować ręcznie w homogenizatorze Dounce'a (50 pociągnięć), uważając, aby nie wprowadzić pęcherzyków powietrza. Inkubować (mieszać w rotatorze) przez 1 h w temperaturze 4 °C.
- Odwirować homogenat przy 16 000 × g, 4 °C przez 30 min. Zebrać supernatant.
- Skoncentrować supernatant do 1 mL za pomocą wirnikowego koncentratora z filtrem o odcięciu 100 kDa przy 3000 × g, 4 °C. Koncentrować w cyklach 10-minutowych, dokładnie mieszając pomiędzy wirowaniem, aż do osiągnięcia pożądanej objętości (próbki mają tendencję do agregacji, jeśli nie zostaną resuspenderowane między cyklami wirowania, ze względu na zwiększone lokalne stężenie detergentu w pobliżu filtra).
- Rozdzielić skoncentrowaną próbkę na cztery alikwoty po 250 µL.
- Równoważyć kolumnę do chromatografii wykluczania rozmiarów (objętość kolumny: 24 mL) buforem do chromatografii wykluczania rozmiarów (bufor SEC; 30 mM HEPES pH 7,8, 150 mM octanu potasu, 1 mM EDTA, 0,005% detergentu glikokozydowego) przez 48 mL (2 objętości kolumny).
- Ustawić program chromatograficzny tak, aby zbierać frakcje po 1 mL, zaczynając od objętości elucji 6 mL i kontynuując do objętości elucji 24 mL. Nanieść alikwot 250 µL (z kroku 1.6) na 24 mL żywicy do chromatografii wykluczania rozmiarów. Użyć kolumny uprzednio równoważonej buforem do chromatografii wykluczania rozmiarów (z kroku 1.7). Zebrać frakcje z frakcjonatora przed rozpoczęciem kolejnego przebiegu.
- Powtórzyć kroki 1.7 i 1.8 dla pozostałych skoncentrowanych alikwotów z kroku 1.6.
- Nanieść 10 µL każdej frakcji z przebiegów SEC zmieszanych z 5 µL barwnika do nakładania próbek do nieodbarwiającej elektroforezy żelowej w poliakrylamidzie (BN-PAGE) na gradient akryloamidu 3%–12% i przeprowadzić test aktywności CI w żelu z wykorzystaniem NADH i chlorku nitro-tetrazolium niebieskiego26 w celu sprawdzenia aktywności CI we frakcjach.
UWAGA: Oddechowe superkompleksy (SC) eluują z 24 mL medium do filtracji żelowej z sieciowanej agarozy przy objętości elucji około 11,5 mL. - Połączyć frakcje wykazujące maksymalną aktywność CI o wysokiej masie cząsteczkowej w teście aktywności CI w żelu. Skoncentrować próbkę zgodnie z opisem w punkcie 1.5 powyżej.
UWAGA: Skoncentrowane SC w detergencie glikozydowym glyco-diosgeninie (GDN) można przechowywać z 30% (v/v) glicerolem przy końcowym stężeniu około 10 mg/mL w ciekłym N2. 40 mg przemytego kompleksu mitochondrialnego pozwoliło uzyskać 3,4 mg całkowitego białka na podstawie testu BCA.
2. Przygotowanie mieszaniny lipidów
UWAGA: Protokół zmodyfikowany na podstawie wcześniej opisanych procedur27,28. Chloroform jest toksyczny, lotny i podejrzewany o działanie rakotwórcze. Należy go używać wyłącznie w certyfikowanej dygestorii chemicznej, stosując odpowiednie środki ochrony osobistej (PPE). Pentan jest wysoce łatwopalny. Należy go przechowywać z dala od źródeł zapłonu. Należy go używać wyłącznie w certyfikowanej dygestorii chemicznej, stosując odpowiednie środki ochrony osobistej (PPE). Odpady z rozpuszczalników organicznych należy utylizować w zatwierdzonych pojemnikach na odpady z rozpuszczalników halogenowanych i niehalogenowanych, zgodnie z instytucjonalnymi zasadami BHP i ochrony środowiska (EH&S).
- Pracując w dygestorium, przygotuj osobno roztwory zapasowe o stężeniu 25 mg/mL dla POPC (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine), POPE (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphoethanolamine) oraz CL (kardiolipin: 1,3-bis(sn-3’-phosphatidyl)-sn-glycerol; z tkanki serca bydlęcego) w chloroformie.
- Przygotuj 10 mM CoQ10 w chloroformie. Aby uzyskać 25 mg całkowitej mieszaniny lipidów, dodaj do szklanej probówki o pojemności 13 mL 0,4 mL (10 mg) POPC, 0,4 mL (10 mg) POPE, 0,2 mL (5 mg) CL oraz 50 µL 10 mM CoQ10 (końcowe stężenie 500 nmol CoQ10 (20 nmol CoQ10/mg lipidu) z roztworów zapasowych. Końcowy stosunek wagowy POPC:POPE:CL wynosi 2:2:1.
- Osusz mieszaninę pod strumieniem gazu obojętnego ( argonu lub azotu), aby usunąć chloroform, jednocześnie delikatnie obracając probówką, aby utworzyć cienką warstwę mieszaniny lipidowej na ściankach naczynia. Osuszaj stałym strumieniem gazu obojętnego przez 10 min.
- Ponownie rozpuść osuszoną warstwę lipidów w 1 mL pentanu i powtórz krok 2.3, co ułatwi usunięcie pozostałości chloroformu.
- Inkubuj osuszoną probówkę z lipidami w eksykatore próżniowym w temperaturze pokojowej przez noc, aby całkowicie usunąć rozpuszczalniki.
- Dodaj 5 mL buforu do proteoliposomów (PLB; 10 mM MOPS pH 7.4, 150 mM KCl), aby rehydratować mieszaninę lipidową, szczelnie zamknij probówkę, aby uniknąć wycieku, i delikatnie mieszaj na wortexie, aż lipidy zostaną całkowicie rozpuszczone (osuszone lipidy nie będą już widoczne na ściankach probówki).
- Zdejmij zamknięcie, wypełnij probówkę gazem obojętnym (argonem lub azotem), ponownie zamknij i inkubuj w temperaturze pokojowej przez 1 h. Po 1 h inkubacji przygotuj alikwoty mieszaniny lipidowej po 300 µL i przechowuj w temperaturze −20 °C.
UWAGA: Mieszaninę POPC:POPE:kardiolipin (2:2:1) wybrano na podstawie optymalizacji empirycznej oraz faktu, że PE i kardiolipin są głównymi składnikami wewnętrznej błony mitochondrialnej; protokół można jednak łatwo dostosować do testowania alternatywnych składów lipidowych.
3. Rekonstytucja mitochondrialnych SC w liposomach
- Rozmrozić na lodzie aliquoty SC przechowywane w ciekłym N 2 (krok 1.12). Przeprowadzić wymianę buforu w celu usunięcia glicerolu z próbki poprzez resuspensję próbki w buforze SEC. Skoncentrować próbkę, używając filtrów odwirujących z odcięciem 100 kDa przy 3000 × g w temperaturze 4 °C. Pomiędzy cyklami wirowania (około co 5 min) kontynuować wymianę buforu poprzez resuspensję próbki w buforze SEC.
- Sprawdzić końcowe stężenie SC za pomocą testu BCA (zestawu do oznaczania białek kwasem bicinchonionowym).
- Rozmrozić aliquot 300 µL mieszaniny lipidowej przygotowanej w kroku 2.7 i przepuścić go przez ekstruder wyposażony w membranę poliwęglanową o porach 100 nm przez sześć cykli w temperaturze pokojowej (jeden cykl polega na przepchnięciu mieszaniny lipidowej z lewej strzykawki do prawej i z powrotem). Po zakończeniu cykli ekstruzji zebrać powstałe liposomy o rozmiarze 100 nm ze strzykawki przeciwnej do strony startowej. Alternatywnie liposomy można wytworzyć poprzez sonikację.
- Do 250 µL ekstrudowanej mieszaniny lipidowej w osobnej probówce dodać 9 µL 20% (w/v) detergentu (stężenie końcowe 0,6% w/v).
UWAGA: Można przetestować różne detergenty. W tych eksperymentach najlepiej sprawdził się cholan sodowy, anionowy detergent na bazie soli żółciowych. - Wymieszać przez odwracanie i inkubować w temperaturze 4 °C przez 30 min.
- Do mieszaniny dodać 120 µg (lub więcej) mitochondrialnych SC oraz 3 µL 10 mM cytochromu c (stężenie końcowe 100 µM). Uzupełnić objętość do 300 µL za pomocą PLB. Końcowy stosunek lipidów do białek wynosi około 10:1 (w:w). Jako dodatkową kontrolę, w sposób równoległy wytworzyć puste liposomy, dodając do mieszaniny lipidowo-detergentowej bufor SEC (30 mM HEPES, pH 7,8, 150 mM octanu potasu, 1 mM EDTA, 0,005% detergentu glikozydowego) zamiast mitochondrialnych SC i cytochromu c.
- Wymieszać przez odwracanie i inkubować w temperaturze 4 °C przez 30 min.
- Gotową kolumnę odsolenia do wirowania zawierającą żywicę G-25 przemyć buforem PLB cztery razy, wykorzystując przepływ grawitacyjny. Następnie przemyć kolumnę przez wirowanie przy 1 000 × g przez 2 min.
- Próbkę proteoliposomów nanieść na przemytą gotową kolumnę odsolenia z żywicą G-25 i wirować kolumnę przy 1 000 × g w temperaturze 4 °C przez 2 min, aby usunąć detergent. Zebrać eluat.
UWAGA: Liposomy przygotowane metodą ekstruzji wykazały bardziej jednorodny rozkład rozmiarów niż te wytworzone przez sonikację. Nie wirować gotowej kolumny odsolenia dłużej niż zaleca producent, aby uniknąć zanieczyszczenia próbki detergentem. Proteoliposomy przechowywano w temperaturze 4 °C i zazwyczaj wykorzystywano w ciągu 36 h, aby zminimalizować potencjalną utratę aktywności i zachować integralność superkompleksów.
4. Analiza flotacji lipidów29
- Przygotować roztwory sacharozy o stężeniu 27% i 7% (m/v) w PLB. Przygotować gradient stopniowy, warstwując 1,5 mL 27% sacharozy oraz 0,9 mL 7% sacharozy w probówce do wirowania o objętości 3,5 mL.
- Ostrożnie nanieść 300 µL proteoliposomów (z kroku 3.9) zawierających SC na gradient sacharozy. Wirować gradienty przy 100 000 × g w rotorze z kątem stałym przez 2 h w temperaturze 4 °C.
- Ostrożnie zebrać (starając się uniknąć zmieszania) dziewięć frakcji po 300 µL (lub 10 frakcji po 270 µL), idąc od góry do dołu. W przypadku obecności osadu, resuspendować go w ostatniej frakcji i zebrać jako frakcję 9 lub 10. Wszelkie nieurekonstytuowane SC powinny gromadzić się w frakcji 9 lub 10.
UWAGA: Analiza flotacji pomaga oddzielić urekonstytuowane proteoliposomy od pustych liposomów i nieurekonstytuowanych kompleksów białkowych. Jest ona stosowana w celu optymalizacji rekonstytucji.
5. Spektroskopowy test aktywności kompleksu I z użyciem żelicy oraz test aktywności kompleksu I w żelu
- Przygotować niezbędną ilość buforu reakcyjnego do ferrycyjanku (FRB; 20 mM Tris HCl, pH 7.4, 50 mM NaCl, 0.1% w/v 3-[(3-cholamidopropyl)dimethylammonio]-1-propanesulfonate (CHAPS), 1 mM ferrycyjanek potasu).
- Odmierzyć 990 µL buforu reakcyjnego do kuwety o pojemności 1 mL. Do kuwety dodać 5 µL próbki (z każdej frakcji gradientu), a następnie dodać do reakcji 5 µL 20 mM NADH (stężenie końcowe 100 µM). Uszczelnić kuwetę przezroczystą folią i wymieszać poprzez odwracanie.
- Monitorować szybkość spadku absorbancji przy 340 nm w temperaturze 25 °C w spektrometrze. Spadek absorbancji przy 340 nm wskazuje na utlenianie NADH. Powtórzyć procedurę dla wszystkich frakcji w trzech powtórzeniach. W celu zarejestrowania próby ślepej użyć 5 µL PLB zamiast próbki.
- Obliczyć szybkość utleniania NADH po odjęciu wartości próby ślepej i wykreślić całkowitą aktywność każdej z frakcji.
UWAGA: Alternatywnie eksperyment można przeprowadzić na płytce 96-dołkowej. - Połączyć frakcje o maksymalnej aktywności całkowitej (unikać frakcji na dnie probówki wykazujących aktywność, ponieważ odpowiadają one białkom niepoddanym rekonstytucji). Dopełnić połączone frakcje do całkowitej objętości 20 mL za pomocą PLB w celu rozcieńczenia sacharozy.
- Wirować próbki przy 150,000 × g, 4 °C przez 1 h w rotorze stałokątnym. Odrzucić nadsącz i resuspendować osad w 200 µL PLB.
- Wymieszać 25 µL resuspendowanego osadu z poprzedniego kroku z 25 µL 2% w/v digitoniny w PLB i inkubować (mieszając w obrotowcu) w 4 °C przez 1 h.
- Odwirować nieekstrahowane białka przy 16,000 × g przez 20 min. Zebrać nadsącz.
- Do 30 µL nadsączu dodać 10 µL barwnika do nakładania na BN-PAGE i nanieść na gradientowy żel BN-PAGE 3%–12%. Przygotować dwa żele w celu przeprowadzenia analiz aktywności w żelu dla CI i CIV26.
- Prowadzić elektroforezę przy 150 V przez 30 min w ciemnym buforze BN-PAGE (25 mM Tris, 0.192 g glicyny, 200 mg Coomassie blue). Zmienić ciemnoniebieski bufor na jasnoniebieski bufor (25 mM Tris, pH 8.3, 0.192 g glicyny, 20 mg Coomassie blue) i prowadzić elektroforezę przez kolejne 2 h przy 200 V.
- Po zakończeniu elektroforezy przenieść żele do odpowiedniego pojemnika i przeprowadzić analizy aktywności w żelu dla CI i CIV26.
UWAGA: W badaniach strukturalnych i funkcjonalnych kompleksów rekonstytuowanych w liposomach należy użyć pozostałych resuspendowanych proteoliposomów z kroku 5.6. Po pełnej optymalizacji rekonstytucji można pominąć kroki 4 i 5 i użyć rekonstytuowanych proteoliposomów bezpośrednio z kroku 3.
6. Analiza wygaszania fluorescencji ACMA w celu pomiaru integralności błony zrekonstytuowanych proteoliposomów29
- Przygotować odpowiednią ilość buforu reakcyjnego do ACMA (9-amino-6-chloro-2-metoksyakrydyny) (10 mM MOPS pH 7.4, 15 mM KCl, 4 µM ACMA, 0.5 mg/mL albuminy surowicy bydlęcej (BSA), 2 mM 2-merkaptoetanolu).
- Do kuwety o pojemności 1 mL odmierzyć 930 µL buforu reakcyjnego. Do kuwety dodać 50 µL zrekonstytuowanych proteoliposomów, zamknąć kuwetę i wymieszać poprzez odwrócenie. Inkubować w ciemności przez 8 min.
- Ustawić parametry spektrometru na: długość fali wzbudzenia 410 nm, długość fali emisji 490 nm.
- Po inkubacji ponownie wymieszać zawartość kuwety poprzez odwrócenie i mierzyć fluorescencję spektrometrem w temperaturze pokojowej przez 8 min.
- Do kuwety dodać 4 µL walinomycyny o stężeniu 20 µM (stężenie końcowe 80 nM), wymieszać poprzez odwrócenie i mierzyć przez 8 min.
- Do kuwety dodać 6 µL CCCP (karbonylo-cyjanid m-chlorofenylhydrazonu) o stężeniu 1 mM (stężenie końcowe 6 µM), wymieszać poprzez odwrócenie i mierzyć przez 8 min.
- Aby przygotować kontrolę dla pustych pęcherzyków, powtórzyć kroki 6.2–6.6, zastępując zrekonstytuowane proteoliposomy „pustymi liposomami”. Puste liposomy generuje się w ten sam sposób co zrekonstytuowane proteoliposomy, jednak podczas rekonstytucji (krok 3.6) dodanie SC zastępuje się buforem SEC.
- Powtórzyć pomiar w trzech powtórzeniach zarówno dla zrekonstytuowanych proteoliposomów, jak i pustych liposomów, a następnie wykreślić ich względną fluorescencję w czasie.
UWAGA: Dane z zrekonstytuowanych proteoliposomów lub pustych liposomów są skalowane według wzoru (Fi − Fmin)/(Fmax−Fmin), gdzie Fmax to początkowa wartość bazowa fluorescencji danej próbki, a Fmin to najniższa wartość bazowa danej próbki po dodaniu CCCP.
OSTRZEŻENIE: CCCP jest toksycznym odsprzęgaczem mitochondrialnym i należy go używać w rękawicach, pracując pod wyciągiem chemicznym.
7. Pomiary respirometryczne zużycia tlenu w celu oceny funkcji zrekonstytuowanych SC30.
UWAGA: Szybkość zużycia tlenu jest mierzona przy użyciu systemu z elektrodą tlenową typu Clarka. Analizy funkcjonalne zrekonstytuowanych SCs są przeprowadzane bezpośrednio na eluacie z kolumny odsolonej (krok 3.9).
- Przygotować aparat z systemem elektrody tlenowej zgodnie z instrukcjami producenta i uruchomić oprogramowanie sterujące urządzeniem. Do komory pomiarowej dodać 2 mL wody ultrapurej.
- Ustalić prędkość mieszania tak, aby wykres stężenia tlenu pozostał niezmienny przy zwiększaniu prędkości mieszania (rozpocząć od 10, zwiększać w krokach co 10). Usunąć wodę MQ i dodać wodę natlenioną (wodę MQ w butelce, energicznie wstrząśniętą).
- Kliknąć Calibrate > Liquid-phase calibration > Air-saturated water i odczekać do ustabilizowania się kalibracji (szybkość 0 nmol na min). Za pomocą małej szpatułki dodać do naczynia reakcyjnego kilka (4–6) kryształków ditionianu sodu, aby ustanowić zerową zawartość tlenu w komorze.
- Odczekać do momentu osiągnięcia plateau sygnału przed kontynuacją. Zapisać kalibrację i oczyścić komorę reakcyjną za pomocą 5 × 1 mL 70% etanolu, 5 x 1 mL 0,1 mM EDTA, 5 × 1 mL wody MQ oraz 5 × 1 mL buforu reakcyjnego do oksygrafu (ORB; 150 mM KCl, 50 mM MOPS pH 7.4, 5 mM MgCl2, 5 mM KH2PO4, 0,02 mM EGTA, 0,5 mg/mL BSA).
- Dodać 2 mL ORB, kliknąć przycisk „start read” w oprogramowaniu i odczekać do ustabilizowania się wykresu. Podczas dodawania proteoliposomów (próbki) do komory reakcyjnej, oznaczyć wykres w oprogramowaniu, aby wskazać dodanie próbki.
UWAGA: Stężenie białka w próbce proteoliposomów szacuje się na podstawie całkowitej ilości białka dodanego do liposomów. Najlepsze wyniki uzyskano przy stosunku białka do lipidów 1:12 i końcowym stężeniu białka 50 µg/mL w komorze systemu elektrody tlenowej (2 mL). Dokładna wydajność proteoliposomów nie była mierzona. - Po ustabilizowaniu się odczytu z systemu elektrody tlenowej, dodać NADH do komory reakcyjnej i jednocześnie oznaczyć wykres w oprogramowaniu, aby wskazać dodanie NADH. Kontynuować pomiar przez 5 min.
- Dodać CCCP, oznaczyć dodatek w oprogramowaniu i kontynuować pomiar przez 5 min.
- Dodać inhibitor (np. inhibitor CI (piericydyna A) lub inhibitor CIII2 (myksotiazol) lub inhibitor CIV (NaN3)) i oznaczyć wykres w oprogramowaniu, mierzyć przez 2 min, a następnie zatrzymać pomiar.
- Zapisać wykres i oczyścić komorę reakcyjną za pomocą 5 x 1 mL 70% etanolu, 5 × 1 mL 0,1 mM EDTA, 7 × 1 mL wody MQ oraz 5 × 1 mL ORB przed wykonaniem kolejnego pomiaru.
- Aby skorygować dane o szybkość tła, obliczyć szybkość tła, tj. nachylenie odczytu przed dodaniem NADH, a następnie liniowo ekstrapolować tę wartość w czasie trwania pomiaru, obliczając oczekiwane tło [O2] dla każdego punktu czasowego. Następnie odjąć ekstrapolowane tło [O2] od zmierzonej wartości [O2] dla każdego punktu czasowego.
- Obliczyć szybkości zużycia tlenu (OCRs) jako nachylenie pomiarów stężenia [O2] skorygowanego o tło po dodaniu każdego z odczynników.
- Aby obliczyć szybkości w stosunku do OCR po dodaniu NADH, dla każdego pojedynczego śladu podzielić każdy zmierzony OCR (np. odpowiednio OCR po dodaniu NADH, CCCP i inhibitora) przez OCR zmierzony po dodaniu NADH.
UWAGA: OSTROŻNIE: Ditionian sodu jest silnym reduktorem i może gwałtownie reagować z utleniaczami lub wilgocią. Należy go używać w rękawiczkach. Odpady zawierające inhibitory należy utylizować jako niebezpieczne odpady chemiczne zgodnie z wytycznymi instytucjonalnymi.
8. Oszacowanie wielkości zrekonstytuowanych liposomów przy użyciu dynamicznego rozpraszania światła
- Włącz urządzenie do dynamicznego rozpraszania światła (DLS) i odczekaj ok. 30 min w celu stabilizacji lasera.
- Uruchom oprogramowanie akwizycyjne urządzenia i zamknij wszelkie poprzednie pliki.
- Przefiltruj proteoliposomy (0,2 μm), aby usunąć wszelkie cząstki stałe.
- Przenieś 70 µL proteoliposomów do czystej kuwety, unikając pozostawiania odcisków palców lub smug.
- Umieść kuwetę w urządzeniu i szczelnie zamknij pokrywę.
- Utwórz nowy plik i wybierz Pomiar Ręczny > Rozmiar.
- Ustaw temperaturę na 25 °C i pozostaw indeks tłumienia w trybie automatycznym.
- Zdefiniuj właściwości dyspergentu (lepkość i współczynnik załamania światła; np. RI = 1,330 dla wody/buforu).
- Ustaw parametry akwizycji (czas trwania automatyczny, ok. 3 pomiary, przetwarzanie ogólnego przeznaczenia).
- Rozpocznij pomiar i monitoruj rozmiar, indeks polidyspersyjności (PDI) oraz szybkość zliczeń (zakres docelowy ok. 100–500 kcps).
- Przeanalizuj wyniki: sprawdź rozkład wielkości (intensywność/objętość), PDI (akceptowalne <0,3) oraz jakość autokorelacji (gładki spadek, stabilna linia bazowa); zapisz dane.
9. Przygotowanie i przesiewanie siatek do kriomikroskopii elektronowej
- Próbkę proteoliposomów z kroku 5.11 (lub kroku 3.9, jeśli pominięto kroki 4 i 5) wykorzystać do przygotowania siatek do EM. W razie potrzeby skoncentrować proteoliposomy, powtarzając krok 5.6 i resuspendując je w mniejszej objętości buforu PLB.
- Miedziane siatki o gęstości 300 mesh, powlekane dziurawym węglem, poddać działaniu wyładowań koronowych (glow-discharge) przez 90 s przy natężeniu 20 mA w powietrzu, używając systemu do czyszczenia glow-discharge.
- Skonfigurować zautomatyzowany system mrożenia w ciekłym etanie (plunge freezer) dla wilgotności 95% i temperatury 15 °C, stosując następujące parametry: czas osuszania (blot time) 10 s, siła osuszania (blot force) −8, czas oczekiwania (wait time) 10 s oraz czas odpływu (drain time) 0.
- Przymocować pęsetę z poddaną glow-discharge siatką do systemu mrożenia.
- Nanieść 4,0 µL próbki proteoliposomów na przygotowaną siatkę w automatycznym mroźniku.
- Inkubować siatki przez 10 s przed osuszaniem przez 10 s i mrożeniem w ciekłym etanie. Ostrożnie przenieść siatki do pudełka na siatki w komorze z ciekłym N2, a następnie do naczynia Dewar do przechowywania w ciekłym N2.
- Zamrożone siatki załadować i poddać analizie w transmisyjnym mikroskopie elektronowym z kriogenicznym systemem wprowadzania próbek. Użyto transmisyjnego mikroskopu elektronowego z bezpośrednim detektorem elektronów.
- Skonfigurować mikroskop zgodnie z instrukcjami producenta i przeszukać siatki w celu znalezienia zrekonstytuowanych proteoliposomów. Zapisać obrazy.
UWAGA: OSTROŻNIE: Ciekły etan jest wysoce łatwopalny i kriogeniczny; należy go obchodzić się z użyciem odpowiednich środków ochrony osobistej (PPE) i z dala od źródeł zapłonu, aby uniknąć pożaru i odmrożeń. Ciekły azot jest kriogeniczny i może powodować ciężkie odmrożenia oraz wypierać tlen. Należy go używać z odpowiednimi kriogenicznymi środkami ochrony osobistej i wyłącznie w dobrze wentylowanych pomieszczeniach.
Wyniki
Korzystając z niniejszego protokołu, określiliśmy optymalne warunki rekonstytucji superkompleksów (SCs) mitochondrialnych wyizolowanych z mitochondriów serca świni (Rysunek 1A,B). Protokół z zastosowaniem gradientu schodkowego sacharozy skutecznie oddziela rekonstytuowane proteoliposomy od pustych pęcherzyków i nieinkorporowanych białek, co umożliwia szybkie testowanie i optymalizację warunków. Reprezentatywne wyniki na Rysunku 2 przedstawiają gradient z naniesioną próbką przed i po wirowaniu. Ponadto zoptymalizowano detergent użyty do rekonstytucji oddechowych SC w liposomach. Do rekonstytucji SC użyto oddzielnie czterech różnych detergentów: anionowego detergentu na bazie soli żółciowych, CHAPS, digitoniny oraz detergentu glikozydowego. Całkowitą aktywność CI w frakcjach mierzono za pomocą testu oksydoredukcji NADH-żelazocyjanek dla każdego testowanego detergentu (Rysunek 3A–D). W przypadku udanych rekonstytucji maksymalną aktywność CI zaobserwowano w frakcjach na styku dwóch stężeń sacharozy (27% w/v sacharozy i 7% w/v sacharozy). Co istotne, minimalna aktywność jest wykrywana w frakcji #10 dla anionowego detergentu na bazie soli żółciowych i CHAPS, natomiast frakcja #10 dla digitoniny i detergentu glikozydowego wykazuje znaczną aktywność, co wskazuje, że digitonina i detergent glikozydowy nie rekonstytuują skutecznie superkompleksów w liposomach. Do wszystkich kolejnych rekonstytucji zastosowano anionowy detergent na bazie soli żółciowych.
Analiza aktywności w żelu dla CI i CIV, przeprowadzona na żelu do elektroforezy poliakrylamidowej w warunkach blue-native (BN-PAGE) z proteoliposomami POPC:POPE:CL (2:2:1) ekstrahowanymi digitoniną, wykazuje względne ilości SC oraz poszczególnych kompleksów ETC po rekonstytucji (Rysunek 4). Wyniki wskazują, że interakcja między CI a CIII2 jest w dużej mierze zachowana w proteoliposomach po ponownej ekstrakcji digitoniną i BN-PAGE. Chociaż w prążku superkompleksu obecna jest pewna aktywność CIV, silny sygnał obserwuje się również przy niższej masie cząsteczkowej, co odpowiada samemu CIV, wskazując na dysocjację. Przeciekanie błony zrekonstytuowanych liposomów zmierzono za pomocą testu wygaszania fluorescencji ACMA, co wykazało, że proteoliposomy nie były w znacznym stopniu przepuszczalne dla protonów (Rysunek 5A,B). Wielkość zrekonstytuowanych liposomów oszacowano za pomocą DLS, co wykazało, że ekstruzja przed rekonstytucją prowadzi do końcowego rozkładu wielkości proteoliposomów o średnicy 82,9 ± 0,8 nm dla pęcherzyków pustych i 10,6 ± 0,4 nm dla zrekonstytuowanych proteoliposomów superkompleksowych RSPs (Rysunek 6). Zużycie tlenu przez proteoliposomy wykorzystano do oceny funkcji SC, co ujawniło wyraźne, wrażliwe na inhibitory zużycie tlenu napędzane przez NADH (Rysunek 7A). Wykreślenie OCR w stosunku do OCR po dodaniu NADH bezpośrednio informuje o stopniu sprzężenia w obrębie RSPs, t.j. OCR zwiększa się około 1,5 raza po dodaniu CCCP w stosunku do samego dodania NADH (Rysunek 7B). Przesiewowe siatki Cryo-EM umożliwiły wizualizację SC w błonie proteoliposomów, potwierdzając pomyślną rekonstytucję (Rysunek 8A–I).
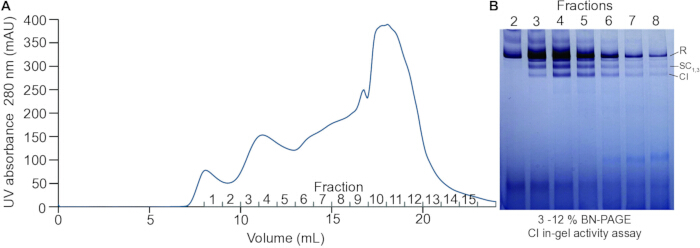
Rysunek 1: Izolacja i charakterystyka superkompleksów solubilizowanych detergentem z mitochondriów serca świni. (A) Reprezentatywny chromatogram oczyszczania za pomocą chromatografii wykluczania cząsteczkowego (SEC) kompleksów błon mitochondrialnych świni ekstrahowanych digitoniną. (B) Elektroforeza w natywnych warunkach z zastosowaniem barwnika nieoddziałującego (BN-PAGE) frakcji z A wizualizowane za pomocą barwienia aktywnością w żelu CI. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
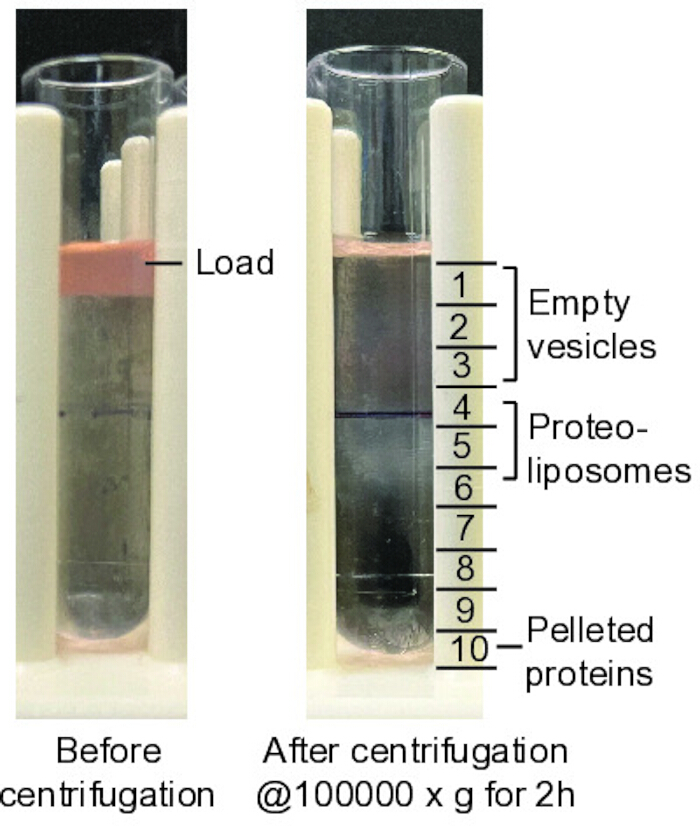
Rysunek 2Gradienty skokowe sacharozy z proteoliposomami. Przed wirowaniem (lewo), po wirowaniu (prawo) przy 10 0 × g przez 2 h w ultrawirowarce. Próbka proteoliposomów naniesiona na gradient zostaje rozdzielona na puste pęcherzyki, proteoliposomy oraz zagregowane białka na dnie. Następnie gradient ten jest frakcjonowany w celu dalszej charakterystyki zgodnie z opisem. Przybliżony zakres każdej frakcji jest wskazany i opisany. Prosimy o kliknięcie tutaj, aby wyświetlić powiększoną wersję tego rysunku.
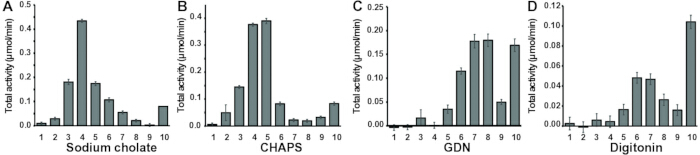
Rysunek 3: Analiza flotacji w celu oceny wydajności rekonstytucji w różnych detergentachAktywność kompleksu I (CI) NADH-żelazocyjanek w frakcjach z gradientu sacharozowego po rekonstytucji z (A) anionowy detergent solny żółci, (B) 3-[(3-cholamidopropyl)dimetyloammonio]-1-propanosulfonian (CHAPS) (0,6% (m/v)), (C) digitonin (0,6% m/v), (D) detergent glikozydowy (GDN) (0,6% (m/v)). Frakcja #10 otrzymuje się poprzez ponowne zawieszenie każdego osadu w ostatniej frakcji. Aktywność w frakcji #10 wskazuje, że białka nie uległy rekonstytucji. n = 3, a słupki błędów przedstawiają SD = odchylenie standardowe. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
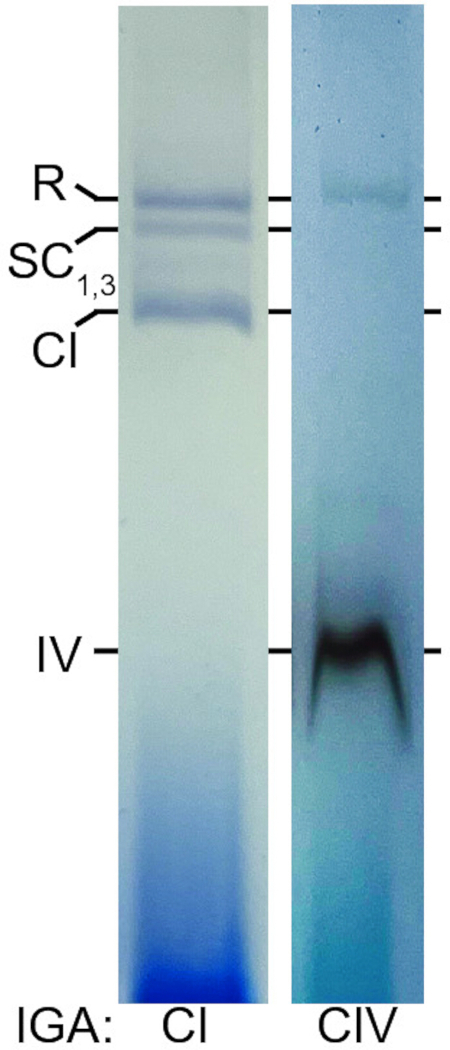
Rycina 4: Analiza aktywności w żelu dla proteoliposomów ekstrahowanych digitoniną w elektroforezie BN-PAGE w gradientach 3%–12%. Analiza aktywności w żelu dla kompleksu I (lewo) i kompleksu IV (prawo). R = respirasom (SC I+III2+IV), SC1,3 (SC I+III2), IGA CI = (test aktywności w żelu IGA CI); IGA = test aktywności w żelu; CIV = (test aktywności w żelu CIV). Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
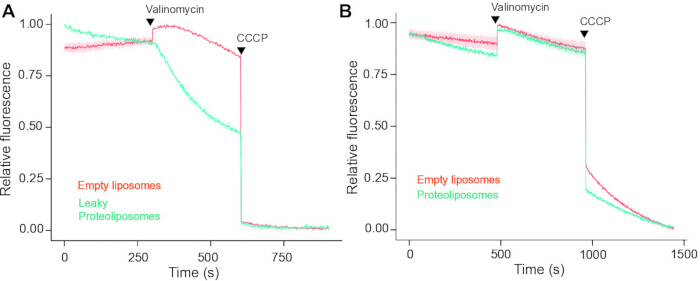
Rysunek 5Analiza wygaszania fluorescencji ACMA w celu wykrycia przecieku protonów w zrekonstytuowanych proteoliposomachZ zastosowaniem barwnika wrażliwego na pH (ACMA) porównano wewnętrzne pH zrekonstytuowanych proteoliposomów (kolor cyjanowy) z pustymi liposomami (kolor pomarańczowy) po sekwencyjnym dodaniu walinomycyny i CCCP. Przedstawiono reprezentatywne przebiegi fluorescencji ACMA uzyskane z różnych preparatów proteoliposomów w celu porównania. (A) Rekonstytuowane liposomy z uszkodzoną błoną (nieszczelne). (B) Rekonstytuowane liposomy z nienaruszoną błoną. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
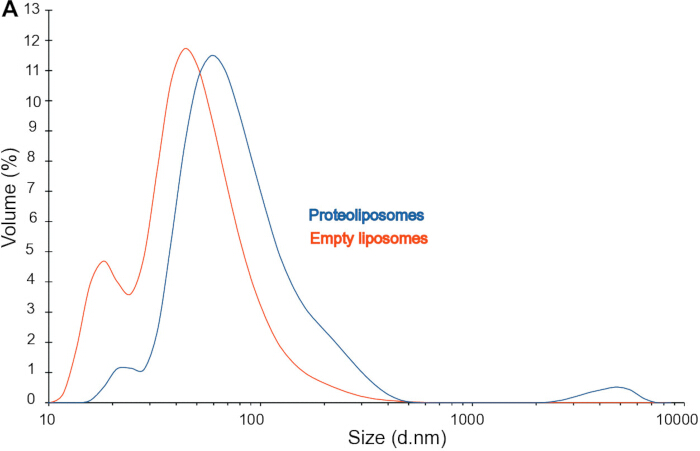
Rysunek 6Pomiary dynamicznego rozpraszania światła pustych liposomów i zrekonstruowanych proteoliposomów SC. Przedstawiono średnie rozkłady wielkości ważone objętościowo dla ekstrudowanych pustych liposomów (kolor pomarańczowy) oraz proteoliposomów zrekonstytuowanych z SC (kolor cyjanowy). Pomiary przeprowadzono w trzech powtórzeniach technicznych. Puste liposomy mają średnicę hydrodynamiczną wynoszącą 82,9 ± 0,8 nm, natomiast RSP mają średnicę hydrodynamiczną wynoszącą 10,6 ± 0,4 nm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
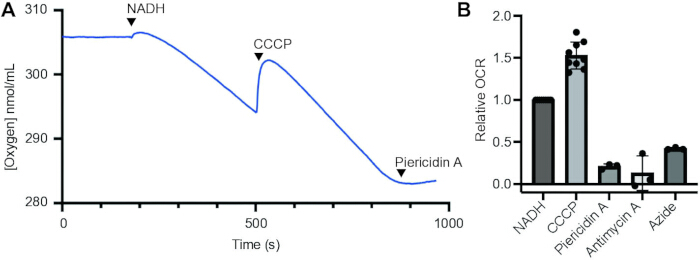
Rycina 7: Analizy zużycia tlenu w celu oceny sprzęgania zrekonstytuowanych kompleksów SC w liposomachPomiar zużycia tlenu przeprowadzono w celu oceny aktywności oddechowej oraz sprzężenia kompleksów ETC po ich rekonstytucji w liposomach otrzymanych metodą ekstruzji. (A) Reprezentatywny, skorygowany o tło zapis z elektrody tlenowej, ukazujący zmiany stężenia tlenu po sekwencyjnym dodaniu NADH w celu zainicjowania oddychania sterowanego przez kompleks I (CI), CCCP w celu zniesienia gradientu protonowego i pomiaru maksymalnej szybkości nie sprzężonego zużycia tlenu (OCR), piericydyny A w celu zahamowania CI oraz antymycyny A w celu zahamowania kompleksu III (CIII)2lub NaN3 (Azydkiem) w celu zahamowania kompleksu IV. (B) Ilościowe oznaczenie OCR w wskazanych warunkach, skorygowane zgodnie z krokiem 7.10. Dla każdego pomiaru przedstawiono punkty danych w stosunku do OCR po dodaniu NADH wraz ze średnią ± SD (słupki błędów). Aby wyświetlić większą wersję tej ryciny, kliknij tutaj.
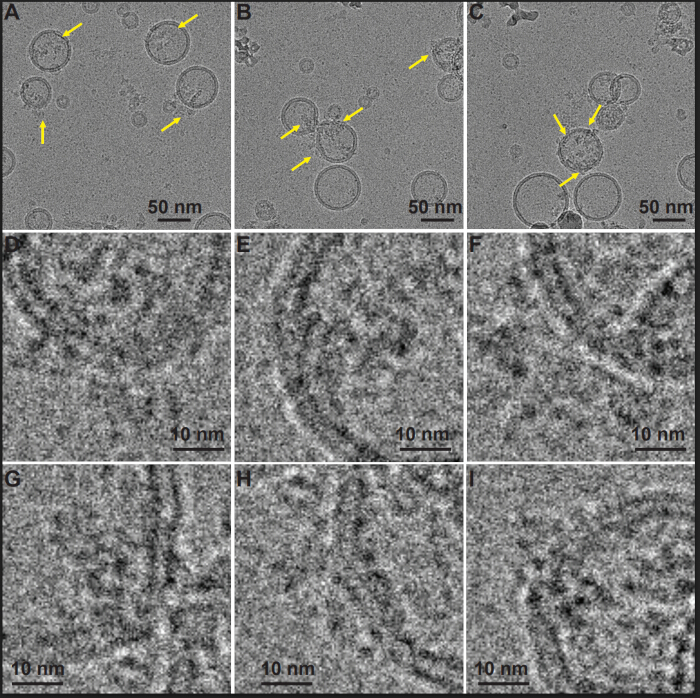
Rysunek 8: Wizualizacja kriomikroskopowa (cryo-EM) zrekonstytuowanych kompleksów SC w błonach proteoliposomów. (A–C) Reprezentatywne mikrografie elektronowe przesiewanych siatek pokazujące zrekonstytuowane kompleksy SC związane z błonami proteoliposomów. Zrekonstytuowane kompleksy SC wskazano żółtymi strzałkami. Paski skali = 50 nm. (D–I) Reprezentatywne cząsteczki SC widoczne przy większym powiększeniu na błonach proteoliposomów. Paski skali = 10 nm. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Dyskusja
Przedstawiono prostą i powtarzalną metodę rekonstytucji mitochondrialnych superkompleksów (SC) oddechowych w zdefiniowanych proteoliposomach, co umożliwia kontrolowane badanie ich struktury i funkcji. Kilka etapów tego protokołu jest kluczowych dla sukcesu rekonstytucji. W naszych doświadczeniach liposomy generowane poprzez ekstruzję wykazują bardziej jednolity rozkład wielkości (oceniany za pomocą dynamicznego rozpraszania światła) niż te otrzymywane przez sonikację. Skuteczne usunięcie detergentu przy użyciu gotowej kolumny odsalającej do wirowania jest niezbędne dla zapewnienia szczelności błony i prawidłowego wbudowania SC w dwuwarstwę lipidową; niepełne usunięcie może prowadzić do powstania nieszczelnych lub niestabilnych proteoliposomów. Równie istotna jest optymalizacja składu lipidów, stosunku białka do lipidów oraz dobór detergentu, ponieważ parametry te silnie wpływają na wydajność rekonstytucji i stabilność SC. Analiza flotacji w gradiencie sacharozy jest użyteczna do wstępnej optymalizacji; jednak po ustaleniu warunków preferowane jest wykorzystanie proteoliposomów bezpośrednio po etapie kolumny odsalającej do dalszych analiz strukturalnych i funkcjonalnych, co pozwala uniknąć utraty próbki i jej rozpadu podczas frakcjonowania gradientowego. Objętość frakcji wymagana do zaobserwowania aktywności różni się w zależności od preparatu. Należy dostosować objętość dodawaną do mieszaniny reakcyjnej dla różnych serii preparatów. Orientacja SC oddechowego w błonie proteoliposomu może znacząco wpływać na pomiary oddechowe. Procedura rekonstytucji nie została zoptymalizowana pod kątem wymuszenia jednej topologii; w związku z tym, choć spodziewana jest mieszana populacja orientacji, testy dostępności żelazicyjanku dla CI wskazują na silną tendencję do orientacji ramion peryferyjnych CI na zewnątrz.
Orientację zrekonstytuowanych superkompleksów oceniono eksperymentalnie, a aktywność kompleksu I (CI) wobec ferrycyjanku zmierzono w obecności i w przypadku braku detergentu. W nienaruszonych RSPs zewnętrznie dodany NADH może mieć dostęp jedynie do cząsteczek CI, których ramię peryferyjne jest wystawione na środowisko zewnętrzne, podczas gdy permeabilizacja detergentem umożliwia dostęp NADH do wszystkich kompleksów. Zatem ten test szacuje frakcję funkcjonalnie dostępnych ramion peryferyjnych CI skierowanych ku środowisku zewnętrznemu, zamiast dostarczać pełnego określenia strukturalnego topologii proteoliposomów. Porównanie aktywności zmierzonych w tych warunkach wykazało, że 83.1% ± 0.04% respirasomów (SC) było zorientowanych ramieniem peryferyjnym CI na zewnątrz, co ujawniło znaczną preferencję orientacji podczas rekonstytucji.
Kilka modyfikacji i strategii rozwiązywania problemów może poprawić powtarzalność i stabilność. Testy aktywności w żelu dla CI i CIV, przeprowadzone na połączonych frakcjach ekstrahowanych digitoniną z gradientów sacharozowych, wykazują prążki dla SC, co wskazuje, że SC nie dysocjuje całkowicie podczas rekonstytucji. Jednak prążek SC jest silniejszy na żelu aktywności CI w porównaniu z żelem aktywności CIV, co sugeruje, że CIV może częściowo dysocjować z CI i CIII2 po rekonstytucji (Rycina 4). Dostosowanie składu lipidów może zwiększyć stabilność SC. Częściowa dysocjacja CIV może wynikać również z wyboru detergentu lub szybkiego usuwania detergentu podczas rekonstytucji, co mogłoby destabilizować słabsze oddziaływania białko-białko w obrębie superkompleksu. Dalsza optymalizacja warunków wymiany detergentu może poprawić retencję CIV. Ponadto minimalizacja stresu mechanicznego, unikanie zbędnych etapów oczyszczania oraz ostrożne obchodzenie się z próbkami mogą pomóc w zachowaniu integralności proteoliposomów. W przypadku testów funkcjonalnych kluczowe jest zapewnienie całkowitego uszczelnienia proteoliposomów, ponieważ nieszczelność błony zapobiega sprzężeniu z transmembrane proton gradient. W przygotowaniu siatek do krio-EM ważne jest stosowanie siatek z ciągłą powłoką węglową, ponieważ wykazano, że poprawia to rozkład cząstek w otworach siatki19.
Mimo swoich zalet, podejście to posiada pewne ograniczenia. Proteoliposomy nie w pełni odtwarzają składu i złożoności dynamicznej rodzimej wewnętrznej błony mitochondrialnej, a częściowa dysocjacja komponentów SC, w szczególności CIV, pozostaje wyzwaniem. Na wyniki funkcjonalne może również wpływać niepełne sprzężenie lub heterogeniczność wydajności rekonstytucji. Niemniej jednak, w porównaniu z systemami solubilizowanymi detergentami, metoda ta zachowuje oddziaływania lipid-białko i zapewnia środowisko błony zbliżone do naturalnego, oferując jednocześnie większą kontrolę eksperymentalną niż podejścia in situ. W związku z tym stanowi ona wartościową platformę do systematycznego badania, w jaki sposób skład lipidowy i właściwości błony regulują stabilność oraz aktywność SC.
Zrozumienie tych zależności jest szczególnie istotne, ponieważ zaburzenia organizacji superkompleksów oddechowych są powiązane z szerokim spektrum zaburzeń mitochondrialnych i metabolicznych31,32,33,34,35,36,37,38,39,40. Defekty w składaniu kompleksów ETC, syntezie kardiolipiny lub remodelingu lipidów, obserwowane w schorzeniach takich jak zespół Leigh41,42,43,44,45,46,47, zespół Bartha48,49,50,51,52,53,54 oraz zespół Sengera48, mogą destabilizować superkompleksy, upośledzać transfer elektronów, redukować produkcję ATP i zwiększać generowanie reaktywnych form tlenu. Te defekty bioenergetyczne nieproporcjonalnie dotykają tkanek o wysokim zapotrzebowaniu energetycznym, takich jak serce, mięśnie szkieletowe i mózg, prowadząc do fenotypów obejmujących kardiomiopatię, nietolerancję wysiłku oraz neurodegenerację36,37,38. Z drugiej strony, pojawiające się dowody sugerują, że tworzenie superkompleksów może pełnić rolę kompensacyjną i ochronną w warunkach stresu poprzez stabilizację kompleksów ETC i ograniczanie patologicznej produkcji ROS55,56. Opisana tutaj platforma zrekonstytuowanych proteoliposomów zapewnia kontrolowany system do bezpośredniego badania, w jaki sposób związany z chorobą remodeling lipidów, mutacje lub interwencje farmakologiczne zmieniają składanie i funkcję superkompleksów, umożliwiając tym samym badania mechanistyczne dysfunkcji mitochondrialnych i dostarczając informacji dla przyszłych strategii terapeutycznych.
Niskie tempo zużycia tlenu może wynikać ze słabej inkorporacji superkompleksów, częściowej dysocjacji CIV, obecności resztkowego detergentu, niewystarczającej ilości CoQ10 lub cytochromu c, degradacji NADH lub niskiego stężenia białka w komorze oksygrafu. Należy potwierdzić rekonstytucję za pomocą testu flotacyjnego lub BN-PAGE, zweryfikować integralność błony poprzez wygaszanie ACMA, przygotować świeży NADH oraz zoptymalizować stosunek białka do lipidów, stężenie kofaktorów, usuwanie detergentu i stężenie próbek. Przeciekające proteoliposomy mogą być wynikiem niepełnego usunięcia detergentu, zbyt wysokiego stężenia detergentu, gwałtownego obchodzenia się z próbkami, wielokrotnych cykli zamrażania i rozmrażania lub uszkodzenia lipidów. Jeśli w teście ACMA zaobserwowany zostanie wyciek protonów, należy powtórzyć proces usuwania detergentu, używając świeżo równoważonej kolumny odsalającej, unikać nadmiernego wirowania kolumny, przygotować świeże liposomy, zminimalizować naprężenia mechaniczne i użyć proteoliposom natychmiast po rekonstytucji. Agregacja podczas etapów zagęszczania może wystąpić z powodu wysokich lokalnych stężeń białka lub detergentu przy membranie koncentratora. Próbki należy zagęszczać w krótkich (10 min) cyklach wirowania, delikatnie resuspender próbkę między wirowaniami, unikać nadmiernego zagęszczenia, przechowywać próbki w temperaturze 4 °C oraz usuwać widoczne agregaty poprzez klarowanie przy niskiej prędkości przed dalszym użyciem. Niespójne zachowanie podczas flotacji może odzwierciedlać zmienną wielkość liposomów, niepełne usunięcie detergentu, agregację, nieprawidłowe warstwowanie sacharozy lub zaburzenie gradientu podczas nakładania próbek lub zbierania frakcji. Należy przygotować świeże roztwory sacharozy, powoli nakładać warstwy gradientu bez mieszania granic faz, stosować jednorodnie ekstrudowane liposomy, zachować stałe warunki wirowania i delikatnie zbierać frakcje od góry do dołu. Słaba dystrybucja cząsteczek w krio-EM może wynikać z niskiego stężenia proteoliposomów, agregacji, preferencyjnej adsorpcji do węgla, słabego zwilżenia siatki, zbyt grudego lodu lub nadmiernego blotowania. Należy zoptymalizować stężenie proteoliposomów, usunąć agregaty przed przygotowaniem siatki, dostosować warunki wyładowań żarowych, przetestować czas i siłę blotowania, sprawdzić różne rodzaje siatek lub podłoży węglowych oraz w miarę możliwości używać świeżo przygotowanych próbek.
Oświadczenia
Autorzy deklarują brak konfliktów interesów.
Podziękowania
Siatki zostały przeskanowane w placówce UC Davis BioEM Core. Dziękujemy dr. Fei Guo za pomoc przy skanowaniu. Praca została sfinansowana przez NIGMS w ramach NIH na podstawie grantu R35GM137929 (JAL).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1-palmitylojo-2-oleojlo-sn-glycero-3-fosfocholina (POPC) | Avanti Research | 860320 | |
| 1-palmitylo-2-oleoil-sn-glycero-3-fosfoetanoloamina (POPE) | Avanti Research | 850757 | |
| 1,3-bis(sn-3-’-fosfatydylo)-sn-glicerol (kardiolipina, z tkanki serca bydlęcego) | Avanti Research | 840012 | |
| Kwas 2-[4-(2-hydroksyetyl)piperazyn-1-ylo]etanosulfonowy --- HEPES | Sigma-Aldrich | H23830 | |
| kwas 3-(N-morfolino)propanosulfonowy (MOPS) | Sigma-Aldrich | M12545 | |
| 3,3′-Diaminobenzydyna ---- DABB | Sigma-Aldrich | D4293 | |
| cyjanek karbonylowy m-chlorofenylhydrazon ---- CCCP | Sigma-Aldrich | C2759 | |
| CHAPS | Sigma-Aldrich | 220201 | |
| Chloroform | Sigma-Aldrich | 650948 | |
| Koenzym Q10 | Sigma-Aldrich | C9538 | |
| Cytochrom c z serca konia | Sigma-Aldrich | C2506 | |
| Digitonin | Sigma-Aldrich | 300410 | |
| glikol etylenowy-bis(2-aminoetylotere)-N,N,N′,N′kwas tetraoctowy --- EGTA | Sigma-Aldrich | E3889 | |
| Kwas etylendiaminotetraoctowy -- EDTA | Sigma-Aldrich | E6758 | |
| Glicerol | Sigma-Aldrich | G7893 | |
| Glikodiosgenina | Anatrace | GDN101 | detergent |
| laurylo-maltozowy neopentyloglikol ---- LMNG | Sigma-Aldrich | NG310 | |
| Chlorek magnezu | Sigma-Aldrich | M8266 | |
| Myxothiazol | Sigma-Aldrich | T5580 | |
| NADH, sól sodowa | Sigma-Aldrich | 481913 | |
| Chlorek błękitu nitrotetrazoliowego | Sigma-Aldrich | N6876 | |
| Piericydyna A | Sigma-Aldrich | 96861 | |
| Octan potasu | Sigma-Aldrich | P5708 | |
| Chlorek potasu | Sigma-Aldrich | P3911 | |
| żelazicyjanek potasu | Sigma-Aldrich | 702587 | |
| Wodorofosforan potasu ---- KH2PO4 | Sigma-Aldrich | P0662 | |
| Azydek sodu | Sigma-Aldrich | S2002 | |
| Hydrat cholanianu sodu | Sigma-Aldrich | C1254 | |
| Chlorek sodu | Sigma-Aldrich | S9888 | |
| Ditionian sodu | Sigma-Aldrich | 71699 | |
| Sacharoza | Sigma-Aldrich | S9378 | |
| TRIS | Sigma-Aldrich | T1503 | |
| ACMA (9-amino-6-chloro-2-metoksyakrydyna) | Sigma-Aldrich | SML4162 | |
| Sprzęt i zestawy | |||
| Amicon® Filtr ultrawirowy, 100 kDa MWCO 0,5 ml | Millipore | UFC5100 | |
| Amicon® Filtr ultrawirowy, 100 kDa MWCO 15 ml | Millipore | UFC9100 | |
| Ultrawirówka Beckman Optima TLX | Beckman Coulter | ||
| żel BN-PAGE | żel do elektroforezy w poliakrylamidzie w warunkach nieodprądowujących z użyciem barwnika Blue Native | ||
| Ultrawirówka Beckman Optima XE | Beckman Coulter | ||
| System czyszczenia metodą wyładowań żarowych | system czyszczenia wyładowaniami żarowymi | ||
| Kriomikroskop elektronowy Glacios 2 z detektorem Gatan K3 | Thermo Fisher Scientific | transmisyjny mikroskop elektronowy | |
| Zestaw homogenizatora tkankowego KIMBLE Dounce | Sigma-Aldrich | D9188 | |
| Automatyczny tłok Leica GP2 | Leica | ||
| Mikrowirówka 16 | Beckman Coulter | A46474 | |
| System chromatograficzny NGC Discover 10 | Bio-Rad | 7880009 | |
| Oxygraph+ | system elektrody tlenowej | ||
| Kolumna do odsalania PD-10 | Cytiva | 28918007 | kolumna spinowa do chromatografii wykluczania rozmiarów |
| Zestaw do oznaczania białek metodą BCA Pierce | Thermo Fisher Scientific | 23225 | zestaw do oznaczania białek metodą kwasu bicinchonimowego |
| Sonikator Q-125 | Q-sonica | Q125-110 | |
| kolumna Sephadex G-25 M | gotowa kolumna wirówkowa do odsalania z żywicą G-25 | ||
| czytnik mikropłytek SpectraMax M2 | Molecular Devices | ||
| Superose 6 Increase 10/300 GL | Cytiva | 29091596 | medium do filtracji żelowej na bazie sieciowanego agarozu |
| TLA-100.3 Zestaw rotora kątowego | Beckman Coulter | 349490 | |
| Rotor z kątem stałym Type 50.2 Ti | Beckman Coulter | 337901 | |
| woda Milli-Q (MQ) | woda ultrazczysta | ||
| Malvern Zetasizer ZS – dynamiczne rozpraszanie światła (DLS) | Malvern Panalytical | ||
| System Hansatech Oxygraph+ | Hansatech Instruments | ||
| System czyszczenia wyładowaniowego PELCO easiGlow | TED PELLA, INC | ||
| System Vitrobot Mark IV | Thermo Fisher Scientific | zamrażarka do szybkiego mrożenia (plunge freezer) | |
| Siatki miedziane Quantifoil R 1.2/1.3 o gęstości 300 mesh z warstwą węgla o grubości 2 nm | TED PELLA, INC | 668-300-Cu-100 | z powłoką z dziurawego węgla |
| mini-ekstruder Avanti | Avanti Lipids | 610000 |
Bibliografia
- Mitchell P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature. 1961;191:144-8.
- Dudkina NV, Kudryashev M, Stahlberg H, Boekema EJ. Interaction of complexes I, III, and IV within the bovine respirasome by single particle cryoelectron tomography. Proc Natl Acad Sci U S A. 2011;108:15196-200.
- Althoff T, Mills DJ, Popot JL, Kühlbrandt W. Arrangement of electron transport chain components in bovine mitochondrial supercomplex I1III2IV1. EMBO J. 2011;30:4652-64.
- Schäfer E, Dencher NA, Vonck J, Parcej DN. Three-dimensional structure of the respiratory chain supercomplex I1III2IV1 from bovine heart mitochondria. Biochemistry. 2007;46:12579-85.
- Schägger H, Pfeiffer K. Supercomplexes in the respiratory chains of yeast and mammalian mitochondria. EMBO J. 2000;19:1777-83.
- Milenkovic D, Blaza JN, Larsson NG, Hirst J. The enigma of the respiratory chain supercomplex. Cell Metab. 2017;25:765-76.
- Berndtsson J, et al. Respiratory supercomplexes enhance electron transport by decreasing cytochrome c diffusion distance. EMBO Rep. 2020;21. doi:10.15252/embr.202051015.
- Moe A, Di Trani J, Rubinstein JL, Brzezinski P. Cryo-EM structure and kinetics reveal electron transfer by 2D diffusion of cytochrome c in the yeast III-IV respiratory supercomplex. Proc Natl Acad Sci U S A. 2021;118. doi:10.1073/pnas.2021157118.
- Blaza JN, et al. Kinetic evidence against partitioning of the ubiquinone pool and the catalytic relevance of respiratory-chain supercomplexes. Proc Natl Acad Sci U S A. 2014;111:15735-40.
- Diaz F, Enríquez JA, Moraes CT. Cells lacking Rieske iron-sulfur protein have a reactive oxygen species-associated decrease in respiratory complexes I and IV. Mol Cell Biol. 2012;32:415-29.
- Maranzana E, et al. Mitochondrial respiratory supercomplex association limits production of reactive oxygen species from complex I. Antioxid Redox Signal. 2013;19:1469-80.
- Schägger H, et al. Significance of respirasomes for the assembly/stability of human respiratory chain complex I. J Biol Chem. 2004;279:36349-53.
- Acín-Pérez R, et al. Respiratory complex III is required to maintain complex I in mammalian mitochondria. Mol Cell. 2004;13:805-15.
- Letts JA, Sazanov LA. Clarifying the supercomplex: the higher-order organization of the mitochondrial electron transport chain. Nat Struct Mol Biol. 2017;24:800-8.
- Protasoni M, et al. Respiratory supercomplexes act as a platform for complex III-mediated maturation of human mitochondrial complexes I and IV. EMBO J. 2020;39. doi:10.15252/embj.2019102817.
- Pöverlein MC, Jussupow A, Kim H, Kaila VRI. Protein-induced membrane strain drives supercomplex formation. eLife. 2024;13. doi:10.7554/eLife.102104.1.
- Mandala VS, MacKinnon R. Voltage-sensor movements in the Eag Kv channel under an applied electric field. Proc Natl Acad Sci U S A. 2022;119. doi:10.1073/pnas.2214151119.
- Falzone ME, MacKinnon R. Gβγ activates PIP2 hydrolysis by recruiting and orienting PLCβ on the membrane surface. Proc Natl Acad Sci U S A. 2023;120. doi:10.1073/pnas.2301121120.
- Grba DN, et al. Molecular mechanism of the ischemia-induced regulatory switch in mammalian complex I. Science. 2024;384:1247-53.
- Tao X, Zhao C, MacKinnon R. Membrane protein isolation and structure determination in cell-derived membrane vesicles. Proc Natl Acad Sci U S A. 2023;120. doi:10.1073/pnas.2302325120.
- Zheng W, Chai P, Zhu J, Zhang K. High-resolution in situ structures of mammalian respiratory supercomplexes. Nature. 2024;631:232-9.
- Nakano A, et al. Structures of respiratory supercomplexes and ATP synthase oligomers in mammalian mitochondrial inner membrane. Nat Commun. 2026;17:4075. doi:10.1038/s41467-026-70578-x.
- Coupland CE, et al. High-resolution electron cryomicroscopy of V-ATPase in native synaptic vesicles. Science. 2024;385:168-74.
- Letts JA, Fiedorczuk K, Sazanov LA. The architecture of respiratory supercomplexes. Nature. 2016;537:644-8.
- Letts JA, et al. Structures of respiratory supercomplex I+III2 reveal functional and conformational crosstalk. Mol Cell. 2019;75:1131-46.e6.
- Jha P, Wang X, Auwerx J. Analysis of mitochondrial respiratory chain supercomplexes using blue native polyacrylamide gel electrophoresis (BN-PAGE). Curr Protoc Mouse Biol. 2016;6:1-14.
- Biner O, Fedor JG, Yin Z, Hirst J. Bottom-up construction of a minimal system for cellular respiration and energy regeneration. ACS Synth Biol. 2020;9:1450-9.
- Wright JJ, et al. Reverse electron transfer by respiratory complex I catalyzed in a modular proteoliposome system. J Am Chem Soc. 2022;144:6791-801.
- Lee SY, Letts JA, MacKinnon R. Functional reconstitution of purified human Hv1 H+ channels. J Mol Biol. 2009;387:1055-60.
- Caldeira D de AF, Oliveira DF de, Cavalcanti-de-Albuquerque JP, Nascimento JHM, Zin WA, et al. Isolation of mitochondria from fresh mice lung tissue. Front Physiol. 2021;12:748261. doi:10.3389/fphys.2021.748261.
- Shi H, et al. Global burden of ischaemic heart disease from 2022 to 2050: projections of incidence, prevalence, deaths, and disability-adjusted life years. Eur Heart J Qual Care Clin Outcomes. 2025;11:355-66.
- Rahman S. Mitochondrial disease in children. J Intern Med. 2020;287:609-33.
- Pérez-Albert P, et al. Mitochondrial disease in children: the nephrologist’s perspective. JIMD Rep. 2018;42:61-70.
- Gorman GS, et al. Prevalence of nuclear and mitochondrial DNA mutations related to adult mitochondrial disease. Ann Neurol. 2015;77:753-9.
- Pitceathly RDS, Rahman S. Mitochondrial DNA-related diseases associated with single large-scale deletions and point mutations. In: Gasparre G, Porcelli AM, editors. The Human Mitochondrial Genome: From Basic Biology to Disease. London: Academic Press; 2020. p. 353-74.
- Morán M, et al. Mitochondrial respiratory chain dysfunction: implications in neurodegeneration. Free Radic Biol Med. 2012;53:595-609.
- Chinnery PF. Primary mitochondrial disorders overview. In: Adam MP, Feldman J, Mirzaa GM, Pagon RA, Wallace SE, Bean LJH, et al., editors. GeneReviews®. Seattle: University of Washington, Seattle; 1993–2026. Available from: https://www.ncbi.nlm.nih.gov/books/NBK1224/
- Ellis CE, et al. Mitochondrial lipid abnormality and electron transport chain impairment in mice lacking α-synuclein. Mol Cell Biol. 2005;25:10190-201.
- Hekimi S, Wang Y, Noë A. Mitochondrial ROS and the effectors of the intrinsic apoptotic pathway in aging cells: the discerning killers. Front Genet. 2016;7:161. doi:10.3389/fgene.2016.00161.
- Chouchani ET, et al. Ischaemic accumulation of succinate controls reperfusion injury through mitochondrial ROS. Nature. 2014;515:431-5.
- Van de Wal MAE, et al. Ndufs4 knockout mouse models of Leigh syndrome: pathophysiology and intervention. Brain. 2022;145:45-63.
- Hoefs SJG, et al. NDUFA10 mutations cause complex I deficiency in a patient with Leigh disease. Eur J Hum Genet. 2011;19:270-4.
- Ostergaard E, et al. Respiratory chain complex I deficiency due to NDUFA12 mutations as a new cause of Leigh syndrome. J Med Genet. 2011;48:737-40.
- Marin SE, et al. Leigh syndrome associated with mitochondrial complex I deficiency due to novel mutations in NDUFV1 and NDUFS2. Gene. 2013;516:162-7.
- Adjobo-Hermans MJW, et al. NDUFS4 deletion triggers loss of NDUFA12 in Ndufs4−/− mice and Leigh syndrome patients: a stabilizing role for NDUFAF2. Biochim Biophys Acta Bioenerg. 2020;1861:148213. doi:10.1016/j.bbabio.2020.148213.
- Leshinsky-Silver E, et al. NDUFS4 mutations cause Leigh syndrome with predominant brainstem involvement. Mol Genet Metab. 2009;97:185-9.
- Piekutowska-Abramczuk D, et al. NDUFB8 mutations cause mitochondrial complex I deficiency in individuals with Leigh-like encephalomyopathy. Am J Hum Genet. 2018;102:460-7.
- Bertero E, Kutschka I, Maack C, Dudek J. Cardiolipin remodeling in Barth syndrome and other hereditary cardiomyopathies. Biochim Biophys Acta Mol Basis Dis. 2020;1866:165803. doi:10.1016/j.bbadis.2020.165803.
- Xu Y, et al. Loss of protein association causes cardiolipin degradation in Barth syndrome. Nat Chem Biol. 2016;12:641-7.
- McKenzie M, Lazarou M, Thorburn DR, Ryan MT. Mitochondrial respiratory chain supercomplexes are destabilized in Barth syndrome patients. J Mol Biol. 2006;361:462-9.
- Acehan D, Xu Y, Stokes DL, Schlame M. Comparison of lymphoblast mitochondria from normal subjects and patients with Barth syndrome using electron microscopic tomography. Lab Invest. 2007;87:40-8.
- Dudek J, et al. Cardiolipin deficiency affects respiratory chain function and organization in an induced pluripotent stem cell model of Barth syndrome. Stem Cell Res. 2013;11:806-19.
- Hagen TM, et al. Acetyl-L-carnitine fed to old rats partially restores mitochondrial function and ambulatory activity. Proc Natl Acad Sci U S A. 1998;95:9562-6.
- Schlame M, et al. Phospholipid abnormalities in children with Barth syndrome. J Am Coll Cardiol. 2003;42:1994-9.
- Ayala-Hernandez MG, et al. Respiratory complex III2 assembles complex I via toxic intermediate in mitochondrial disease. bioRxiv. 2025:doi:10.1101/2025.06.17.660237.
- Liang C, et al. Formation of I2+III2 supercomplex rescues respiratory chain defects. Cell Metab. 2025;37:441-59.e11.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny