Niniejszy protokół opisuje model mysi uszkodzenia płuc powiązanego z chorobą koronawirusową 2019, indukowane poprzez połączoną podaż donosową koronawirusa SARS-CoV-2 oraz lipopolisarydu. Model ten umożliwia badanie płucnych odpowiedzi zapalnych, upośledzonych odpowiedzi interferonów typu I oraz potencjalnych interwencji terapeutycznych.
Artykuł metodologiczny
Model mysi uszkodzenia płuc związanego z chorobą koronawirusową 2019 indukowanego przez koronawirusa zespołu ostrych naczyń oddechowych 2 i lipopolisacharyd
33 wyświetleń
⸱
11 września 2026
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Mimo powszechnego wdrażania szczepień i terapii przeciwwirusowych, zakażenia SARS-CoV-2 nadal powodują znaczną zachorowalność i śmiertelność wśród populacji wrażliwych, co podkreśla pilną potrzebę opracowania wiarygodnych modeli eksperymentalnych do badania patogenezy COVID-19, wyjaśniania mechanizmów działania leków oraz oceny potencjalnych strategii terapeutycznych. Zakażenie SARS-CoV-2 może prowadzić do ciężkiego uszkodzenia płuc, charakteryzującego się nadmierną odpowiedzią zapalną i upośledzoną odpornością przeciwwirusową zależną od interferonu typu I (IFN-I); jednak obecne modele zwierzęce mają ograniczone możliwości odwzorowania rozregulowanych odpowiedzi immunologiczno-zapalnych związanych z COVID-19. Opracowano mysi model uszkodzenia płuc związanego z COVID-19, indukowany przez SARS-CoV-2 i LPS, aby odwzorować kluczowe cechy immunopatologiczne COVID-19. Model ten indukuje wyraźne zmiany patologiczne w tkance płucnej, w tym nacieki komórek zapalnych, zniszczenie struktury pęcherzyków płucnych oraz podwyższoną ekspresję cytokin prozapalnych, którym towarzyszy upośledzona odpowiedź IFN-I. Niniejsze badanie zawiera szczegółowy opis procedur wykorzystanych do ustanowienia mysiego modelu uszkodzenia płuc indukowanego przez SARS-CoV-2 i LPS oraz systematycznie charakteryzuje ten model poprzez analizy zmian histopatologicznych w płucach, miana wirusa, cytokin zapalnych i poziomów IFN-I. Model ten stanowi platformę eksperymentalną do badania mechanizmów immunologiczno-zapalnych leżących u podstaw uszkodzenia płuc związanego z COVID-19 oraz procesów uczestniczących w regeneracji tkanki płucnej, zapewniając jednocześnie podstawę do oceny strategii terapeutycznych mających na celu złagodzenie rozregulowania immunologiczno-zapalnego i promowanie powrotu funkcji płucnych.
Wprowadzenie
Od czasu swojego pojawienia się pod koniec 2019 roku, SARS-CoV-2 wywołał globalny kryzys w obszarze zdrowia publicznego, a nieustająca ewolucja wirusa nadal stanowi wyzwanie dla istniejących szczepionek i strategii terapeutycznych1,2,3. Dlatego też dalsze badania nad uszkodzeniami płuc powiązanymi z COVID-19 są niezbędne do wyjaśnienia mechanizmów choroby i rozwoju strategii terapeutycznych.
Zakażenie SARS-CoV-2 może powodować ciężkie uszkodzenia płuc, a nawet prowadzić do zespołu ostrą niewydolności oddechowej (ARDS) i zespołu wielonarządowej niewydolności4,5. Rosnąca liczba dowodów sugeruje, że patogeneza uszkodzenia płuc powiązanego z COVID-19 jest bardzo złożona, a jej kluczową cechą jest dysregulacja odpowiedzi immunologicznej i zapalnej6,7,8,9. Z jednej strony zakażenie SARS-CoV-2 może indukować nadmierną odpowiedź zapalną, prowadząc do masowego uwalniania cytokin prozapalnych, takich jak interleukina-6 (IL-6), interleukina-1β (IL-1β) oraz czynnik martwiczy nowotworów-α (TNF-α), co wywołuje tak zwaną „burzę cytokinową”10,11, uznawaną za główny czynnik uszkodzenia płuc i progresji choroby. Z drugiej strony, w wczesnej fazie zakażenia, SARS-CoV-2 może tłumić odpowiedź IFN-I gospodarza poprzez wiele mechanizmów, co skutkuje upośledzeniem odporności przeciwwirusowej zależnej od IFN-I12,13,14. W związku z tym opóźniona odpowiedź interferonowa, której towarzyszy podwyższony poziom cytokin prozapalnych, jest uważana za charakterystyczną cechę COVID-196,15.
Obecnie dostępne modele zwierzęce COVID-19 opierają się w dużej mierze na myszach transgenicznych hACE2, szczepach wirusa zaadaptowanych do myszy lub innych gatunkach, takich jak fretki i naczelne16,17. Jednak konwencjonalne modele infekcji SARS-CoV-2 u myszy często nie odzwierciedlają w pełni cech nadmiernego stanu zapalnego charakterystycznego dla COVID-1918,19,20. LPS, agonista TLR4, indukuje silne odpowiedzi zapalne i jest powszechnie stosowany w modelach ostrego uszkodzenia płuc21. Zatem opisany w niniejszym badaniu model indukowany SARS-CoV-2 i LPS został zaprojektowany do analiz koncentrujących się na uszkodzeniu płuc związanym z COVID-19, w szczególności na mechanizmach leżących u podstaw nadmiernej aktywacji zapalnej i upośledzonych odpowiedzi immunologicznych przeciwwirusowych. W porównaniu z modelami opartymi wyłącznie na SARS-CoV-2, podejście to uwypukla cechy immunozapalne, zachowując jednocześnie kontekst infekcji wirusowej. Model ten posiada znaczny potencjał w badaniu mechanizmów immunozapalnych, a nie w modelowaniu transmisji wirusa lub pełnego naturalnego przebiegu infekcji SARS-CoV-2.
Niniejszy protokół opisuje procedurę opracowania modelu mysiego uszkodzenia płuc związanego z COVID-19, indukowanego przez SARS-CoV-2 oraz LPS. Ze względu na ograniczenia istniejących modeli w odtwarzaniu immunologiczno-zapalnej dysregulacji związanej z COVID-19, podejście to zapewnia praktyczną platformę do badania mechanizmów choroby i oceny potencjalnych strategii terapeutycznych. Model został systematycznie oceniony poprzez histopatologię płuc, miano wirusa, poziom cytokin zapalnych oraz odpowiedzi IFN-I.
Protokół
W niniejszym badaniu opracowano model mysi uszkodzenia płuc powiązanego z COVID-19 poprzez donosowe podanie SARS-CoV-2 i LPS, co stanowi stabilną i kosztowo efektywną alternatywę dla transgenicznych modeli mysich. Protokół eksperymentalny został zatwierdzony przez Sichuan Center for Disease Control and Prevention i otrzymał zgodę komisji etyki ds. zwierząt [Sichuan CDC (Animal Ethics) Approval No. 005 (2025)]. Wszystkie procedury były przeprowadzane w ścisłej zgodności z odpowiednimi wytycznymi i przepisami dotyczącymi bezpieczeństwa biologicznego.
Szczegółowe informacje na temat głównych odczynników i sprzętu znajdują się w Tabela materiałów.
1. Projekt protokołu badania
- Losowo przydziel myszy BALB/c do grupy kontrolnej lub grupy modelowej.
- W dniu 0 podaj SARS-CoV-2 donosowo myszom w grupie modelowej.
- W dniu 2 podaj LPS donosowo myszom w grupie modelowej.
- W odpowiednich punktach czasowych podaj donosowo myszom kontrolnym równą objętość soli fizjologicznej.
- W 3. dobie po zakażeniu SARS-CoV-2 uśmierć wszystkie myszy i pobierz tkankę płucną w celu walidacji modelu.
UWAGA: Schemat doświadczalny przedstawiono na Rysunku 1A.
2. Przygotowanie
- Przygotowanie zwierząt
- Należy użyć samic myszy BALB/c wolnych od swoistych patogenów (SPF) w wieku 6–8 miesięcy i o masie około 25–30 g.
- Myszy należy przypisać losowo do grupy kontrolnej lub grupy modelowej za pomocą tablicy liczb losowych, tak aby w każdej grupie znalazło się cztery zwierzęta.
- Myszy należy utrzymywać w standardowych warunkach laboratoryjnych z wolnym dostępem do pokarmu i wody.
UWAGA: Wcześniejsze badania wykazały, że starsze myszy są bardziej podatne na donosową infekcję SARS-CoV-2 niż myszy młodsze18,22. Dlatego w niniejszym badaniu wybrano starsze myszy BALB/c, aby ułatwić stworzenie modelu uszkodzenia płuc związanego z SARS-CoV-2. - Każdą mysz należy zaszczepić donosowo 100 µL zawiesiny wirusowej, co odpowiada końcowej dawce zakaźnej 4.5 x 10⁵ TCID₅₀ na mysz.
UWAGA: Wirus SARS-CoV-2 został dostarczony przez Sichuan Center for Disease Control and Prevention. Szczepem wykorzystanym w tym badaniu był wariant Omicron SARS-CoV-2 o mianie zapasu wirusa 4.5 x 10⁶ TCID₅₀/mL.
OSTRZEŻENIE: Ponieważ SARS-CoV-2 jest mikroorganizmem o wysokiej patogenności, wszystkie procedury związane z wirusem należy przeprowadzać w placówce o poziomie bezpieczeństwa biologicznego dla zwierząt 3 (ABSL-3). W przypadku stosowania różnych wariantów wirusa lub modeli zwierzęcych należy zoptymalizować dawkę zakaźną na podstawie wstępnych eksperymentów.
- Przygotowanie roztworów roboczych
- Przygotowanie roztworu zapasowego LPS: Odważyć 3 mg proszku LPS i rozpuścić go w 1 mL soli fizjologicznej. Mieszać delikatnie lub w wytrząsarce wirowej (vortex) do całkowitego rozpuszczenia, aby uzyskać roztwór zapasowy o stężeniu 3 mg/mL. Przed podaniem roztwór zapasowy należy dodatkowo rozcieńczyć solą fizjologiczną do pożądanego stężenia roboczego, zależnie od masy ciała myszy.
- Przygotowanie roztworu anestetyka: Proszek należy zrekonstytuować sterylną wodą do iniekcji dołączoną do opakowania Zoletil, aby przygotować roztwór o wymaganym stosunku masy do objętości do późniejszego użycia.
- Przygotowanie roboczego roztworu wirusa: Przed użyciem należy powoli rozmrozić 1 mL zawiesiny wirusowej SARS-CoV-2 na lodzie w komorze bezpieczeństwa biologicznego.
UWAGA: Podczas przygotowywania i stosowania wszystkich roztworów roboczych należy postępować zgodnie z instrukcjami odpowiednich producentów.
3. Podanie donosowe u myszy
- Zważ każdą mysz przed podaniem preparatów i zapisz masę ciała.
- Oblicz dawki Zoletilu oraz LPS na podstawie masy ciała każdej myszy.
- Przygotuj odpowiednie roztwory robocze i pobierz wymagane objętości za pomocą odpowiedniej strzykawki w celu ich późniejszego podania.
- Unieruchomienie myszy: Delikatnie chwyć mysz za kark kciukiem i palcem wskazującym lewej ręki, trzymając skórę za uszami i na szyi.
- Umieść zwierzę na dłoni, używając palca serdecznego i małego do zabezpieczenia grzbietu i ogona. Ułóż mysz w pozycji grzbietnej z całkowicie odsłoniętym brzuchem i ustabilizowanym ciałem.
- Dezynfekcja: Zdezynfekuj miejsce wstrzyknięcia w obszarze brzucha 75% etanolem za pomocą sterylnego patyczka bawełnianego.
- Znieczulenie: Wprowadź igłę strzykawki zawierającej Zoletil (25mg/kg) około 0,5 cm bocznie od linii środkowej dolnej części brzucha. Wprowadź igłę pod kątem 45° do jamy otrzewnej na głębokość około 2–3 mm po przebiciu skóry. Wykonaj aspirację, aby upewnić się, że w strzykawce nie ma krwi, a następnie powoli podaj środek znieczulający.
UWAGA: Zoptymalizuj dawkę środka znieczulającego na podstawie eksperymentów pilotażowych, aby zapewnić odpowiednie znieczulenie i zminimalizować śmiertelność. Unikaj wielokrotnego nakłuwania, aby zminimalizować uszkodzenia tkanek. - Potwierdzenie znieczulenia: Potwierdź stan znieczulenia, obserwując stabilny i regularny oddech bez oznak duszności lub niewydolności oddechowej.
- Instylacja donosowa SARS-CoV-2 (dzień 0): Podaj 100 µL zawiesiny wirusa SARS-CoV-2 (50 µL na każdą nozdrze) powoli, kroplami, na otwory nosowe za pomocą mikropipety lub strzykawki podczas stabilnego cyklu oddechowego i na początku wdechu.
- Zmieniaj nozdrza, aby ułatwić równomierne wdychanie. Myszy z grupy kontrolnej potraktuj taką samą objętością soli fizjologicznej, stosując tę samą procedurę.
UWAGA: Podawaj roztwór kroplami, upewniając się, że każda kropla zostanie wciągnięta do jamy nosowej przed podaniem kolejnej, aż do osiągnięcia docelowej objętości. - Postępowanie po podaniu: Utrzymuj głowę myszy w lekko uniesionej pozycji przez około 30–60 s po instylacji donosowej, aby ułatwić dostarczenie roztworu do dolnych dróg oddechowych. Wróć myszy do klatek po zaobserwowaniu oznak wybudzania ze znieczulenia i monitoruj je do pełnego odzyskania przytomności.
- Rejestracja i monitorowanie: Zapisz objętość podanego preparatu oraz numer identyfikacyjny każdej myszy. Monitoruj zwierzęta w sposób ciągły przez cały okres eksperymentalny pod kątem przeżywalności i ogólnego stanu fizjologicznego.
- Instylacja donosowa LPS (dzień 2): Podaj LPS myszom w 2. dniu po zakażeniu SARS-CoV-2. Przeprowadź podanie donosowe LPS (5 mg/kg) zgodnie z tym samym protokołem, który zastosowano przy podawaniu SARS-CoV-2. Podaj taką samą objętość soli fizjologicznej myszom kontrolnym, stosując tę samą procedurę.
UWAGA: Na tym etapie LPS oraz sól fizjologiczną podano według tej samej procedury, co inokulację SARS-CoV-2, wliczając znieczulenie i podanie donosowe.
4. Sekcja myszy i pobieranie tkanki płucnej
- W 3. dobie po infekcji SARS-CoV-2 przeprowadzić eutanazję myszy w celu pobrania tkanek. Najpierw zanieistezować zwierzęta, a następnie uśmiercić je poprzez zwichnięcie szyi. Myszy kontrolne poddać tej samej procedurze.
UWAGA: Szczegółowe procedury dotyczące zwichnięcia szyi znajdują się w Supplementary File 1. - Utrwalić eutanatyzowaną mysz w pozycji na plecach na stole sekcyjnym, tak aby obszary brzuszny i klatki piersiowej były w pełni odsłonięte. Nawilżyć futro na brzuchu 75% etanolem, aby zminimalizować zanieczyszczenie.
- Za pomocą sterylnych nożyczek ostrożnie przeciąć mostek wzdłuż obustronnych krawędzi żebrowych i stopniowo otworzyć jamę klatki piersiowej. Używając pęsety, delikatnie odsunąć tkanki i etapami wypreparować płuca z otaczających struktur klatki piersiowej, minimalizując uszkodzenia mechaniczne tkanki płucnej.
UWAGA: Należy dokładnie kontrolować orientację końcówek nożyczek podczas cięcia, aby uniknąć uszkodzenia serca, płuc i głównych struktur naczyniowych. - Wycięte tkanki płuc natychmiast umieścić w schłodzonym PBS lub soli fizjologicznej i delikatnie wypłukać 2–3 razy, aby usunąć resztki krwi i zanieczyszczenia. Nadmiar płynu z powierzchni tkanki ostrożnie osuszyć papierem filtrowanym beztkanym, unikając uciskania, aby zapobiec uszkodzeniom strukturalnym tkanki.
- Przetworzone tkanki płuc niezwłocznie zważyć na wadze elektronicznej i zapisać wyniki pomiarów.
- Wyciąć prawy płat ogonowy i natychmiast utrwalić go w 4% paraformaldehydzie w objętości 10-krotnie przekraczającej objętość tkanki w celu późniejszej analizy histopatologicznej.
OSTRZEŻENIE: Paraformaldehyd jest toksyczny; należy go obchodzić zgodnie z instytucyjnymi wytycznymi bezpieczeństwa. - Pozostałe tkanki płuc zebrać, podzielić na aликwoty do probówek kriogenicznych, szybko zamrozić w ciekłym azotcie i przechowywać w temperaturze −80 °C w celu konserwacji. Prawy płat głowowy, prawy płat środkowy oraz płat dodatkowy przeznaczyć do oznaczenia ładunku wirusowego SARS-CoV-2 i cytokin prozapalnych, a lewe płuco zarezerwować do analizy ELISA.
OSTRZEŻENIE: Ciekły azot ma ekstremalnie niską temperaturę; podczas pracy z nim należy używać odpowiednich rękawic kriogenicznych i gogli ochronnych, aby zapobiec odmrożeniom. - Po zakończeniu sekcji dokładnie oczyścić i wysterylizować wszystkie narzędzia zgodnie ze standardowymi procedurami. Padłe zwierzęta oraz odpady biologiczne zutylizować zgodnie z instytucyjnymi i regulacyjnymi wytycznymi dotyczącymi eksperymentów na zwierzętach.
5. Barwienie hematoksyliną i eozyną (HE)23
- Utkawalaj świeże tkanki płuc w 4% paraformaldehydzie w temperaturze pokojowej przez 24 h.
UWAGA: Starannie kontroluj czas utrwalania. Unikaj niewystarczającego utrwalenia, co może prowadzić do niepełnej konserwacji tkanek, oraz zbyt długiego utrwalania, które może spowodować nadmierne sieciowanie białek i wpłynąć na jakość barwienia. - Przetwarzaj utrwalone tkanki przy użyciu automatycznego procesora do tkanek w celu stopniowego odwodnienia, klarowania i infiltracji parafiną.
UWAGA: Protokół dla automatycznego procesora do tkanek znajduje się w Supplementary File 2. - Umieść tkanki zinfiltrowane parafiną w formach do zatopienia. Dodaj roztopioną parafinę i starannie zorientuj tkankę.
- Przenieś formy na płytkę chłodzącą w celu zestalenia. Wyjmij bloki parafinowe z form po całkowitym utwardzeniu.
- Zamocuj bloki parafinowe w mikrotomie i ustaw powierzchnię cięcia równolegle do noża. Wykonaj skrawki seryjne o grubości około 3–5 µm.
- Przenieś skrawki natychmiast do kąpieli wodnej o temperaturze około 45 °C w celu ich rozwinięcia i całkowitego rozprostowania.
- Pobierz skrawki na szkiełka, zanurzając pionowo jeden koniec szkiełka w wodzie; użyj pęsety, aby pomóc w prawidłowym przyleganiu skrawków do powierzchni szkiełka.
- Umieść szkiełka w suszarce do szkiełkek w temperaturze 65 °C przez około 1 h, aby zwiększyć przyczepność tkanki.
UWAGA: Dostosuj czas suszenia do rodzaju tkanki, grubości skrawka i parametrów urządzenia. Unikaj przegrzania, aby zapobiec uszkodzeniu tkanki. - Wykonaj barwienie HE wysuszonych skrawków przy użyciu automatycznego barwiarza.
UWAGA: Protokół dla automatycznego barwiarza znajduje się w Supplementary File 3. - Wyjmij zabarwione skrawki i pozostaw do wyschnięcia na powietrzu. Nałóż kroplę neutralnego medium montażowego i przykryj szkiełka szkiełkiem pokrywowym. Obejrzyj skrawki pod mikroskopem świetlnym po zastygnięciu medium montażowego.
6. Ekspresja ładunku wirusowego SARS-CoV-2 oraz cytokin prozapalnych w tkance płuc
- Homogenizacja tkanki płucnej
- Przygotować probówki do homogenizacji wolne od RNaz, dodając 4–5 stalowych kulek (o średnicy 3 mm) oraz 900 µL schłodzonego buforu do lizy jako medium homogenizującego.
UWAGA: Dostosować objętość buforu do lizy do masy tkanki, zazwyczaj w stosunku około 9 mL na 1 g tkanki. - Zważyć około 50 mg tkanki płucnej, drobno posiekać tkankę i przenieść ją do probówki do homogenizacji.
- Zhomogenizować tkankę za pomocą homogenizatora tkankowego (60 Hz, 60 s, przez 2–3 cykle z 10 s odstępami między cyklami).
UWAGA: Zoptymalizować parametry homogenizacji w zależności od urządzenia i rodzaju tkanki. - Po homogenizacji sprawdzić próbkę, aby upewnić się, że doszło do całkowitego rozbicia tkanek. Powtórzyć proces homogenizacji, jeśli widoczne są fragmenty tkanki, aż do uzyskania jednorodnego lizatu.
- Przygotować probówki do homogenizacji wolne od RNaz, dodając 4–5 stalowych kulek (o średnicy 3 mm) oraz 900 µL schłodzonego buforu do lizy jako medium homogenizującego.
- Ekstrakcja całkowitego RNA z tkanki płucnej metodą kolumnową
UWAGA: Ekstrahować całkowite RNA z tkanki płucnej, stosując metodę oczyszczania kolumnowego zgodnie z instrukcjami producenta. W razie potrzeby zastosować alternatywne metody ekstrakcji RNA zgodnie z odpowiednimi instrukcjami do produktu.- Przenieść homogenat do nowej, wolnej od RNaz probówki do mikrocentryfugi o pojemności 2 mL. Dodać 100 µL roztworu gDNA Eliminator. Szczelnie zamknąć probówkę i energicznie wstrząsać przez 15–20 s.
- Krótko otworzyć nakrętkę, dodać 180 µL chloroformu i dokładnie wymieszać na wortexie przez 15 s.
OSTRZEŻENIE: Chloroform jest lotny i toksyczny; należy go używać w dobrze wentylowanym pomieszczeniu lub w dygestorium chemicznym, stosując odpowiednie środki ochrony osobistej, aby uniknąć wdychania i kontaktu ze skórą. - Inkubować próbkę w temperaturze pokojowej przez 2 min, a następnie wirować przy 12 000 x g przez 15 min w temperaturze 4 °C.
- Ostrożnie przenieść górną fazę wodną do nowej probówki. Dodać taką samą objętość 70% etanolu i dokładnie wymieszać na wortexie.
UWAGA: Podczas pobierania fazy wodnej unikać naruszania interfazy i warstwy organicznej, aby zapewnić czystość RNA. Przejść do następnego kroku bezpośrednio po dodaniu 70% etanolu, bez wirowania. - Przenieść mieszaninę do kolumny wirówkowej i wirować przy 8 000 x g przez 15 s. Odrzucić przefiltrowany roztwór.
- Dodać 700 µL buforu płuczącego do kolumny wirówkowej i wirować przy 8 000 x g przez 15 s. Odrzucić przefiltrowany roztwór.
- Dodać 500 µL buforu płuczącego do kolumny wirówkowej i wirować przy 8 000 x g przez 15 s. Powtórzyć ten krok płukania raz.
- Przenieść kolumnę wirówkową do nowej probówki zbiorczej i wirować przy 12 000 x g przez 1 min, aby usunąć resztki buforu płuczącego.
- Umieścić kolumnę wirówkową w nowej, wolnej od RNaz probówce do mikrocentryfugi o pojemności 1,5 mL. Dodać 30 µL wody wolnej od RNaz bezpośrednio na środek membrany i wirować przy 8 000 x g przez 1 min, aby eluować RNA.
UWAGA: Dostosować objętość wody wolnej od RNaz w zakresie 30–50 µL w zależności od dalszych zastosowań. Użyć mniejszej objętości elucji, gdy wymagane jest wyższe stężenie RNA.
- Wykrywanie ładunku wirusowego SARS-CoV-2 za pomocą cyfrowego PCR z odwrotną transkrypcją (RT-dPCR)
UWAGA: Do absolutnego ilościowego oznaczenia RNA SARS-CoV-2 zastosowano jednokrokowy test RT-dPCR. Aby określić liczbę kopii RNA wirusa, użyto specyficznych zestawów starterów i sond celujących w gen nukleokapsydu (N).- Rozmrozić próbki RNA i odczynniki na lodzie.
- Przygotować mieszaninę reakcyjną RT-dPCR zgodnie z instrukcjami producenta.
- Połączyć 20 µL mieszaniny reakcyjnej RT-dPCR z 20 µL matrycy RNA. Krótko wymieszać na wortexie, krótko odwirować i przechowywać na lodzie.
- Nanieść 40 µL mieszaniny reakcyjnej do dołków chipa do cyfrowego PCR i zamknąć chip zgodnie z protokołem urządzenia.
- Przeprowadzić amplifikację, stosując następujące warunki cyklu termicznego: 50 °C przez 40 min (1 cykl), 95 °C przez 2 min (1 cykl), a następnie 40 cykli: 95 °C przez 15 s i 57 °C przez 60 s. Ustawić kanały detekcji na GREEN (250 ms) i RED (150 ms).
- Wykrywanie ekspresji cytokin zapalnych za pomocą ilościowego PCR z odwrotną transkrypcją (RT-qPCR)
- Wyznaczyć stężenie i czystość RNA za pomocą spektrofotometru UV.
- Do odwrotnej transkrypcji w celu syntezy komplementarnego DNA (cDNA) użyć 1 000 ng całkowitego RNA na reakcję, zgodnie z instrukcjami producenta.
- Przeprowadzić RT-qPCR, używając 100 ng cDNA na reakcję jako matrycy, z zastosowaniem master mixu SYBR Green PCR i specyficznych dla genów starterów. Zastosować następujące warunki cyklu: 95 °C przez 2 min, a następnie 40 cykli: 95 °C przez 5 s i 60 °C przez 10 s. Sekwencje starterów wymieniono w Tabeli 1.
UWAGA: Zoptymalizować warunki reakcji w zależności od zastosowanych odczynników i urządzeń oraz postępować zgodnie z odpowiednimi instrukcjami producenta. - Użyć GAPDH jako wewnętrznego genu referencyjnego i obliczyć względne poziomy ekspresji genów metodą 2−ΔΔCt.
7. Wykrywanie cytokin prozapalnych w tkance płucnej za pomocą enzymatycznego testu immunoabsorpcyjnego (ELISA)24
UWAGA: Zestawy ELISA należy stosować zgodnie z konkretnymi protokołami dostarczonymi przez poszczególnych producentów. W przypadku korzystania z zestawów od alternatywnych dostawców należy ściśle przestrzegać odpowiadających im instrukcji producenta.
- Zhomogenizować tkankę płuc zgodnie z powyższym opisem. Jako medium do homogenizacji należy użyć PBS lub buforu do lizy tkanek dedykowanego dla testu ELISA.
- Odwirować zhomogenizowane próbki (np. 12 000 x g, 4 °C, 10 min) i zebrać nadsącz do dalszej analizy.
- Przed użyciem doprowadzić zestaw ELISA do temperatury pokojowej przez 30 min. Wyjąć wymagane paski mikropłytki z aluminiowej folii.
- Przygotować standardy, dołki dla próbek oraz dołki kontrolne (blank) zgodnie z instrukcją producenta. Do dołków dla standardów dodać 50 µL standardów, a do dołków dla próbek 10 µL próbki oraz 40 µL buforu do rozcieńczania próbek. Dla każdego standardu i próbki wykonać dwa powtórzenia techniczne.
- Do każdego dołka dla standardu i próbki, z wyjątkiem dołków kontrolnych, dodać 100 µL przeciwciała detekcyjnego sprzężonego z peroksydazą chrzanową (HRP). Zamknąć płytkę folią przylepną i inkubować w 37 °C przez 60 min.
- Po inkubacji usunąć ciecz z każdego dołka i delikatnie opukać płytkę o papier chłonny, aby usunąć pozostałości płynu.
- Do każdego dołka dodać bufor myjący, pozostawić na 1 min, a następnie usunąć bufor. Osuszyć płytkę. Powtórzyć ten etap mycia łącznie pięć razy.
- Do każdego dołka dodać sekwencyjnie 50 µL roztworu substratu A oraz 50 µL roztworu substratu B. Delikatnie wymieszać płytkę i inkubować w 37 °C w ciemności przez 15 min w celu wywołania zabarwienia.
- Zatrzymać reakcję, dodając 50 µL roztworu stopującego do każdego dołka. W ciągu 10 min zmierzyć gęstość optyczną (OD) przy 450 nm przy użyciu czytnika mikropłytek.
- Wyznaczyć krzywą wzorcową, nanosząc koncentracje standardów (oś x) względem wartości OD (oś y), i dopasować krzywą. Obliczyć stężenia docelowych cytokin w próbkach, podstawiając wartości OD do równania krzywej wzorcowej i mnożąc przez odpowiednie czynniki rozcieńczenia.
- Wyznaczyć całkowite stężenie białka w tkance płuc za pomocą zestawu do oznaczania białek metodą BCA. Znormalizować końcowe poziomy cytokin do całkowitej zawartości białka i wyrazić wyniki jako ilość docelowej cytokiny na miligram całkowitego białka (np. pg/mg białka).
Wyniki
Walidację modelu przeprowadzono poprzez ocenę zmian histopatologicznych w płucach, miana wirusa SARS-CoV-2 oraz poziomów cytokin prozapalnych i interferonów typu I w grupach kontrolnej i modelowej.
Analiza statystyczna
Dane przedstawiono jako średnia ± błąd standardowy (SE). Do porównań między grupą modelową a kontrolną zastosowano nieparzysty test t Studenta. Test ten wybrano, ponieważ jest on odpowiedni do porównywania średnich zmiennych ciągłych w dwóch niezależnych grupach. W niniejszym badaniu myszy zostały niezależnie i losowo przydzielone do dwóch grup, co spełnia założenie o niezależności próbek. Wartość p- < 0,05 uznano za statystycznie istotną.
Zmiany masy ciała i indeksu płuc u myszy
Jak pokazano na Rysunku 1B, w porównaniu z wartościami bazowymi przed modelowaniem, masa ciała myszy w grupie modelowej uległa znacznemu obniżeniu po zakażeniu, przy statystycznie istotnej różnicy (p < 0,05). Jak pokazano na Rysunku 1C, indeks płuc myszy w grupie modelowej był znacząco wyższy w porównaniu z grupą kontrolną (p < 0,01), co jest zgodne z charakterystycznymi cechami uszkodzenia płuc. W okresie eksperymentalnym nie zaobserwowano śmiertelności, a wszystkie myszy przeżyły do punktu końcowego.
Zmiany histopatologiczne w tkance płucnej i ładunek wirusowy SARS-CoV-2 u myszy
Rysunek 2 przedstawia zmiany histopatologiczne i ładunek wirusowy w tkankach płuc myszy z obu grup. Barwienie HE wykazało, że grupa kontrolna charakteryzowała się nienaruszoną architekturą płuc, podczas gdy w grupie modelowej zaobserwowano znaczne zmiany patologiczne płuc, w tym pogrubienie przegród pęcherzyków płucnych, infiltrację komórek zapalnych oraz zaburzenia struktury pęcherzyków płucnych (Rysunek 2A). Analiza ilościowa dodatkowo potwierdziła, że zarówno wskaźnik uszkodzenia płuc, jak i wskaźnik zapalenia pęcherzyków płucnych były znacznie wyższe w grupie modelowej w porównaniu z grupą kontrolną (p < 0,001), co dowodzi skutecznej indukcji uszkodzenia płuc i odpowiedzi zapalnej (Rysunek 2B,C).
Dodatkowo w tkankach płuc grupy modelowej wykryto znaczny poziom ekspresji RNA SARS-CoV-2. W 3. dniu po zakażeniu średnia ładunek wirusowy w tkance płuc osiągnął wartość 5,5 x 10⁸ kopii/g (Rycina 2D), co wskazuje na skuteczną replikację wirusa i utrzymującą się wysoką obecność w płucach.
Zmiany w poziomach cytokin prozapalnych i IFN-I w tkance płuc myszy
Rysunek 3 przedstawia zmiany w poziomach cytokin zapalnych i IFN-I w tkance płuc myszy. Wyniki wykazały, że w porównaniu z grupą kontrolną, ekspresja mRNA oraz poziomy białek IL-6, IL-1β i TNF-α w tkance płuc grupy modelowej były znacznie zwiększone (p < 0,05) (Rysunek 3A–F), co wskazuje na wyraźną aktywację odpowiedzi zapalnej. Z kolei wyniki testów ELISA wykazały, że poziomy IFN-α i IFN-β w tkance płuc grupy modelowej były znacznie obniżone w porównaniu z grupą kontrolną (p < 0,001) (Rysunek 3G,H), co sugeruje supresję przeciwwirusowej odpowiedzi immunologicznej.
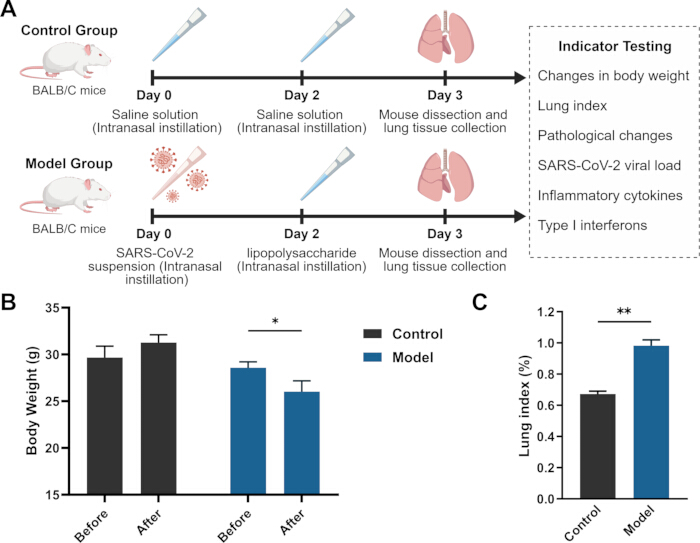
Rysunek 1: Schemat eksperymentalny oraz zmiany masy ciała i indeksu płuc u myszy. (A) Schemat eksperymentalny. (B) Zmiany masy ciała myszy. (C) Zmiany indeksu płuc myszy. Dane przedstawiono jako średnia ± SE dla każdej grupy. Do oceny różnic statystycznych między grupami wykorzystano test t Studenta. *p < 0,05; **p < 0,01; ***p < 0,001. Rysunek 1A został stworzony przy użyciu BioGDP.com25. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
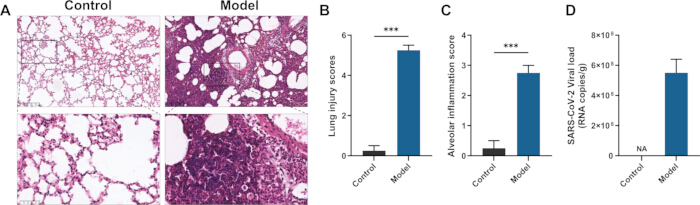
Rycina 2: Zmiany histopatologiczne i ładunek wirusowy SARS-CoV-2 w tkance płuc myszy. (A) Barwienie HE tkanki płuc myszy. (B) Ocena uszkodzenia płuc (wynik wg Smitha). (C) Ocena stanu zapalnego pęcherzyków płucnych (wynik wg Szapiela). (D) Ładunek wirusowy SARS-CoV-2 w tkance płuc. Dane przedstawiono jako średnia ± SE dla każdej grupy. Do oceny różnic statystycznych między grupami zastosowano test t Studenta. *p < 0.05; **p < 0.01; ***p < 0.001. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
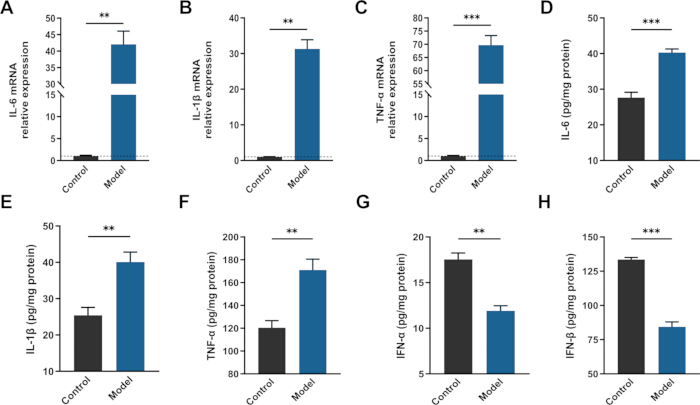
Rysunek 3: Zmiany w poziomach cytokin prozapalnych i IFN-I w tkance płuc myszy. (A–C) Względna ekspresja mRNA cytokin prozapalnych IL-6, IL-1β i TNF-α w tkance płuc myszy. (D–F) Poziomy białek IL-6, IL-1β i TNF-α w tkance płuc myszy. (G–H) Poziomy IFN-α i IFN-β w tkance płuc myszy. Dane przedstawiono jako średnia ± SE dla każdej grupy. Do oceny różnic statystycznych między grupami zastosowano test t Studenta. *p < 0,05; **p < 0,01; ***p < 0,001. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
| Starter | Sekwencja forward (5’ do 3’) | Sekwencja reverse (5’ do 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tabela 1: Sekwencje starterów użyte w niniejszym badaniu. Przedstawiono sekwencje starterów bezpośrednich i odwrotnych (5′ do 3′) dla genów docelowych oraz genów referencyjnych.
Plik uzupełniający 1 Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2 Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 3 Kliknij tutaj, aby pobrać ten plik.
Dyskusja
W niniejszym badaniu opracowano mysi model uszkodzenia płuc związanego z COVID-19 poprzez donosową aplikację SARS-CoV-2 i LPS. Wyniki wykazały, że donosowe podawanie SARS-CoV-2 i LPS indukuje silną odpowiedź zapalną połączoną z supresją sygnalizacji IFN-I. Myszy w grupie modelowej wykazywały znaczną utratę masy ciała oraz zwiększony indeks płuc, co wskazuje na wyniszczenie systemowe i zaostrzenie uszkodzenia płuc. Barwienie HE dodatkowo potwierdziło, że w grupie modelowej wystąpiło typowe rozlane uszkodzenie płuc, charakteryzujące się zaburzeniem architektury pęcherzyków płucnych i rozległą infiltracją komórek zapalnych. Ponadto w porównaniu z grupą kontrolną, w tkankach płuc grupy modelowej stwierdzono znacząco zwiększoną ekspresję kluczowych cytokin prozapalnych, w tym IL-6, IL-1β i TNF-α, podczas gdy poziomy IFN-α i IFN-β były wyraźnie obniżone. Wyniki te sugerują stan niezrównoważenia immunologicznego, charakteryzujący się nadmierną aktywacją odpowiedzi prozapalnych przy jednoczesnym stłumieniu odporności przeciwwirusowej, co dodatkowo potwierdza potencjalną wartość tego modelu w odtwarzaniu cech immunopatologicznych choroby.
Infekcja SARS-CoV-2 jest uważana za centralny czynnik napędzający rozwój uszkodzeń narządów związanych z COVID-1926,27. W niniejszym badaniu w tkankach płuc myszy modelowych wykryto wysoką wiremię, której towarzyszyło wyraźne rozproszone uszkodzenie płuc oraz naciekanie komórek zapalnych, co sugeruje, że infekcja wirusowa może być kluczowym wyzwalaczem płucnej odpowiedzi zapalnej. Zgodnie z wcześniejszymi doniesieniami, infekcja SARS-CoV-2 może indukować zmiany patologiczne w płucach oraz aktywację immunologiczną28; jednak konwencjonalne modele infekcji SARS-CoV-2 u myszy często wykazują ograniczoną odpowiedź zapalną i mogą nie odtwarzać w pełni fenotypu nadmiernego stanu zapalnego obserwowanego u pacjentów z COVID-1918,19,20. Dlatego też, w celu dokładniejszego zbadania mechanizmów leżących u podłoża dysregulacji immunologiczno-zapalnej związanej z chorobą, może być koniejna dodatkowa stymulacja odporności wrodzonej. LPS, prototypowy aktywator odporności wrodzonej, wiąże się z receptorem Toll-podobnym 4 (TLR4) i uruchamia zarówno zależne od MyD88, jak i zależne od TRIF szlaki sygnalizacyjne, aktywując tym samym kluczowe zapalne programy transkrypcyjne, takie jak NF-κB, i indukując ekspresję wielu cytokin prozapalnych29. Wcześniejsze badania wykazały również, że stymulacja LPS, zarówno samodzielnie, jak i w połączeniu z komponentami związanymi z SARS-CoV-2, może nasilać odpowiedzi zapalne i przyczyniać się do powstania fenotypów przypominających ostry uszkodzenie płuc, co uzasadnia zastosowanie LPS jako bodźca zapalnego w badaniach nad COVID-1930,31,32. W obecnym badaniu w tkankach płuc grupy modelowej zaobserwowano znacząco podwyższone poziomy IL-6, IL-1β i TNF-α, co sugeruje, że LPS działa jako wzmacniacz stanu zapalnego w kontekście infekcji SARS-CoV-2, a nie jedynie reprezentuje koinfekcję bakteryjną. W porównaniu z zapalnymi modelami opartymi wyłącznie na LPS, w których brakuje tła infekcji wirusowej, model łączony opracowany w niniejszej pracy integruje indukowane przez SARS-CoV-2 zmiany immunologiczne z zapalną aktywacją zależną od LPS, zapewniając tym samym bardziej kompleksową platformę do badania uszkodzeń płuc związanych z COVID-19.
IFN-I są kluczowymi cząsteczkami efektorowymi przeciwwirusowej odporności gospodarza i pełnią szerokie funkcje przeciwwirusowe poprzez indukcję szerokiego zakresu genów stymulowanych przez interferon (ISGs)33. Wykazano jednak, że SARS-CoV-2 znosi działanie sygnałów IFN-I poprzez wiele mechanizmów, w tym interferencję z transdukcją sygnałów pośredniczoną przez receptory rozpoznające wzorce (PRR), supresję aktywacji czynnika regulacyjnego interferonu (IRF) oraz blokadę sygnałów JAK-STAT w dalszej kaskadzie, co upośledza obronę przeciwwirusową gospodarza14,34. W niniejszym badaniu w tkankach płuc grupy modelowej zaobserwowano znacznie obniżone poziomy IFN-α i IFN-β, co wskazuje, że pod wpływem synergistycznego działania infekcji wirusowej i stymulacji LPS gospodarz wykazywał nie tylko nadmierną aktywację zapalną, ale także towarzyszącą jej supresję odporności przeciwwirusowej. Taką dysregulację immunologiczną uznaje się za jedną z kluczowych cech immunologicznych w rozwoju i przebiegu COVID-198. Zatem obecny model częściowo odwzorowuje ten złożony proces patologiczny, stanowiąc wartościowe narzędzie eksperymentalne do dalszych badań nad dysregulacją immunologiczną związaną z COVID-19 oraz do opracowywania powiązanych interwencji terapeutycznych.
Model mysi COVID-19 ustanowiony w niniejszym badaniu, oparty na połączonej administracji SARS-CoV-2 i LPS, jest w stanie odtworzyć kluczowe cechy patologii choroby, w tym podwyższony poziom cytokin prozapalnych i supresję sygnalizacji IFN-I, naśladując tym samym częściowo nierównowagę immunologiczną obserwowaną w uszkodzeniach płuc związanych z COVID-19. W porównaniu z modelami pojedynczej infekcji wirusowej, to zintegrowane podejście wprowadza egzogenny bodziec odporności wrodzonej w celu wzmocnienia odpowiedzi zapalnej istotnej dla przebiegu choroby, co umożliwia badanie procesów patologicznych związanych z nadmiernym stanem zapalnym i upośledzoną odpornością przeciwwirusową. W związku z tym model ten może być wartościowy w ocenie potencjalnych strategii przeciwzapalnych, immunomodulujących i naprawczych w płucach in vivo, w szczególności tych ukierunkowanych na dysregulację odporności, a nie tylko na samą replikację wirusa.
Należy jednak zwrócić uwagę na kilka ograniczeń niniejszego badania. Po pierwsze, LPS indukuje stan zapalny głównie poprzez aktywację TLR4, co nie odzwierciedla w pełni złożonych interakcji wirus-gospodarz występujących w klinicznym przebiegu COVID-19 i może zmieniać odpowiedź zapalną. Po drugie, choć w fazie wstępnej optymalizacji przeprowadzono eksperymenty porównawcze z grupami otrzymującymi wyłącznie SARS-CoV-2 oraz wyłącznie LPS, dane te nie zostały zawarte w manuskrypcie. Przyszłe badania będą służyć dalszej ocenie indywidualnych i połączonych efektów SARS-CoV-2 i LPS, aby lepiej określić wkład każdego z tych komponentów. Po trzecie, model ten został zaprojektowany w celu odtworzenia kluczowych cech immunopatologicznych uszkodzenia płuc związanego z COVID-19, w szczególności dysregulacji immunozapalnej, a nie pełnego naturalnego przebiegu infekcji SARS-CoV-2. Wreszcie, mimo że dawka SARS-CoV-2 i stężenie LPS zostały określone na podstawie wstępnych eksperymentów optymalizacyjnych, różnice w szczepach myszy, wariantach wirusa, metodach testowania i warunkach eksperymentalnych mogą wpływać na powtarzalność modelu i wymagać dalszej walidacji w różnych środowiskach badawczych. W zoptymalizowanych warunkach opisanych w niniejszym protokole ogólny odsetek sukcesu w ustanowieniu modelu wynosił około 90%; wartość ta może się jednak różnić w zależności od warunków eksperymentalnych. Przyszłe badania mogłyby dalej optymalizować ten model poprzez wprowadzenie różnych wariantów SARS-CoV-2, genetycznie zmodyfikowanych szczepów myszy lub zaawansowanych metod profilowania immunologicznego, takich jak analiza transkryptomiczna pojedynczych komórek, aby lepiej scharakteryzować interakcje wirus-gospodarz i zidentyfikować cele terapeutyczne. Działania te mogą dodatkowo zwiększyć relewantność translacyjną tego modelu w badaniach nad COVID-19.
Oświadczenia
Autorzy nie zgłaszają żadnych konfliktów interesów.
Podziękowania
Badania te były wspierane przez Narodową Fundację Nauk Naturalnych Chin (82374291); Program Nauki i Technologii prowincji Sichuan (2024NSFJQ0059); Specjalny przedmiot badań naukowych Administracji Medycyny Tradycyjnej Chińskiej w Sichuan (2024zd005); Projekt wiodących talentów naukowo-technologicznych „Tianfu Qingcheng Plan” z 2022 r. (Chuan Qingcheng nr 1090); Wspólny Fundusz Innowacji Komisji Zdrowia Chengdu i Uniwersytetu Medycyny Tradycyjnej Chińskiej w Chengdu (WXLH202403091).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Automatyczna kasiecia do obróbki tkanek | Dakewe Biotech Co., Ltd. | HP300 | Stosowane do odwadniania tkanek. |
| Automatyczny barwarka | Leica Biosystems | LEICA ST5010 | Stosowane do barwienia HE. |
| Wirówka | DLAB Scientific | D3024R | Stosowane do wirowania próbek lub odczynników. |
| Kąpiel wodna o stałej temperaturze | Shanghai LICHEN-BX Instrument Technology Co., Ltd. | HH-6 | Stosowane w łaźniach wodnych o stałej temperaturze. |
| System cyfrowego PCR | QIAGEN | QIAcuity One | Stosowane w RT-dPCR. |
| TransScript All-in-One First-Strand cDNA Synthesis SuperMix do qPCR (jednoetapowe usuwanie gDNA) | TransGen Biotech Co., Ltd. | AT341 | Stosowane do odwrotnej transkrypcji. |
| Roztwór eozyny | BASO | BA4024 | Stosowane do barwienia histologicznego. |
| System do fluorescencyjnego ilościowego PCR | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | Stosowane do RT-qPCR. |
| Roztwór hematoksyliny | BASO | BA4041 | Stosowane do barwienia histologicznego. |
| oprogramowanie IBM SPSS Statistics | IBM Corp., Armonk, NY, USA | wersja 22.0 | Wykorzystywane do analizy statystycznej. |
| Lipopolisacharydy z Escherichia coli O55:B5 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | Stosowane w modelowaniu mysim. |
| Czytnik płytek mikrotytułowych | Molecular Devices | SpectraMax Plus 384 | Stosowane do testu ELISA. |
| mysi IFN-α ZESTAW DO TESTU ELISA | ZCIBIO Technology Co., Ltd. | ZC-37863W | Stosowane do wykrywania IFN-α poziomy w tkance płuc myszy. |
| mysi IFN-β Zestaw ELISA | ZCIBIO Technology Co., Ltd. | ZC-37887W | Stosowane do wykrywania IFN-β poziomy w tkance płucnej myszy. |
| Mysia IL-1β ZESTAW ELISA | ZCIBIO Technology Co., Ltd. | ZC-37974W | Stosowane do wykrywania IL-1β poziomy w tkance płucnej myszy. |
| Zestaw ELISA dla mysiej IL-6 | ZCIBIO Technology Co., Ltd. | ZC-37988W | Stosowane do oznaczania poziomu IL-6 w tkance płuc myszy. |
| TNF myszy-α ZESTAW DO TESTU ELISA | ZCIBIO Technology Co., Ltd. | ZC-39024W | Stosowane do wykrywania TNF-α poziomy w tkance płucnej myszy. |
| Zestaw do jednoetapowej RT-PCR dla cyfrowego PCR | QIAGEN | 4829104 | Stosowane do cyfrowego PCR. |
| Urządzenie do zatapiania w parafinie | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Stosowane do zatapiania tkanki płuca myszy w parafinie. |
| Zestaw QuantiNova SYBR PCR Mix Kit | QIAGEN | 1129280 | Stosowane do RT-qPCR. |
| Zestaw RNeasy Plus Universal Mini Kit | QIAGEN | 1062832 | Stosowany do całkowitej ekstrakcji RNA. |
| Krojarka | Leica Biosystems | LEICA RM2235 | Stosowane do skrawków parafinaowych. |
| Kule ze stali nierdzewnej do homogenizatora tkanek | Beyotime Biotechnology | F6621 | Stosowane do homogenizacji tkanki płucnej. |
| Kumpulan starterów XG Pool 1.0 do cyfrowego PCR | QIAGEN | 4828104 | Stosowane do cyfrowego PCR. |
| Zoletil 50 | VIRBAC | BN9VS7A | Stosowane do znieczulania myszy. |
Bibliografia
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.