Ustandaryzowany schemat przygotowania próbek kostnych utrwalonych w formalinie i zatopionych w parafinie do transkryptomiki przestrzennej obejmuje 10-dniowy etap dekalcyfikacji w EDTA w celu zachowania integralności RNA. Kluczowe punkty kontroli jakości pomagają określić, czy próbki spełniają wymagania dla dalszej analizy przestrzennej ekspresji genów.
Artykuł metodologiczny
Przygotowanie utrwalonych w formalinie i zatopionych w parafinie próbek szpiku kostnego do transcriptomiki przestrzennej z wykorzystaniem dekalcyfikacji opartej na EDTA
W tym artykule
Podsumowanie
Streszczenie
Szpik kostny (BM) to złożona i dynamiczna struktura, w której relacje przestrzenne wpływają na zachowanie, sygnalizację i funkcję komórek. Z tego powodu zrozumienie pełnej dynamiki oddziaływań komórkowych wymaga zastosowania komplementarnych technik przestrzennych, które zachowują i mapują architekturę populacji komórek in situ. Pomimo znaczących postępów w technologiach jednokomórkowych, które przyczyniły się do zrozumienia heterogeniczności transkrypcyjnej zdrowej i chorobowo zmienionej tkanki szpiku kostnego, organizacja przestrzenna różnych typów komórek, specyficzne dla niszy programy regulacyjne oraz ich interakcje wciąż wymagają dalszych badań. Niedawny rozwój transkryptomiki przestrzennej umożliwił bezstronną analizę ekspresji genów z kontekstem przestrzennym w różnych tkankach, co czyni te technologie komplementarnymi wobec metod jednokomórkowych, którym brakuje rozdzielczości przestrzennej. Choć transkryptomika przestrzenna jest szeroko stosowana w tkankach miękkich, jej wykorzystanie w tkankach zmineralizowanych, takich jak szpik kostny, pozostaje ograniczone ze względu na trudności związane z przetwarzaniem tkanki kostnej. Protokół przedstawiony w niniejszym opracowaniu był stosowany do przygotowania próbek utrwalonych w formalinie i zatopionych w parafinie (FFPE) z tkanek zdrowych i chorych myszy oraz ludzi. Uwzględniono 10-dniowy etap dekalcyfikacji oparty na kwasie etylenodiaminotetraoctowym (EDTA), aby zachować integralność RNA i umożliwić zastosowanie transkryptomiki przestrzennej w próbkach kości długich. Protokół ten opisuje przygotowanie próbek szpiku kostnego do analizy transkryptomicznej przestrzennej, w tym przetwarzanie tkanki, jej utrwalanie i krojenie, a także niezbędne etapy oceny jakości, takie jak ocena integralności skrawków, morfologii tkanki oraz jakości RNA. Schemat postępowania wspiera również identyfikację typów komórek i integrację z danymi transkryptomicznymi z poziomu pojedynczych komórek w celu scharakteryzowania składu komórkowego, zdefiniowania interakcji międzykomórkowych oraz wizualizacji rozkładu przestrzennego komórek heterogennych transkrypcyjnie w stanach zdrowych i chorobowych. Ogólnie rzecz biorąc, ten schemat postępowania przygotowuje w pełni zmineralizowane tkanki zdrowe i nowotworowe do analizy transkryptomicznej przestrzennej przy jednoczesnym zachowaniu architektury szpiku kostnego.
Wprowadzenie
Szpik kostny (BM) jest wysoce złożonym i przedzielonym organem, który stanowi główne miejsce hematopoezy oraz dojrzewania komórek odpornościowych1,2. Ta heterogeniczna tkanka składa się z różnorodnych linii komórek hematopoetycznych, mezenchymalnych, endotelialnych i odpornościowych, które współistnieją w wysoce wyspecjalizowanej i zorganizowanej niszy trójwymiarowej3,4. W obrębie tej niszy każda populacja komórek zajmuje odrębne obszary anatomiczne, a kontekst przestrzenny odgrywa fundamentalną rolę w regulowaniu zachowania, sygnalizacji i funkcji komórek4,5. Bliskość fizyczna konkretnych struktur, takich jak kość beleczkowata czy sieci naczyniowe, steruje kluczowymi procesami fizjologicznymi, w tym utrzymaniem stanu spoczynku komórek macierzystych krwi (HSC) oraz przebudową kości6,7. W konsekwencji to dynamiczne mikrośrodowisko oraz ściśle regulowane interakcje między jego komponentami komórkowymi i zrębowymi kształtują sieci regulacyjne, które utrzymują homeostazę i wpływają na progresję nowotworów hematologicznych8,9,10,11,12,13.
Postępy w sekwencjonowaniu RNA pojedynczych komórek (scRNA-seq) zrewolucjonizowały nasze rozumienie różnorodności komórkowej szpiku kostnego (BM), umożliwiając odkrycie wcześniej nierozpoznanych podtypów komórek oraz przewidywanych oddziaływań między nimi w obrębie niszy3,10,11,12,14,15,16. Jednakże transkryptomika pojedynczych komórek, choć dostarcza informacji o wysokiej rozdzielczości na temat poszczególnych komponentów niszy krwiotwórczej, jest z natury ograniczona procesem trawienia tkanki, który oddziela komórki od ich naturalnego środowiska i potencjalnie zmienia ich stan natywny17, a także brakiem kontekstu przestrzennego definiującego organizację tkanki kostnej4,18. Utrata kontekstu pozycyjnego uniemożliwia jednoznaczne określenie miejsca bytowania konkretnych, transkrypcyjnie odrębnych populacji lub sposobu, w jaki oddziałują one z sąsiednimi komórkami19. Ponadto gęsta tkanka kostna jest często dysocjowana tylko częściowo, co prowadzi do niedoreprezentowania kluczowych populacji komórek, takich jak osteocyty i adipocyty, w zbiorach danych scRNA-seq oraz do stronniczego przedstawienia heterogeniczności tkanki20,21. Transkryptomika przestrzenna pozwala na badanie ekspresji genów in situ, w przestrzennych przekrojach tkanki, co umożliwia odzyskanie informacji kontekstowych i rozwiązanie ograniczeń technologii pojedynczych komórek8,19,22,23,24,25,26. Technologia ta stanowi istotny postęp w tej dziedzinie, ponieważ umożliwia precyzyjne pozycjonowanie przestrzenne i analizę organizacji strukturalnej różnych populacji komórek tworzących BM, co jest niezbędne do zrozumienia ich oddziaływań i funkcji w natywnym mikrośrodowisku8,26. Co więcej, w kontekście chorób transkryptomika przestrzenna pozwala badaczom i klinicystom wypełnić lukę między tradycyjną patologią a genomiką wysokoprzepustową, umożliwiając nałożenie danych molekularnych na obrazy morfologiczne1,8. Technologie transkryptomiki przestrzennej można podzielić na dwie główne grupy: metody oparte na sekwencjonowaniu oraz metody oparte na obrazowaniu17,24. Platformy oparte na sekwencjonowaniu, takie jak Visium, Curio Seeker, GeoMx Digital Spatial Profiler (GeoMx DSP), Stereo-seq, Deterministic Barcoding in Tissue sequencing (DBiT-seq) oraz otwarta platforma Open-ST, wychwytują mRNA na matrycach lub koralikach z kodowaniem przestrzennym przed sekwencjonowaniem nowej generacji. Metody oparte na obrazowaniu, w tym Multiplexed Error-Robust Fluorescence in Situ Hybridization (MERFISH), Molecular Cartography, RNAscope, CosMX i Xenium, bezpośrednio wizualizują transkrypty in situ poprzez multipleksową hybrydyzację lub chemię sond typu padlock27,28. Alternatywnie platformy te można sklasyfikować jako ukierunkowane lub nieukierunkowane, w zależności od tego, czy wymagają one detekcji opartej na sondach17,24.
Metody transkryptomiki przestrzennej są powszechnie stosowane w przypadku tkanek miękkich, takich jak mózg, serce i wątroba, gdzie przygotowanie nienaruszonych przekrojów histologicznych jest proste29,30,31. Z kolei wdrożenie transkryptomiki przestrzennej w badaniach kości jest znacznie trudniejsze ze względu na ich zmineralizowaną naturę, która wymaga procesu dekalcyfikacji32,33 – kontrolowanego usuwania fosforanu wapnia, aby tkanka stała się wystarczająco miękka do cięcia i późniejszych analiz histologicznych lub molekularnych8,20,23,34. Tradycyjne metody dekalcyfikacji rutynowo stosowane w praktyce klinicznej opierają się zazwyczaj na silnych roztworach kwasowych, takich jak kwas solny, azotowy, mrówkowy lub fosforowy, które poważnie degradują integralność RNA i zaburzają morfologię komórkową35,36. Taka degradacja molekularna obniża stosunek sygnału do szumu w testach przestrzennych, co często prowadzi do nieakceptowalnie niskich wskaźników wykrywania genów w porównaniu z tkankami miękkimi8,10. Ograniczenie to podkreśla potrzebę opracowania zestandaryzowanych procedur dekalcyfikacji, które niezawodnie zachowują integralność mRNA w próbkach zmineralizowanych na potrzeby analiz przestrzennych opartych na sekwencjonowaniu8,20.
Niniejszy protokół przedstawia zestandaryzowany schemat przygotowania utrwalonych w formalinie i zatopionych w parafinie (FFPE) próbek szpiku kostnego (BM) do transkryptomiki przestrzennej, zastosowany wcześniej przez Muiños-Lopez et al.8. Schemat obejmuje 10-dniowy etap dekalcyfikacji z wykorzystaniem kwasu etylenodiaminooctowego (EDTA) przy kontrolowanym pH. W przeciwieństwie do agresywnych kwasów, EDTA działa jako łagodny chelator, który zachowuje strukturę mikroskopową i utrzymuje jakość kwasów nukleinowych, co wspiera jego zastosowanie w aplikacjach molekularnych8,20,33,36,37. Jako dowód koncepcji, protokół został wdrożony na próbkach tkanki kostnej z modeli mysich zdrowych oraz z szpiczakiem mnogim (MM), a także na ludzkich próbkach BM od osób zdrowych i chorych, a następnie próbki te zostały zsekwencjonowane na platformie Visium Spatial Gene Expression38. Schemat obejmuje zestandaryzowane procedury pobierania tkanek z ludzkich i mysich próbek kości, utrwalanie, dekalcyfikację, odwodnienie, zatopienie w parafinie i krojenie, a następnie kompleksowy potok kontroli jakości obejmujący ocenę integralności skrawków, barwienie hematoksyliną i eozyną (H&E), ocenę jakości RNA (DV200) oraz opcjonalną immunofluorescencję (IF) w celu weryfikacji typów komórek. Kroki przygotowawcze te gwarantują, że do dalszych etapów transkryptomiki przestrzennej, w tym do wstępnego przetwarzania skrawków tkanki, konstrukcji bibliotek, sekwencjonowania oraz późniejszej kontroli jakości i analizy danych, trafią jedynie wysokiej jakości skrawki.
Niniejsza zestandaryzowana procedura wspiera przygotowanie i ocenę jakości próbek szpiku kostnego (BM) pochodzenia ludzkiego i mysiego do analizy transkryptomicznej przestrzennie rozdzielczej. Ma ona na celu ułatwienie badań nad specyficznymi dla nisz programami regulacyjnymi w zaburzeniach hematologicznych i szkieletowych.
Protokół
Wszystkie eksperymenty na zwierzętach przeprowadzono zgodnie z dyrektywą europejską 2010/63/UE w sprawie ochrony zwierząt wykorzystywanych do celów naukowych, a protokoły zostały zatwierdzone przez Komisję Etyki ds. Doświadczeń na Zwierzętach Uniwersytetu w Navarze (Comité de Ética para la Experimentación Animal; protokoły CEEA082-20 i CEEA039-20). Opieka nad zwierzętami, ich obchodzenie oraz eutanazja były realizowane zgodnie z hiszpańskim ustawodawstwem w celu zminimalizowania bólu i cierpienia.
Badanie z udziałem ludzi zostało zatwierdzone przez Komisję Etyki Badawczej Wydziału Medycyny Uniwersytetu w Nawarrze (Comisión de Ética de Investigación, CEI; projekty 2022.100mod1 oraz 2023.172) oraz Komisję Etyki Badawczej Służby Zdrowia Nawarry (CEIm–Departamento de Salud de Navarra; PI_2022/92 MS-1). Wszystkie procedury z udziałem uczestników byli ludzi przeprowadzono zgodnie z zasadami etycznymi Deklaracji Helsińskiej. Dane osobowe były przetwarzane poufnie, zgodnie z hiszpańską ustawą organiczną 3/2018 o ochronie danych osobowych i gwarancjach praw cyfrowych oraz hiszpańską ustawą 14/2007 o badaniach biomedycznych.
UWAGA: Szczegółowa lista odczynników i sprzętu użytych w tym badaniu znajduje się w Tabeli materiałów. Kompleksowy schemat postępowania eksperymentalnego w celu wdrożenia transkryptomiki przestrzennej w tkankach kostnych przedstawiono schematycznie na Rysunku 1; proces ten podzielono na trzy fazy operacyjne: pobieranie próbek, kontrolę jakości (QC) oraz profilowanie transkryptomiczne przestrzenne. Pobieranie próbek obejmuje gromadzenie fragmentów kości ludzkich lub mysich, a następnie ich utrwalenie, dekalcyfikację w EDTA, odwadnianie, zatopienie w parafinie oraz krojenie i przygotowanie preparatów na szkiełkach. Faza QC służy do oceny integralności histologicznej i stopnia zachowania RNA. Zwalidowane skrawki kości są następnie poddawane permeabilizacji tkanki bezpośrednio na szkiełku, przygotowaniu bibliotek, sekwencjonowaniu oraz analizie danych.
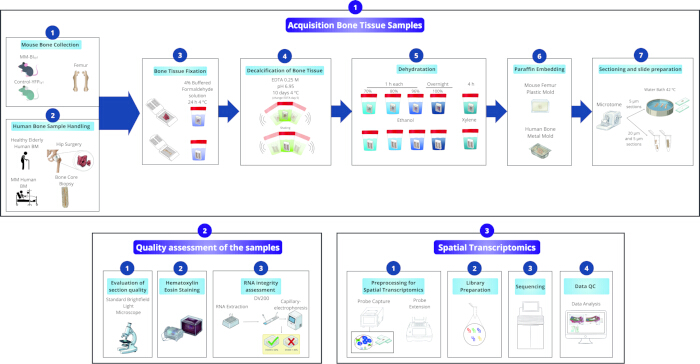
Rysunek 1: Schemat pobierania próbek i przygotowania tkanki kostnej mysiej i ludzkiej z wykorzystaniem EDTA. Kości udowe myszy oraz próbki kości ludzkich są pobierane, fiksowane, dekalcyfikowane w EDTA, dehydratowane, zatapiane w parafinie i cięte na skrawki. Jakość próbek jest oceniana za pomocą barwienia H&E oraz oceny integralności RNA (DV200), po czym następuje wstępne przetwarzanie tkanki do transkryptomiki przestrzennej, przygotowanie bibliotek, sekwencjonowanie i kontrola jakości danych. Skróty: BM = szpik kostny; DV200 = procent fragmentów RNA dłuższych niż 200 nukleotydów; EDTA = kwas etylenodiaminotetraoctowy; H&E = hematoksylina i eozyna; QC = kontrola jakości. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
1. Pozyskiwanie i przetwarzanie próbek tkanki kostnej
- Pobieranie kości myszy
- Zanurzyć zwierzęta w 5% izofluranie i potwierdzić utratę odruchów.
- Po pełnym znieczuleniu przeprowadzić eutanazję poprzez zwichnięcie stawów szyjnych zgodnie z wytycznymi instytucjonalnymi i regulacyjnymi.
UWAGA: Eutanazja musi być przeprowadzona przez przeszkolony personel, a śmierć musi zostać potwierdzona przed przystąpieniem do pobierania tkanek. - Zdezynfekować skórę, rozpylając 70% etanol na grzbiet myszy, a następnie za pomocą nożyczek chirurgicznych wykonać niewielkie nacięcie, aby ostrożnie usunąć skórę i odsłonić kończyny tylne.
- Wypreparować kończyny tylne, przecinając je powyżej stawu biodrowego, i przenieść je do probówki 50 mL zawierającej 10 mL zimnego roztworu DPBS (Dulbecco’s Phosphate Buffered Saline). Umieścić probówkę na lodzie.
- Usunąć przylegające mięśnie i tkankę łączną za pomocą sterylnej pęsety i skalpela.
- Przenieść kości do sterylnego pojemnika 50 mL wypełnionego czystym, zimnym DPBS, a następnie umieścić pojemnik na lodzie.
- Niezwłocznie przystąpić do fiksacji tkanek w celu zachowania ich integralności.
- Obsługa próbek kości ludzkich
- Otrzymać biopsje rdzeniowe kości lub chirurgiczne fragmenty kości w sterylnych pojemnikach 100 mL.
- Przenieść fragmenty kości do czystego, sterylnego pojemnika 100 mL wypełnionego zimnym DPBS, a następnie umieścić go na lodzie.
- Niezwłocznie przystąpić do fiksacji próbek w celu zachowania integralności tkanek.
OSTROŻNIE: Próbki ludzkie muszą być obsługiwane w warunkach BSL 2.
- Fiksacja tkanki kostnej
- Wziąć pojemnik 50 mL lub 100 mL z próbką kości i wylać DPBS.
- Oznaczyć kasety plastikowe i umieścić próbki kości w oddzielnych kasetach. Szczelnie zamknąć pokrywy, aby zapobiec utracie tkanek podczas dalszego przetwarzania.
UWAGA: W przypadku próbek mysich umieścić jedną kość na kasetę. W przypadku próbek kości ludzkich, jeśli jest to konieczne, użyć sterylnego skalpela, aby pociąć tkankę na fragmenty wystarczająco małe, by zmieściły się w standardowych kasetach, i umieścić jeden fragment na kasetę. Jeśli próbki kości ludzkich są zbyt twarde, aby można je było pociąć na tym etapie, można je pozostawić w całości i przenieść do roztworu dekalkalizującego; po dekalkalizacji zmiękczoną tkankę można pociąć na fragmenty o odpowiedniej wielkości i umieścić w oznaczonych kasetach. - Dodać 4% buforowany roztwór formaldehydu w stosunku próbki do fiksatywa 1:20 i inkubować próbkę przez 24 h w temperaturze 4 °C.
OSTROŻNIE: Fiksatywem należy posługiwać się w dygestorium chemicznym ze względu na jego toksyczność i lotne opary.
UWAGA: Należy unikać nadmiernej fiksacji (>48 h), co obniża integralność RNA w procesach FFPE39.
- Dekalkalizacja zmineralizowanej tkanki kostnej
- Wylać formalinę i wypłukać próbkę kości wodą ultrapure. Płukać wodą, krótko mieszać i wylać, aby usunąć wszelkie pozostałości formaliny.
- Przygotować 0,25 M roztwór EDTA w wodzie ultrapure i dostosować pH do 6,95.
UWAGA: Chociaż w tradycyjnych protokołach dekalkalizacji pH EDTA jest często dostosowywane do 8,0, w tym procesie stosuje się EDTA o pH około 6,95, aby zapewnić efektywną chelatację przy jednoczesnym zachowaniu morfologii tkanki i jakości RNA8. - Dodać roztwór EDTA do pojemnika z próbką kości i inkubować przez 10 dni w temperaturze 4 °C przy łagodnym mieszaniu.
UWAGA: Dla próbek mysich zazwyczaj wystarcza około 50 mL roztworu EDTA. Dla próbek kości ludzkich zazwyczaj stosuje się około 100 mL. Objętość tę można jednak dostosować do wielkości kości, aby zapewnić całkowite zanurzenie i skuteczną dekalkalizację. - Po 5 dniach dekalkalizacji wylać roztwór EDTA i zastąpić go taką samą objętością świeżego EDTA, ponieważ zdolność chelatująca z czasem ulega nasyceniu. Kontynuować inkubację w tych samych warunkach.
- Po 10 dniach inkubacji wylać roztwór EDTA i ocenić, czy dekalkalizacja została zakończona.
- Wykonać niewielkie nacięcie sterylnym skalpelem lub wbić cienką sterylną igłę w narożnik lub region peryferyjny tkanki, zawsze wybierając obszar o niskim znaczeniu analitycznym, aby uniknąć zmiany regionów zainteresowania. Umieścić kość na sterylnej szalce Petriego, aby ustabilizować próbkę podczas cięcia lub wbijania igły. Jeśli tkankę można łatwo pociąć lub igła przechodzi przez nią z minimalnym oporem, próbka jest odpowiednio zdekalkalizowana.
- W przypadku kości udowych myszy, delikatnie wygiąć kość pęsetą, aby ocenić jej elastyczność, co jest wiarygodnym wskaźnikiem całkowitego usunięcia minerałów.
UWAGA: Czas trwania etapu dekalkalizacji zależy od wielkości i grubości próbki kości, a także od użytej objętości EDTA. Jeśli kość pozostaje twarda po początkowym okresie inkubacji, należy kontynuować dekalkalizację do czasu, aż tkanka stanie się wystarczająco miękka, by można ją było łatwo pociąć. Nadmierne przedłużenie tego etapu może pogorszyć jakość tkanki i integralność RNA, dlatego przedłużenie powinno być ograniczone do minimalnego czasu wymaganego do uzyskania odpowiedniego zmiękczenia20.
- Odwadnianie
- Wypłukać, dodając wodę ultrapure do pojemnika z próbką kości, a następnie inkubować przez 5 min w temperaturze 4 °C z mieszaniem.
- Wylać wodę i zastąpić ją 70% roztworem etanolu. Inkubować przez 1 h w temperaturze 4 °C.
UWAGA: Ten etap może służyć jako punkt przerwania procesu. Próbki można przechowywać w 70% etanolu w temperaturze 4 °C przed przejściem do kolejnych kroków. Maksymalny czas przechowywania nie został zwalidowany eksperymentalnie w tym protokole, dlatego użytkownicy powinni postępować zgodnie ze standardowymi praktykami swojego laboratorium. - Sekwencyjnie odwadniać próbkę w roztworach etanolu o rosnącym stężeniu (70%, 80%, 96%; po 1 h każdy w 4 °C), a następnie w 100% etanolu przez noc w temperaturze 4 °C.
- Wylać 100% etanol i zastąpić go ksylenem. Inkubować przez 4 h w temperaturze pokojowej (RT).
- Wylać ksylen i umieścić kasetę z próbką w naczyniu zawierającym roztopioną, czystą parafinę. Inkubować w roztopionej parafinie przez noc w temperaturze 60 °C.
UWAGA: Można zastosować krótsze czasy infiltracji w przypadku dostępności systemów przetwarzania wspomaganych próżniowo, ponieważ urządzenia te ułatwiają bardziej efektywną penetrację parafiny40,41,42.
OSTROŻNIE: Wszystkie etapy obejmujące ksylen i roztwory etanolu o różnych stężeniach muszą być wykonywane w dygestorium chemicznym, aby zapewnić odpowiednią wentylację i zminimalizować ekspozycję na toksyczne i łatwopalne opary.
- Zalewanie parafiną
UWAGA: Oczyścić powierzchnie stacji do zalewania roztworem do dekontaminacji RNaz, aby zapobiec degradacji RNA.- Włączyć stację do zalewania i rozgrzać zbiornik z parafiną, kąpiel parafinową dla kaset, kąpiel parafinową dla form oraz płytę grzewczą do form do 60 °C. Aktywować płytę chłodzącą, aby ostygła przed zalewaniem.
- Pozwolić parafinie całkowicie się roztopić, a dopiero wtedy umieścić kasety zawierające zainfiltrowane parafiną próbki w kąpieli parafinowej dla kaset. Inkubować przez 2 h, aby zapewnić całkowite usunięcie ksylenu przed zalewaniem.
- Umieścić wszystkie niezbędne formy w kąpieli parafinowej dla form.
UWAGA: Dla próbek ludzkich stosować standardowe metalowe formy do zalewania. Dla próbek mysich stosować plastikowe formy do zalewania kompatybilne z platformą Visium, które posiadają kwadratową wnękę o wymiarach odpowiednich do prawidłowego rozmieszczenia sekcji na slajdach Visium. Ponieważ całe kości mysie nie mieszczą się w pełni w kwadratowej wnęce tych form, należy pociąć kości bezpośrednio przed zalewaniem za pomocą sterylnego skalpela, aby uzyskać fragmenty o odpowiedniej wielkości. W zależności od wymiarów w jednej formie można zalać jeden lub dwa fragmenty kości. - Dodać cienką warstwę bazową świeżej parafiny, dozując roztopioną parafinę z centralnego wylotu stacji do zalewania.
- Otworzyć kasetę i delikatnie przenieść tkankę z kasety do formy za pomocą ciepłej pęsety.
- Umieścić wypełnioną parafiną formę na płycie grzewczej i, dopóki parafina pozostaje w stanie ciekłym, zorientować tkankę w pożądanej płaszczyźnie cięcia za pomocą ciepłej pęsety.
- Umieścić formę na chłodnej powierzchni stacji do zalewania, aby krótko utrwalić pozycję fragmentu kości.
- Wypełnić formę całkowicie roztopioną parafiną z dozownika, upewniając się, że tkanka jest w pełni przykryta i nie pozostały duże pęcherzyki powietrza.
- Umieścić oznaczoną kasetę na górze formy, tak aby stanowiła ona podstawę bloku parafinowego.
- Przenieść formę z przymocowaną kasetą na płytę chłodzącą stacji do zalewania. Pozostawić parafinę do całkowitego zastygnięcia na 10 min, aż blok stanie się nieprzezroczysty i twardy.
- Po zastygnięciu wyjąć blok parafinowy z formy i przechowywać go w temperaturze 4 °C do czasu krojenia.
UWAGA: Ten etap może służyć jako punkt przerwania procesu. Blok parafinowy można przechowywać w temperaturze 4 °C; jednak, whenever possible, krojenie tkanek i dalsze analizy transkryptomiczne przestrzenne powinny być przeprowadzone tak szybko, jak to możliwe po zalewaniu, aby zminimalizować degradację RNA podczas przechowywania43,44.
- Krojenie i przygotowanie slajdów
UWAGA: Oczyścić mikrotom i kąpiel wodną roztworem do dekontaminacji RNaz, aby zapobiec degradacji RNA.- Napełnić kąpiel wodną wodą destylowaną i rozgrzać ją do 42 °C. Włączyć mikrotom i zainstalować nowe ostrze. Oznaczyć slajdy mikroskopowe ołówkiem.
- Zamocować blok parafinowy w uchwycie na próbki, upewniając się, że kaseta jest zorientowana zgodnie z pożądaną podłużną płaszczyzną cięcia.
UWAGA: Przygotować plastikowy worek wypełniony lodem; gdy krojenie stanie się trudne z powodu miękkiej parafiny, umieścić worek z lodem bezpośrednio na bloku, gdy ten pozostaje zamocowany w mikrotomie, zabezpieczając go gumką recepturką na kilka minut, aby utwardzić parafinę i poprawić jakość sekcji. - Ustawić grubość cięcia mikrotomu na 20 µm i wykonać cięcia wstępne (trimming).
- Zmienić ustawienie mikrotomu na 5 µm. Zebrać cztery sekcje o grubości 5 µm do oznaczonej, wolnej od RNaz probówki mikrowirówkowej 1,5 mL. Przechowywać probówkę na suchym lodzie i przechowywać w temperaturze -80 °C.
- Kontynuować krojenie przy 5 µm i rozłożyć wstęgi sekcji w kąpieli wodnej. Gdy sekcja będzie całkowicie rozwinięta i pozbawiona zmarszczek, zebrać ją na oznaczony slajd.
- Po każdej określonej liczbie sekcji (np. co 5-10 wstęg, w zależności od wielkości tkanki), zebrać dodatkowe 4 sekcje o grubości 5 µm do nowej oznaczonej probówki 1,5 mL. Powtarzać ten proces do uzyskania łącznie trzech probówek 1,5 mL zawierających sekcje 5 µm.
UWAGA: Jeśli tkanka pęka, łamie się lub nie można uzyskać ciągłego przekroju, próbka nie jest w pełni zdekalkalizowana i wymaga dodatkowego czasu dekalkalizacji. Odzyskać próbkę, cofając kroki procesu aż do fazy dekalkalizacji. W tym celu roztopić blok parafinowy w temperaturze 60 °C przez około 2 h i przenieść próbkę do ksylenu (2 h). Rehydratować próbkę za pomocą roztworów etanolu o malejącym stężeniu (100%, 96%, 80%, 70%), a następnie w wodzie destylowanej. Przenieść rehydratowaną próbkę do świeżego 0,25 M EDTA (pH 6,95) i przedłużyć okres dekalkalizacji w razie potrzeby przed przystąpieniem do odwadniania, ponownego zalewania i krojenia. Tę procedurę odzyskiwania należy stosować wyłącznie jako ostateczność, ponieważ cofanie procesu FFPE może pogorszyć integralność RNA.
- Po każdej określonej liczbie sekcji (np. co 5-10 wstęg, w zależności od wielkości tkanki), zebrać dodatkowe 4 sekcje o grubości 5 µm do nowej oznaczonej probówki 1,5 mL. Powtarzać ten proces do uzyskania łącznie trzech probówek 1,5 mL zawierających sekcje 5 µm.
- Umieścić slajdy w piekarniku w temperaturze 37 °C na noc, aby odparować resztki wody, a następnie przechowywać je w temperaturze 4 °C.
- Aby poprawić przyleganie tkanki, opcjonalnie wypiekać slajdy przez 3 h w temperaturze 42 °C przed inkubowaniem ich przez noc w 37 °C.
UWAGA: Ten krok jest zazwyczaj niepotrzebny przy użyciu slajdów szklanych wymienionych w Tabeli Materiałów, ponieważ slajdy te zapewniają silne przyleganie, a tkanka zazwyczaj pozostaje mocno przytwierdzona podczas całego procesu. Ten etap może służyć jako punkt przerwania procesu. Slajdy można przechowywać w temperaturze 4 °C; jednak, whenever possible, dalsze analizy transkryptomiczne przestrzenne powinny być przeprowadzone tak szybko, jak to możliwe po zalewaniu, aby zminimalizować degradację RNA podczas przechowywania43,44.
2. Ocena jakości próbki
- Ocena jakości skrawków
- Obejrzeć wszystkie skrawki jeden po drugim pod standardowym mikroskopem świetlnym w polu jasnym (4×–10×). Sprawdzić każdy preparat, aby upewnić się, że skrawki nie są pofragmentowane, i odnotować jakość każdego z nich.
UWAGA: Sprawdzić pod kątem zagięć, zmarszczek, kompresji lub prążków (chatter marks), które mogą wskazywać na problemy z twardością parafiny, ostrością noża lub niepełnym odwapnieniem. Zweryfikować, czy żadne obszary tkanki nie zaginęły w wyniku oddzielenia się podczas krojenia lub przenoszenia do kąpieli wodnej. - Wybrać najlepiej zachowane skrawki do transkryptomiki przestrzennej (najbardziej kompletne, z najlepszą morfologią).
- Zidentyfikować skrawki następujące bezpośrednio po wybranych i zarezerwować je do barwienia H&E oraz IF, aby obraz po barwieniu odpowiadał jak najdokładniej tkance, która zostanie poddana sekwencjonowaniu.
- Obejrzeć wszystkie skrawki jeden po drugim pod standardowym mikroskopem świetlnym w polu jasnym (4×–10×). Sprawdzić każdy preparat, aby upewnić się, że skrawki nie są pofragmentowane, i odnotować jakość każdego z nich.
- Barwienie H&E w celu oceny integralności tkanki
- Umieścić preparaty w szklanym statywie do barwienia i inkubować przez 15 min w 60 °C.
- Przenieść statyw do szklanych słoików do barwienia zawierających ksylen na 15 min.
- Rehydratować skrawki, przenosząc statyw przez słoiki do barwienia zawierające etanol 100%, 96%, 80% i 70%, inkubując przez 5 min w każdym roztworze.
OSTRZEŻENIE: Wszystkie etapy obejmujące ksylen i roztwory etanolu o różnych stężeniach muszą być wykonywane w dygestorium chemicznym, aby zapewnić odpowiednią wentylację i zminimalizować ekspozycję na toksyczne i łatwopalne opary. - Płukać preparaty przez 5 min w słoiku do barwienia wypełnionym wodą.
- Zanurzyć statyw w hematoksylinie na 10 min, a następnie płukać pod bieżącą wodą z kranu, aż woda płucząca stanie się czysta.
- Zanurzyć statyw w wodzie zawierającej pięć kropli stężonego kwasu solnego, delikatnie mieszając, aż pojawi się czerwonkawy odcień.
- Przenieść statyw do wody nasyconej węglanem litu, aż rozwinie się trwałe niebieskie zabarwienie, a następnie krótko opłukać w wodzie.
- Zbarwić skrawki w 1% (w/v) eozynie przez 5 min, a następnie ponownie opłukać w wodzie.
- Odwodnić preparaty, przenosząc statyw przez słoiki do barwienia zawierające wodę oraz etanol 70%, 80%, 96% i 100%, inkubując przez 5 min w każdym roztworze.
- Przejrzystość preparatów uzyskać w ksylenie przez 15 min.
- Delikatnie osuszyć tył każdego preparatu, nałożyć medium montażowe na szkiełko nakrywkowe i zamontować skrawki. Pozostawić preparaty do wyschnięcia w RT przez 24 h przed obrazowaniem.
- Wykonać obrazowanie tkanki przy użyciu mikroskopu o wysokiej rozdzielczości przy powiększeniu 20x.
UWAGA: Najpierw wykonać barwienie H&E na skrawkach sąsiednich jako krok kontroli jakości w celu oceny przydatności próbki do transkryptomiki przestrzennej. Po wyborze wykonać drugie barwienie H&E bezpośrednio na skrawku przeznaczonym do transkryptomiki przestrzennej, zgodnie z wytycznymi producenta dotyczącymi przygotowania tkanki dla platformy do badania przestrzennej ekspresji genów wymienionej w Tabeli materiałów.
- Ocena integralności RNA (DV200)
UWAGA: W protokole przestrzennej ekspresji genów tradycyjny wskaźnik integralności RNA (RIN) jest nieskuteczny, ponieważ piki rybosomalnego RNA 18S i 28S są zazwyczaj nieobecne w tkankach utrwalonych. Dlatego parametr DV200, definiowany jako procent fragmentów RNA dłuższych niż 200 nukleotydów, jest powszechnie stosowany jako bardziej informacyjny parametr jakości niż RIN dla zdegradowanych próbek klinicznych. Dla Visium v2 firma 10x Genomics zaleca stosowanie bloków FFPE o wartości DV200 ≥ 30%, aby zapewnić wydajną hybrydyzację sond i optymalne działanie testu. Wybór bloków tkankowych z najwyższymi dostępnymi wartościami DV200 pomaga zapobiec ubytkom w sekwencjonowaniu i maksymalizuje czułość punktów (spots).- Wyjąć probówki 1,5 mL zawierające skrawki o grubości 5 µm zebrane podczas etapu krojenia tkanki i umieścić je w lodzie w celu ekstrakcji RNA.
- Wyekstrahować całkowite RNA. Ta zestandaryzowana procedura obejmuje deparafinizację próbki, trawienie proteinazą K w celu odwrócenia wiązań krzyżowych formaliny, usunięcie genomicznego DNA za pomocą traktowania DNazą I oraz końcową elucję oczyszczonego RNA w wodzie wolnej od RNaz.
- Ocenić integralność RNA przy użyciu systemu opartego na elektroforezie kapilarnej z wysokoczułym testem RNA. Podsumowanie schematu postępowania znajduje się w Pliku uzupełniającym 142,45,46,47,48.
- Opcjonalna immunofluorescencja (IF) do weryfikacji typu komórek
- Umieścić preparat FFPE w szklanym statywie do barwienia i inkubować przez 15 min w 60 °C.
- Przenieść statyw do szklanych słoików do barwienia zawierających ksylen na 15 min.
- Rehydratować skrawek, przenosząc statyw przez etanol 100%, 96%, 80% i 70% przez 2 min każdy, a następnie przez 5 min w wodzie i 5 min w PBS-Tween (1x PBS uzupełniony o 0,1% Tween-20).
OSTRZEŻENIE: Wszystkie etapy obejmujące ksylen i etanol muszą być wykonywane w dygestorium chemicznym. - Przeprowadzić odzyskiwanie antygenów zgodnie z zaleceniami producenta dla przeciwciała pierwszorzędowego, upewniając się, że bufor odzyskiwania, pH i warunki grzania są zgodne z kartą charakterystyki przeciwciała. UWAGA: W tym schemacie odzyskiwanie antygenów jest przeprowadzane przy użyciu 10 mM Tris i 1 mM EDTA, pH 9,0, w systemie grzewczym typu „cooking pot” przez 30 min w 95 °C, a następnie chłodzone przez 20 min w RT.
- Płukać preparat dwukrotnie po 10 min za każdym razem w PBS-Tween.
- Narysować barierę hydrofobową wokół tkanki za pomocą pisaka do barier hydrofobowych i zablokować niespecyficzne wiązanie, nakładając 5% BSA w 1x DPBS na skrawki tkanki przez co najmniej 40 min w RT w komorze wilgotnej.
UWAGA: Komorę wilgotną przygotowuje się poprzez umieszczenie arkusza papieru filtracyjnego w plastikowym pudełku do barwienia preparatów i dokładne zwilżenie go wodą destylowaną, aby utrzymać stabilne wilgotne środowisko podczas inkubacji przeciwciał. - Przygotować roztwór przeciwciała pierwszorzędowego w 1x DPBS w zalecanym rozcieńczeniu dla każdego przeciwciała.
UWAGA: W tym schemacie przeciwciała pierwszorzędowe przeciwko Emcn (V.7C7) i Cd271 (ME20.4) zostały użyte do identyfikacji mysich EC i MSC odpowiednio, podczas gdy przeciwciała przeciwko CD31 (JC70A) lub PRRX1 (poliklonalne) zostały użyte do identyfikacji ich ludzkich odpowiedników, zgodnie z protokołem producenta. - Usunąć roztwór blokujący, delikatnie stukając krawędzią preparatu o papier chłonny, aby usunąć resztki kropel, a następnie nałożyć mieszankę przeciwciał pierwszorzędowych i inkubować preparat przez noc w 4 °C w komorze wilgotnej.
- Płukać preparat dwukrotnie przez 5 min w PBS-Tween i przygotować roztwór przeciwciała wtórnego w rozcieńczeniu zalecanym przez producenta, upewniając się, że fluorofory są kompatybilne spektralnie i nie nakładają się na siebie.
UWAGA: W tym schemacie użyto przeciwciała wtórnego sprzężonego z Alexa Fluor w rozcieńczeniu 1:200. - Nałożyć mieszankę przeciwciał wtórnych i inkubować przez 30 min w RT, chroniąc przed światłem w komorze wilgotnej.
- Płukać preparat dwukrotnie przez 5 min w PBS-Tween.
- Nałożyć rozcieńczenie 1:10 medium montażowego zawierającego DAPI (patrz Tabela materiałów), przygotowanego w roztworze 1:1 PBS–glicerol, i inkubować próbkę przez 5 min.
- Zamontować skrawek za pomocą szkiełka nakrywkiego i uszczelnić krawędzie lakierem do paznokci, aby zapobiec wysychaniu.
- Zwizualizować zbarwioną tkankę przy użyciu wielospektralnej platformy obrazowania.
Plik uzupełniający 1: Podsumowanie kroków protokołu oceny integralności RNA i przebiegu pracy Visium Spatial Transcriptomics. Ten plik uzupełniający zawiera szczegółowe podsumowanie kroków proceduralnych wykonanych zgodnie z instrukcjami producenta. Obejmuje on: (i) analizę High Sensitivity RNA ScreenTape służącą do oceny integralności RNA (DV200), opisaną w kroku 2.3.3 głównego protokołu oraz (ii) przegląd przebiegu pracy Visium CytAssist Spatial Gene Expression, obejmujący wstępne przygotowanie tkanki, przygotowanie biblioteki i sekwencjonowanie (kroki 3.1–3.3 głównego protokołu).Kliknij tutaj, aby pobrać ten plik.
3. Transkryptomika przestrzenna
UWAGA: Procedurę transkryptomiki przestrzennej należy przeprowadzić przy użyciu platformy i odczynników wymienionych w Tabeli materiałów, zgodnie z odpowiednimi instrukcjami obsługi42,45,46. Plik uzupełniający 1 podsumowuje główne etapy wstępnego przygotowania tkanek, przygotowania bibliotek oraz sekwencjonowania.
- Kontrola jakości danych z transkryptomiki przestrzennej
- Przeprowadź demultipleksację danych z transkryptomiki przestrzennej, korzystając ze standardowego potoku analizy dla zbiorów danych Visium (patrz Tabela materiałów).
- Zmapuj odczyty do odpowiedniego genomu referencyjnego Ensembl 105.
UWAGA: W przypadku próbek ludzkich zastosowano GRCh38, a w przypadku próbek mysich mm10. - Wygeneruj przefiltrowane macierze cech i kodów kreskowych (feature-barcode matrices) przy użyciu tego samego potoku i zaimportuj je do środowiska analizy jednokomórkowej/przestrzennej (patrz Tabela materiałów).
- Przejrzyj obrazy H&E w interfejsie wizualizacji dostarczonym przez potok transkryptomiki przestrzennej (patrz Tabela materiałów) i ręcznie usuń plamki (spots), które nakładają się na obszar kości korowej lub tkankę kostną, w zależności od zbioru danych.
- Znormalizuj zbiory danych, stosując metodę transformacji stabilizującej wariancję, powszechnie stosowaną w przepływach pracy analizy jednokomórkowej (patrz Tabela materiałów).
Wyniki
Aby ocenić przydatność tego opartego na EDTA schematu postępowania w różnych gatunkach i kontekstach chorobowych, protokół zastosowano do czterech próbek szpiku kostnego (BM): dwóch kości udowych myszy oraz dwóch próbek kości ludzkich reprezentujących stan zdrowia oraz szpiczak mnogi (MM) (Tabela 1 i Rysunek 1).
| Identyfikacja próbek | Gatunki | Płeć | Wiek | Choroba |
| YFPcγ1 | Mysz | Kobieta | 210 dni | Zdrowy |
| mMM | Mysz | Samiec | 314 dni | MM |
| hHBM | Człowiek | Samiec | 76 lat | Zdrowy |
| hMM | Człowiek | Kobieta | 50 lat | MM |
Tabela 1: Próbki kości mysich i ludzkich objęte badaniem. Dla każdej próbki podano gatunek, płeć, wiek i stan zdrowia. Skróty: hHBM = zdrowy ludzki szpik kostny; hMM = ludzki szpiczak mnogi; mMM = mysi szpiczak mnogi; MM = szpiczak mnogi; YFPcγ1 = zdrowa mysz kontrolna.
Próbki wykorzystane w niniejszym badaniu zostały wcześniej scharakteryzowane i opisane w poprzednich publikacjach grupy badawczej, a konkretnie w pracach Muiños-Lopez i wsp. oraz Cenzano i wsp., z wyjątkiem próbki mysiej MM. W przypadku wcześniej opisanych okazów, dane i wyniki z zakresu transkryptomiki przestrzennej zostały przedstawione w tych badaniach8,10. W związku z tym materiał zawarty w niniejszym opracowaniu służy do oceny technicznej przydatności protokołu do transkryptomiki przestrzennej, a nie do prezentacji nowych odkryć biologicznych.
Próbki kości udowych myszy pobrano z genetycznie zmodyfikowanego modelu mysiego MM BIC (BIcγ1), który odzwierciedla cechy kliniczne i immunologiczne pacjentów z MM, oraz z odpowiadających im zdrowych myszy kontrolnych (YFPcγ1)8,49. Z każdego zwierzęcia pobrano jedną kość udową, którą następnie oczyszczono i przetworzono zgodnie ze zstandaryzowanym protokołem (Rycina 2A). Do analiz tych wykorzystano konkretnie kości udowe, ponieważ oferują one obfitą ilość szpiku, wysoką jakość niszy oraz łatwość powtarzalnego przetwarzania, co sprawia, że są one odpowiednie dla platformy transkryptomiki przestrzennej opartej na sekwencjonowaniu8,10. Poprawną dekalcyfikację kości udowej myszy kontrolnej potwierdzono makroskopowo poprzez znaczny wzrost elastyczności tkanki podczas manualnej manipulacji pęsetą (Rycina 2B). Następnie fragment kości wydajnie zatopiono w parafinie, wykorzystując specjalistyczną formę kompatybilną z transkryptomiką przestrzenną, aby zachować integralność RNA i architekturę tkanki do dalszych analiz molekularnych (Rycina 2C).
Przeanalizowano również dwie ludzkie próbki szpiku kostnego (BM) o odmiennej historii opracowania8,10. Świeżą próbkę ludzkiego BM od osoby zdrowej hematologicznie pobrano z odpadów chirurgicznych podczas ortopedycznej wymiany stawu biodrowego w Hospital Universitario de Navarra (Rysunek 2D–F). Aby zademonstrować translacyjną użyteczność protokołu, próbkę tę opracowano w taki sam sposób, jak próbki mysie. Zgodnie z wynikami zaobserwowanymi w tkance mysiej, skuteczną dekalcyfikację ludzkiej kości za pomocą EDTA potwierdzono makroskopowo poprzez całkowite zmiękczenie tkanki, co objawiało się bezwysiłkową penetracją igły (Rysunek 2E). Zdekalcyfikowany fragment ludzkiej kości został pomyślnie zatopiony w parafinie przy użyciu standardowej formy metalowej w celu dalszego opracowania (Rysunek 2F). Druga ludzka próbka składała się z archiwalnych biopsji BM utrwalonych w formalinie i zatopionych w parafinie (FFPE) pobranych z grzebienia biodrowego pacjenta z MM w Zakładzie Patomorfologii Clínica Universidad de Navarra (CUN). Warto zauważyć, że ta archiwalna próbka MM została wcześniej dekalcyfikowana przy użyciu standardowego protokołu klinicznego z zastosowaniem silnych kwasów36. Próbka ta stanowi jakościowy kontrast w stosunku do preparatów opracowanych za pomocą EDTA; jednak różnice w źródle tkanki, historii utrwalania, przechowywaniu i dekalcyfikacji oznaczają, że zaobserwowane różnice nie mogą być przypisane wyłącznie czynnikowi dekalcyfikującemu.
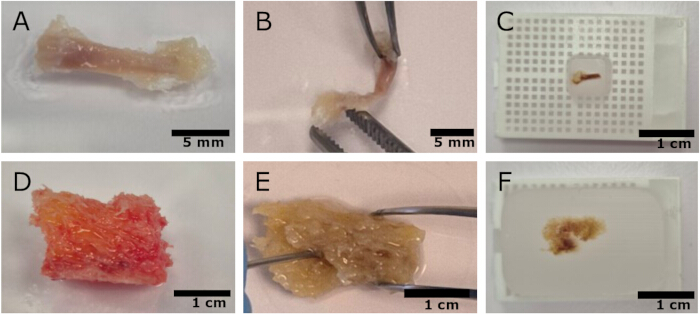
Rysunek 2: Próbki kości mysich i ludzkich podczas przygotowania z użyciem EDTA. (A) Nienaruszone kontrolne kości udowe myszy przed dekalcyfikacją. (B) Dekalcyfikowana kontrolna kość udowa myszy wykazująca zwiększoną elastyczność. (C) Kontrolne fragmenty kości mysiej zatopione w parafinie. (D) Zdrowe fragmenty kości ludzkiej z operacji biodra przed dekalcyfikacją. (E) Ten sam fragment po dekalcyfikacji EDTA, wykazujący penetrację igły. (F) Zdrowa kość ludzka dekalcyfikowana EDTA zatopiona w parafinie. Paski skali: (A, B) 5 mm; (C–F) 1 cm. Skrót: EDTA = kwas etylenodiaminotetraoctowy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
W celu analizy ogólnej architektury tkanki wykonano barwienie H&E (Rysunek 3). Lepsza konserwacja morfologiczna zaobserwowana w przekrojach mysich może wynikać z różnic w obchodzeniu się z próbkami i ich przetwarzaniu, a nie z cech specyficznych dla gatunku. Kości udowe myszy zostały pobrane specjalnie do transkryptomiki przestrzennej i przetworzone natychmiast jako całe kości, co pozwoliło na zachowanie ich architektury (Rysunek 3A, B). Z kolei próbki ludzkie pochodzą albo z materiału pozostałego po operacji wymiany stawu biodrowego (Rysunek 3C), albo z diagnostycznych biopsji kości w przebiegu MM (Rysunek 3D)) – w obu przypadkach jakość tkanki przed analizą mogła być zmienna. W rezultacie różnice morfologiczne między ludzką próbką dekalcynowaną EDTA a biopsją MM dekalcynowaną kwasem są niewielkie, ponieważ oba ludzkie preparaty wykazują już podstawowe ograniczenia strukturalne wprowadzone nie tylko przez dekalcynowanie, ale także przez ogólne przetwarzanie tkanki (Rysunek 3C, D). W związku z tym kompleksowa ocena jakości próbek do transkryptomiki przestrzennej wymaga ewaluacji wielu odrębnych parametrów. Po pierwsze, należy uważnie monitorować integralność tkanki, ponieważ zachowanie struktury może znacząco różnić się w zależności od konkretnego rodzaju próbki, a nie tylko od zastosowanego kwasu dekalcynowującego. Po drugie, należy ocenić jakość RNA, ponieważ warunki dekalcynowania mogą na nią wpływać20,35,36.
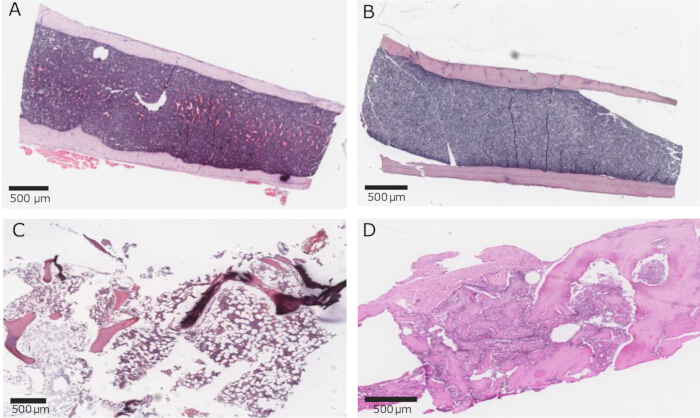
Rycina 3: Przekroje barwione H&E wykorzystane do oceny jakości tkanki. Kolejne przekroje FFPE odpowiadają (A) zdrowej myszy kontrolnej10, (B) myszy z MM, (C) zdrowej ludzkiej kości8,10 oraz (D) ludzkiej biopsji MM8. Paski skali = 500 µm. Skróty: FFPE = utrwalone w formalinie, zatopione w parafinie; H&E = hematoksylina i eozyna; MM = szpiczak mnogi. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W celu uzupełnienia analizy histologicznej oceniono jakość RNA. Podczas gdy barwienie H&E wykazało niejednoznaczne różnice, integralność RNA wyraźnie zróżnicowała efekty dwóch metod dekalcyfikacji (Tabela 2). Wartości DV200 dla obu próbek mysich oraz zdrowego preparatu kości ludzkiej przekroczyły próg zalecany dla analiz Visium FFPE, co wskazuje na wystarczający rozkład długości fragmentów RNA dla hybrydyzacji sond i konstrukcji biblioteki. Próbka zdrowej myszy YFP wykazuje wartość DV200 na poziomie 82,55%, a próbka zdrowej ludzkiej kości (hHBM) osiąga 58% – obie wartości znacznie przekraczają próg akceptowalności 30% określony przez 10x Genomics. Próbka myszy z MM (mMM) wykazuje DV200 wynoszące 31,3%, co jest bliskie dolnej granicy akceptowalności i może odzwierciedlać m.in. przedłużone przechowywanie bloku parafiny w temperaturze 4 °C przed skrawaniem, obok innych czynników specyficznych dla próbki. W przeciwieństwie do niej, biopsja ludzkiego MM dekalcyfikowana kwasem (hMM) wykazuje DV200 wynoszące zaledwie 8%, co wiązało się z wyraźnie niższą integralnością RNA, nawet przy mniej zaznaczonej degradacji morfologicznej. Podsumowując, przeprowadzenie zarówno oceny strukturalnej, jak i molekularnej jest istotne dla oceny przydatności próbek do późniejszej analizy przestrzennej.
| Identyfikacja próbek | DV200 (%)1 |
| YFPcγ1 | 82.55 |
| mMM | 31.3 |
| hHBM | 58 |
| hMM2 | 8 |
| 1DV200: Procent całkowitych fragmentów RNA > 200 nukleotydów. | |
| 2Próbkę tę dekalcyfikowano zgodnie ze standardowym protokołem klinicznym z użyciem silnych kwasów. | |
Tabela 2: Jakość RNA próbek badawczych. DV200 to procent fragmentów RNA dłuższych niż 200 nukleotydów; wartości wynoszące co najmniej 30% uznano za odpowiednie do dalszych analiz w zakresie transkryptomiki przestrzennej. Skróty: hHBM = zdrowy ludzki szpik kostny; hMM = ludzka mieloma mnoga; mMM = mysia mieloma mnoga.
Można również przeprowadzić dodatkowe oceny jakości. Aby dalej zweryfikować integralność tkanki i potwierdzić zachowanie konkretnych przedziałów komórkowych po dekalcyfikacji EDTA, wykonano opcjonalne barwienie IF na sąsiednich sekcjach FFPE z tkanek mysich i ludzkich. Przeciwciała przeciwko endomucinie (Emcn) i Cd271 wykorzystano odpowiednio do wizualizacji komórek śródbłonka (EC) i mezenchymalnych (MSC) w próbce mysiej z MM (Rysunek 4A). Barwienie to wykazało, że tkanki przetworzone przy użyciu EDTA prezentowały wyraźnie zdefiniowane struktury naczyniowe z ciągłym barwieniem Emcn oraz zachowane sieci zrębowe, co dowodzi, że testowane markery pozostały wykrywalne po przetwarzaniu. Ponadto obrazowanie o wysokiej rozdzielczości z wykorzystaniem zautomatyzowanego systemu obrazowania multispektralnego dostarczyło dodatkowych dowodów na to, że testowane antygeny pozostały wykrywalne w celu weryfikacji typu komórek, zapewniając dodatkowy poziom kontroli jakości przed analizą transkryptomiczną przestrzenną. Wyniki te zaobserwowano również w zdrowych próbkach od starszych ludzi, w których ekspresję EC wykryto za pomocą przeciwciał CD31, a MSC za pomocą przeciwciał PRRX1 (Paired Related Homeobox 1), wykazując, że testowane markery niszy pozostały identyfikowalne po dekalcyfikacji EDTA (Rysunek 4B). W przeciwieństwie do tego, wyniki te nie mogły zostać powtórzone w ludzkich biopsjach MM poddanych różnym protokołom dekalcyfikacji opartym na kwasach. Jak wspomniano wcześniej, integralność RNA w tych próbkach była niska, co ograniczyło dalszą analizę transkryptomiczną. Ze względu na zdegradowany charakter tych ludzkich próbek, ich dalsza użyteczność ograniczyła się do bazowego profilowania transkryptomicznego8 oraz oceny immunohistochemicznej (IHC) złośliwych komórek plazmatycznych (PC) (Rysunek 4C).
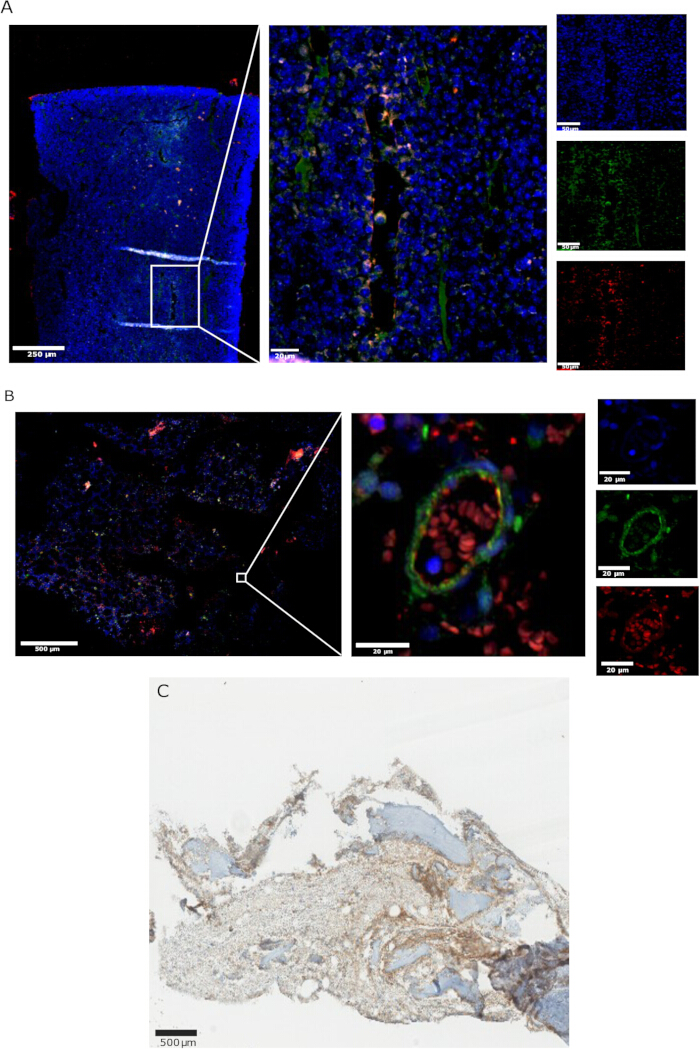
Rysunek 4: Opcjonalna immunofluorescencja i immunohistochemia w celu weryfikacji typów komórek. (A) Tkanka MM myszy wykazująca jądra znakowane DAPI (niebieski), MSC dodatnie dla CD271 (zielony) i EC dodatnie dla EMCN (czerwony). (B) Zdrowa ludzka kość wykazująca jądra znakowane DAPI (niebieski), MSC dodatnie dla PRRX1 (zielony) i EC dodatnie dla CD31 (czerwony)10. (C) Biopsja MM człowieka wykazująca złośliwe PC dodatnie dla CD1388. Paski skali: (A) 250 µm (przegląd), 20 µm (powiększenie nałożone) i 50 µm (obrazy pojedynczych kanałów); (B) 500 µm (przegląd) oraz 20 µm (powiększenia nałożone i pojedynczych kanałów); (C) 500 µm. Skróty: DAPI = 4′,6-diamidino-2-phenylindole; EC = komórka śródbłonka; MM = szpiczak mnogi; MSC = mezenchymalna komórka macierzysta; PC = komórka plazmatyczna. Proszę kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Łącznie morfologia tkanki oraz wyniki DV200 potwierdzają przydatność próbek utrwalonych w EDTA do dalszych analiz transkryptomicznych przestrzennie rozdzielczych. Zastosowania transkryptomiki przestrzennej z wykorzystaniem tego schematu przygotowania próbek zostały opisane wcześniej8,10.
Dyskusja
Poprzez zintegrowanie kontrolowanej dekalcyfikacji opartej na EDTA, standaryzowanego przetwarzania FFPE oraz rygorystycznych punktów kontroli jakości, niniejszy protokół eliminuje wiele ograniczeń tradycyjnie związanych z przygotowaniem tkanki kostnej do transkryptomiki przestrzennej, w szczególności tych dotyczących degradacji RNA i uszkodzeń morfologicznych wywoływanych przez silne metody dekalcyfikacji kwasowej8,10,20,33,36. Najbardziej krytycznym etapem przetwarzania zmineralizowanych próbek do transkryptomiki przestrzennej jest dekalcyfikacja. Niewystarczająca dekalcyfikacja powoduje, że kość pozostaje zbyt sztywna do skrawania, co uniemożliwia fizyczne uzyskanie wysokiej jakości skrawków do transkryptomiki przestrzennej8,20,23,37,50. Gdy tkanka kostna pozostaje zbyt twarda, ulega ona rozdrobnieniu lub drganiom przy kontakcie z nożem mikrotomu, co prowadzi do powstawania poszarpanych skrawków lub dziur, które nie oddają wiernie naturalnej architektury szpiku kostnego. Co istotne, powodzenie dekalcyfikacji nie może zostać w pełni potwierdzone aż do etapu mikrotomii: nawet próbki, które sprawiają wrażenie powierzchownie zmiękczonych, mogą nadal zawierać resztki minerałów, co staje się widoczne dopiero podczas próby wycinania cienkich skrawków FFPE. Z tego powodu niezbędne jest uważne monitorowanie postępu dekalcyfikacji, aby zapewnić powtarzalne wyniki.
W tym schemacie postępowania stosuje się 0,25 M EDTA o pH 6,95 przez 10 dni przy stałym mieszaniu i wymianie roztworu w piątym dniu8,10. Podczas opracowywania protokołu oceniano samo EDTA, EDTA uzupełnione o poliwinylopirolidon oraz 10% kwas mrówkowy, a także różne czasy dekalcyfikacji i harmonogramy wymiany roztworów; dane porównawcze nie zostały tutaj przedstawione. Czas trwania krótszy niż 10 dni często prowadził do pękania tkanek podczas krojenia próbek mysich, natomiast w przypadku próbek ludzkich zaobserwowano zmienność zależną od konkretnej próbki. Z tego powodu dla kości udowych myszy stosuje się 10-dniowy okres dekalcyfikacji, podczas gdy próbki ludzkie mogą wymagać dłuższego procesu w zależności od gęstości i zawartości beleczek kostnych. Przed zatopieniem w parafinie należy zastosować fizyczne punkty kontroli jakości. Jeśli podczas mikrotomii okaże się, że dekalcyfikacja była niewystarczająca, należy zastosować procedurę ponownego przetwarzania wyłącznie jako ostateczną próbę ratowania próbki, ponieważ dodatkowa ekspozycja na ciepło, rozpuszczalniki i ponowna rehydratacja mogą obniżyć jakość RNA.
Głównym ograniczeniem tej metody jest wydłużony czas przetwarzania, co stanowi wyraźny kontrast w stosunku do szybkich protokołów opartych na kwasach, powszechnie stosowanych w patologii klinicznej20,36. Chociaż dłuższe czasy przetwarzania są zazwyczaj akceptowalne w warunkach badawczych, niedawne prace, takie jak protokół opisany przez Miao i wsp., w którym zastosowano roztwór Morse'a (22,5% kwasu mrówkowego i 10% cytrynianu sodu) do dekalcyfikacji w ciągu 24 h, wskazują na rosnące zainteresowanie przyspieszeniem przygotowania kości do analiz przestrzennych20. Jednakże metody oparte na kwasach wiążą się historycznie z znacznie wyższym ryzykiem degradacji RNA, co obniża wartości DV200 i ostatecznie ogranicza ich kompatybilność z transkryptomiką przestrzenną1,8,35,36. Niniejsze podejście oparte na EDTA priorytetyzuje zachowanie RNA nad szybkością, zapewniając kompatybilność z platformami przestrzennymi opartymi na sekwencjonowaniu, takimi jak Visium.
Potencjalnym ograniczeniem przestrzennej transkryptomiki szpiku kostnego (BM) jest wysoka liczebność transkryptów immunoglobulin pochodzących z komórek plazmatycznych (PC), co może utrudniać wykrywanie genów o niskiej ekspresji. Podobnie jak w strategiach kontroli jakości i filtrowania zastosowanych w poprzednim badaniu grupy badawczej, obejmujących usuwanie punktów niskiej jakości (<200 UMIs i <150 wykrytych genów), filtrowanie typów komórek o niskim udziale (<20% na punkt) podczas analiz dekonwolucji oraz wybór genów markerowych wykrytych w zbiorach danych przestrzennej transkryptomiki, transkrypty immunoglobulin mogą być również filtrowane obliczeniowo podczas analizy końcowej, aby zminimalizować ich wpływ, jeśli jest to odpowiednie8. Celowane podejścia do przestrzennej transkryptomiki mogą dodatkowo poprawić wykrywalność transkryptów o niskiej liczebności w konkretnych zastosowaniach.
Potencjalne zastosowania tej metody są szerokie. Niedawna integracja danych przestrzennych i jedno-komórkowych ujawniła wyspecjalizowane ludzkie nisze osteogenne oraz złożone gradienty sygnalizacyjne promieniujące z kości beleczkowej3,26. Co więcej, transkryptomika przestrzenna wykazała, że starzenie przekształca mikrośrodowisko szpiku kostnego (BM) poprzez zmianę organizacji przestrzennej i komunikacji komórek śródbłonka (EC), co prowadzi do upośledzenia wsparcia osteogennego i pojawienia się zapalnych sieci sygnalizacyjnych w starzejącej się niszy10. Profilowanie multiomiczne zidentyfikowało również odrębne sąsiedztwa mikrośrodowiskowe, takie jak regiony arterio-endostealne wspierające wczesną mielopoezę oraz strefy peri-adipocytarne wzbogacone w hematopoetyczne komórki macierzyste i progenitorowe3. W kontekście szpiczaka mnogiego (MM), niniejszy protokół umożliwia integrację przestrzennych i jedno-komórkowych ram transkryptomicznych w celu scharakteryzowania składu chorobowo zmienionego szpiku kostnego u myszy oraz oddziaływań międzykomórkowych. Poprzednie prace ujawniły przestrzennie odrębne rozkłady złośliwych komórek plazmatycznych (PC) i zidentyfikowały programy immunologiczne i zapalne, takie jak NEToza i sygnalizacja IL-17, które były odwrotnie skorelowane z regionami wzbogaconymi w nowotwór. Dodatkowo, wzrost gęstości złośliwych PC korelował z przejściem z efektorowych w wyczerpane stany limfocytów T. Wyniki te zostały również zwalidowane w ludzkich próbkach szpiku kostnego utrwalonych w formalinie i zatopionych w parafinie (FFPE), co wykazało ich znaczenie translacyjne przy różnym obciążeniu chorobowym8. W ostateczności, ten schemat przygotowania stanowi fundament techniczny do badania złożonych oddziaływań komórkowych w obrębie zmineralizowanej architektury szpiku kostnego.
Platformy wysokiej rozdzielczości do badania przestrzennej ekspresji genów umożliwiają profilowanie całego transkryptomu z rozdzielczością bliską pojedynczej komórce38,51,52. Podejścia te mogą rozszerzyć zastosowanie schematu przygotowania próbek na analizy o wyższej rozdzielczości w odniesieniu do zorganizowanego przestrzennie szpiku kostnego oraz nowotworów hematologicznych. Przedstawiony schemat stanowi zatem podstawę techniczną dla przyszłych badań nad fizjologiczną i nowotworową hematopoezą.
Oświadczenia
Autorzy oświadczają, że nie mają żadnych konfliktów interesów. Patent dotyczący know-how i wykorzystania eksperymentalnego modeli mysich MM MIcγ1 został licencjonowany firmie MIMO Biosciences (wniosek nr PCT/EP2023/071025).
Podziękowania
Praca ta była wspierana przez Instituto de Salud Carlos III i współfinansowana przez ERDF A way of making Europe (PI22/00983); CIBERONC (CB16/12/00489), RICORS TERAV (RD21/0017/0009) oraz RICORS TERAV Plus (RD24/0014/0010); AGATA 0011-1411-2020-000010/0011-1411-2020-000011; Departamento de Salud Gobierno de Navarra (GN2024/04); Cancer Research UK [C355/A26819]; FC AECC i AIRC w ramach programu Accelerator Award; The International Myeloma Foundation (Brian van Novis) oraz The Paula and Rodger Riney Foundation dla FP. IAC otrzymał wsparcie z grantu Marie Curie (H2020-MSCA-IF-837491) z Komisji Europejskiej, grantu AECC Talent (INVES258003CALV) oraz Departamento de Salud, Gobierno de Navarra (GN2023/03). MC otrzymał wsparcie z stypendium FPU (FPU22/03283) z Ministerio de Ciencia, Innovación y Universidades. Chcielibyśmy podziękować pracownikom Advanced Genomics Laboratory oraz Animal Facility w CIMA Universidad de Navarra za nieocenioną pomoc techniczną i merytoryczną. Dziękujemy również oddziałom patologii Clínica Universidad de Navarra (CUN) oraz Hospital Universitario de Navarra za udostępnienie próbek BM oraz za wybitną współpracę. Szczególne podziękowania kierujemy do José Ángela Martíneza-Climenta i Marty Larrayoz za modele mysie MM. Dziękujemy Patxi San Martín-Urizowi, Tanii López i Eduardo Larequiemu za doskonałe wsparcie w optymalizacji technologii, opracowaniu protokołów i rozwiązywaniu problemów podczas przetwarzania próbek BM od myszy i ludzi do transkryptomiki przestrzennej. Dziękujemy również Beñatowi Aricecie i Asierowi Ullate za całą pracę obliczeniową związaną z transkryptomiką przestrzenną. Na koniec jesteśmy głęboko wdzięczni pacjentom i zdrowym dawcom, którzy hojnie wzięli udział w tym badaniu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| probówki 1,5 ml | Eppendorf | 15625367 | |
| sterylny pojemnik o pojemności 100 mL | deltalab | 723-510 | |
| 4200 TapeStation | Agilent | G2991A | Elektroforeza kapilarna–system oparty na [metodzie] do oceny integralności RNA |
| sterylny pojemnik o pojemności 50 ml | IberoMed | REOR001 | |
| probówka 50 ml | FALCON | 352070 | |
| Zaawansowany pisak PAP | Ted Pella 22309 | Z377821-1EA | Pisak do tworzenia barier hydrofobowych |
| Przeciwciało anty-PRRX1 wytworzone w króliku | Sigma-Aldrich | HPA051084 | |
| BSA (albumina surowicy bydlęcej) | Sigma-Aldrich | A9418-50G | |
| Kasety | KartellLABWARE | 2921 | |
| Przeciwciało monoklonalne CD271 (receptor NGF) (ME20.4) | Invitrogen | 14-9400-82 | |
| CD31, komórki śródbłonka (koncentrat) klon JC70A | Agilent Dako | M0823 | |
| Szkiełka nakrywkowe | Fisher Scientific | 12-544-EP | 50 mm x 24 mm |
| DAPI (medium montażowe VECTASHIELD Antifade z DAPI) | Vector Laboratories | H-1200-10 | |
| roztwór do deparafinizacji | Qiagen | 19093 | |
| DPBS | Thermo Scientific | AAJ67802AP | Thermo Scientific Chemicals fosforanowy bufor solny (DPBS, 1×), pożywka Dulbecco, bez wapnia, bez magnezu |
| Medium montażowe DPX do histologii | Sigma-Aldrich | 06522-500ML | |
| EDTA | Thermo Scientific | 15748687 | Kwas etylenodiaminotetraoctowy (EDTA), roztwór 0,5 M, stopień czystości do biologii molekularnej, ultrapure |
| Stacja do zatapiania | Leica Biosystems | 14 0388 81101 | Leica EG1150H |
| Przeciwciało Emcn (V.7C7) | Santa Cruz Biotechnology | sc-65495 | |
| Referencyjny genom Ensembl (GRCh38 / mm10, wersja 105) | EMBL-EBI | Brak danych | Genom referencyjny użyty do dopasowania odczytów. |
| Eozyna | Millipore Sigma | HT110116 | |
| Etanol | Millipore Sigma | E7023-500ML | Nożyczki chirurgiczne |
| Kąpiel wodna do histologii Falc Instruments B-I | Falc | 610.1030.00 | |
| Formalina 4% | PanReac AppliChem | 2524311315 | Formaldehyd 3,7%–4,0% m/v buforowane do pH = 7 i stabilizowane metanolem (CE-IVD) do diagnostyki klinicznej |
| Statyw do barwienia szkiełek przedmiotowych | WHEATON | Z710970-3EA | |
| Szklane naczynia do barwienia | MARKA | BR472200-10EA | Termocykler X50 |
| Glicerol | Sigma-Aldrich | C3H8O3 | |
| Kozie przeciwciało wtórne anty-mysie IgG (H+L), adsorbowane krzyżowo, koniugowane z Alexa Fluo 568 | Invitrogen | A11004 | |
| Kozie przeciwciało wtórne anty-mysie IgG (H+L), silnie adsorbowane krzyżowo, Alexa Fluo Plus 488 | Invitrogen | A32723 | |
| Kozie przeciwciało wtórne przeciwko króliczemu IgG (H+L), silnie adsorbowane, sprzężone z Alexa Fluor 488 | Invitrogen | A11034 | |
| Hematoksylina | Millipore Sigma | MHS16 | |
| High Sensitivity RNA ScreenTape | Agilent | 5067-5579 | Ocena integralności RNA |
| Drabina RNA High Sensitivity ScreenTape | Agilent | 5067-5581 | Ocena integralności RNA |
| Bufor do próbek High Sensitivity RNA ScreenTape | Agilent | 5067-5580 | Ocena integralności RNA |
| Mikroskop o wysokiej rozdzielczości | Leica Biosystems | N/A | Skaner Aperio CS2 |
| Kwas solny (0,1 N HCl) | Fisher Chemical | SA54-1 | |
| platforma Illumina NextSeq 2000 | Illumina | 20038897 | |
| Przeciwciało wtórne Invitroge przeciwko IgG szczura (H+L) z kozy, adsorbowane krzyżowo, Alexa Fluo 568 | Invitrogen | A11077 | |
| Nożyczki irydologiczne - ToughCut | F.S.T | 14058-11 | |
| Isovet | BRAUN | BR3009 | Izofluran |
| Węglan litu | Merck | 554-13-2 | |
| Loupe Browser (v6.0.0) | 10x Genomics | Nie dotyczy | Oprogramowanie służące do wizualizacji obrazów HE oraz kurateli punktów Visium; otwiera pliki .cloupe generowane przez potok analityczny. |
| Metalowe formy do zatapiania | Bio-Optica | 07-BM24256 | |
| Lamelki do mikroskopu | Avantor | 631-0108 | Lamelki do mikroskopu Superfrost Plus |
| Noże do mikrotomu | PIÓRO | FEAT207500006_U | |
| Mikrotom HM 340E | Epredia | Brak danych | model HM 340E |
| Igła | BD | 301156 | BD Microlanc 3 Igła 21 G 1 IN (25 MM) |
| Nikon Optiphot-2 | Nikon | 71052 | Jasnopowy mikroskop świetlny |
| Parafina | PanReac AppliChem | 256993 | Parafina t.t. 55–58°C plastyfikowane granulaty DMSO (CE-IVD) do diagnostyki klinicznej |
| szalka Petriego | Corning | CLS430167-100EA | |
| Formy do zatapiania w plastiku | Bio-Optica | 07-MP7070 | |
| Kleszczyki Pottsa-Smitha | F.S.T | 11012-18 | Pinceta |
| Fluorometr Qubit 3.0 | Invitrogen | Q33216 | |
| Probówki do analizy Qubit | Invitrogen | Q32856 | |
| Zestaw Qubit RNA HS Assay Kit | Invitrogen | Q32855 | |
| probówka do mikrocentryfugi 1,5 ml wolna od RNaz | Thermo Scientific | AM12400 | |
| woda wolna od RNaz | Merk | W4502 | |
| RNaseZap RNaza | Invitrogen | AM9780 | Roztwór do dekontaminacji |
| Zestaw RNeasy FFPE (50) | Qiagen | 73504 | Ekstrakcja całkowitego RNA |
| SCTransform (v0.3.5) | Laboratorium Satiji | Nie dotyczy | Metoda normalizacji stabilizującej wariancję zaimplementowana w pakiecie Seurat. |
| Seurat (v4.3.0.1) | Laboratorium Satiji | Nie dotyczy | Pakiet R wykorzystywany do analizy transkryptomiki jednokomórkowej i przestrzennej. |
| Space Ranger (v2.0.1) | 10x Genomics | Nie dotyczy | Oprogramowanie wykorzystywane do demultipleksacji, dopasowania sekwencji oraz generowania macierzy cecha-kod kreskowy dla zbiorów danych Visium. |
| skalpel Stlime | Schreiber GmbH | 51-11-030 | |
| STutility (v1.1.1) | Laboratorium Bergen | N/D | Pakiet R wykorzystywany do wizualizacji i integracji transkryptomiki przestrzennej. |
| Ostrze skalpela chirurgicznego nr 23 | Swann-Morton | 210 | Ostrza skalpeli chirurgicznych |
| Termocykler | Eppendorf | 6313000018 | |
| Tween-200 | Sigma-Aldrich | P2287-500ML | |
| Vectra Polaris | PerkinElmer | CLS143455 | Platforma obrazowania wielospektralnego do wizualizacji IF |
| Zestaw akcesoriów Visium 10X Genomics | 10x Genomics | PN-1000194 | |
| Visium CytAssist | 10x Genomics | PN-1000441 | |
| Zestaw sond do analizy transkryptomu ludzkiego Visium Human Transcriptome Probe Kit Small 10X Genomics | 10x Genomics | PN-1000363 | |
| Zestaw sond transkryptomicznych dla myszy Visium Mouse Transcriptome Probe Kit Small 10X Genomics | 10x Genomics | PN-1000365 | |
| Zestaw slajdów do przestrzennej analizy ekspresji genów Visium, 4 reakcje, 10X Genomics | 10x Genomics | PN-1000188 | |
| Ksylen | Panreac | 214736 | Ksylen, mieszanina izomerów do analizy, ACS, ISO |
Bibliografia
- Cooper RA, et al. Spatial transcriptomic approaches for characterising the bone marrow landscape: pitfalls and potential. Leukemia. 2025;39(2):291-295.
- Mercier FE, Ragu C, Scadden DT. The bone marrow at the crossroads of blood and immunity. Nat Rev Immunol. 2012;12(1):49-60.
- Bandyopadhyay S, et al. Mapping the cellular biogeography of human bone marrow niches using single-cell transcriptomics and proteomic imaging. Cell. 2024;187(12):3120-3140.e29.
- Tikhonova AN, et al. The bone marrow microenvironment at single-cell resolution. Nature. 2019;569(7755):222-228.
- Baccin C, et al. Combined single-cell and spatial transcriptomics reveal the molecular, cellular and spatial bone marrow niche organization. Nat Cell Biol. 2020;22(1):38-48.
- Kunisaki Y, et al. Arteriolar niches maintain haematopoietic stem cell quiescence. Nature. 2013;502(7473):637-643.
- Kusumbe AP, Ramasamy SK, Adams RH. Coupling of angiogenesis and osteogenesis by a specific vessel subtype in bone. Nature. 2014;507(7492):323-328.
- Muiños-Lopez E, et al. Characterization of the bone marrow architecture of multiple myeloma using spatial transcriptomics. Commun Biol. 2025;8(1):1620.
- Gui G, et al. Single-cell spatial transcriptomics reveals immunotherapy-driven bone marrow niche remodeling in AML. Sci Adv. 2025;11(28):eadw4871.
- Cenzano I, et al. Single-cell profiling reveals RAB13+ endothelial cells and profibrotic mesenchymal cells in aged human bone marrow. Aging Cell. 2026;25(4):e70475.
- de Jong MME, et al. The multiple myeloma microenvironment is defined by an inflammatory stromal cell landscape. Nat Immunol. 2021;22(6):769-780.
- de Jong MME, et al. An IL-1β-driven neutrophil–stromal cell axis fosters a BAFF-rich protumor microenvironment in individuals with multiple myeloma. Nat Immunol. 2024;25(5):820-833.
- Cenzano I, et al. Stromal and endothelial transcriptional changes during progression from MGUS to myeloma and after treatment response. Nat Commun. 2026;17:74389.
- Ye J, et al. Deconvolution of the hematopoietic stem cell microenvironment reveals a high degree of specialization and conservation. iScience. 2022;25(5):104225.
- Chen L, et al. An inflammatory T-cell-stromal axis contributes to hematopoietic stem/progenitor cell failure and clonal evolution in human myelodysplastic syndrome. Nat Commun. 2025;16(1):10041.
- Prummel KD, et al. Inflammatory stromal and T cells mediate human bone marrow niche remodeling in clonal hematopoiesis and myelodysplasia. Nat Commun. 2025;16(1):10042.
- De Jonghe J, et al. scTrends: A living review of commercial single-cell and spatial 'omic technologies. Cell Genom. 2024;4(12):100723.
- van den Brink SC, et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 2017;14(10):935-936.
- Asp M, Bergenstråhle J, Lundeberg J. Spatially resolved transcriptomes—next generation tools for tissue exploration. Bioessays. 2020;42(10):1900221.
- Miao J, et al. A practical protocol of processing mineralized tissue for Visium spatial transcriptomics. Mechanobiol Med. 2025;3(4):100163.
- Baldwin M, et al. A roadmap for delivering a human musculoskeletal cell atlas. Nat Rev Rheumatol. 2023;19(11):738-752.
- Duan H, Cheng T, Cheng H. Spatially resolved transcriptomics: advances and applications. Blood Sci. 2023;5(1):1-12.
- Xiao X, et al. Spatial transcriptomic interrogation of the murine bone marrow signaling landscape. Bone Res. 2023;11(1):59.
- Jain S, Eadon MT. Spatial transcriptomics in health and disease. Nat Rev Nephrol. 2024;20(10):659-671.
- Tilburg J, et al. Spatial transcriptomics of murine bone marrow megakaryocytes at single-cell resolution. Res Pract Thromb Haemost. 2023;7(4):100158.
- Lin W, et al. Mapping the spatial atlas of the human bone tissue integrating spatial and single-cell transcriptomics. Nucleic Acids Res. 2025;53(2):gkae1298.
- Marx V. Method of the Year: spatially resolved transcriptomics. Nat Methods. 2021;18(1):9-14.
- Yue L, et al. A guidebook of spatial transcriptomic technologies, data resources and analysis approaches. Comput Struct Biotechnol J. 2023;21:940-955.
- Joglekar A, et al. A spatially resolved brain region- and cell type-specific isoform atlas of the postnatal mouse brain. Nat Commun. 2021;12(1):463.
- Madissoon E, et al. A spatially resolved atlas of the human lung characterizes a gland-associated immune niche. Nat Genet. 2023;55(1):66-77.
- Wang F, et al. Single-cell and spatial transcriptome analysis reveals the cellular heterogeneity of liver metastatic colorectal cancer. Sci Adv. 2023;9(24):eadf5464.
- Robinson MH, et al. Regulation of antigen-specific T cell infiltration and spatial architecture in multiple myeloma and premalignancy. J Clin Invest. 2023;133(15):e167303.
- Wehrle E, et al. Protocol for preparing formalin-fixed paraffin-embedded musculoskeletal tissue samples from mice for spatial transcriptomics. STAR Protoc. 2024;5(2):103089.
- Sangeetha R, Uma K, Chandavarkar V. Comparison of routine decalcification methods with microwave decalcification of bone and teeth. J Oral Maxillofac Pathol. 2013;17(3):386-391.
- Yip RKH, et al. Profiling the spatial architecture of multiple myeloma in human bone marrow trephine biopsy specimens with spatial transcriptomics. Blood. 2025;146(15):1837-1849.
- Miquelestorena-Standley E, et al. Effect of decalcification protocols on immunohistochemistry and molecular analyses of bone samples. Mod Pathol. 2020;33(8):1505-1517.
- Ambrosi TH, et al. Human skeletal development and regeneration are shaped by functional diversity of stem cells across skeletal sites. Cell Stem Cell. 2025;32(5):811-823.e11.
- 10x Genomics. Visium Spatial Platform. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/platforms/visium#assays
- Amemiya K, et al. Influence of formalin fixation duration on RNA quality and quantity from formalin-fixed paraffin-embedded hepatocellular carcinoma tissues. Pathol Int. 2023;73(12):593-600.
- Srinivasan M, Sedmak D, Jewell S. Effect of fixatives and tissue processing on the content and integrity of nucleic acids. Am J Pathol. 2002;161(6):1961-1971.
- Nam SK, et al. Effects of fixation and storage of human tissue samples on nucleic acid preservation. Korean J Pathol. 2014;48(1):36-42.
- 10x Genomics. Visium Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000407, Revision E. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/spatial-gene-expression-ffpe/documentation/steps/library-construction/visium-spatial-gene-expression-reagent-kits-for-ffpe-user-guide
- Eccher A, et al. Pathology laboratory archives: conservation quality of nucleic acids and proteins for NSCLC molecular testing. J Pers Med. 2024;14(4):333.
- Bai Z, et al. Spatially exploring RNA biology in archival formalin-fixed paraffin-embedded tissues. Cell. 2024;187(23):6760-6779.e24.
- 10x Genomics. Visium CytAssist Spatial Gene Expression for FFPE—Tissue Preparation Guide. Document CG000518, Revision D. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/tissue-prep/visium-cyt-assist-spatial-gene-expression-for-ffpe-tissue-preparation-guide
- 10x Genomics. Visium CytAssist Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000495, Revision G. Pleasanton (CA): 10x Genomics. 2026. Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/library-construction/visium-cyt-assist-spatial-gene-expression-reagent-kits-for-ffpe
- Agilent Technologies. High Sensitivity RNA ScreenTape assay for TapeStation systems quick guide. Version A.01.05. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://www.agilent.com/cs/library/usermanuals/public/HS-RNA_QuickGuide.pdf
- Agilent Technologies. Agilent 4200 TapeStation system—System manual. Publication G2991-90000, Version A.02.02. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://download.chem.agilent.com/software/4200_tapestation_user_info_package_v2/tapestation%20user%20information/tapestation%20manuals/agilent%204200%20tapestation%20system%20manual_g2991-90000.pdf
- Larrayoz M, et al. Preclinical models for prediction of immunotherapy outcomes and immune evasion mechanisms in genetically heterogeneous multiple myeloma. Nat Med. 2023;29(3):632-645.
- Wang S. Resolving the bone – optimizing decalcification in spatial transcriptomics and molecular pathology. J Histotechnol. 2025;48(1):68-77.
- Oliveira MF, et al. High-definition spatial transcriptomic profiling of immune cell populations in colorectal cancer. Nat Genet. 2025;57(6):1512-1523.
- Bourgain-Chang E, Kuang X, Cang Z, Nie Q. Reconstructing single-cell resolution from spatial transcriptomics with CellRefiner. Nat Commun. 2026;17(1):3304.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny