W niniejszym materiale przedstawiamy szczegółową procedurę pomiaru rozpoznawania społecznego pomiędzy nowymi, krótkoterminowymi oraz długoterminowymi relacjami z wykorzystaniem behawioralnego paradygmatu doświadczalnego czterech kubków (Four Cups). Opisujemy zalety i potencjalne zastosowania tego paradygmatu, a także istotne informacje niezbędne do prawidłowej interpretacji wyników.
Artykuł metodologiczny
Paradygmat rozpoznawania społecznego u myszy w celu rozróżnienia relacji krótkoterminowych i długoterminowych
W tym artykule
Podsumowanie
Streszczenie
Pamięć społeczna to zdolność do zapamiętywania i rozpoznawania osobników tego samego gatunku. Jest to fundamentalny aspekt zachowania ssaków, wykazujący korzyści dla przetrwania u ssaków wysoce socjalnych, takich jak myszy i ludzie. Gryzonie, w szczególności myszy, stanowią ugruntowany model zwierzęcy szeroko wykorzystywany do badania pamięci społecznej oraz leżących u jej podstaw mechanizmów. Większość istniejących pamięć społeczna paradygmaty oceniają przede wszystkim krótkotrwałe rozpoznawanie społeczne, w którym czas trwania relacji oraz poziom znajomości między podmiotem a czynnikiem wynosi od 5 do 15 min. W związku z tym istniejące paradygmaty oraz badania z przeszłości nie rejestruj wspomnień społecznych z długotrwałych relacji i skup się na dychotomii nowości versus krótkotrwałej znajomości, pozostawiając istnieje znaczna luka w naszym mechanicznym rozumieniu pamięci społecznej. Aby ją wypełnić, opracowaliśmy prosty test pozwalający uchwycić reakcje myszy na różne stopnie zapoznania, co pozwala na umieszczenie złożonego procesu przypominania sobie informacji społecznych w kontekście możliwym do zaobserwowania i ilościowego określenia. W paradygmacie czterech kubków mysz badana swobodnie bada an arena zawierający cztery perforowane kubki umieszczone w każdym z narożników. W kubkach tych znajduje się trzy odczynnik myszy o różnym stopniu znajomości (bodźce społeczne): mysz znana długoterminowo (współmieszkaniec z klatki; 1 miesiąc wspólnego zakwaterowania), mysz znana krótkoterminowo (10 minut wcześniejszej ekspozycji), nowa mysz tego samego gatunku oraz pusty kubek jako kontrola. Samce myszy CD-1 wykazują preferencję do badania myszy nowej oraz znanej długoterminowo nad badaniem myszy krótkotrwale oswojonych w tym paradygmacie. To zadanie demonstruje rozpoznawanie stopnia znajomości i minimalizowanie zachowań agresywnych, przy jednoczesnym kontrolując pod kątem historia ekspozycji. Ten nowatorski test stanowi platformę do bezpośredniego porównywania neuronalne mechanizmy zachowań społecznych pamięć długotrwała, krótkotrwała i nowa osób. Paradygmat czterech kubków służy jako nowatorska pomiar dla długoterminowe rozpoznawanie znajomości, które uzupełni istniejące testy rozpoznawania krótkoterminowego.
Wprowadzenie
Pamięć społeczna jest kluczową cechą zachowań społecznych ssaków i jest szczególnie rozwinięta u gatunków wysoce społecznych, takich jak myszy i ludzie. U gryzoni rozpoznawanie innych osobników leży u podstaw dynamiki behawioralnej krytycznej dla przetrwania w obrębie rodzin i grup osobników tego samego gatunku, w tym spójności grupy, hierarchii dominacji, zachowań kopulacyjnych i opieki rodzicielskiej1,2. Oprócz ewolucyjnie korzystnej roli w przetrwaniu zwierząt, zaburzenia pamięci społecznej u ludzi są powszechną cechą wielu zaburzeń neuropsychiatrycznych i neurologicznych, w tym zaburzeń spektrum autyzmu, schizofrenii i choroby Alzheimera3,4,5,6. Ponieważ rozpoznawanie społeczne jest fundamentalne dla codziennego funkcjonowania gatunków społecznych i ma jasne znaczenie kliniczne, opracowanie testów behawioralnych, które dokładnie oddają jego wielowymiarowy charakter i podłoże neuronalne, jest niezwykle istotne. Chociaż istniejące paradygmaty mierzą niektóre aspekty rozpoznawania społecznego u myszy, większość testów została zaprojektowana tak, aby oceniać preferencje nowości poprzez porównywanie relacji nowych i krótkotrwałych tworzonych w ciągu minut lub godzin, a nie kwantyfikować rozpoznawanie długotrwałych relacji społecznych.
Istniejące podejścia, takie jak paradygmat trzech komór lub paradygmaty habituacji i dyshabituacji, oceniają preferencję nowości po jedynie krótkiej wcześniejszej ekspozycji, często ograniczonej do 5–15 minut.7,8,9,10,11Te metody dostarczyliśmy istotny wgląd w mechanizmy neuronalne z te krótkotrwałe społeczne pamięć u myszy12,13. Jednakże, naturalistyczne pamięci społeczne oraz funkcje społeczne muszą uwzględniać odrębne mechanizmy występujące w relacjach długoterminowych, wypracowany poprzez długotrwałe współżycie hierarchie społeczne lub partnerzy do kojarzenia. Choć w niektórych badaniach stosuje się paradygmat trzech komór z wykorzystaniem osobników z jednego miotu14 lub znajome myszy kwaterowane razem z osobnikiem przez maksymalnie 72 h15,16głównym zastosowaniem tego paradygmatu nadal pozostaje prosta dychotomia: nowa vs znana mysz. Ogranicza to możliwość porównań pomiędzy wieloma różnymi znanymi myszami. Ugruntowane paradygmaty rozpoznawania społecznego są ukierunkowane na badanie w zakresie relacji krótkoterminowych, identyfikujemy wyraźną lukę w naszej wiedzy na temat mechanizmów neuronalnych leżących u podstaw społecznego rozpoznawania w relacjach długoterminowych.
Aby rozwiązać to ograniczenie, opracowaliśmy paradygmat czterech kubków: prosty i elastyczny test zaprojektowany w celu zróżnicowania rozpoznawanie wielu poziomów znajomości społecznej w obrębie jednej sesji testowej. W tym paradygmacie mysz badana eksploruje cztery narożniki otwartej areny, każdy zawierający a perforowany kubek trzymanie a konspecyficzny lub kontrolną pustą probówkę. Kubki zawierają osobnika tego samego gatunku, z którym badany zwierzę przebywa w jednej klatce od dłuższego czasu (współmieszkańca klatki), a krótkotrwałe oswojenie konspecyficzny z ograniczoną wcześniejszą ekspozycją (10 min), a nowatorski mysz oraz an Tekst źródłowy jest pusty. Proszę dostarczyć treść do przetłumaczenia. kontrolna. Czas badania służy jako ilościowy wskaźnik rozpoznawania społecznego i preferencji społecznych. Taka konfiguracja umożliwia jednoczesne porównania pomiędzy różnymi poziomami zaznajomienia, przy jednoczesnym zminimalizowaniu bezpośrednich interakcji fizycznych oraz potencjalnych agresywnych starć.
Protokół
Wszystkie procedury z udziałem zwierząt muszą być wykonywane zgodnie z wytycznymi instytucjonalnymi i zatwierdzone przez Instytucjonalną Komisję ds. Opieki i Wykorzystania Zwierząt (IACUC) Uniwersytetu Florydy.
1. Przygotowanie i zakwaterowanie zwierząt
- We wszystkich eksperymentach należy wykorzystać dorosłe myszy tej samej płci utrzymywane w grupach . Przed badaniami eksperymentalnymi myszy należy poddawać manipulacjom przez co najmniej 2 dni, aby przyzwyczaić je do dotyku i zmniejszyć poziom lęku.
- Myszy należy trzymać w standardowych klatkach laboratoryjnych w odwróconym cyklu światło-ciemność, z dostępem do pożywienia i wody ad libitum.
UWAGA: W reprezentatywnych eksperymentach wykorzystano dorosłe myszy CD-1 i C57BL/6 (w wieku 3–4 miesięcy). Myszy utrzymywano w grupach po 3–4 zwierzęta w klatce. Reprezentatywne zestawy danych obejmowały 10 samców CD-1, 12 samic CD-1 oraz 31 samców C57BL/6. Badania behawioralne należy przeprowadzać w fazie aktywności badanego zwierzęcia (fazie ciemnej). Myszy uwzględnione w niniejszym badaniu poddawano testom w godzinach 9:00–18:00 i utrzymywano w odwróconym cyklu światło-ciemność (faza ciemna od 8:00 do 20:00). - Jako długotrwale znanego osobnika definiuje się współmieszka tej samej linii i płci , która zamieszkiwała tę samą klatkę z badaną myszą przez minimum 3–4 tygodnie przed testami.
- Należy wybrać krótkotrwale znane oraz nowe osobniki konspecyficzne tej samej linii i płci co badana mysz.
- Należy upewnić się, że nowe myszy nie miały wcześniej kontaktu fizycznego ani węchowego z badaną myszą.
- Nowego osobnika oraz osobnika krótkotrwale znanego należy wybrać z różnych klatek domowych, aby uniknąć podobnych sygnałów węchowych u tych dwóch zwierząt.
UWAGA: Należy zapisywać przybliżony wiek wszystkich wykorzystanych zwierząt i ograniczyć wielokrotne wykorzystywanie tych samych nowych oraz krótkotrwale znanych osobników w ciągu jednego dnia. W przypadku ponownego wykorzystania osobników, należy zapewnić przerwę >2 h w klatce domowej pomiędzy próbami testowymi, aby uniknąć stresu u zwierząt.
2. Przygotowanie areny
- Umieść czysty, kwadratowa arena otwartego pola (49,5 cm x 49,5 cm x 49,5 cm; Tabela materiałów) w cichym pomieszczeniu do testów behawioralnych.
- Oświetl obszar za pomocą jednej wysokiej lampy lub lampy podsufitowej ustawionej na około 8–20 luksów.
- Umieść cztery identycznie zważone perforowane plastikowe kubki w każdym z narożników areny (Rysunek 1A).
- W miarę możliwości należy używać kubków identycznych pod względem wizualnym. W przypadku zastosowania kubków w różnych kolorach należy przeprowadzić przeciwbilansowanie przydziału i rozmieszczenia kubków w kolejnych próbach.
- Przyciskaj dwie strony każdego naczynia przemyć przeciwko ścianom areny w celu ograniczenia dostępu, co minimalizuje zachowania ukrywania się i standaryzuje kąty badania.
- Należy używać kubków, które są wystarczająco ciężkie, aby zapobiec ucieczce, i wystarczająco wysokie, aby zapobiec wspinaniu się.
UWAGA: W niniejszym badaniu reprezentatywne kubki z danymi oraz lokalizacja agenta zostały spseudorandomizowane pomiędzy badanymi poprzez obracanie kolorowych plastikowych kubków zgodnie z ruchem wskazówek zegara, podczas gdy typ agenta zmieniał się przeciwnie do ruchu wskazówek zegara w kolejnych próbach.
- Miejsce kamera wystarczająco wysoki, aby cały test pudełko znajduje się w kadrze, aby uniknąć martwych pól podczas kodowania behawioralnego. Należy zachować minimalne odblaski i zapewnić stałe oświetlenie całej powierzchni dna pudełka (Rycina 1A).
- Dokładnie oczyść podłoże areny oraz kubki pomiędzy próbami, używając odpowiedni środek dezynfekujący, następnie przemyto wodą w celu usunięcia resztek zapachowych.
- Należy pozwolić na całkowite wyschnięcie areny przed ponownym wprowadzeniem osobników. zwierzęta
3. Habituacja do areny w dniu 0
- Umieść badany obiekt oraz jego współmieszkańców z klatki w arenie zawierającej cztery puste perforowane kubki i pozwól im na swobodną eksplorację przez 20 min.
UWAGA: W przypadku eksperymentów z użyciem uwięzi należy poddać badane obiekty habituacji indywidualnie. Może być konieczne przeprowadzenie dodatkowych sesji habituacji. Zaleca się przeprowadzenie habituacji przez kilka dni, jeśli myszy nie eksplorują w pełni całej areny po pierwszym dniu. - Usuń wszystkie myszy z areny i przenieś je z powrotem do klatki macierzystej.
- Umieść wszystkie agenty społeczne pod kubkami na 10 min, aby przyzwyczaić je do ograniczenia ruchów. Habituuj agentów z tej samej klatki macierzystej jednocześnie, po jednym w każdym kubku (Rycina 1B).
- Oczyść arenę oraz kubki przed wprowadzeniem myszy z nowej klatki macierzystej.
UWAGA: Przed rozpoczęciem sesji pozwól myszom odpocząć przez co najmniej 15 min po transporcie do pomieszczenia.
4. Poziom bazowy
- Przygotuj arenę zgodnie z sekcją 2. Zachowaj tę samą konfigurację areny przez wszystkie dni eksperymentu.
- Umieść badany osobnik w arenie zawierającej cztery puste kubki i pozwól na swobodną eksplorację przez 10 min.
UWAGA: Nie przerywaj nagrywania w żadnym momencie, aby zapewnić ciągły zapis podczas wszystkich etapów bieżącej próby.
5. Akwizycja krótkoterminowa
- Użyj obciążonego perforowanego kubka, aby ograniczyć ruchy badanego zwierzęcia, umieszczając pod nim wyznaczonego agenta „krótkoterminowego znajomego” . Alternatywnie wystaw badanego na działanie agenta krótkoterminowego w czystej klatce.
- W przypadku wyboru ekspozycji w arenie, umieść wyznaczonego krótkoterminowego znajomego agenta pod jednym perforowanym kubkiem w arenie, pozostawiając pozostałe trzy kubki puste.
- Wypuść badanego i pozostaw go na swobodną eksplorację przez 10 min (Rysunek 1B).
UWAGA: W przypadku zastosowania metody ekspozycji na agenta krótkoterminowego w arenie, należy zmieniać róg wykorzystywany dla agenta krótkoterminowego w zależności od badanego zwierzęcia, aby uniknąć błędu przestrzennego.
6. Odstęp między próbami (ITI)
- Odbierz krótkotrwale zapoznanego agenta i umieść go z powrotem w jego domowej klatce. Pozostaw mysz badaną samotnie w arenie , aby mogła swobodnie poruszać się przez 10 min.
- Przygotuj nowe oraz długotrwale zapoznane myszy agenty do fazy testowej.
UWAGA: Krótkotrwale zapoznanego agenta należy umieścić w tym samym kubku, który był używany podczas krótkotrwałego zapoznawania (sekcja 5). Jest to zalecane w celu uniknięcia efektu nowości w lokalizacji przestrzennej w przypadku przeprowadzania krótkotrwałego zapoznawania w arenie.
7. Faza rozpoznawania społecznego
- Umieść dodatkowy obciążony perforowany kubek na myszy badanej.
- Umieść po jednej myszy pod każdym z trzech obciążonych perforowanych kubków: znajomego z długoterminowej współdzielonej klatki (cagemate), znajomego z krótkoterminowej interakcji oraz nową osobniczkę tego samego gatunku. Pozostaw wyznaczony czwarty kubek pusty jako kontrolę.
UWAGA: Oznacz góry kubków, aby zidentyfikować położenie bodźców podczas oceny behawioralnej. - Zdejmij perforowany kubek z myszy badanej znajdującej się w centrum areny i pozwól na swobodną eksplorację przez 10 min (Rycina 1A).
- Usuń wszystkie myszy po zakończeniu 10 min interwału i zatrzymaj nagrywanie.
- Wróć wszystkie myszy do ich macierzystych klatek.
- Dokładnie wyczyść arenę i kubki przed kolejną próbą.
UWAGA: Miej przygotowane zapasowe kubki na wypadek uszkodzenia.
8. Ocena behawioralna
- Zaimportuj wszystkie nagrane filmy do oprogramowania do analizy behawioralnej umożliwiającego ręczną adnotację, takiego jak Behavioral Observation Research Interactive Software (BORIS).
UWAGA: Ocena behawioralna nie była przeprowadzana w sposób zaślepiony pod kątem lokalizacji współmieszkańców klatki, ponieważ etykiety z identyfikatorem agenta znajdowały się nad każdym kubkiem i były widoczne na filmach, a numer klatki można było wywnioskować. Osoby oceniające nie zwracały aktywnej uwagi na widoczne etykiety i nie znały tożsamości agenta nowego oraz krótkoterminowego. Wszyscy oceniający stosowali predefiniowane definicje operacyjne zachowań badawczych oraz zstandaryzowane kryteria oceny. - Zdefiniuj macierz behawioralną przed rozpoczęciem oceny.
- Zdefiniuj epizod badania jako sytuację, w której mysz badana umieszcza nos w odległości 1 cm od kubka, wykazując trwałą posturę badawczą.
UWAGA: Za epizody badania należy uznawać gryzienie i żucie skierowane w stronę kubka. - Ręcznie adnotuj całkowity czas trwania badania dla każdego kubka w trakcie 10-minutowej fazy testu rozpoznawania społecznego. Oceń poziom bazowy i nabywanie zgodnie z potrzebami.
UWAGA: Można zastosować zautomatyzowane śledzenie pozy z półkolistym obszarem zainteresowania o promieniu 1 cm wokół każdego kubka. - Eksportuj adnotowane dane do następującej analizy statystycznej.
Wyniki
Zgodnie z protokołem paradygmatu czterech kubków, samce myszy szczepu CD-1 wykazały zróżnicowane zachowania w badaniu społecznym w stosunku do osobników długotrwale znanych (współmieszkańców klatki), krótkotrwale znanych oraz nowych osobników tego samego gatunku (Rysunek 2). Dla każdego agenta obliczono indeks dyskryminacji (DI) na podstawie liczby sekund spędzonych na badaniu tego agenta w porównaniu do pustego kubka, obliczany jako (agent − pusty)/(agent + pusty) podczas 10-minutowej fazy rozpoznawania społecznego. Indeks ten miał rozkład normalny na podstawie testu Shapiro-Wilka; w związku z tym zastosowano testy statystyczne zakładające normalność danych. Myszy wykazały istotnie większą dyskryminację w stosunku do nowego osobnika w porównaniu do osobnika krótkotrwale znanego (Rysunek 2; nowy vs krótkotrwale znany t(9) = 3.70, p po korekcie Bonferroniego-Holma = 0.01). Paradygmat wykazał również, że myszy przejawiały istotnie większą dyskryminację w stosunku do długotrwale znanego współmieszkańca klatki w porównaniu do osobnika krótkotrwale znanego (Rysunek 2; współmieszkaniec vs krótkotrwale znany t(9) = 2.87, p po korekcie Bonferroniego-Holma = 0.04). Nie stwierdzono istotnej różnicy w dyskryminacji między nowym osobnikiem a współmieszkańcem klatki (Rysunek 2; nowy vs współmieszkaniec t(9) = -1.13, skorygowane p = 0.29), co sugeruje, że myszy preferencyjnie badały zarówno nowe, jak i długotrwale znane osobniki w porównaniu do myszy krótkotrwale znanej. Czas badania w każdym miejscu ustawienia kubka podczas baseline'u w pustej arenie nie różnił się w zależności od tego, który agent społeczny zajmie później tę konkretną pozycję kubka, co potwierdza, że wyniki nie wynikały z wcześniejszej preferencji konkretnego kubka (baseline nowy vs baseline współmieszkaniec t(9) = -1.9, p = 0.23; baseline nowy vs krótkotrwale znany t(9) = -1.97, p = 0.23; baseline współmieszkaniec vs krótkotrwale znany t(9) = 0.54, p = 0.60).
W przeciwieństwie do nich, samice myszy CD-1 nie wykazały istotnych różnic w indeksie dyskryminacji pomiędzy osobnikami nowymi, znanymi krótko- i długoterminowo (Rycina 3). Nie zaobserwowano istotnych różnic pomiędzy osobnikami nowymi a znanymi krótkoterminowo (p = 0,35), nowymi a współlokatorami z klatki (p = 0,69) oraz znanymi krótkoterminowo a współlokatorami z klatki (p = 0,70). Samice myszy w szerokim zakresie badały wszystkie bodźce nad pustym kubkiem, wykazując odmienny wzorzec zachowania w tym zadaniu, co może odzwierciedlać większą socjalność w porównaniu z samcami myszy.
Podobnie u samców myszy C57BL/6 zaobserwowano trend w tym samym kierunku, z silniejszą dyskryminacją w stronę nowego osobnika tego samego gatunku niż w stronę osobnika znanego krótkoterminowo. Różnica ta zbliżyła się do istotności, ale jej nie osiągnęła po zastosowaniu korekcji Bonferroniego-Holma, co sugeruje większą wariancję międzyosobniczą w tej większej kohorcie C57BL/6 (n = 31) niż u samców CD-1 (Rycina 4; skorygowane p = 0,055). Nie zaobserwowano istotnych różnic między nowym osobnikiem a współlokatorem z klatki (p = 0,62) ani między osobnikiem znanym krótkoterminowo a współlokatorem z klatki (p = 0,62). Wyniki te sugerują, że silne zachowania badawcze wobec współlokatorów z klatki obserwowane u samców CD1 różnią się w zależności od szczepu i płci.
Aby ustalić, czy dominacja społeczna przyczyniła się do badania współlokatorów z klatki, wyniki oceny znakowania moczem według Davida skorelowano z indeksem rozróżniania współlokatorów. Nie zaobserwowano istotnej korelacji ani u samców myszy CD-1 (Pearson's r = 0.28, p = 0.44), ani u samców myszy C57BL/6 (Pearson's r = 0.10, p = 0.57), co sugeruje, że ranga społeczna nie miała wpływu na indeks rozróżniania współlokatorów.
Łącznie wyniki te wykazują, że paradygmat czterech kubków pozwala wykryć różnice w badaniu społecznym, jednocześnie oceniając długo- i krótkotrwałą znajomość, a także nowość społeczną w ramach jednej sesji behawioralnej. Co istotne, płeć i szczep mogą wpływać na zachowanie w tym teście.
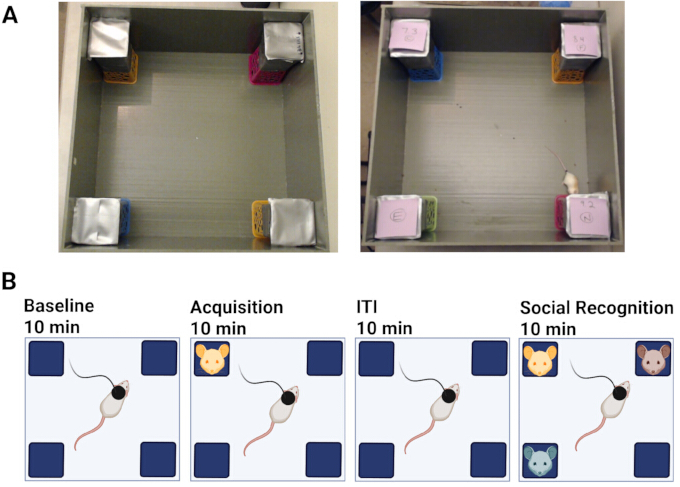
Rycina 1Konfiguracja i proces eksperymentalny paradygmatu czterech kubków. (A) Po lewej: pudełko do paradygmatu czterech kubków z czterema perforowanymi, pustymi kubkami. Po prawej: badany eksplorujący pudełko do paradygmatu czterech kubków z czterema perforowanymi kubkami, w których znajdują się agenci. Etykiety wskazują tożsamość agenta społecznego w celu ułatwienia dokładnej oceny behawioralnej. (B) Schemat behawioralny dla 1. dnia paradygmatu. Kolory myszy wskazują tożsamość osobników. Należy zauważyć, że zdjęcia wykonano z użyciem lampy błyskowej, co sprawia, że arena wydaje się jasna w porównaniu do oświetlenia o natężeniu 8–20 luksów stosowanego podczas eksperymentów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
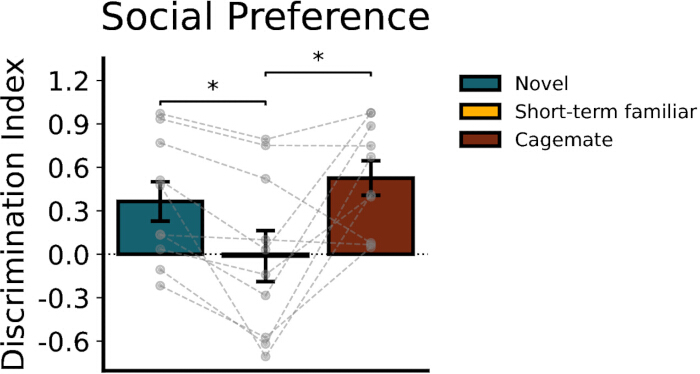
Rycina 2: Preferencja społeczna w paradygmacie czterech kubków u samców myszy CD-1Wskaźnik dyskryminacji (DI) dla badania osobników nowych, zapoznanych krótkoterminowo oraz zapoznanych długoterminowo (współmieszkańców klatki) podczas 10-minutowej fazy rozpoznawania społecznego. DI obliczono jako (agent – pusta klatka)/(agent + pusta klatka). Myszy wykazały istotnie większą dyskryminację w stosunku do osobników nowych oraz współmieszkańców klatki w porównaniu z osobnikiem zapoznanym krótkoterminowo (p < 0,05), podczas gdy nie zaobserwowano istotnej różnicy między dyskryminacją obiektu nowego a współlokatora z klatki. Dane przedstawiono jako średnia ± błąd standardowy dla 10 myszy. Porównania statystyczne przeprowadzono z użyciem testów dla par t-testy z korektą Bonferroniego-Holma dla porównań wielokrotnych. *p < 0.05. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
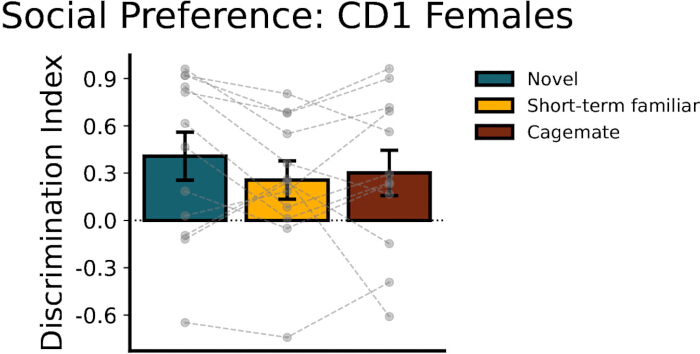
Rysunek 3Preferencje społeczne w paradygmacie czterech kubków u samic myszy CD-1Indeks dyskryminacji (DI) dla badania nowych, krótko rozpoznanych i długo rozpoznanych (współmieszkańców klatki) osobników tego samego gatunku podczas 10-minutowej fazy rozpoznania społecznego. DI obliczono według wzoru (agent – pusta klatka)/(agent + pusta klatka). Nie zaobserwowano istotnych różnic w indeksie dyskryminacji pomiędzy trzema bodźcami społecznymi. Dane przedstawiono jako średnią ± błąd standardowy średniej dla 12 myszy. Porównania statystyczne przeprowadzono przy użyciu testu dla par t-testy z korektą Bonferroniego-Holma dla wielokrotnych porównań. *p < 0.05. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
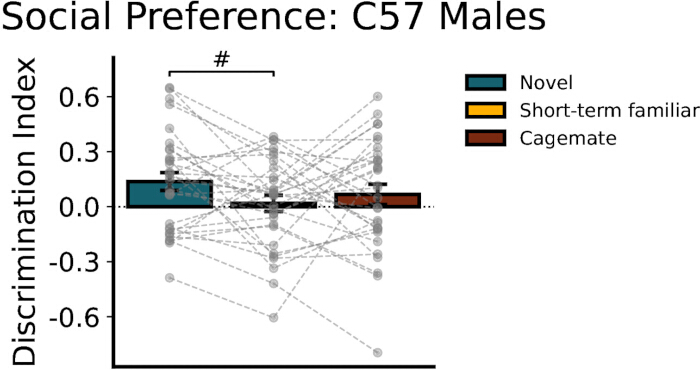
Rycina 4Preferencje społeczne w paradygmacie czterech kubków u samców myszy C57BL/6Wskaźnik dyskryminacji (DI) dla badania osobników nowo poznanych, krótkotrwale znanych oraz długotrwale znanych (współmieszkańców klatki) podczas 10-minutowej fazy rozpoznawania społecznego. DI obliczono jako (agent − pusta klatka)/(agent + pusta klatka). Zaobserwowano tendencję do silniejszej dyskryminacji osobnika nowo poznanego niż osobnika krótkotrwale znanego, jednak nie pozostała ona istotna po zastosowaniu korekty Bonferroniego-Holma (p = 0,05). Nie zaobserwowano istotnych różnic między nowymi osobnikami a współlokatorami klatkowymi oraz między osobnikami znanymi z krótkiego okresu a współlokatorami klatkowymi. Dane przedstawiono jako średnią ± błąd standardowy średniej dla 31 myszy. Porównania statystyczne przeprowadzono z użyciem testów dla par t– testy z poprawką Bonferroniego-Holma dla wielokrotnych porównań. #p < 0.06. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Istnieją kluczowe kwestie dotyczące zastosowania paradygmatu czterech kubków w celu efektywnego i wiarygodnego pomiaru tych dynamik społecznych w innych warunkach laboratoryjnych. Habituacja w dniu 0 zmniejsza niespołeczną eksplorację areny i kubków napędzaną nowością, co w przeciwnym razie mogłoby maskować badanie społeczne podczas testów7,8,9. Precyzyjna kontrola czasu trwania krótkotrwałego zapoznania jest również niezbędna, ponieważ niewielkie różnice w czasie ekspozycji mogą znacząco zmienić późniejsze wzorce preferencji8,9,10. 10-minutowy okres zapoznania wybrano w celu ustanowienia trwałej krótkotrwałej pamięci społecznej, pozostając jednocześnie w zgodzie z wcześniej opisanymi paradygmatami rozpoznawania społecznego, które wykorzystują krótkie okresy ekspozycji do rozróżnienia osobników znanych od nowych przedstawicieli tego samego gatunku7,8,10. Dodatkowo, wybrano 3–4 tygodniowy okres wspólnego utrzymywania w jednej klatce, aby ustanowić stabilną długoterminową znajomość społeczną poprzez przedłużoną kohabitację, a nie powtarzalne krótkie ekspozycje. Ten czas trwania zapewnia wystarczającą możliwość trwałych interakcji społecznych i sformowania trwałej znajomości między współmieszkańcami klatki10. Rozróżnienie między 10-minutowym okresem zapoznania a 3–4 tygodniowym okresem wspólnego utrzymywania było celowo zaprojektowane, aby stworzyć dwa jakościowo różne poziomy znajomości (niedawną i długoterminową) w ramach tej samej sesji behawioralnej. Podczas eksperymentów konieczne jest zrównoważenie (counterbalancing) tożsamości agentów w różnych pozycjach kubków pomiędzy próbami, aby kontrolować wrodzone uprzedzenia przestrzenne u myszy7,8. Powtarzalne wykorzystywanie myszy-agentów w kolejnych próbach może zmienić ich poziom stresu, a tym samym wpłynąć na zachowania badawcze obiektu testowanego. Aby zminimalizować potencjalne zmienne zakłócające, myszy-agenci nie były wielokrotnie wykorzystywane w ciągu jednego dnia testowania, jeśli było to możliwe, a tożsamość agenta i lokalizacja kubka były zrównoważone pomiędzy obiektami. Ponadto, ponieważ dominacja społeczna ma potencjał wpływania na badanie społeczne, hierarchię dominacji oceniono za pomocą dominacji opartej na terytorium oraz wskaźników Davida (David scores). Nie zaobserwowano istotnego związku między wskaźnikiem Davida a indeksem dyskryminacji współmieszkańców klatki u samców myszy CD-1 i samców myszy C57BL/6, co sugeruje, że obserwowana preferencja dla długoterminowo znanych osobników tego samego gatunku nie wynikała ze statusu dominacji. Podczas analizy wymagane są spójne operacyjne definicje zachowań badawczych, w szczególności czasu trwania badania, aby zapewnić powtarzalność wyników między oceniającymi i kohortami eksperymentalnymi. Jednym z potencjalnych wyzwań we wszystkich paradygmatach społecznych opartych na badaniu są tzw. „efekty podłogowe” (floor effects) – czasy badania bliskie zeru, które uniemożliwiają porównania. W przypadku szczepów myszy wykazujących niski poziom badania społecznego, dalsze zmniejszenie widocznego oświetlenia i zastosowanie podczerwonego śledzenia wideo może zredukować lęk i zwiększyć zachowania eksploracyjne.
Protokół pozwala na elastyczność i modyfikacje w zależności od celów eksperymentalnych, jednak niektóre adaptacje wymagają uważnego rozważenia. Materiał kubka jest kluczową zmienną w analizie. Choć w niniejszym protokole zastosowano perforowane kubki plastikowe, dociążone kubki metalowe z mniejszymi perforacjami mogą ograniczyć gryzienie i próby ucieczki w porównaniu z lekkimi kubkami plastikowymi. Użycie kubków plastikowych może nasilić zachowania manipulacyjne, w tym gryzienie lub wspinanie się, co powinno być monitorowane i odnotowywane podczas oceny. Alternatywnym podejściem jest zastąpienie perforowanych kubków wysokimi, perforowanymi przegrodami pionowymi, które oddzielają każdy narożnik od centralnej areny, zachowując jednocześnie komunikację węchową i ograniczoną wizualną. Chociaż taka konstrukcja może dodatkowo zredukować zachowania wspinaczkowe, usuwalne perforowane kubki zapewniają praktyczną zaletę szybkiej konwersji standardowej areny otwartego pola w paradygmat czterech kubków bez konieczności wprowadzania trwałych modyfikacji. Nadmierne interakcje z kubkami można ograniczyć poprzez zwiększenie ich masy, zmianę rozmiaru perforacji oraz zachowanie spójnej kolorystyki w celu zredukowania źródeł błędu. Ponadto myszy agenta powinny być stosowane w systemie counterbalancingu i nie powinny być ponownie wykorzystywane w ciągu jednego dnia testowego, aby ograniczyć niezamierzone efekty zapoznania.
Należy uwzględnić kilka ograniczeń paradygmatu czterech kubków. Ponieważ interakcje społeczne są ograniczone przez perforowane bariery, test ten ocenia przede wszystkim badanie inicjowane przez badanego, o charakterze nierozpowszechnionym, opierające się na wskazówkach węchowych i ograniczonych sygnałach wizualnych, a nie na bezpośrednim kontakcie fizycznym8,9. Co więcej, zastosowanie kubków jako bariery fizycznej i wizualnej wprowadza potencjalną niejednoznaczność w interpretacji zachowań badawczych. W przypadkach, gdy obserwuje się zwiększoną eksplorację współmieszkańców klatki, szczególnie u samców CD-1, pozostaje niejasne, czy odzwierciedla to jedynie rozpoznawanie społeczne, czy kombinację zachowań badawczych i motywacji afiliacyjnej, w tym zachowania pomocnicze wobec znajomego przedstawiciela tego samego gatunku (np. próby pomocy w ucieczce współmieszkańcowi poprzez gryzienie plastikowego kubka). Rozważania te podkreślają znaczenie ostrożnej interpretacji oraz, whenever possible, stosowania uzupełniających testów behawioralnych. Istniejące wcześniej relacje społeczne między współmieszkańcami klatki, w tym hierarchia dominacji, interakcje afiliacyjne i wcześniejsze doświadczenia społeczne, mogą również wpływać na preferencje w badaniu. Nie zaobserwowano jednak wyraźnego związku między rangą dominacji a zachowaniem badawczym wobec współmieszkańców. Niemniej jednak czynniki te mogą się różnić w zależności od szczepu, warunków bytowania i paradygmatów eksperymentalnych i powinny być brane pod uwagę przy interpretacji preferencji związanych z długotrwałą znajomością.
W porównaniu z istniejącymi testami rozpoznawania społecznego, paradygmat czterech kubków umożliwia jednoczesne porównanie wielu osobników, takich jak osobnik znany długoterminowo, znany krótkoterminowo oraz nowy przedstawiciel tego samego gatunku, w ramach jednej sesji behawioralnej. Tradycyjne paradygmaty, takie jak testy trzykomorowe oraz testy habituacji i dyshabituacji, oceniają głównie krótkoterminową preferencję nowości po krótkich okresach ekspozycji7,8,9,10. W poprzednich badaniach uwzględniano również długoterminowych współmieszkańców klatki obok nowych osobników, w tym w paradygmatach nieograniczonych interakcji społecznych oraz zmodyfikowanych arenach wielokomorowych zaprojektowanych do oceny znajomości społecznej17,18. Jednakże podejścia te nie pozwalają na jednoczesne porównanie bodźców społecznych znanych długoterminowo, krótkoterminowo i nowych w ramach jednego testu. Poprzez włączenie długoterminowych współmieszkańców klatki wraz z osobnikami znanymi krótkoterminowo, paradygmat czterech kubków dostarcza narzędzia do badania trwałych pamięci społecznych wynikających z przedłużonej kohabitacji. Reprezentatywne dane od myszy CD-1 obu płci wykazują, że paradygmat czterech kubków może być z sukcesem stosowany u obu płci, ukazując specyficzne dla płci wzorce behawioralne. Podobnie, reprezentatywne dane od myszy CD-1 i C57BL/6 dodatkowo dowodzą, że paradygmat czterech kubków może być skutecznie wdrożony w wielu powszechnie stosowanych szczepach laboratoryjnych. Chociaż rozpoznawanie społeczne i preferencja nowości często różnią się w zależności od szczepu myszy7,19, ogólny wzorzec dyskryminacji stopnia znajomości zaobserwowany u samców obu szczepów sugeruje, że test ten jest szeroko zastosowalny. Niemniej jednak, ponieważ zachowania związane z rozpoznawaniem społecznym mogą różnić się w zależności od szczepu, płci, wieku i kontekstu eksperymentalnego, badacze powinni zwalidować test w konkretnym modelu zwierzęcym istotnym dla ich pytania badawczego. Ponadto, choć paradygmat ten mógłby zostać zaadaptowany do areny czteroramiennej lub czterokomorowej, przeprowadzenie go w arenie otwartego pola pozwala na większe oddzielenie pamięci nawigacyjnej i przestrzennej od pamięci społecznej. Obciążenie pamięci przestrzennej jest większe podczas nawigowania po oddzielnych przedziałach lub ramionach; dlatego w celu badania mechanizmów pamięci społecznej pamięć przestrzenna powinna być istotną zmienną podlegającą ocenie. Netser i wsp. (2017) omawiają również te zastrzeżenia w odniesieniu do typowej areny testowej trzykomorowej, proponując analogiczną alternatywę w postaci areny dwukomorowej, która minimalizuje potrzebę nawigacji przestrzennej20. Metoda ta jest dobrze dostosowana do badań nad neuronową reprezentacją znajomości społecznej, podłużnymi zmianami w poznaniu społecznym oraz stanami, w których długotrwała pamięć społeczna może być selektywnie zaburzona.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Praca ta była wspierana przez granty McKnight Neuroscience Award oraz Klingenstein Neuroscience Award przyznane NPC.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Oprogramowanie do oceny behawioralnej | Behavioral Observation Research Interactive Software | Wersja 9.12.7 | Oprogramowanie do ręcznej adnotacji zdarzeń |
| Arena open-field | Rafferty Machine and Tool | Wykonana na zamówienie | Strukturalna płyta z włókna szklanego FRP, kwadratowa arena (49.5 cm x 49.5 cm x 49.5 cm); nieprzezroczyste ściany; jeśli arena jest przezroczysta, należy zakryć zewnętrzne ściany papierem, aby zminimalizować rozproszenie uwagi zwierzęcia |
| Kamera nadbudowana | Logitech | Logitech C920x HD Pro PC Webcam | Kamera umożliwiająca ciągły zapis wideo; zamontowana nad środkiem areny |
| Perforowane kubki | Chinco Store | ONG-Chinco-0279 | wymiary kubków: 4.01"L x 4.01"W x 4.52"H; perforowane kubki plastikowe lub metalowe, mogą być kwadratowe lub cylindryczne |
| Prism | Graph Pad | Wersja 10.6.0 | Oprogramowanie do analizy danych; można użyć innego oprogramowania |
Bibliografia
- Wolff JO, Sherman PW, editors. Rodent societies: an ecological and evolutionary perspective. University of Chicago Press; Chicago; 2008.
- Thor DH, Holloway WR. Social memory of the male laboratory rat. J Comp Physiol Psychol. 1982;96(6):1000-1006.
- Theory of mind and autism: A review. International Review of Research in Mental Retardation. Academic Press; 2000.
- Bediou B, et al. Impaired social cognition in mild Alzheimer disease. J Geriatr Psychiatry Neurol. 2009;22(2):130-140.
- Green MF, Horan WP, Lee J. Social cognition in schizophrenia. Nat Rev Neurosci. 2015;16(10):620-631.
- Bäckman L, Herlitz A. The relationship between prior knowledge and face recognition memory in normal aging and Alzheimer's disease. J Gerontol. 1990;45(3):P94-P100.
- Moy SS, et al. Sociability and preference for social novelty in five inbred strains: An approach to assess autistic-like behavior in mice. Genes Brain Behav. 2004;3(5):287-302.
- Engelmann M, Hädicke J, Noack J. Testing declarative memory in laboratory rats and mice using the nonconditioned social discrimination procedure. Nat Protoc. 2011;6(8):1152-1162.
- van der Kooij MA, Sandi C. Social memories in rodents: Methods, mechanisms and modulation by stress. Neurosci Biobehav Rev. 2012;36(7):1763-1772.
- Cum M, et al. A systematic review and meta-analysis of how social memory is studied. Sci Rep. 2024;14(1):2221.
- Oliva A, Fernández-Ruiz A, Leroy F, Siegelbaum SA. Hippocampal CA2 sharp-wave ripples reactivate and promote social memory. Nature. 2020;587(7833):264-269.
- Oliva A. Neuronal ensemble dynamics in social memory. Curr Opin Neurobiol. 2023;78:102654.
- Okuyama T. Social memory engram in the hippocampus. Neurosci Res. 2018;129:17-23.
- Hitti FL, Siegelbaum SA. The hippocampal CA2 region is essential for social memory. Nature. 2014;508(7494):88-92.
- Dykstra B, Kim P, Lin A, Berman GJ, Murugan M. The intermediate CA1 and CA3 subfields of the hippocampus differentially encode social recognition. bioRxiv. 2025; doi.org/10.1101/2025.10.27.684580.
- Rashid M, et al. A ventral hippocampal-lateral septum pathway regulates social novelty preference. eLife. 2025;13:RP97259.
- Phillips ML, Robinson HA, Pozzo-Miller L. Ventral hippocampal projections to the medial prefrontal cortex regulate social memory. eLife. 2019;8:e44182.
- Medeiros D, Polepalli L, Li W, Pozzo-Miller L. Altered activity of mPFC pyramidal neurons and parvalbumin-expressing interneurons during social interactions in a Mecp2 mouse model for Rett syndrome. J Neurophysiol. 2025;134(6):2070-2085.
- Netser S, et al. Distinct dynamics of social motivation drive differential social behavior in laboratory rat and mouse strains. Nat Commun. 2020;11(1):5908.
- Netser S, Haskal S, Magalnik H, Wagner S. A novel system for tracking social preference dynamics in mice reveals sex- and strain-specific characteristics. Mol Autism. 2017;8:53.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny